Klasyczne warunkowanie (ECC) zostało użyte do oceny zależnego od hipokampa uczenia się asocjacyjnego u dorosłych szczurów, którym podawano wysokie stężenie (11,9% v/v) alkoholu podczas wczesnego rozwoju mózgu noworodka. Ogólnie rzecz biorąc, procedury ECC są solidnymi narzędziami diagnostycznymi do wykrywania dysfunkcji mózgu w wielu środowiskach psychologicznych i biomedycznych.
Artykuł metodologiczny
Zastosowanie klasycznego warunkowania śladowego mrugnięcia okiem do oceny dysfunkcji hipokampa w szczurzym modelu zaburzeń ze spektrum alkoholowych płodów
W tym artykule
Podsumowanie
Streszczenie
Nowonarodzonym szczurom podawano stosunkowo wysokie stężenie alkoholu etylowego (11,9% v/v) w dniach poporodowych 4-9, w czasie, gdy mózg płodu ulega szybkim zmianom organizacyjnym i jest podobny do przyspieszonych zmian w mózgu, które występują w trzecim trymestrze u ludzi. Ten model płodowych zaburzeń ze spektrum alkoholowego (FASD) powoduje poważne uszkodzenie mózgu, naśladując ilość i wzorzec upijania się, który występuje u niektórych ciężarnych matek alkoholiczek. Opisujemy zastosowanie klasycznego warunkowania śladowego mrugnięcia okiem (ECC), wariantu uczenia się asocjacyjnego wyższego rzędu, do oceny długotrwałej dysfunkcji hipokampa, która jest zwykle obserwowana u dorosłego potomstwa narażonego na działanie alkoholu. W wieku 90 dni gryzonie zostały chirurgicznie przygotowane za pomocą elektrod rejestrujących i stymulujących, które mierzyły aktywność elektromiograficznych (EMG) mrugnięć z mięśnia lewej powieki i dostarczały łagodny wstrząs odpowiednio do lewego oka. Po 5-dniowym okresie rekonwalescencji przeszli 6 sesji śledzenia ECC w celu określenia asocjacyjnych różnic w uczeniu się między szczurami narażonymi na działanie alkoholu a szczurami kontrolnymi. Trace ECC jest jedną z wielu możliwych procedur ECC, które można łatwo modyfikować przy użyciu tego samego sprzętu i oprogramowania, dzięki czemu można oceniać różne systemy neuronowe. Ogólnie rzecz biorąc, procedury ECC mogą być stosowane jako narzędzia diagnostyczne do wykrywania patologii neuronalnej w różnych układach mózgowych i różnych stanach, które obrażają mózg.
Wprowadzenie
Trudno uwierzyć, że w dzisiejszych czasach, przy lepszej opiece zdrowotnej i dostępie do usług medycznych, nadużywanie alkoholu pozostaje poważnym globalnym problemem zdrowotnym. Niestety wykazano, że kobieta w ciąży spożywająca duże ilości alkoholu może urodzić dziecko z ciężkim uszkodzeniem mózgu i zaburzeniami neurorozwojowymi trwającymi całe życie, co jest widoczne u osób cierpiących na płodowy zespół alkoholowy (FAS)1,2,3. U kobiet z potwierdzoną historią spożywania alkoholu w czasie ciąży rozwijający się płód jest podatny również na niewielkie ilości alkoholu lub różne wzorce jego spożycia, które powodują zmienne różnice w stężeniu alkoholu we krwi. W tym drugim przypadku, choć dzieci mogą nie wykazywać tak ciężkich zaburzeń morfologicznych lub neurobehawioralnych jak osoby z FAS, mogą one nadal przejawiać dożywotnie niepełnosprawności poznawcze i zaburzenia emocjonalne o nasileniu od łagodnego do ciężkiego3,4. Łącznie FAS oraz mniej nasilone formy prenatalnych zaburzeń wywołanych alkoholem stanowią zbiór zaburzeń z widma płodowego zespołu alkoholowego (FASDs). Nic dziwnego, że FASDs można całkowicie zapobiec, jednak zdumiewające jest to, że szacunki wskazują, iż w populacjach, w których nadużywanie alkoholu jest powszechne, pozostają one główną niegenetyczną przyczyną niepełnosprawności neuronalnej i poznawczej, dotykając około 2% do 5% dzieci w USA oraz w krajach europejskich, takich jak Francja i Szwecja. W odniesieniu do zapadalności na sam FAS w USA, częstość występowania wynosi od 2 do 7 na 1 0 żywych urodzeń5, co sugeruje, że całkowita zapadalność na FASDs jest znacznie wyższa niż w przypadku FAS.
Badania neuroobrazowe przeprowadzone u dzieci z FASD wykazały występowanie anomalii mózgowych, takich jak cieńsze ciało moje6, mniejszy przedni robaczek móżdżku7 oraz mniejszy hipokamp8. Anomalie te stanowią podłoże niektórych długoterminowych zaburzeń neuropoznawczych obserwowanych u dzieci z FASD. Dokładne powiązania łączące różnice w zmianach mózgu wywołanych spożyciem alkoholu przez matkę z różnicami w profilu (tj. rodzajem i zakresem) konkretnych deficytów neuropoznawczych nie zostały jeszcze jasno określone. Jednak jako punkt wyjścia hipokamp jest doskonałym kandydatem do oceny podatności na prenatalne działanie alkoholu. Rzeczywiście, dzieci z FASD wykazują deficyty w zachowaniach zależnych od hipokampa, takich jak uczenie się miejsca9,10 oraz opóźnione przypominanie sobie obiektów1.
Modele gryzoni w badaniach nad FASD okazały się nieocenione w wyjaśnianiu mechanizmów prowadzących do zaburzeń neuropoznawczych obserwowanych u dzieci z FASD. Przyjęty przez nas, dobrze ugruntowany model ekspozycji epizodycznej polega na podawaniu alkoholu szczurom w okresie od 4. do 9. dnia po urodzeniu12,13, czyli w czasie gwałtownego tworzenia się synaps i kontaktów dendrytycznych w mózgu, co odpowiada 24. tygodniowi rozwoju płodu u ludzi i rozciąga się na 3rd trymestr14,15,16,17. Ten konkretny model indukuje znaczną utratę neuronów hipokampa18,19 oraz neuronów w wielu innych obszarach mózgu, takich jak móżdżek12,13,14,15,16,17,18,19,20,21,2,23, co towarzyszy ciężkim upośledzeniom funkcji poznawczych w różnych domenach21,24,25. Zaburzenia poznawcze wynikające z wczesnej ekspozycji na alkohol u szczurów można oceniać na różne sposoby, w szczególności za pomocą klasycznego warunkowania mrugania (ECC). ECC to paradygmat wykorzystywany od ponad stu lat do naukowych badań nad podstawami uczenia się26,27, a zatem stanowi przydatną metodę lepszego zrozumienia niekorzystnych skutków neuropoznawczych wynikających z prenatalnej ekspozycji na alkohol. Jest to bardzo elastyczny paradygmat, który pozwala badaczom na stosowanie różnorodnych procedur ECC, z których każda może być badana u wielu gatunków ssaków na różnych poziomach skali filogenetycznej (od myszy do ludzi) oraz w różnych fazach rozwoju mózgu28,29,30,31. Co więcej, fundamentalne obwody neuronalne pośredniczące w uczeniu się asocjacyjnym w tym paradygmacie są potwierdzone w raportach eksperymentalnych i neuropsychologicznych u tych samych gatunków26,32,3,34,35,36,37.
W niniejszej pracy zaprezentowano jedną z form ECC, mianowicie ECC śladowe (ang. trace ECC) (Rycina 1). Dla zapewnienia kontekstu zestawiono ją z bardziej tradycyjną formą – ECC opóźnionym (ang. delay ECC). Paradygmat ECC oparto na klasycznym warunkowaniu z udziałem psów, po raz pierwszy przeprowadzonym przez laureata Nagrody Nobla, fizjologa Ivana Pavlova. Pavlov odkrył, że pewne bodźce, takie jak dźwięki, nie wywołują naturalnie ślinienia, ale gdy dźwięk poprzedza dostarczenie pokarmu i nakłada się na nie, reakcja ślinotwórcza może zostać wzmocniona poprzez wielokrotne prezentowanie obu bodźców, pod warunkiem utrzymania tej zależności między dźwiękiem a pokarmem. Jest to przykład ECC opóźnionego, oparty na założeniu, że siła asocjacji jest moderowana przez bezpośrednią styczność czasową między dwoma bodźcami, co czyni warunki uczenia się optymalnymi dla zwierzęcia. Testował on również inne warianty zależności dźwięk-pokarm, takie jak wyciszenie dźwięku i pozostawienie okresu „śladu” przed podaniem pokarmu. Gdy te dwa bodźce były wystarczająco oddzielone w czasie, psom znacznie trudniej było wywoływać reakcje ślinotwórcze przed podaniem pokarmu. Brak styczności czasowej między wyciszeniem dźwięku a podaniem pokarmu jest zatem przykładem ECC śladowego. Ponieważ gryzonie naturalnie nie ślinią się na widok pokarmu, zamiast niego stosuje się bodźce bardziej istotne gatunkowo, takie jak lekki wstrząs elektryczny; gryzonie nie wykazują również naturalnych obronnych reakcji mrugania w odpowiedzi na dźwięki. W tym kontekście procedury ECC u gryzoni polegają na prezentacji dźwięku o określonym poziomie decybeli i parowaniu go w określony sposób z lekkim wstrząsem elektrycznym przyłożonym do mięśnia okrężnego oka (orbicularis oculi) lub mięśnia skroniowego (temporalis) w celu wywołania reakcji mrugania. Dźwięk uznaje się za bodziec warunkowy (CS), natomiast wstrząs za bodziec bezwarunkowy (US). W ECC opóźnionym najpierw prezentowany jest CS; bodziec ten trwa przez określony czas. Następnie podawany jest US. Te dwa bodźce nakładają się na siebie przez określony czas, a następnie oba kończą się jednocześnie; wynikająca z US reakcja mrugania jest uznawana za reakcję bezwarunkową (UR). W tej procedurze gryzonie uczą się mrugać jakiś czas po prezentacji CS, ale tuż przed US, aby antycypować ten awersyjny bodziec. Wyuczona reakcja mrugania nazywana jest reakcją warunkową (CR). W przypadku ECC śladowego CS i US są oddzielone przedziałem czasu wolnym od bodźców, znanym jako interwał śladu; nie nakładają się one w czasie, jak ma to miejsce w ECC opóźnionym. W tym interwale zwierzę musi rozwiązać wymogi asocjacyjne między bodźcami. Podobnie jak w ECC opóźnionym, uczenie zachodzi, gdy zwierzę konsekwentnie wywołuje reakcję mrugania po wyciszeniu CS, ale bezpośrednio przed podaniem US. Po pewnej liczbie treningów nabywania (parowanie CS z US) wykształcają się krzywe uczenia (np. na podstawie różnych pomiarów CR). Badania z użyciem lezji i neuroobrazowania wykazują, że skuteczne uczenie się w ECC opóźnionym zależy od nienaruszonej architektury neuroobwodów móżdżkowo-pniowych38,39,40, podczas gdy ECC śladowe jest procedurą wyższego rzędu, która wymaga dodatkowego zaangażowania neuronowego hipokampa41,42,43,4 i innych struktur korowych45,46. Ze względu na wymogi czasowe niezbędne do skutecznego nabycia reakcji CR w wersji śladowej, zadanie to jest trudniejsze do opanowania (nawet dla osobników zdrowych).
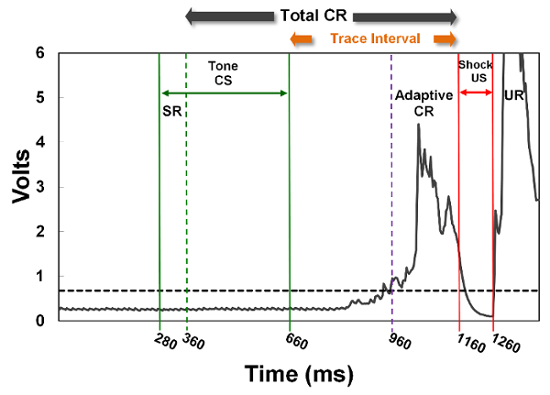
Rysunek 1: Ślad klasycznego warunkowania mrugania okiem. Przedstawiony został rzeczywisty przebieg sygnału reprezentatywny dla dorosłego szczura z grupy kontrolnej nieintubowanej (UC). Najpierw prezentowany jest bodziec warunkowy (CS) w postaci tonu (85 dB, 2,8 kHz) przez 380 ms. Następnie następuje 50-msowy interwał śladu (trace interval), podczas którego nie występują żadne bodźce. Po nim podawany jest bodziec bezwarunkowy (US) w postaci wstrząsu (1,6 mA) przez 10 ms. Skuteczna nauka w tym zadaniu następuje, gdy częstotliwość (%) lub amplituda (w woltach) mrugnięć oczami w oknie czasowym odpowiedzi warunkowej (CR) (całkowity okres CR) wzrasta w trakcie wielu sesji treningowych. W szczególności gryzonie z nienaruszonym hipokampem zazwyczaj emitują więcej odpowiednio zsynchronizowanych odpowiedzi CR (adaptacyjne CR) tuż przed wystąpieniem wstrząsu US (w oknie 20 ms). Pomiarowi podlegają również reakcje przestrachu (SR) w ciągu pierwszych 80 ms po wystąpieniu tonu CS oraz odpowiedzi bezwarunkowe (UR). Nieasocjacyjne reakcje SR są zazwyczaj niskie lub nie występują u dobrze wytrenowanych gryzoni, podczas gdy w przypadku odpowiedzi UR spodziewa się wysokiej częstotliwości i amplitudy. Zadanie to wymaga, aby gryzoń nauczył się powiązać wygaśnięcie CS z wystąpieniem US (podczas interwału śladu), co sprawia, że jest ono z natury trudniejsze do opanowania w porównaniu do klasycznego warunkowania z opóźnieniem (delay ECC). Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tego schematu.
W niniejszej pracy demonstrujemy niekorzystne skutki funkcjonalne noworodkowej ekspozycji na alkohol podawany w sposób epizodyczny (binge-like), oceniane za pomocą procedury śladowego warunkowania klasycznego (trace ECC). Procedura ta polega na podaniu bodźca warunkowego (CS) w postaci tonu o natężeniu 85 dB (2,8 kHz) trwającego 380 ms, po którym następuje bodziec bezwarunkowy (US) w postaci wstrząsu o natężeniu 1,6 mA trwającego 10 ms; bodźce te są oddzielone okresem śladowym trwającym 50 ms. Wcześniej opisaliśmy użyteczność tego testu behawioralnego w badaniach nad interwencją cholinową oraz suplementacją żelaza w celu łagodzenia skutków noworodkowej ekspozycji na alkohol18,47. W rzeczywistości śladowe ECC może służyć jako narzędzie diagnostyczne do oceny patologii hipokampa indukowanej alkoholem w okresie noworodkowym. Przewagą tej metody nad ECC z opóźnieniem (delay ECC) jest większa czułość w wykrywaniu zaburzeń funkcji hipokampa, które są upośledzone u ludzi z FASDs.
Zastosowanie ECC wykracza daleko poza obszar badań nad zespołem płodowego alkoholowego. Wiele wariantów ECC (np. opóźnienie, ślad, złożone, odwrócenie) może być wykorzystanych do wyjaśnienia ontogenetycznych różnic w uczeniu się w trakcie rozwoju, neurobiologicznych podstaw uczenia się asocjacyjnego u normalnych ssaków, a także podatności różnych systemów mózgowych na liczne wyzwania, w tym (ale nie ograniczając się do) teratogeny, toksyny środowiskowe, urazy czaszkowo-mózgowe, choroby neurodegeneracyjne i schorzenia psychiatryczne.
Protokół
UWAGA: Wszystkie procedury zostały zatwierdzone i przeprowadzone zgodnie z wytycznymi określonymi przez IACUC Uniwersytetu East Carolina. Szczury Long-Evans uzyskano z samic zapłodnionych przez samce hodowlane. Młode ze wszystkich trzech grup badawczych (patrz 1.1) pochodziły z jednego miotu od tej samej matki. Uzyskano pięć miotów, a każdy z nich został zredukowany do 8 młodych w 3. dniu po urodzeniu (PD 3). Pozostałe dwa młode z każdego miotu przydzielono do osobnych eksperymentów. W badaniu uwzględniono potomstwo obu płci (po jednym osobniku na grupę ekspozycyjną). W badaniu przeanalizowano łącznie N = 27 dorosłych osobników; 3 szczury wykluczono z powodu uszkodzenia przewodów 3T (patrz 3.1.1), których nie udało się naprawić w 1. dniu treningu ECC.
1. Przygotowanie grup, materiałów i roztworów
- W 3. dobie postnatalnej (PD 3) oddziel młode od matki i umieść je na termostatowanej podkładce grzewczej, aby zapobiec wychłodzeniu. Przy zastosowaniu procedury randomizacji przydziel młode szczury do jednej z trzech grup: (1) intubowanej alkoholem (AI); (2) kontrolnej intubowanej pozornie (SI); lub (3) kontrolnej nieintubowanej (UC). Przeprowadź zatwierdzone procedury identyfikacji, takie jak tatuowanie łap nietoksycznym tuszem za pomocą igły 30G x 1/2 in zgodnie ze schematem numeracji. Po zakończeniu tatuowania zwróć młode do matki.
- Przygotuj rurkę(i) do intubacji wewnątrzżołądkowej, używając polietylenu (PE) o rozmiarach 50 i 10. Całkowita długość rurki zależy od użytkownika i może być odpowiednio dostosowana.
- Używając mikronóżek chirurgicznych, odetnij kawałek rurki PE-50 o długości 3 in oraz kawałek rurki PE-10 o długości 6 in.
- Ostrożnie przymocuj rurkę PE-50 do sterylnej igły hipodermicznej 2 G x 1 in.
- Wsuń jeden koniec rurki PE-10 w otwarty koniec rurki PE-50. Aby ułatwić wprowadzenie rurki PE-10 do rurki PE-50, konieczne może być wykonanie skośnego cięcia na końcówce rurki PE-10.
- Odetnij mały kawałek rurki PE-50 (około 2-3 mm) i nałóż go na otwarty koniec rurki PE-10. Będzie on służył jako ogranicznik wizualny.
- Gotową rurkę do intubacji wewnątrzżołądkowej przechowuj w świeżym 70% alkoholu izopropylowym w celu zachowania sterylności.
- Przeprowadź procedury aseptyczne w celu przygotowania roztworu mleka w butelkach o pojemności 50 mL. Roztwór mleka oparto na formule dietetycznej opracowanej pierwotnie przez West i wsp. (1984)48. Butelki przechowuj w temperaturze -18 °C do momentu użycia. Przed użyciem rozmroź dwie butelki mleka w ciepłej wodzie.
- Za pomocą sterylnej strzykawki pobierz 7,16 mL 95% alkoholu etylowego (USP) i dodaj go do jednej 50-mililitrowej butelki z mlekiem. Pozwala to uzyskać 11,9% v/v roztwór alkoholu, który jest podawany młodym szczurom podczas dwóch pierwszych karmienia w ciągu dnia (patrz 2.1.1); całkowita dzienna dawka alkoholu wynosi 5,25 g/kg/dobę. Jest ona zaprojektowana tak, aby podać alkohol w określonej objętości (0,0278 mL/g na jedno karmienie) w wzbogaconym roztworze mleka.
UWAGA: Ilość tę można dostosować w zależności od wielkości miotu i przewidywanego zużycia w ciągu 3-4 dni. Ilość dodanego alkoholu musi zostać odpowiednio skorygowana, aby uzyskać roztwór o stężeniu 1,9% v/v. - Wstrząśnij butelką i odpowiednio ją opisz (np. 1,9% v/v alkohol etylowy w mleku).
- Odnajdź i odpowiednio opisz drugą butelkę mleka (bez dodatku alkoholu) (np. samo mleko) i wykorzystaj ją do karmienia uzupełniającego, zgodnie z opisem w punkcie 2.1.1.
- Obie butelki z mlekiem przechowuj w lodówce.
- Za pomocą sterylnej strzykawki pobierz 7,16 mL 95% alkoholu etylowego (USP) i dodaj go do jednej 50-mililitrowej butelki z mlekiem. Pozwala to uzyskać 11,9% v/v roztwór alkoholu, który jest podawany młodym szczurom podczas dwóch pierwszych karmienia w ciągu dnia (patrz 2.1.1); całkowita dzienna dawka alkoholu wynosi 5,25 g/kg/dobę. Jest ona zaprojektowana tak, aby podać alkohol w określonej objętości (0,0278 mL/g na jedno karmienie) w wzbogaconym roztworze mleka.
2. Neonatalna ekspozycja na alkohol (dni postnatalne 4-9)
- Wykonuj łącznie 4 intubacje na dobę u szczeniąt grup AI i SI, zaczynając od 4. dnia po urodzeniu (PD 4). Odstęp między poszczególnymi intubacjami powinien wynosić 2 h. Ponieważ szczenięta AI są intubowane z rzeczywistym roztworem, każda z ich intubacji jest traktowana jako karmienie.
- Intubuj szczenięta AI roztworem 1,9% v/v alkoholu etylowego w mleku podczas dwóch pierwszych karmień w ciągu dnia, a następnie intubuj je roztworem zawierającym tylko mleko podczas dwóch ostatnich karmień w ciągu dnia, aby uzupełnić ich wzrost.
- Intubuj szczenięta SI 4 razy bez podawania jakiegokolwiek roztworu co dwie godziny, zapewniając ten sam czas ekspozycji rurki PE-10, jaki przechodzą szczenięta AI. Grupa UC nie poddawana jest żadnym intubacjom.
- Wyjmij szczenięta od matki i umieść je na termoregulatorowanej podkładce grzewczej z wodą, aby utrzymać ciepłotę ciała. Zważ każde szczenię i zapisz jego masę ciała (w g). Skorzystaj z przygotowanej wcześniej tabeli karmienia, aby określić objętość intubacji dla każdego szczenięcia AI i zapisz ją w arkuszu rejestracyjnym.
- Umieść roztwór 1,9% v/v alkoholu etylowego w mleku w kąpieli wodnej i dobrze wstrząśnij.
- Procedura intubacji wewnątrzżołądkowej:
- Dokładnie wypłucz ciepłą wodą rurkę do intubacji wewnątrzżołądkowej, która była przechowywana w 70% alkoholu izopropylowym.
- Pobierz odpowiednią ilość roztworu za pomocą sterylnej strzykawki 1 mL.
- Zanurz końcówkę rurki do intubacji (koniec PE-10) w świeżym oleju kukurydzianym (ułatwia to wprowadzanie).
- Zmierz długość rurki PE-10 od pyska szczenięcia do jego żołądka. Dostosuj ogranicznik PE-50, aby wyznaczyć punkt końcowy.
- Ostrożnie wprowadź rurkę PE-10 do pyska szczenięcia, prowadząc ją w dół przełyku, lekko przechodząc przez zwieracz żołądkowo-przełykowy i do żołądka. Obejrzyj szczenię, ustabilizuj je i powoli naciśnij tłok strzykawki, aby podać roztwór.
UWAGA: Aby uniknąć przypadkowego wprowadzenia rurki do tchawicy, najpierw skieruj rurkę tak, aby wygięła się i zetknęła z miękkim podniebieniem przed posunięciem jej do przodu. Użyj podniebienia jako prowadnicy, ponieważ rurka naturalnie odbije się od tego obszaru i zostanie skierowana w dół przełyku. W przeciwnym razie każde znaczne odchylenie końcówki w kierunku brzusznym może spowodować jej wejście do tchawicy. W przypadku niepewności co do pozycji wprowadzenia najlepiej jest wyjąć rurkę i nie kontynuować intubacji – rurkę należy wprowadzić poprawnie przy następnej próbie. - Ostrożnie usuń rurkę PE-10 i sprawdź, czy u szczenięcia nie wystąpił cofnięty roztwór, krwawienie lub obrażenia fizyczne. Jeśli szczenię jest zdrowe, zwróć je do miotu. Cała procedura intubacji trwa mniej niż 1 min dla każdego szczenięcia i około 4 min łącznie dla 4 intubowanych szczeniąt w każdym miocie (2 AI, 2 SI).
- Procedura intubacji wewnątrzżołądkowej dla szczeniąt SI: Przeprowadź tę samą procedurę wprowadzania PE-10, co w przypadku szczeniąt AI, ale bez podawania roztworu, przez ten sam czas (1 min).
- Wróć wszystkie szczenięta do matki natychmiast po zakończeniu procedur dla ostatniego szczenięcia w miocie. Przenieś matkę z powrotem do wiwarium aż do następnej sesji karmienia (za 2 h).
- Wypłucz rurkę do intubacji wewnątrzżołądkowej ciepłą sterylną wodą i umieść ją w 70% alkoholu izopropylowym do przechowywania. Przed każdą sesją karmienia dokładnie wypłucz rurkę wodą.
- Powtórz kroki od 2.2 (z wyłączeniem ważenia szczeniąt) do 2.2.2.9 dla drugiej sesji karmienia. Podczas dwóch ostatnich karmień intubuj szczenięta AI roztworem zawierającym tylko mleko, stosując te same objętości intubacji, które określono w punkcie 2.2.
- Waż szczury w regularnych odstępach czasu, np. w PD 15 (otwarcie oczu), PD 21 (odsadzanie), PD 30, PD 60 i PD 90 (operacja), aby uzyskać reprezentatywne krzywe wzrostu.
3. Wytwarzanie i modyfikacja elektrod
- Wykonaj jedną „głowicę” (headstage) do elektromiografii (EMG) dla każdego szczura (Rysunek 2). Głowica umożliwia rejestrację reakcji mrugania za pomocą systemu do badania mrugania (Rysunek 4).
- Zmontuj głowicę składającą się z dwóch powlekanych politetrafluoroetylenem (PTFE) drutów ze stali nierdzewnej o rozmiarze 3T (każdy o długości 5 cm), jednego powlekanego PTFE drutu ze stali nierdzewnej o rozmiarze 10T (5 cm), trzech męskich pinów kontaktowych oraz jednego izolatora gniazdowego typu micro strip przyciętego do 3 otworów (patrz pkt 3.1.4).
- Usuń powłokę PTFE z drutu 10T, chwytając go w środku ząbkowaną pęsetą precyzyjną i usuwając powłokę w obu kierunkach gładką pęsetą precyzyjną. Upewnij się, że z drutu usunięto wszystkie ślady powłoki.
- Zaciśnij jeden koniec drutu 10T na pinie kontaktowym za pomocą dentystycznych szczypiec z ząbkowaną platformą; będzie on służył jako przewód uziemiający. Ostrożnie przytrzymaj drut 3T gładką pęsetą precyzyjną w odległości 1 do 1,5 mm od jednego z końców. Zdejmij 1 do 1,5 mm powłoki PTFE, pozostawiając resztę powłoki nienaruszoną. Zaciśnij pin kontaktowy na odsłoniętym końcu drutu 3T.
- Wykonaj te same czynności dla drugiego drutu 3T. Oba druty będą służyć jako dodatni i ujemny przewód elektrod rejestrujących EMG.
- Przeprowadź testy pociągania wszystkich drutów, aby upewnić się, że są one stabilnie przymocowane do pinów. Zachowaj ostrożność, aby nie wygiąć ani nie uszkodzić drutów.
- Wytnij segment paska izolatora gniazdowego do 3,5 otworu (przetnij środek czwartego otworu) za pomocą ostrza ściągacza do izolacji. Przytnij ten segment do dokładnie 3 pełnych otworów i w razie potrzeby wyszlifuj obie strony. Pomoże to zapewnić dostępność 3 pełnych otworów. Włóż jednostki pin-drut do trzech otworów micro stripa, aż zaciśnięte końce zrównają się z dolną krawędzią segmentu izolatora. Zespół 10T musi znajdować się w jednym z zewnętrznych otworów micro stripa, a nie w środkowym.
- Zmodyfikuj bipolarne elektrody stymulujące (Rysunek 2).
- Przeznacz dla każdego szczura jedną bipolarną elektrodę stymulującą. Elektroda ta podaje niewielki prąd elektryczny za pomocą izolatora bodźca (patrz system do badania mrugania) jako nieuwarunkowany bodziec (US) w formie wstrząsu podczas warunkowania klasycznego (ECC). Elektrody są nabywane od producenta w formie skręconej i są ekranowane.
- Rozkręć dwa metalowe przewody 2-3 razy, tworząc kształt litery V (rozstaw 5 mm), a następnie za pomocą gładkiej pęsety precyzyjnej wyprostuj każdy „ząbek” tak bardzo, jak to możliwe. Zeskrob 1 mm ekranu z końcówki każdego ząbka (z całego obwodu) za pomocą żyletki. Sprawdź każdy ząbek pod kątem nieregularności i zagięć i w razie potrzeby je skoryguj, nie zeskrobując dodatkowego ekranu.
- Usuń olej produkcyjny i zanieczyszczenia z głowic EMG i elektrod bipolarnych, myjąc je w 95% alkoholu etylowym. Pozostaw do wyschnięcia, a następnie wysterylizuj w autoklawie.
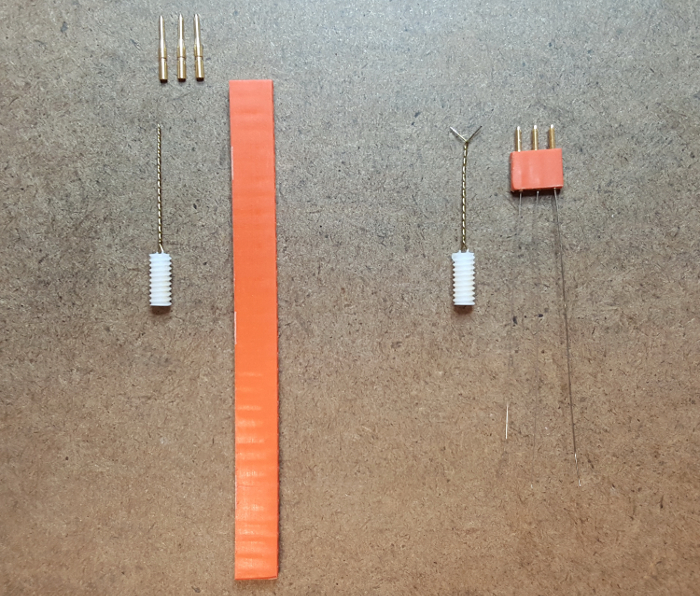
Rycina 2Elektrody rejestrujące elektromiograficzne (EMG) i elektroda bipolarna. Gotowy przedwzmacniacz EMG (po prawej, pomarańczowy) składa się z trzech męskich pinów stykowych, dwóch przewodów z powłoką PTFE o rozmiarze 3T, jednego przewodu z powłoką PTFE o rozmiarze 10T oraz zmodyfikowanej mikrolistwy. Trzy przewody mają długość około 5 cm każdy i są zaciśnięte na pinach stykowych. Gotowa elektroda bipolarna (po prawej, biała) zostaje rozpleciona, wyprostowana i uformowana w kształt litery V (rozstaw 5 mm). Ekranowanie zostaje usunięte z końców obu ramion. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
4. Procedura operacji powiek (90. dzień po urodzeniu)
- Przygotowanie materiałów (szczegółowe informacje o zaopatrzeniu znajdują się w sekcji Materiały), zwierząt oraz obszarów chirurgicznych i niechirurgicznych:
- Autoklawować instrumenty i materiały chirurgiczne – liczba w nawiasach ( ) wskazuje przybliżoną ilość potrzebną na jedną dorosłą szczurę lub pomiar: instrumenty chirurgiczne (1 zestaw na 4 szczury, zgodnie z zatwierdzeniem przez ECU IACUC), gaziki (3-4), patyczki z bawełnianą końcówką (5-6), owijka 20 x 20 (4 na sesję chirurgiczną), tygiel porcelanowy (1), mikroszpatułka ze stali nierdzewnej (1), sól fizjologiczna 0,9% (1 butelka do płukania), szalka Petriego (1) oraz śruby ze stali nierdzewnej 0-80 (3 na szczurę).
- Inne wymagane sterylne materiały: ostrze chirurgiczne rozmiar 10 (1 na 4 szczury), sterylna tkanina chirurgiczna (1 na szczurę), weterynaryjna maść okulistyczna, povidone-jod (1 butelka do płukania), igła hipodermiczna 26G x 3/8" (2), niklowany uchwyt wiertła z wiertłem #5, niklowany płaski śrubokręt jubilerski (ostrze 1,8-2 mm).
- Przygotować sterylną strefę składową dla wszystkich narzędzi i materiałów chirurgicznych, używając zatwierdzonego środka dezynfekcyjnego klasy badawczej/medycznej. Umieścić materiały w tej przestrzeni po jej przygotowaniu.
- Przygotować sterylną przestrzeń chirurgiczną przy użyciu zatwierdzonego środka dezynfekcyjnego klasy badawczej/medycznej. Przestrzeń ta powinna zawierać termoregulatorną podkładkę grzewczą z wodą, aparat stereotaksyczny wyposażony w maskę anestezjologiczną dla szczurów, sterylizator kulkowy oraz parownik izofluranu (do anestezji). Parownik posiada rurki prowadzące do maski anestezjologicznej oraz do komory indukcyjnej znajdującej się w oddzielnej przestrzeni do niejałowych procedur przygotowania zwierząt; każda rurka jest sterowana własnym zaworem.
- Dokładnie umyć ręce i przedramiona mydłem przeciwdrobnowym. Bez dotykania wnętrza, otworzyć wcześniej przedmioty zapakowane w torebki lub owijki do sterylizacji. Założyć sterylne rękawiczki zgodnie z procedurą aseptyczną i przenieść wszystkie niezbędne przedmioty do obszaru chirurgicznego. Ustawić wiertło na odpowiedniej głębokości w uchwycie (~ 2 mm) i przygotować śrubokręt. Przykryć sterylne materiały sterylną owijką do czasu rozpoczęcia operacji.
- Przygotować niesterylną przestrzeń z wagą, elektryczną maszynką do strzyżenia futra, sterylnymi strzykawkami 1 mL z igłami 26G x 3/8 cala (1 na szczurę), dziennikiem operacyjnym oraz buprenorfiną (stężenie 0,03 mg/mL) podawaną w dawce 0,1 mL/10 g.
UWAGA: Buprenorfina jest półsyntetycznym opioidem z grupy III według DEA i musi być przechowywana w zamknięciu oraz odpowiednio rejestrowana. - Sprawdzić poziom gazu w parowniku izofluranu; w razie potrzeby dolać gazu. Na razie pozostawić wyłączone pokrętła przepływu i mieszanki gazu. Otworzyć butlę z O2 i sprawdzić, czy ilość gazu będzie wystarczająca dla wszystkich operacji.
- Zważyć każdą szczurę i zapisać masę ciała w dzienniku operacyjnym. Skorzystać z tabeli wstrzykiwania buprenorfiny, aby określić odpowiednią objętość iniekcji.
- Otworzyć zawór parownika prowadzący do komory indukcyjnej, pozostawiając zamknięty zawór do maski chirurgicznej. Ustawić mieszankę na 3, a przepływ na 3 (3% izofluranu z 10% O2 jako gazu nośnego przy objętości 3 L/min).
- Umieścić szczurę w komorze indukcyjnej i poczekać, aż osiągnie odpowiedni poziom znieczulenia (spowolniony oddech, brak odruchu wycofywania łapy, brak odruchu mrugania). Wyjąć szczurę z komory po osiągnięciu poziomu znieczulenia.
- Ogolić głowę za pomocą maszynki do strzyżenia, odsłaniając wystarczającą ilość skóry w miejscu nacięcia oraz lewą powiekę. W razie potrzeby ponownie umieścić zwierzę w komorze indukcyjnej, aby ponownie osiągnęło poziom znieczulenia przed kontynuowaniem strzyżenia.
- Zdezynfekować odsłoniętą skórę, stosując naprzemienne przecieranie alkoholem izopropylowym i povidone-jodową trzy razy. W razie potrzeby ponownie umieścić zwierzę w komorze indukcyjnej w celu ponownego osiągnięcia poziomu znieczulenia przed przeniesieniem na stół operacyjny.
- Operacja
- Otworzyć zawór parownika prowadzący do maski anestezjologicznej i zamknąć zawór do komory indukcyjnej. Ustawić mieszankę na 2,5, a przepływ na 2 (2,5% izofluranu z 10% O2 jako gazu nośnego przy objętości 2 L/min). Przenieść szczurę do aparatu stereotaksycznego i postępować zgodnie ze standardowymi procedurami unieruchomienia głowy za pomocą listwy do siekaczy i wsporników usznych (przykład znajduje się w publikacji Geiger et al., 20849).
- Podać szczurze przedoperacyjną iniekcję buprenorfiny (podskórnie, SC) i ostrożnie wyrzucić niezakrytą igłę do pojemnika na odpady ostre. Przykryć szczurę sterylną tkaniną chirurgiczną, odsłaniając tylko obszar operacyjny i izolując go od reszty ciała.
- Założyć maskę chirurgiczną, czepkę chirurgiczną, fartuch chirurgiczny, gogle oraz wszelkie inne środki ochrony osobistej wymagane przez IACUC. Dokładnie umyć i wyszorować ręce i przedramiona mydłem przeciwdrobnym. Założyć sterylne rękawiczki zgodnie z procedurą sterylną.
- Nałożyć niewielką ilość maści okulistycznej na oba oczy za pomocą patyczka z bawełnianą końcówką, aby zapobiec ich wysychaniu.
- Przystąpić do operacji, gdy szczura wykaże odpowiedni poziom znieczulenia. Monitorować szczurę w sposób ciągły przez cały czas trwania operacji i okresowo sprawdzać poziom izofluranu. W trakcie operacji odpowiednio regulować pokrętła przepływu i mieszanki w zależności od reakcji zwierzęcia na znieczulenie.
- Wykonać nacięcie wzdłuż linii środkowej czaszki w kierunku przednio-tylnym za pomocą ostrza skalpela. Nacięcie to powinno odsłonić obszar przed oczami (tzn. kość czołową) oraz obszar nieco za szwem jagodowym.
- Ostrożnie zeskrobać okostną z wierzchu czaszki, aby nie wywołać nadmiernego krwawienia. Usunąć nadmiar tkanki łącznej i krwi za pomocą patyczka z bawełnianą końcówką.
- Wywiercić otwór za pomocą wiertła w uchwycie, zaczynając bezpośrednio za szwem czołowym na jednej z kości ciemieniowych. Usunąć krew i odpryski kostne za pomocą patyczka z bawełnianą końcówką. Chwycić śrubę 0-80 za gwint pęsetą szczypcową i wkręcić ją w otwór za pomocą śrubokręta jubilerskiego; dokręcić śrubę tylko tyle, by nie uszkodzić kory mózgu (zazwyczaj 3-4 pełne obroty).
- Postępować zgodnie z procedurami opisanymi w punkcie 4.2.8, aby przymocować do czaszki dwie kolejne śruby 0-80: jedną bezpośrednio za szwem czołowym przeciwległej kości ciemieniowej i jedną bezpośrednio przed prawym szwem jagodowym. Stwierdzono, że 3 śruby są wystarczające do zakotwiczenia cementu dentystycznego (patrz 4.2.18) do czaszki, ponieważ czwarta śruba (przed lewym szwem jagodowym) utrudniałaby rozmieszczenie elektrody bipolarnej.
- Wyjąć wzmacniacz EMG (headstage) z szalki Petriego. Zorientować wzmacniacz tak, aby przewód 10T znajdował się po prawej stronie szczury. Zgiąć przewód 10T w górę, czyniąc go równoległym do dolnej krawędzi mikropaska. Lekko zgiąć go w prawą stronę, aby przewód mógł obejść przednią i tylną śrubę 0-80. Odłożyć go w miejsce łatwo dostępne.
- [Zakładając praworęczność] W lewej ręce trzymać pęsetę opatrunkową 3-calową, a w prawej pęsetę opatrunkową 4-calową. Chwycić górną część skóry w miejscu nacięcia przy lewym oku pęsetą 4-calową i skierować pęsetę 3-calową w stronę kącika tego oka; chwycić skórę w tym kąciku. Utrzymać uchwyt pęsetą 3-calową, puszczając pęsetę 4-calową.
- Wziąć jedną igłę 26G x 3/8 cala i wprowadzić ją przez kącik powieki; obrócić igłę tak, aby ścięta strona była skierowana do góry. Użyć mikro pęsety sekcyjnej z platformą, aby wprowadzić środkowy przewód 3T do otworu igły. Przesunąć go przez otwór o kilka centymetrów, nie wprowadzając go całkowicie; przewód ten jest przewodem ujemnym.
- Przeprowadzić procedury opisane w punktach 4.2.1 i 4.2.12, aby wprowadzić zewnętrzny przewód 3T w środkową część powieki; przewód ten jest przewodem dodatnim.
- Chwycić obie igły jedną ręką, a wzmacniacz drugą ręką (lub pęsetą). Wyciągnąć igły z powieki, prowadząc wzmacniacz w tym samym kierunku w jednym ciągłym ruchu. W razie potrzeby obrócić wzmacniacz tak, aby przewód 10T był skierowany w stronę prawego oka zwierzęcia; nie dopuścić do skrzyżowania się przewodów 3T. Użyć pęsety z cienkimi końcówkami, aby upewnić się, że przewód dodatni znajduje się na środku powieki.
- Ustawić wzmacniacz tak, aby znajdował się centralnie między oczami i w optymalnej pozycji na kości czołowej, przed obustronnie wprowadzonymi śrubami. Przytrzymać wzmacniacz jedną ręką, a pęsetę opatrunkową 3-calową drugą ręką. Owinąć przewód 10T wokół jednej lub obu śrub po stronie 10T.
- Wziąć pęsetę opatrunkową 3-calową do jednej ręki, a 4-calową do drugiej. Użyć pęsety 3-calowej do chwycenia skóry w miejscu nacięcia w kierunku lewej skroni. Użyć pęsety 4-calowej do utworzenia małej „kieszeni” poprzez oddzielenie skóry (tzn. powięzi powierzchownej) od mięśnia skroniowego. Użyć nożyczek irydologicznych do wycięcia większej ilości tkanki łącznej, przesuwając się w stronę kącika lewego oka, aby powiększyć tę kieszeń. Uważać, aby nie wejść zbyt głęboko i nie przeciąć naczyń krwionośnych.
- Wziąć elektrodę bipolarną i ukształtować przewody tak, aby można było je dopasować do krzywizny mięśnia skroniowego, podczas gdy dwa ramiona (grzbietowe i brzuszne) znajdują się za lewym okiem (patrz wideo), a dolny koniec elektrody bipolarnej może spoczywać prosto na czaszce. Pozostawić wystarczający odstęp między wzmacniaczem a tą elektrodą, aby wtyczki kabla komutatora (Rysunek 3) mogły zostać podłączone bez przeszkód.
- Wsypać proszek cementu dentystycznego do tygla – zacząć od około 1/3 tygla, a następnie dostosować ilość w razie potrzeby. Dodać komponent płynny, aż konsystencja stanie się wodnista, i wymieszać komponenty szpatułką. Gdy konsystencja cementu stanie się bardziej lepka, nałożyć go na miejsce nacięcia – pokrywając wszystkie brzegi skóry z marginesem co najmniej 1/8 cala.
- Nałożyć tyle cementu, aby ustabilizować wzmacniacz i elektrodę bipolarną, nie uniemożliwiając szczurze zamknięcia obu oczu. Szybko wytrzeć cały cement, który ścieknie na niepożądane obszary futra szczury.
- Upewnić się, że co najmniej 4-5 zwojów elektrody bipolarnej pozostały niezaklejone cementem, aby można było przykręcić wtyczkę bipolarną (Rysunek 3). Usunąć nadmiar cementu ze wzmacniacza – góra mikropaska i trzy piny kontaktowe muszą być czyste. Cement twardnieje szybko i może łatwo uniemożliwić pełne połączenie którejkolwiek z tych elektrod z wtyczkami kabla komutatora. Użyć pęsety szczypcowej do usunięcia nadmiaru cementu, który częściowo zaschnął.
- Odczekać do stwardnienia cementu; stanie się on przezroczysty. Użyć mikro nożyczek sekcyjnych, aby odciąć nadmiar długości z dwóch przewodów 3T, pozostawiając kilka centymetrów zapasu.
- Chwycić mikro pęsetę sekcyjną z platformą w lewej ręce, a mikro pęsetę sekcyjną z cienkimi końcówkami w prawej. Chwycić jeden przewód 3T lewą pęsetą nieco przed powieką. Prawą pęsetą odsunąć powiekę do góry, aby odsłonić więcej przewodu 3T i przytrzymać ją w tej pozycji. Puścić lewą pęsetę i chwycić lewą ręką wzmacniacz (upewnić się, że jest już stabilny). Użyć prawej pęsety do zdjęcia części izolacji PTFE, co pozwoli przewodowi na kontakt z mięśniem orbicularis oculi.
UWAGA: Należy uważać, aby nie ciągnąć zbyt mocno za przewód 3T, ponieważ może on odczepić się od pinu kontaktowego. Jeśli przewód się odczepi, wymiana pinu kontaktowego nie będzie możliwa, ponieważ stwardniały cement nie oddzieli się swobodnie od czaszki bez spowodowania złamania kości. - Wykonać kroki z punktu 4.2.21, aby zdjąć nadmiar PTFE z drugiego przewodu 3T.
- Chwycić dwie mikro pęsety sekcyjne zgodnie z opisem w punkcie 4.2.21 (z platformą w lewej, z cienkimi końcówkami w prawej). Ustawić lewą pęsetę nieco przed jednym z przewodów 3T, zostawiając miejsce dla prawej pęsety bezpośrednio przed powieką. Chwycić przewód obiema pęsetami.
- Utworzyć „haczyk”, trzymając prawą pęsetę nieruchomo i obracając lewą pęsetę w górę i w stronę powieki; zrobić to jednym ruchem. Ostrożnie puścić prawą pęsetę, a następnie lewą pęsetę.
UWAGA: Przymocowanie elektrod do powiek pomaga zminimalizować możliwość ich ocierania o rogówkę. Minimalizuje to również możliwość przerwania przewodu na każdym etapie fazy testów behawioralnych. Chociaż haczykowanie nie w pełni zapobiega ocieraniu się przewodu o rogówkę u wszystkich zwierząt, zazwyczaj nie wykazują one oznak uszkodzenia oka, co potwierdzają wysokie amplitudy mrugania (mierzone cyfrowym oscyloskopem w 5.1.7) oraz codzienne pooperacyjne obserwacje stanu zdrowia (nadmierne łzawienie, częściowe zamknięcie powieki, brak mobilności z powodu uszkodzenia oka). Jeśli szczura wykaże początkowe oznaki dyskomfortu, należy ją znieczulić izofluranem (patrz 4.1.10), a elektrody ponownie zbadać i/lub repositionować. Stosuje się maść okulistyczną, aby zapobiec wysychaniu rogówki. Szczurę obserwuje się codziennie pod kątem wszelkich powikłań okulistycznych po zabiegu; w przypadku ich utrzymywania się należy skonsultować się z lekarzem weterynarii. Szczury, które wykazują ciężkie powikłania okulistyczne, których nie można skorygować repositionowaniem elektrod lub leczeniem weterynaryjnym, są poddawane humanitarnej eutanazji zgodnie ze standardowymi procedurami operacyjnymi ECU IACUC.
- Utworzyć „haczyk”, trzymając prawą pęsetę nieruchomo i obracając lewą pęsetę w górę i w stronę powieki; zrobić to jednym ruchem. Ostrożnie puścić prawą pęsetę, a następnie lewą pęsetę.
- Wykonத்த kroki z punktu 4.2.23 dla drugiego przewodu 3T. Odciąć nadmiar przewodu za pomocą mikro nożyczek sekcyjnych.
- Jedną ręką zwolnić szczurę z wsporników usznych, podtrzymując jej ciało drugą ręką. Sprawdzić, czy na głowie nie ma krwi lub zanieczyszczeń, w razie potrzeby oczyścić i podać pooperacyjną iniekcję buprenorfiny.
- Umieścić szczurę w pojemniku regeneracyjnym z źródłem ciepła (np. termoregulatorną podkładką grzewczą z wodą), aby wspomóc rekonwalescencję. Zapisać godzinę zakończenia operacji w dzienniku operacyjnym oraz wszelkie istotne uwagi dotyczące szczury podczas zabiegu. Monitorować prawidłowy oddech szczury; gdy przyjmie ona pozycję na brzuchu (sternal recumbency) lub zacznie się poruszać, można ją przenieść do klatki domowej.
- Ponownie wysterylizować instrumenty (z wyjąt mikro pęset sekcyjnych – mogą zostać uszkodzone) za pomocą sterylizatora kulkowego, upewnić się, że obszar chirurgiczny pozostaje aseptyczny i powtórzyć procedury aseptyczne, jeśli wykonywanych będzie wiele operacji powiek.
5. Procedura klasycznego warunkowania mrugania okiem
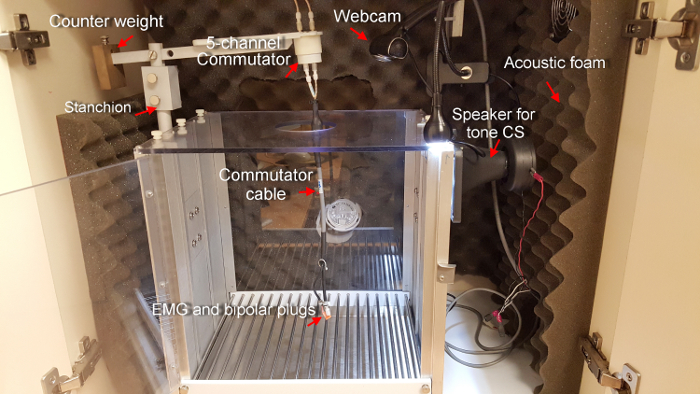
Rycina 3Zmodyfikowana komora warunkowania instrumentalnego do warunkowania mrugania. Szczury są ssakami poruszającymi się swobodnie, dlatego w celu utrzymania kontaktu sygnału elektrycznego z EMG oraz wtyczkami bipolarnymi przymocowanymi do głowy stosuje się obrotowy komutator. Komutator jest przytwierdzony do ramienia statywu, który jest wyposażony w przeciwwagę, aby zmniejszyć nacisk na zwierzę. Głośnik piezoelektryczny emituje sygnał o częstotliwości 2,8 kHz i natężeniu 85 dB; wartości te są regularnie kalibrowane. Pianka akustyczna wspomaga tłumienie hałasu otoczenia. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
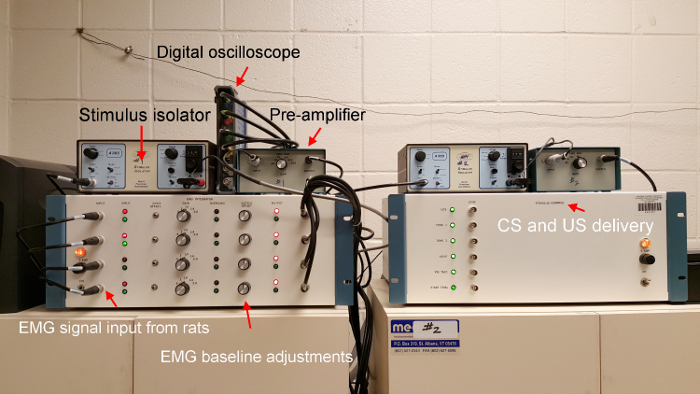
Rysunek 4System warunkowania mrugania okiem. Ten system zbudowany na zamówienie składa się z jednostki integratora EMG, która filtruje i wzmacnia sygnały przychodzące od szczurów, jednostki sterowania bodźcami, która dostarcza różne bodźce oprócz sygnałów dźwiękowych i wstrząsów, przedwzmacniacza dla każdej komory operanckiej w celu zwiększenia wzmocnienia sygnału EMG oraz izolatora bodźców dla każdej komory operanckiej; system ten zapewnia zmienne poziomy wstrząsów (w mA). Do celów diagnostycznych podczas habituacji i akwizycji wykorzystywany jest cyfrowy oscyloskop (niebędący częścią standardowego systemu mrugania okiem). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
- Rozpocząć trening habituacji i nabywania 5 dni po operacji. Każdemu szczurowi zapewnić jeden dzień na oswojenie i habituację z aparaturą treningową – składającą się z zmodyfikowanej komory warunkowania operacyjnego, która znajduje się w większej komorze wygłuszającej (Rycina 3) – a następnie przeprowadzić 6 dni treningu nabywania. Sesje habituacji i nabywania należy przeprowadzić przy użyciu systemu do badania odruchu mrugania opracowanego na zamówienie (Rysunek 4).
- Należy utworzyć plik z dziennikiem treningowym i wydrukować go w celu prowadzenia codziennej dokumentacji. W dzienniku tym stada szczurów powinny zostać przypisane do klatek treningowych w sposób pseudolosowy (lub przy użyciu innej metody randomizacji).
- Włącz system eyeblink, komputer i uruchom oprogramowanie eyeblink. Ta wersja oprogramowania posiada różne moduły (lub aplikacje), które działają niezależnie. Uruchom moduł Animal, aby utworzyć plik *.RAT zawierający informacje o obiektach (numer sesji, identyfikator zwierzęcia, płeć, masa ciała i numer klatki). Pojedynczy plik RAT zarządza grupą do czterech szczurów. Wprowadź odpowiednie wartości i zapisz plik. Utwórz osobny plik RAT dla każdej grupy szczurów przeznaczonej do treningu.
- Przenieś szczury z pomieszczenia hodowlanego do pomieszczenia testowego i zamknij drzwi. Każdym szczurem manipuluj przez 5 min.
- Przenieś szczura do wyznaczonego pudełka i podłącz wtyki EMG oraz bipolarne z kabla komutatora do odpowiadających im wzmacniaczy EMG (headstage) i elektrod bipolarnych na jego głowie.
UWAGA: Podczas pierwszej styczności z kablem komutatora szczur może wykazywać opór i oznaki stresu. Należy obchodzić się ze zwierzęciem ostrożnie i stosować przerwy pomiędzy nieudanymi próbami podłączenia, aby zredukować poziom stresu u szczura. - Użyj obracającego się komutatora 360° przy jednoczesnym zachowaniu przesyłu i odbioru sygnałów elektrycznych podczas swobodnego poruszania się szczura wewnątrz klatki. Posiada 5 kanałów (3 dla elektrod EMG, 2 dla elektrod bipolarnych) prowadzących do jednostki EMG Integrator, która filtruje i wzmacnia surowy sygnał.
- Upewnij się, że szczur porusza się swobodnie i nie jest ograniczany przez ciężar zestawu kabla komutatora lub ramienia wspornika. W razie potrzeby wyreguluj przeciwwagę z tyłu wspornika. Sprawdź, czy wszystkie wtyczki są bezpiecznie osadzone, a następnie zamknij drzwiczki klatki. Przeprowadź tę samą procedurę podłączenia i kontroli w przypadku wszystkich szczurów.
- Użyj oscyloskopu, aby obserwować aktywność EMG pod kątem sygnałów nieprawidłowych (np. aktywności elektrycznej o wysokiej częstotliwości i/lub wysokiej amplitudzie) oraz systemu wideonadzoru do monitorowania stanu zwierząt (np. aktywności ruchowej, wrażliwości na środowisko, oznak bólu), jeśli jest on dostępny. Wszelkie zaobserwowane problemy odnotuj w dzienniku treningowym.
- Pozostawić szczury w komorach na 10 min w celu habituacji, a następnie zwrócić je do klatek domowych.
- Należy wyczyścić i zdezynfekować komory operantowe, zamieść podłogę oraz wytrzeć stół (stoły). Procedury te należy przeprowadzać po każdej sesji.
- Trening nabywania odbywa się przez 6 kolejnych dni (sesji).
- Dzień 1: Przenieś szczura do wyznaczonego pudełka i podłącz wtyczki EMG oraz bipolarną z kabla komutatora do odpowiadającego im przedwzmacniacza EMG oraz elektrody bipolarnej na głowie zwierzęcia. Przeprowadź te same procedury, które wskazano w punktach 5.1.6 i 5.1.7.
- Włącz izolatory stymulacyjne i ustaw natężenie prądu na 0,4 mA (4% z 10 mA, jak pokazano w filmie). Izolatory dostarczają prąd elektryczny naprzemiennie (tj. z próby na próbę) pomiędzy górnym a dolnym trzpieniem elektrody bipolarnej. Pomaga to ograniczyć zmęczenie włókien mięśniowych (w każdym miejscu aplikacji) podczas powtarzalnego dostarczania stymulacji.
- Obserwuj wszystkie reakcje mrugania powiek oraz wykazaną tolerancję w każdej próbie u wszystkich szczurów. Po każdej drugiej próbie zwiększaj natężenie bodźca bezwarunkowego (US) w postaci wstrząsu o 0,4 mA dla każdego szczura, aż do osiągnięcia wartości 1,6 mA (w próbach 7 i 8). Upewnij się ponownie, że wszystkie szczury reagują prawidłowo w swoich klatkach, że wszystkie ustawienia wzmocnienia i wzmocnienia sygnału są stałe oraz że sygnały elektryczne z nich pochodzące są prawidłowe (tj. szum EMG jest niski/minimalny). W ciągu wszystkich dni treningu nabywania stosuj natężenie bodźca bezwarunkowego (US) w postaci wstrząsu wynoszące 1,6 mA.
UWAGA: Jeśli szczur wykaże oznaki bólu przy danym poziomie wstrząsu (np. wysokie skakanie z podłoża, wspinanie się po ścianach, bieganie w kółko), próbę należy przerwać, a zwierzę powinno wrócić do poprzedniego ustawienia mA (niższego o 0,4 mA) na dwie próby. Następnie szczur ponownie otrzyma wyższą wartość wstrząsu, której nie tolerował; jeśli wykaże tolerancję, będzie otrzymywać coraz wyższe wartości, aż do osiągnięcia 1,6 mA. Jeśli zwierzę nie toleruje żadnej z wartości, przez cały okres treningu stosowana będzie następna niższa wartość (w przyrostach 0,4 mA), którą szczur toleruje. - Użyj oscyloskopu, aby zaobserwować aktywność EMG w poszukiwaniu sygnałów nieprawidłowych (np., wysoką częstotliwość i/lub wysoką amplitudę aktywności elektrycznej) oraz system monitoringu wideo do sprawdzania ich stanu (np., aktywność ruchowa, wrażliwość na bodźce środowiskowe, objawy bólu).
UWAGA: Wyjaśnienie zapisu ECC: Reprezentatywna epoka próbna z zarejestrowanymi przebiegami EMG została przedstawiona w Rycina 1 a szczegółowa procedura śledzenia ECC została wyjaśniona w materiale wideo. Plik treningowy dla kondycjonowania śledzącego został skonfigurowany tak, aby przeprowadzić 10 prób (90 prób z parą CS-US i 10 prób z samym CS na każde 10th (próba) ze średnim odstępem między próbami wynoszącym 30 s. Cała sesja treningowa trwa około 52 min (przy założeniu braku przerw). Wszystkie szczury w Sesji 1 są naiwne i będą wykazywać zróżnicowane krzywe uczenia się (określane przez ekspresję reakcji warunkowych), w miarę postępów w kilkudniowym treningu. - Rozpocznij trening: Uruchom moduł oprogramowania Blink. Po wyświetleniu odpowiedniego komunikatu wybierz właściwy plik RAT oraz plik treningowy dla warunkowania mrugania typu „trace”.
- W dzienniku treningowym należy zapisać godzinę rozpoczęcia oraz imię i nazwisko eksperymentatora. Na tym etapie należy monitorować wszystkie parametry: prawidłowe sygnały EMG, prawidłowe reakcje mrugania na szokowy bodziec bezwarunkowy (tj. wysoka częstotliwość reakcji bezwarunkowych), stan zdrowia zwierząt oraz prawidłowe działanie sprzętu. Wszelkie istotne uwagi należy wpisać do dziennika treningowego.
- Gromadzenie danych odbywa się automatycznie przez oprogramowanie w postaci plików RAW (jeden plik na szczura na dzień). Pliki RAW zawierają amplitudę EMG (w woltach), liczbę częstotliwości, latencję oraz dane powierzchniowe dla reakcji na zaskoczenie (SRs), reakcji bezwarunkowych (URs) oraz reakcji warunkowych (CRs, całkowitych i adaptacyjnych). Artefakt wywołany wstrząsem maskuje pierwsze 10 ms okresu UR, w związku z czym dane UR znajdują się jedynie w ostatnich 140 ms tego okresu.
- Po zakończeniu treningu oprogramowanie zamknie się automatycznie. Należy wyjąć wszystkie szczury z boksów treningowych i przenieść je z powrotem do hodowli.
- Powtórz kroki 5.2.5–5.2.6 dla wszystkich kolejnych dni treningowych. Przed uruchomieniem modułu Blink w danym dniu zaktualizuj numer sesji w pliku RAT. Pozwoli to na utworzenie nowych plików RAW dla wszystkich szczurów w tym dniu. Każdy szczur powinien mieć 6 plików RAW, zakładając, że żaden nie został wykluczony z treningu.
- Przetworzyć pliki RAW i utworzyć plik przefiltrowany do analizy statystycznej.
- Uruchom moduł Analysis. Przejrzyj każdą sesję dla każdego szczura w ujęciu poszczególnych prób pod kątem prób problematycznych. Jest to przeprowadzane w celu wyłonienia prób, które mogły zostać naruszone z różnych przyczyn (np., nadmierna aktywność bazowa przed CS, nadmierny ruch, odklejenie elektrod, problemy z okablowaniem/przewodami). Oprogramowanie posiada algorytmy, które pomagają eksperymentatorowi w wykrywaniu i usuwaniu „wadliwych prób”, aby nie stanowiły one części przefiltrowanego zestawu danych.
- Zaimportuj przefiltrowane dane do programu arkusza kalkulacyjnego i przeprowadź odpowiednie analizy statystyczne.
Wyniki
Oprogramowanie do mrugania okiem umożliwia uzyskanie dużego i kompleksowego zestawu danych dla wielu rodzajów pomiarów. Dla zwięzłości przedstawiamy w niniejszym badaniu reprezentatywne wyniki dla miar uczenia się i wydajności, obejmujące procent adaptacyjnej odpowiedzi warunkowej (CR), amplitudę adaptacyjnej CR, procent odpowiedzi bezwarunkowej (UR) oraz amplitudę UR. Okres adaptacyjnej CR wybrano, ponieważ reprezentuje on nabywanie odpowiednio zsynchronizowanych reakcji mrugania w wyniku wielokrotnego treningu, co jest rezultatem wzmocnionej plastyczności synaptycznej w hipokampie podczas warunkowania klasycznego z przerwą (trace ECC)50,51,52. Miary UR wybrano, aby wyjaśnić, czy indukowane noworodkowym alkoholem deficyty uczenia się w trace ECC wynikały z zaburzeń uczenia się asocjacyjnego czy z zaburzeń w reagowaniu na szokowy bodziec bezwarunkowy (US) – co mogłoby wskazywać na różnice motywacyjne lub motoryczne, a nie na różnice w uczeniu się między grupami badawczymi. Dane dla każdej miary analizowano za pomocą mieszanych testów ANOVA 2 (Płeć) x 3 (Grupa Noworodkowa) x 6 (Sesja), przyjmując Sesję jako czynnik z powtarzanymi pomiarami. Istotne efekty główne dla leczenia noworodków analizowano za pomocą testów post hoc Tukeya, a istotne interakcje analizowano za pomocą testów efektów prostych. Wszystkie analizy statystyczne przeprowadzono przy minimalnym poziomie alfa 0,05, a wyniki na wykresach przedstawiono jako średnia ± SEM.
Zaczynając od pomiaru procentowego adaptacyjnej reakcji warunkowanej (CR), analiza ANOVA wykazała istotny główny efekt grupy noworodkowej, F(2,21) = 1,69, p <0,01, ale brak istotnego głównego efektu płci (p = 0,71) lub istotnej interakcji między tymi czynnikami (p = 0,20). Zgodnie z oczekiwaniami, procent adaptacyjnej CR wzrastał w ciągu sześciu sesji treningowych, F(5, 105) = 81,15, p <0,01, a różnice między grupami noworodkowymi były zależne od poziomu sesji, F(10, 105) = 4,58, p <0,01. Nie stwierdzono innych istotnych interakcji z udziałem czynnika sesji. Podobnie w przypadku amplitudy adaptacyjnej CR, ponownie wystąpił istotny główny efekt grupy noworodkowej, F(2,21) = 22,32, p <0,01, ale brak istotnego głównego efektu płci (p = 0,21) lub istotnej interakcji między tymi czynnikami (p = 0,48). Amplituda CR również istotnie wzrosła w ciągu sześciu sesji treningowych, F(5, 105) = 59,27, p <0,01, a różnice między grupami noworodkowymi były zależne od poziomu sesji, F(10, 105) = 4,31, p <0,01. Ogólnie rzecz biorąc, oba pomiary CR wykazały istotne różnice między średnimi grupowymi, a średnie te różniły się istotnie w zależności od sesji treningowej. Aby potwierdzić, które grupy różniły się istotnie, przeprowadzono testy post hoc Tukeya, które wykazały, że szczury intubowane alkoholem (AI) osiągały istotnie gorsze wyniki w obu pomiarach CR niż szczury kontrolne nieintubowane (UC) oraz szczury intubowane pozornie (SI) (p <0,01 dla procentu CR; p <0,01 dla amplitudy CR), które nie różniły się od siebie (p >0,05). Testy efektów prostych wykonane dla istotnych interakcji Grupy Noworodkowej x Sesji dla obu pomiarów CR potwierdziły, że szczury AI wykazywały istotnie większe zaburzenia w nabywaniu reakcji CR, zaczynając od sesji 2 aż do sesji 6, w porównaniu do szczurów UC i SI (wszystkie p <0,05), które nie różniły się od siebie przez wszystkie sześć sesji. Jedynym wyjątkiem była amplituda adaptacyjnej CR dla szczurów SI, która nie zaczęła różnić się istotnie od szczurów AI aż do sesji 3. Wyniki te przedstawiono na Rysunku 5A, 5B.
Nie stwierdzono istotnych różnic w pomiarach UR ze względu na płeć, grupę noworodkową ani interakcje tych czynników z czynnikiem sesji. Te negatywne wyniki wskazują, że każda grupa była w stanie w równym stopniu wywoływać reakcje mrugania na szokowy US, a deficyty w uczeniu się zaobserwowane u szczurów AI nie wynikały z różnic motywacyjnych lub motorycznych w mruganiu (Rysunek 6A, 6B).
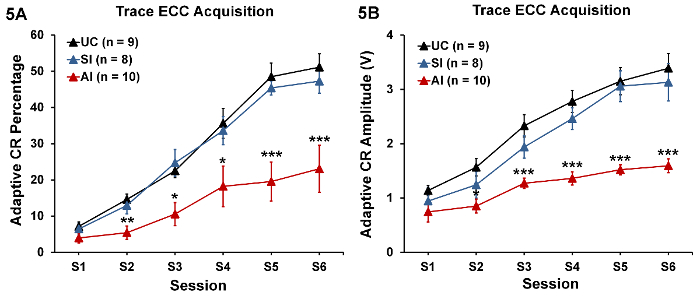
Rycina 5Nabywanie reakcji warunkowej na śladową dawkę (średnia ± SEM). Wczesna ekspozycja na alkohol (grupa AI) znacząco wpłynęła na nabywanie procentowego udziału (A) oraz amplitudę (B) adaptacyjnej reakcji uwarunkowanej (CR). Warunkowanie śladowe (trace ECC) jest z natury trudne do wypracowania, dlatego wskaźniki te są stosunkowo niższe dla wszystkich grup – w przypadku warunkowania z opóźnieniem (delay ECC) wartości procentowe w modelach gryzoni z FASD mogą osiągać 80–85%.21,53Niemniej jednak procedura śledzenia ECC jest bardziej obciążająca dla hipokampa, który wykazuje podatność na działanie alkoholu podczas wczesnego rozwoju mózgu. * = p <0.05, ** = p <0.01, *** = p <0,01 pomiędzy szczurami UC a AI; liczebności prób podano w nawiasach. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
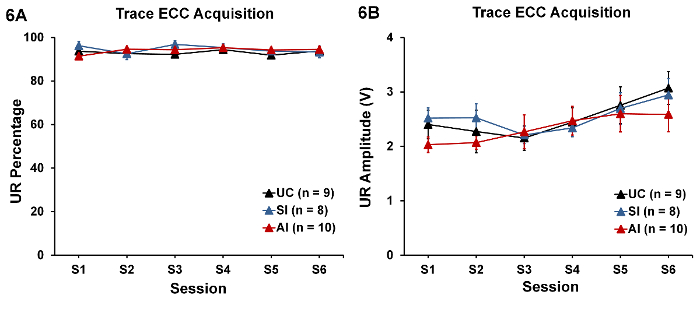
Rysunek 6Nabywanie reakcji bezwarunkowych (średnia ± SEM). Wydajność mrugania okiem (procent UR i amplituda UR) nie różniła się znacząco między grupami. Brak różnic wskazuje, że intensywność wstrząsu stosowana podczas treningu nabywania nie zmieniła w sposób zróżnicowany motywacji szczurów w grupie AI ani ich zdolności do generowania obronnych reakcji mrugania na wstrząs w porównaniu z obiema grupami kontrolnymi (UC i SI). Wielkości prób podano w nawiasach. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej figury.
Dyskusja
Nowonarodzone młode szczurów, które otrzymywały alkohol etylowy w 4-9 dniu po urodzeniu, wykazywały śladowe upośledzenie warunkowania mrugania oczami w wieku dorosłym. Odkrycia te potwierdzają ideę, że alkohol jest teratogenem o trwałym szkodliwym wpływie na funkcjonowanie hipokampa. Ogólnie rzecz biorąc, warunkowa odpowiedź w procedurze śladowej była niższa u szczurów narażonych na alkohol w porównaniu ze szczurami w obu grupach kontrolnych. Na asocjacyjne zaburzenia uczenia się u szczurów narażonych na działanie alkoholu nie miały wpływu różnice motywacyjne lub motoryczne (tj. brak różnic w mruganiu do intensywności szoku).
Chociaż TRACE ECC jest użytecznym narzędziem diagnostycznym do wyjaśniania neuropatologii hipokampa wywołanej prowokacją, wyniki tej metody muszą być umieszczone we właściwym kontekście. Po pierwsze, kluczowe elementy proceduralne tej demonstracji obejmowały celowe dostarczanie alkoholu w znanym oknie podatności rozwijającego się mózgu, wytwarzanie elektrod, które umożliwiają rejestrowanie aktywności elektromiograficznej i zapewniają wstrząs, chirurgiczne wszczepienie wspomnianego sprzętu oraz późniejsze testy na zwierzętach przy użyciu paradygmatu uczenia się, który ocenia funkcję poznawczą będącą przedmiotem zainteresowania. Na każdym etapie procesu należy zachować ostrożność, aby nie wyrządzić niepotrzebnej/niezamierzonej szkody gryzoniom i regularnie monitorować ich objawy zdrowotne. Ich wyniki behawioralne stanowią "okno" do poznania, konstruktu psychologicznego, który jest dokładnie opisany tylko wtedy, gdy ich zdrowie nie jest zagrożone przez błędy eksperymentalne obejmujące dawkowanie alkoholu, wady sprzętowe lub implantację chirurgiczną. W związku z tym każdy element proceduralny w procesie badawczym musi być wdrożony w sposób rzetelny, aby zapewnić ekstrapolację wyników ECC na wyniki badań na ludziach. Po drugie, paradygmat ECC zapewnia wgląd w naturę uczenia się asocjacyjnego, ale należy zachować ostrożność, aby nie rozszerzać wyników za pomocą tego podejścia i szeroko przypisywać je do innych domen poznawczych - takich jak pamięć robocza, wspomnienia krótko- i długoterminowe oraz świadomość - chyba że ktoś włączył jakiś aspekt tych domen do badania ECC za pomocą projektu eksperymentalnego. Na przykład, w tej demonstracji zbadano fazę akwizycji śladowego uczenia się ECC, ale nie zbadano zachowania pamięci u szczurów po zakończeniu treningu. Pamięć jest zatem niezależnym procesem psychologicznym, który powinien być oceniany nie tylko w procesie uczenia się). Z założenia można włączyć interwał zatrzymywania pamięci, aby ocenić zdolność pamięci krótkotrwałej lub długotrwałej. Po trzecie, uznanie, że istniejąrównoległe systemy pamięci, które mogą działać jednocześnie z czynnikami motywacyjnymi, empirycznymi i hormonalnymi, które przyczyniają się do zachowania, jest niezbędne do zrozumienia, że kojarzenie (podczas ECC) jest tylko jednym z wielu procesów, które ujawniają, co jest "dobre" lub "złe" w uczeniu się. Wreszcie, śladowe ECC nie jest zadaniem zależnym wyłącznie od hipokampa, ponieważ inne obszary mózgu mogą pośredniczyć w jakimś składniku CR. W związku z tym zrozumienie interakcji między różnymi obwodami neuronalnymi i/lub rodzajem parametrów bodźca, które są wykorzystywane w badaniu, musi być brane pod uwagę przy formułowaniu implikacji na podstawie dyskretnych wyników. Móżdżek, na przykład, również przyczynia się do śledzenia ECC, gdzie wpływa na charakterystykę topograficzną CR i czas CR, szczególnie gdy ISI jest krótkotrwały. Śladowe ECC nie występuje u ludzi z uszkodzeniem móżdżku, którzy są badani z długim odstępem między śladami (1000 ms), ale występuje u tych, którzy otrzymują krótszy odstęp śladowy (400 ms)34. Ponadto obustronne zmiany grzbietowej przyśrodkowej kory przedczołowej (mPFC), które są ukierunkowane na przedni zakręt obręczy i przyśrodkowe obszary ziarniste u myszy, zapobiegają nabywaniu śladowych CRs55, podczas gdy zniszczenie ogonowego mPFC u królików daje podobne wyniki46. Odkrycia te podkreślają również znaczenie uwzględnienia różnic między gatunkami w udziale przedczołowym w uczeniu się asocjacyjnym napędzanym przez móżdżek i pień mózgu, takim jak śladowe ECC. Podczas gdy narażenie noworodków na alkohol podczas PD 4-9 niekorzystnie wpłynęło na nabycie śladowych CR 500 ms u dorosłych szczurów w tym badaniu i innych47,56, nie jest to ten sam przypadek w przypadku noworodków narażonych na działanie alkoholu, które doświadczają 300-milisekundowego okresu śladowego, nawet gdy prowokacja była prowokowana stosunkowo wysoką dawką alkoholu (5 g / kg)57, sugerując, że upośledzenie śladowe u szczurów narażonych na działanie alkoholu zależy od czasu trwania interwału śladowego.
W tym badaniu podkreślono, że hipokamp jest niezwykle ważny dla pośredniczenia w śladowym ECC, a gdy jest zagrożony ekspozycją noworodków na alkohol, wykazuje uszkodzenia związane z neuronami, co znajduje odzwierciedlenie w upośledzeniu nabywania śladowych CR. Należy jednak ostrzec, że obwody móżdżkowo-pniowe pnia, w szczególności jądro międzyporodowe, są niezbędne dla wielu aspektów ECC, w tym dla nabywania, wyrażania i cech topograficznych CR, w zależności od rodzaju zadania ECC, w tym śladu ECC 36,40,55,58,59. Rzeczywiście, ten obwód neuronalny oddziałuje z hipokampem w celu kierowania ekspresją CR podczas form ECC wyższego rzędu, takich jak ślad ECC60. Nie jest do końca jasne, czy narażenie na alkohol we wczesnym okresie rozwoju mózgu wpływa konkretnie na funkcję hipokampa w śladowym ECC. Wiele różnych obszarów mózgu jest podatnych na wczesną chorobę alkoholową, w tym mPFC, móżdżek i hipokamp 18,19,23,47,61,62, i jest bardzo prawdopodobne, że alkohol zaburza funkcjonowanie tych struktur w różnym stopniu i na różne, ale funkcjonalnie ważne różnice w wielu procedurach ECC. Pomimo pułapek związanych z interpretacją wyników badań śladowych ECC, wykazano, że skuteczne nabycie śladowych CR zależy przynajmniej od nienaruszonego hipokampa, co potwierdzają badania zmian u zwierząt 42,44,63,64,65. Procedura ta pozostaje zatem bardzo cennym podejściem do wykazywania powiązań między rozwojową ekspozycją na alkohol a śladowymi reakcjami warunkowanymi, ponieważ obwody neuronalne leżące u jej podstaw są znacznie lepiej poznane niż w przypadku innych zadań zależnych od hipokampa, takich jak uczenie się miejsca w labiryncie wodnym Morrisa, rozpoznawanie nowych obiektów oraz warunkowanie strachu kontekstowego i śladowego.
ECC, jako behawioralna metoda "oznaczania" poznania, ma szerokie zastosowanie w dziedzinie neuroterapii rozwojowej. Rzeczywiście, ostatnie odkrycia z naszego laboratorium potwierdzają pogląd, że rozwijający się hipokamp jest wysoce wrażliwy na działanie alkoholu, które można złagodzić za pomocą różnych strategii interwencyjnych18,47. Kluczową korzyścią jest to, że dzięki lepszemu zrozumieniu śladowych deficytów uczenia się ECC wywołanych alkoholem, mogą one przewidywać inne problemy w funkcjach opartych na hipokampie poza uczeniem się asocjacyjnym - szczególnie te, o których wiadomo, że są zapośredniczone przez ten sam obwód neurologiczny hipokampa.
Zastosowanie śladowego ECC i jego innych wariantów (np. opóźnienie, odwrócenie, dyskryminacja, związek) w celu wyjaśnienia mechanizmów neurobiologicznych i systemów neuronalnych zaangażowanych w uczenie się asocjacyjne może zostać rozszerzone poza obszar badań nad alkoholem płodowym. Na przykład, paradygmat ten zyskał wiele uwagi w przypadkach ludzi i zwierzęcych modelach zaburzeń psychicznych, takich jak schizofrenia 66,67, choroby neurodegeneracyjne, takie jak choroba Alzheimera68,69 i nadużywanie narkotyków 70,71,72. Korzyści płynące z jej stosowania jako metody badawczej do oceny funkcji i dysfunkcji neuropoznawczych są zatem widoczne w wielu dyscyplinach psychologicznych i biomedycznych, w tym w neurobiologii.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca została wsparta grantem dla TDT od Fundacji Badań Medycznych nad Napojami Alkoholowymi (ABMRF).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Narażenie na alkohol noworodków | |||
| 190 Proof Ethyl Alcohol (USP) | Pharmco-AAPER | 225-36000 [ECU Medical Storeroom] | Można zastąpić; powinien być USP; unikaj używania 200-procentowego alkoholu etylowego |
| Pojemnik/kosz dla szczeniąt | Dowolny | ||
| olej kukurydziany | Dowolna | ||
| pompa do terapii podgrzewaną wodą klasy spożywczej z / Podkładki | Gaymar | TP-500 | Aby utrzymać szczenięta w cieple; można zastąpić |
| Igły podskórne 22G x 1 cal, sterylne | dowolne | ||
| igły podskórne 30G x 1/2 cala, sterylne | dowolny | ||
| alkohol izopropylowy 70% | EMD Millipore | PX1840-4 [Fisher Scientific] | Można zastąpić; klasa odczynnika www.fishersci.com |
| Szczury Long-Evans (samice i samce) | Charles River Laboratories | N/A [ECU Dept. of Comparative Medicine] | Należy określić wiek i wagę; ceny różnią się w zależności od tych czynników www.criver.com |
| Mikro nożyczki preparacyjne, 3,5 cala, ostrza 23 mm Instrumenty | do badań biomedycznych | 11-2200 | Do cięcia rur PE brisurgical.comRurki |
| polietylenowe 10 (0,011 cala) dowód osobisty; 0,024 cala O.D.) | BD Diagnostic Systems | 22-204008 [Fisher Scientific] | Można zastąpić www.fishersci.com |
| Rurka polietylenowa 50 (0,023 cala. dowód osobisty; 0,038 cala O.D.) | Systemy diagnostyczne BD | 22270835 [Fisher Scientific] | Można zastąpić www.fishersci.com |
| Regulowany podgrzewacz wody lub podgrzewacz do butelek z mlekiem dla niemowląt | Dowolny | opcjonalny; pomaga w podgrzewaniu roztworów zimnego mleka | |
| Strzykawki tuberkulinowe, sterylne, 1,0 ml | dowolne | ||
| Strzykawki tuberkulinowe, sterylne, 10 ml | dowolne | Może być używany do wyciągania alkoholu etylowego lub używania odpowiedniej wielkości mikropipety | |
| Waga | Dowolna | powinna mieć dobrą rozdzielczość (w gramach jednostek) | |
| Nazwa | Firma | Numer katalogowy | Komentarze |
| EMG Produkcja scen czołowych i elektroda bipolarna Modyfikacja | |||
| Elektroda bipolarna, 2-kanałowa SS Twisted | Plastics One, Inc. | MS303/2-B/SPC WYBIERZ SS 2C TW .008" | Należy określić niestandardową długość 20 mm poniżej cokołu www.plastics1.com |
| Centi-Loc Strip Socket Insulator (aka, Micro Strip) | ITT Cannon / ITT Interconnect Solutions | CTA4-IS-60* lub CTA4-1S-60* | *W zależności od dostawcy; patrz www.onlinecomponents.com lub www.avnetexpress.avnet.com |
| Szczypce dentystyczne, ząbkowane | CMF Medicon | 390.20.05 | Może być zastąpiony; służy do zaciskania przewodów na męskich stykach stykowych www.medicon.de |
| Nożyczki do mikropreparacji, ostrza 3,5 cala, 23 mm | Instrumenty do badań biomedycznych | 11-2200 | Używaj tylko do cięcia drutów 3T; cięcie drutów 10T spowoduje uszkodzenie ostrza - zamiast tego użyj ostrza ściągacza izolacji brisurgical.com |
| Drut ze stali nierdzewnej pokryty PTFE, 10T (średnica 0,010 cala) | Sigmund Cohn-Medwire | 316SS10T | www.sigmundcohn.com |
| Drut ze stali nierdzewnej pokryty PTFE, 3T (średnica 0,003 cala) | Sigmund Cohn-Medwire | 316SS3T | www.sigmundcohn.com |
| Żyletka | Dowolna | Do usunięcia 1 mm z zębów elektrody bipolarnej | |
| Relia-Tac Gniazdo stykowe, męskie | Interkonekt | 220-P02-100 | Patrz Allied Electronics Cat # 70144761 www.alliedelec.com |
| Pęseta, wysoka precyzja, ząbkowana, 4 3/4 cala | Mikroskopia elektronowa Sciences | 78314-00D | Aby mocno chwycić drut 10T podczas zdejmowania izolacji z PTFE za pomocą gładkiej pęsety www.emsdiasum.com |
| Pęseta, wysoka precyzja, gładka, 4 3/4 w | Mikroskopii elektronowej Sciences | 78313-00B | www.emsdiasum.com |
| Pęseta, ultra cienkie końcówki, 4 3/4 w | Mikroskopia elektronowa Nauki | 78510-0 | Aby usunąć 1 mm PTFE z jednego końca drutu 3T; chwyć osłoniętą część gładką pęsetą www.emsdiasum.com |
| Ściągacz izolacji, 16-26 AWG | Dowolna | Użyj końcówki ostrza do cięcia mikro pasków | |
| Nazwa | >Firma | Numer katalogowy | Komentarze |
| Chirurgia powiek | |||
| Narzędzia chirurgiczne (wysokiej jakości stal nierdzewna) | |||
| 2 x kleszcze opatrunkowe, 4 cale ząbkowane | instrumenty do badań biomedycznych | 30-1205 | Można zastąpić; dodatkowe kleszcze do chwytania elektrod/na zewnątrz tacy chirurgicznej brisurgical.com |
| Kleszcze opatrunkowe, 3 cale Ząbkowane | instrumenty do badań biomedycznych | 30-1200 | Może być zastąpiony brisurgical.com |
| Taca na instrumenty | Instrumenty do badań biomedycznych | 24-1355 | Można zastąpić brisurgical.com |
| Rękojeść noża nr 3, 5 w | Przyrządy do badań biomedycznych | 26-1000 | Można zastąpić brisurgical.com |
| Mikro kleszcze preparacyjne, 3,5 cala, Fine Points | Biomedyczne instrumenty badawcze | 10-1630 | Można zastąpić brisurgical.com |
| Mikro kleszcze preparacyjne, 3,5 cala, gładka platforma (0,3 x 5 mm) | Biomedyczne instrumenty badawcze | 10-1720 | brisurgical.com |
| Mikro nożyczki preparacyjne, 3,5 cala, Niezwykle delikatne, ostrza 15 mm | Instrumenty do badań biomedycznych | 11-2000 | Można zastąpić brisurgical.com |
| Zwykłe kleszcze do odłamków, 3,5 cala | Instrumenty do badań biomedycznych | 30-1600 | Można zastąpić brisurgical.com< / a> |
| # 10 Ostrze chirurgiczne ze stali nierdzewnej do uchwytu #3, sterylne | Dowolne | Można zastąpić | |
| 0-80 x 0,125 cala ze stali nierdzewnej | Plastics One, Inc. | 0-80 x 0,125 | Można podstawić www.plastics1.com |
| Podkładki do przygotowywania alkoholu, sterylne | Fisher Scientific | 22-363-750 [Fisher Scientific | Można zastąpić www.fishersci.com |
| Betadine Powidon-Jod | Purdue Frederick Co. | 6761815101 [Fisher Scientific] | Można zastąpić www.fishersci.com |
| Betadine Powidon-Jodowe Podkładki Przygotowawcze | Moore Medical | 19-898-946 [Fisher Scientific] | Można zastąpić www.fishersci.com |
| Waciki z bawełnianą końcówką, autoklawowalne | dowolne | Zazwyczaj wiertło o długości 7,6 cm lub 15,2 cm | |
| do imadła kołkowego, #55 (0,052 cala) | Każdy | metal powinien być odporny na rdzewienie i korozję Podkładki | |
| z gazy, 2 cale x 2 cale | Fisher Scientific | 22-362-178 [Fisher Scientific] | Można zastąpić www.fishersci.com |
| Rękawice lateksowe/nitrylowe/winylowe ogólnego przeznaczenia | dowolne | ||
| Sterylizator szklanych kulek | Dowolne | narzędzia sterylizacyjne między operacjami | |
| Pompa do terapii podgrzewaną wodą z podkładkami x 2 | Gaymar | TP-500 | Może być zastąpiony; zalecane są oddzielne pompy - 1 do operacji, 1 do rekonwalescencji |
| Igły podskórne 26G x 3/8 cala, sterylne | dowolny | ||
| izofluran | Vedco | NDC 50989-150-12 | Producent może zostać zastąpiony; Może być wymagana zgoda weterynaryjna |
| System waporyzatora izofluranowego, blat, nieoddychający | Parkland Scientific | V3000PK | Można zastąpić www.parklandscientific.com |
| Jubilerzy Śrubokręt z ostrzem 1,8-2 mm | Każdy | metal powinien być odporny na rdzewienie i korozję | |
| Pakiet Ortho-Jet BCA (cement dentystyczny) | Lang Dental | B1334 | Zawiera proszek (1 funt) i płyn www.langdental.com |
| Zbiornik tlenu z regulatorem ciśnienia, duży | lokalny dostawca | ||
| Tygiel porcelanowy, wysokoformowy, szkliwiony, 10 ml | CoorsTek, Inc. | 07-965C [Fisher Scientific] | Może być zastąpiony przez Fisher FB-965-I Tygiel szerokokształtny www.fishersci.com |
| Puralube Weterynaryjna maść okulistyczna, sterylna | firma Henry Schein NC0144682 | [Fisher Scientific] | Można zastąpić www.fishersci.com |
| Quatricide PV-15 | Pharmacal | PV-15 | Przeciwbakteryjny środek dezynfekujący; można zastąpić www.pharmacal.com |
| Maski anestezjologiczne na gaz dla szczurów do chirurgii stereotaktycznej | Stoelting Company | 51610 | www.stoeltingco.com |
| Aparat stereotaktyczny Rat z prętami usznymi (45 stopni) | Wszelkie | pręty 45 stopni są zalecane, aby zapobiec uszkodzeniu błony bębenkowej | |
| Narzędzie chirurgiczne Roboz Mleko | chirurgiczne Roboz | [Fisher Scientific] | Może być zastąpiony; Do smarowania narzędzi podczas autoklawowania www.fishersci.com |
| Maszynka do strzyżenia włosów gryzoni | Dowolny | ||
| chlorek sodu | Fisher Scientific | S641-500 [Fisher Scientific] | Aby uzyskać 0,9% soli fizjologicznej; klasa odczynnika; USP www.fishersci.com |
| Mikroszpatułka ze stali nierdzewnej (ostrze: 0,75 l x 0,18 cala. W) | Fisher Scientific | 21-401-15 [Fisher Scientific] | Można zastąpić www.fishersci.com |
| Imadło szpilkowe Starrett, 0,000 cala - 0,055 cala | Dowolna | niklowana lub równoważna zalecana odporność na rdzewienie i korozję | |
| Sterylne rękawice chirurgiczne | Dowolne | ||
| okłady sterylizacyjne, 20 cali x 20 cali, autoklawowalne | Propper Manufacturing | 11-890-8C [Fisher Scientific] | Przydatny do owijania materiałów do sterylizacji w autoklawie i na sterylnym polu podczas operacji www.fishersci.com |
| Obłobuła chirurgiczna, sterylna/autoklawowalna | być konieczne przycięcie na wymiar dla szczurów | ||
| Fartuch chirurgiczny* | Dowolny | *Jeśli jest to wymagane przez | |
| maskę chirurgiczną IACUC | Dowolne | ||
| strzykawki tuberkulinowe, sterylne, 1,0 ml | Dowolna | ||
| waga | Powinna mieć dobrą rozdzielczość (w gramach jednostek) | ||
| Nazwa | Firma | Numer katalogowy | Komentarze |
| Eyeblink System and Components (zakładając system 4-gryzoni) | |||
| 5-kanałowy komutator x 4 | Plastics One, Inc. | SL2 + 3C | www.plastics1.com |
| elektrody bipolarnej, podwójny 305 x 4 | Plastics One, Inc. | 305-305 80CM TT2 (C) | Zapewnia końcówkę wtyczki do elektrody bipolarnej na szczurze i do komutatora; musi być zmodyfikowany www.plastics1.com |
| , 5-kanałowy, ekranowany, 26 AWG x 4 | dowolny | Aby wyprodukować komutatorowy; musi być wykonany od podstaw | |
| Komora na skrzynkę testową Operant (wewnątrz: 24 wys. x 23 szer. x 14 gł. cal) x 4 | Med-Associates | Może być zastąpiony; wymiary wewnętrzne powinny wygodnie pasować do skrzynki testowej z miejscem na piankę akustyczną; pasuje do wentylatora - 55-60 dB www.med-associates.com | |
| Eyeblink System i oprogramowanie | JSA Designs | N/A | Zastrzeżone i dostosowane do laboratorium badawczego |
| Rurki termokurczliwe (średnice 3/16 cala, 1/4 cala, 3/8 cala, 1/2 cala) | Dowolna | Do ochrony zmodyfikowanych końcówek i spawów lutowanych komutatorowych | |
| Melamina Triple Peak Acoustical Foam z czarnym hypalonem (24 x 48 cali) | McMaster-Carr | 9162T5 | Można zastąpić; przyciąć tak, aby pasowało do 4 komór mieszkaniowych www.mcmaster.com |
| Skrzynka testowa Operant (zewnętrzna 12,5 dł. x 10 szer. x 13,5 cala wys.), kompletna x 4 | Med-Associates | ENV-007 | Z podłogą z siatki ze stali nierdzewnej i niestandardową górą (3 otwory pośrodku na komutatora) www.med-associates.com< / a> |
| oscyloskop (opcjonalnie) | Dowolny | Zalecane minimalne wymagania: pasmo analogowe 200 MHz, próbkowanie w czasie rzeczywistym 1 GS/s, 4 kanały; patrz www.picotech.com /td> | |
| Piezoelektryczne głośniki wysokotonowe (głośniki) x 4 (7 x 3 cale) | MCM Electronics | 53-805 | Musi pasować do specyfikacji zakresu częstotliwości dla systemu mrugania (2500 Hz - 25 KHz) www.mcmelectronics.com |
| Stacja lutownicza, lut, topnik, cyna | Dowolna | Do 26 AWG do gniazd żeńskich (pasujących do męskich styków relia-tac) i wtyczek bipolarnych | |
| Izolatory bodźców x 4 | WPI International | A365 | Jednostki te działają na bateriach alkalicznych 16-9 V; dostępna jest odpowiednia wersja akumulatora (A365R) www.wpiinc.com |
| elektrody tripolarnej do komutatora SL3C x 4 | tworzywa sztuczne jeden, Inc. | 335-335 80cm TT3 C | Zapewnia końcówkę wtyczki do sceny czołowej EMG na szczurze i do komutatora; musi być zmodyfikowany www.plastics1.comDiody |
| LED USB x 4 | Żadne | światła oparte na USB nie powodują elektrycznego "szumu" z sygnałami EMG od szczurów www.plastics1.com | |
| kamery internetowe x 4, oprogramowanie do nadzoru | Dowolny | ||
| komputer PC z systemem operacyjnym |
Bibliografia
- Jones, K. L., Smith, D. W. Recognition of the fetal alcohol syndrome in early infancy. Lancet. 2, 999-1001 (1973).
- Stratton, K. R., Howe, C. J., Battaglia, F. C. Fetal alcohol syndrome: Diagnosis, epidemiology, prevention, and treatment. , National Academy Press. (1996).
- Streissguth, A. P., Barr, H. M., Martin, D. C., Herman, C. S. Effects of maternal alcohol, nicotine, and caffeine use during pregnancy on infant mental and motor development at eight months. Alcohol Clin Exp Res. 4 (2), 152-164 (1980).
- Streissguth, A. P., O'Malley, K. Neuropsychiatric implications and long-term consequences of fetal alcohol spectrum disorders. Semin Clin Neuropsychiatry. 5 (3), 177-190 (2000).
- May, P. A., et al. Prevalence and epidemiologic characteristics of FASD from various research methods with an emphasis on recent in-school studies. Dev Disabil Res Rev. 15 (3), 176-192 (2009).
- Sowell, E. R., et al. Mapping callosal morphology and cognitive correlates: Effects of heavy prenatal alcohol exposure. Neurology. 57 (2), 235-244 (2001).
- Sowell, E. R., et al. Abnormal development of the cerebellar vermis in children prenatally exposed to alcohol: Size reduction in lobules I-V. Alcohol Clin Exp Res. 20 (1), 31-34 (1996).
- Autti-Ramo, I., et al. MRI findings in children with school problems who had been exposed prenatally to alcohol. Dev Med Child Neurol. 44 (2), 98-106 (2002).
- Hamilton, D. A., Kodituwakku, P., Sutherland, R. J., Savage, D. D. Children with Fetal Alcohol Syndrome are impaired at place learning but not cued-navigation in a virtual Morris water task. Behav Brain Res. 143 (1), 85-94 (2003).
- Uecker, A., Nadel, L. Spatial but not object memory impairments in children with fetal alcohol syndrome. Am J Ment Retard. 103 (1), 12-18 (1998).
- Uecker, A., Nadel, L. Spatial locations gone awry: object and spatial memory deficits in children with fetal alcohol syndrome. Neuropsychologia. 34 (3), 209-223 (1996).
- Goodlett, C. R., Lundahl, K. R. Temporal determinants of neonatal alcohol-induced cerebellar damage and motor performance deficits. Pharmacol Biochem Behav. 55 (4), 531-540 (1996).
- Goodlett, C. R., Kelly, S. J., West, J. R. Early postnatal alcohol exposure that produces high blood alcohol levels impairs development of spatial navigation learning. Psychobiol. 15, 64-74 (1987).
- Bayer, S. A., Altman, J., Russo, R. J., Zhang, X. Timetables of neurogenesis in the human brain based on experimentally determined patterns in the rat. Neurotoxicol. 14 (1), 83-144 (1993).
- Dobbing, J., Sands, J. Quantitative growth and development of human brain. Arch Dis Child. 48 (10), 757-767 (1973).
- West, J. R. Fetal alcohol-induced brain damage and the problem of determining temporal vulnerability: A review. Alcohol Drug Res. 7 (5-6), 423-441 (1987).
- Zecevic, N., Rakic, P. Differentiation of Purkinje cells and their relationship to other components of developing cerebellar cortex in man. J Comp Neurol. 167, 27-48 (1976).
- Rufer, E. S., et al. Adequacy of maternal iron status protects against behavioral, neuroanatomical, and growth deficits in fetal alcohol spectrum disorders. PLoS One. 7 (10), e47499(2012).
- Tran, T. D., Kelly, S. J. Critical periods for ethanol-induced cell loss in the hippocampal formation. Neurotoxicol Teratol. 25 (5), 519-528 (2003).
- Pierce, D. R., Goodlett, C. R., West, J. R. Differential neuronal loss following early postnatal alcohol exposure. Teratology. 40 (2), 113-126 (1989).
- Tran, T. D., Jackson, H. J., Horn, K. H., Goodlett, C. R. Vitamin E does not protect against neonatal ethanol-induced cerebellar damage or deficits in eyeblink classical conditioning in rats. Alcohol Clin Exp Res. 29 (1), 117-129 (2005).
- Goodlett, C. R., Peterson, S. D., Lundahl, K. R., Pearlman, A. D. Binge-like alcohol exposure of neonatal rats via intragastric intubation induces both Purkinje cell loss and cortical astrogliosis. Alcohol Clin Exp Res. 21 (6), 1010-1017 (1997).
- Green, J. T., Tran, T. D., Steinmetz, J. E., Goodlett, C. R. Neonatal ethanol produces cerebellar deep nuclear cell loss and correlated disruption of eyeblink conditioning in adult rats. Brain Res. 956, 302-311 (2002).
- Cronise, K., Marino, M. D., Tran, T. D., Kelly, S. J. Critical periods for the effects of alcohol exposure on learning in rats. Behav Neurosci. 115 (1), 138-145 (2001).
- Tran, T. D., Cronise, K., Marino, M. D., Jenkins, W. J., Kelly, S. J. Critical periods for the effects of alcohol exposure on brain weight, body weight, activity and investigation. Behav Brain Res. 116 (1), 99-110 (2000).
- Steinmetz, J. E. Brain substrates of classical eyeblink conditioning: A highly localized but also distributed system. Behav Brain Res. 110 (1-2), 13-24 (2000).
- Thompson, R. F. The neurobiology of learning and memory. Science. 233 (4767), 941-947 (1986).
- Ivkovich, D., Eckerman, C. O., Krasnegor, N. A., Stanton, M. E. Eyeblink classical conditioning: Vol. 1 Applications in humans. Woodruff-Pak, D. S., Steinmetz, J. E. , Kluwer Academic Publishers. 119-142 (2000).
- Woodruff-Pak, D. S., Steinmetz, J. E. Eyeblink classical conditioning: Volume I - Applications in humans. , Kluwer Academic Publishers. (2000).
- Woodruff-Pak, D. S., Steinmetz, J. E. Eyeblink classical conditioning: Volume II - Animal models. , Kluwer Academic Publishers. (2000).
- Kishimoto, Y., et al. Implicit Memory in Monkeys: Development of a Delay Eyeblink Conditioning System with Parallel Electromyographic and High-Speed Video Measurements. PLoS One. 10 (6), e0129828(2015).
- Chen, L., Bao, S., Lockard, J. M., Kim, J. K., Thompson, R. F. Impaired classical eyeblink conditioning in cerebellar-lesioned and Purkinje cell degeneration (pcd) mutant mice. J Neurosci. 16 (8), 2829-2838 (1996).
- Freeman, J. H. Jr, Carter, C. S., Stanton, M. E. Early cerebellar lesions impair eyeblink conditioning in developing rats: Differential effects of unilateral lesions on postnatal day 10 or 20. Behav Neurosci. 109 (5), 893-902 (1995).
- Gerwig, M., et al. Trace eyeblink conditioning in patients with cerebellar degeneration: Comparison of short and long trace intervals. Exp Brain Res. 187 (1), 85-96 (2008).
- LaBar, K. S., Disterhoft, J. F. Conditioning, awareness, and the hippocampus. Hippocampus. 8 (6), 620-626 (1998).
- McCormick, D. A., Steinmetz, J. E., Thompson, R. F. Lesions of the inferior olivary complex cause extinction of the classically conditioned eyeblink response. Brain Res. 359 (1-2), 120-130 (1985).
- Clark, R. E., Zola, S. Trace eyeblink classical conditioning in the monkey: a nonsurgical method and behavioral analysis. Behav Neurosci. 112 (5), 1062-1068 (1998).
- Anderson, B. J., Steinmetz, J. E. Cerebellar and brainstem circuits involved in classical eyeblink conditioning. Rev Neurosci. 5 (3), 251-273 (1994).
- Thompson, R. F., Krupa, D. J. Organization of memory traces in the mammalian brain. Annu Rev Neurosci. 17, 519-549 (1994).
- Miller, M. J., et al. fMRI of the conscious rabbit during unilateral classical eyeblink conditioning reveals bilateral cerebellar activation. J Neurosci. 23 (37), 11753-11758 (2003).
- Geinisman, Y., et al. Remodeling of hippocampal synapses after hippocampus-dependent associative learning. J Comp Neurol. 417 (1), 49-59 (2000).
- Ivkovich, D., Stanton, M. E. Effects of early hippocampal lesions on trace, delay, and long-delay eyeblink conditioning in developing rats. Neurobiol Learn Mem. 76 (3), 426-446 (2001).
- Moyer, J. R. Jr, Deyo, R. A., Disterhoft, J. F. Hippocampectomy disrupts trace eye-blink conditioning in rabbits. Behav Neurosci. 104 (2), 243-252 (1990).
- Solomon, P. R., Vander Schaaf, E. R., Thompson, R. F., Weisz, D. J. Hippocampus and trace conditioning of the rabbit's classically conditioned nictitating membrane response. Behav Neurosci. 100 (5), 729-744 (1986).
- Kronforst-Collins, M. A., Disterhoft, J. F. Lesions of the caudal area of rabbit medial prefrontal cortex impair trace eyeblink conditioning. Neurobiol Learn Mem. 69 (2), 147-162 (1998).
- Weible, A. P., McEchron, M. D., Disterhoft, J. F. Cortical involvement in acquisition and extinction of trace eyeblink conditioning. Behav Neurosci. 114 (6), 1058-1067 (2000).
- Thomas, J. D., Tran, T. D. Choline supplementation mitigates trace, but not delay, eyeblink conditioning deficits in rats exposed to alcohol during development. Hippocampus. 22 (3), 619-630 (2012).
- West, J. R., Hamre, K. M., Pierce, D. R. Delay in brain growth induced by alcohol in artificially reared rat pups. Alcohol. 1 (3), 213-222 (1984).
- Geiger, B. M., Frank, L. E., Caldera-Siu, A. D., Pothos, E. N. Survivable stereotaxic surgery in rodents. J Vis Exp. (20), e880(2008).
- Christian, K. M., Thompson, R. F. Neural substrates of eyeblink conditioning: acquisition and retention. Learn Mem. 10 (6), 427-455 (2003).
- Kishimoto, Y., Nakazawa, K., Tonegawa, S., Kirino, Y., Kano, M. Hippocampal CA3 NMDA receptors are crucial for adaptive timing of trace eyeblink conditioned response. J Neurosci. 26 (5), 1562-1570 (2006).
- Shors, T. J., et al. Neurogenesis in the adult is involved in the formation of trace memories. Nature. 410 (6826), 372-376 (2001).
- Tran, T. D., Stanton, M. E., Goodlett, C. R. Binge-like ethanol exposure during the early postnatal period impairs eyeblink conditioning of short and long CS-US intervals in rats. Dev Psychobiol. 49 (6), 589-605 (2007).
- Mizumori, S. J., Yeshenko, O., Gill, K. M., Davis, D. M. Parallel processing across neural systems: Implications for a multiple memory system hypothesis. Neurobiol Learn Mem. 82 (3), 278-298 (2004).
- Siegel, J. J., et al. Trace Eyeblink Conditioning in Mice Is Dependent upon the Dorsal Medial Prefrontal Cortex, Cerebellum, and Amygdala: Behavioral Characterization and Functional Circuitry(1,2,3). eNeuro. 2 (4), (2015).
- Murawski, N. J., Jablonski, S. A., Brown, K. L., Stanton, M. E. Effects of neonatal alcohol dose and exposure window on long delay and trace eyeblink conditioning in juvenile rats. Behav Brain Res. 236 (1), 307-318 (2013).
- Lindquist, D. H. Hippocampal-dependent Pavlovian conditioning in adult rats exposed to binge-like doses of ethanol as neonates. Behav Brain Res. 242, 191-199 (2013).
- Ivarsson, M., Svensson, P. Conditioned eyeblink response consists of two distinct components. J Neurophysiol. 83 (2), 796-807 (2000).
- Woodruff-Pak, D. S., Lavond, D. G., Thompson, R. F. Trace conditioning: abolished by cerebellar nuclear lesions but not lateral cerebellar cortex aspirations. Brain Res. 348 (2), 249-260 (1985).
- Takehara-Nishiuchi, K. The Anatomy and Physiology of Eyeblink Classical Conditioning. Curr Top Behav Neurosci. , (2016).
- Mattson, S. N., Schoenfeld, A. M., Riley, E. P. Teratogenic effects of alcohol on brain and behavior. Alcohol Res Health. 25 (3), 185-191 (2001).
- Goodfellow, M. J., Abdulla, K. A., Lindquist, D. H. Neonatal Ethanol Exposure Impairs Trace Fear Conditioning and Alters NMDA Receptor Subunit Expression in Adult Male and Female Rats. Alcohol Clin Exp Res. 40 (2), 309-318 (2016).
- Beylin, A. V., et al. The role of the hippocampus in trace conditioning: Temporal discontinuity or task difficulty? Neurobiol Learn Mem. 76 (3), 447-461 (2001).
- Port, R. L., Romano, A. G., Steinmetz, J. E., Mikhail, A. A., Patterson, M. M. Retention and acquisition of classical trace conditioned responses by rabbits with hippocampal lesions. Behav Neurosci. 100 (5), 745-752 (1986).
- Weiss, C., Bouwmeester, H., Power, J. M., Disterhoft, J. F. Hippocampal lesions prevent trace eyeblink conditioning in the freely moving rat. Behav Brain Res. 99 (2), 123-132 (1999).
- Brown, S. M., et al. Eyeblink conditioning deficits indicate timing and cerebellar abnormalities in schizophrenia. Brain Cogn. 58 (1), 94-108 (2005).
- Sears, L. L., Steinmetz, J. E. Effects of haloperidol on sensory processing in the hippocampus during classical eyeblink conditioning. Psychopharmacology. 130 (3), 254-260 (1997).
- Kronforst-Collins, M. A., Moriearty, P. L., Schmidt, B., Disterhoft, J. F. Metrifonate improves associative learning and retention in aging rabbits. Behav Neurosci. 111 (5), 1031-1040 (1997).
- Woodruff-Pak, D. S., Finkbiner, R. G., Sasse, D. K. Eyeblink conditioning discriminates Alzheimer's patients from non-demented aged. Neuroreport. 1 (1), 45-48 (1990).
- Oristaglio, J., Romano, A. G., Harvey, J. A. Amphetamine influences conditioned response timing and laterality of anterior cingulate cortex activity during rabbit delay eyeblink conditioning. Neurobiol Learn Mem. 92 (1), 1-18 (2009).
- Scavio, M. J., Clift, P. S., Wills, J. C. Posttraining effects of amphetamine, chlorpromazine, ketamine, and scopolamine on the acquisition and extinction of the rabbit's conditioned nictitating membrane response. Behav Neurosci. 106 (6), 900-908 (1992).
- Fortier, C. B., et al. Delay discrimination and reversal eyeblink classical conditioning in abstinent chronic alcoholics. Neuropsychology. 22 (2), 196-208 (2008).
Przedruki i uprawnienia
