Różnicowanie komórek jest regulowane przez wiele czynników mikrośrodowiskowych, w tym zarówno skład matrycy, jak i właściwości materiału substratu. Opisujemy tutaj technikę wykorzystującą mikromacierze komórkowe w połączeniu z mikroskopią sił trakcyjnych do oceny zarówno różnicowania komórek, jak i biomechanicznych interakcji komórka-substrat w funkcji kontekstu mikrośrodowiskowego.
Artykuł metodologiczny
Wysokowydajna platforma mikromacierzy komórkowych do korelacyjnej analizy różnicowania komórek i sił trakcyjnych
W tym artykule
Podsumowanie
Streszczenie
Mikrofabrykowane mikromacierze komórkowe, które składają się z drukowanych kontaktowo kombinacji biomolekuł na elastycznej powierzchni hydrożelu, zapewniają ściśle kontrolowany, wysokowydajny system inżynieryjny do pomiaru wpływu złożonych sygnałów biochemicznych na różnicowanie komórek. Niedawne wysiłki z wykorzystaniem mikromacierzy komórkowych wykazały ich przydatność w badaniach kombinatorycznych, w których równolegle prezentowanych jest wiele czynników mikrośrodowiskowych. Wysiłki te koncentrowały się jednak przede wszystkim na badaniu wpływu sygnałów biochemicznych na odpowiedzi komórek. W tym miejscu prezentujemy platformę mikromacierzy komórkowej o regulowanych właściwościach materiału do oceny zarówno różnicowania komórek za pomocą immunofluorescencji, jak i biomechanicznych interakcji komórka-substrat za pomocą mikroskopii sił trakcyjnych. W tym celu opracowaliśmy dwa różne formaty wykorzystujące hydrożele poliakrylamidowe o różnym module Younga, wytwarzane na szkiełkach mikroskopowych lub szalkach Petriego ze szklanym dnem. Zapewniamy najlepsze praktyki i rozwiązywanie problemów związanych z wytwarzaniem mikromacierzy na tych podłożach hydrożelowych, późniejszą hodowlą komórkową na mikromacierzach i pozyskiwaniem danych. Platforma ta doskonale nadaje się do wykorzystania w badaniach procesów biologicznych, w których zarówno sygnały biochemiczne (np. skład macierzy zewnątrzkomórkowej), jak i biofizyczne (np. sztywność substratu) mogą odgrywać znaczące, przecinające się role.
Wprowadzenie
Interakcje między komórkami a otaczającymi je czynnikami mikrośrodowiskowymi pośredniczą w wielu różnych procesach biologicznych podczas rozwoju, homeostazy i patogenezy chorób1,2,3,4. Te interakcje mikrośrodowiskowe obejmują dostarczanie rozpuszczalnych czynników do komórek, wiązanie komórka-macierz oraz interakcje komórka-komórka poprzez wiązanie ligand-receptor. Oprócz powyższych rozważań biochemicznych, parametry biofizyczne, takie jak właściwości mechaniczne substratu (np. moduł Younga, porowatość) i kształt komórki oraz związana z tym mechanotransdukcja w dalszej części łańcucha dostaw, coraz częściej zyskują uznanie jako kluczowe mediatory różnicowania komórek5,6,7,8,9,10. Sygnały wynikające z tych interakcji mikrośrodowiskowych służą jako dane wejściowe do sieci genów i szlaków sygnałowych. Co więcej, te wewnętrzne komponenty komórki dostarczają również informacje zwrotne do mikrośrodowiska za pośrednictwem wydzielanych czynników i enzymów rozkładających matrycę, kończąc złożoną pętlę koregulacyjną między programami genetycznymi wewnętrznymi komórki a zewnętrznymi czynnikami mikrośrodowiskowymi komórki5,11,12.
Wykorzystanie systemów inżynieryjnych do kontrolowanej prezentacji czynników mikrośrodowiskowych okazało się przydatne w wielu różnych kontekstach13,14,15. W szczególności systemy mikrofabrykowane ułatwiły precyzyjne przestrzenne wzorcowanie białek i komórek, a także wysoce równoległą analizę poprzez miniaturyzację13,16,17,18,19,20,21,22. Mikromacierze komórkowe reprezentują jeden z takich mikrofabrykowanych systemów, w którym kombinacje biomolekuł są drukowane kontaktowo na elastycznym podłożu z hydrożelu poliakrylamidowego23,24,25. Włączenie składników adhezyjnych komórek (a mianowicie białek macierzy) umożliwia trwałą adhezję komórek i hodowlę na mikromacierzach, po której często następuje dalsza analiza za pomocą immunocytochemii i reporterów fluorescencyjnych. Mikromacierze komórkowe zostały produktywnie ukierunkowane na lepsze zrozumienie fenotypu komórek wątroby23,26, różnicowanie prekursorów neuronalnych27, decyzje o losie przodka sutka28, utrzymanie/różnicowanie embrionalnych komórek macierzystych23,29,30, przerzuty raka płuc31, oraz odpowiedź terapeutyczna w czerniaku32. Niedawno zademonstrowaliśmy zastosowanie mikromacierzy komórkowych do definiowania roli składu białek macierzy zewnątrzkomórkowej (ECM) w specyfikacji endodermy33, różnicowaniu progenitorów wątroby34,35 i odpowiedzi na lek na komórki nowotworu płuc36. W tych pracach skupiliśmy się na rozszerzeniu możliwości kombinatorycznych platformy macierzy i zbadaniu przecięć sygnalizacji wewnętrznej komórki ze składem macierzy zewnątrzkomórkowej i biomechaniką. Ponadto zaimplementowaliśmy odczyty biofizyczne w tej platformie tablicowej, aby zapewnić możliwość ilościowego scharakteryzowania roli kurczliwości komórek w procesach różnicowania35. W tym celu zintegrowaliśmy mikroskopię sił trakcyjnych (TFM) z mikromacierzami komórek, aby umożliwić wysokoprzepustową ocenę trakcji generowanej przez komórki. TFM jest szeroko stosowaną metodą pomiaru sił trakcyjnych generowanych przez komórki i dostarczyła istotnych informacji na temat koordynacji funkcji na poziomie pojedynczej komórki i tkanki ze składem i biomechaniką lokalnego mikrośrodowiska37,38,39,40. W ten sposób połączenie TFM z mikromacierzami komórkowymi zapewnia wysokowydajny system do pomiaru kluczowych, fizjologicznie istotnych parametrów biofizycznych.
Opisana tutaj platforma mikromacierzy komórkowych składa się z czterech sekcji: produkcja substratów poliakrylamidowych, produkcja tablic, hodowla komórkowa i odczyt testów oraz analiza danych. Rysunek 1 przedstawia schematyczne podsumowanie pierwszych trzech sekcji eksperymentalnych; patrz rysunek 2 w celu schematycznego podsumowania ostatniej sekcji, z naciskiem na analizę danych immunofluorescencyjnych. W celu dostosowania platformy mikromacierzy komórkowej do badań biomechanicznych interakcji komórka-substrat, użyliśmy substratów poliakrylamidowych o przestrajalnym module Younga, ale podobnej porowatości, według Wen i wsp.41. Aby umożliwić TFM pomiary sił wywieranych przez komórki na ich podłoże, zaimplementowaliśmy format szklanej płytki Petriego, oprócz grubych szkiełek mikroskopowych często używanych przez inne grupy. W ten sposób ta platforma mikromacierzy komórkowej jest zdolna do równoległych pomiarów różnicowania komórek za pomocą immunofluorescencji na szkiełkach mikroskopowych i sił generowanych przez komórki za pomocą TFM na oddzielnych naczyniach ze szklanym dnem. Zastosowaliśmy również kilka ulepszeń w podejściu analitycznym powszechnie stosowanym w przypadku mikromacierzy komórkowych. W szczególności, zamiast parametrycznej punktacji Z ogólnej intensywności wyspy, mierzymy intensywność pojedynczej komórki i stosujemy normalizację kwantylową w celu uwzględnienia rozkładów nienormalnych i dokładniejszego opisania zachowania komórek. Uważamy, że te ulepszenia są szczególnie użyteczne w badaniach procesów biologicznych, w których zarówno sygnały biochemiczne, jak i biofizyczne odgrywają znaczące, przecinające się role. Co więcej, nasze ulepszenia analityczne umożliwiają zastosowanie mikromacierzy komórkowych do badań nad szeregiem funkcji komórkowych, w przypadku których zachowania na poziomie pojedynczej komórki i populacji są rozbieżne.
Protokół
1. Produkcja podłoży poliakrylamidowych
- Czyste szklane podłoża – standardowe szkiełka mikroskopowe do immunofluorescencji punktu końcowego lub płytki Petriego ze szklanym dnem o średnicy 35 mm do TFM – w celu zapewnienia optymalnego wytwarzania hydrożelu poliakrylamidowego i integralności podczas hodowli komórkowej. Alternatywnie użyj wstępnie oczyszczonych podłoży szklanych.
- Podłoża szklane zanurzyć w 0,25% v/v Triton X-100 w wodzie destylowanej (dH2O). Umieść podłoża na wytrząsarce orbitalnej na 30 minut.
- Usunąć roztwór Triton X-100 i przepłukać podłoża 5 razydH2O. Pozostawić podłoża zanurzone w końcowym płukaniu i umieścić na wytrząsarce orbitalnej na 30 minut.
- Usunąć dH2O i zanurzyć podłoża w acetonie. Umieść podłoża na wytrząsarce orbitalnej na 30 minut.
- Usuń aceton i zanurz podłoża w metanolu. Umieść podłoża na wytrząsarce orbitalnej na 30 minut.
- Usunąć metanol i spłukać podłoża 5 razy za pomocądH2O. Zanurzyć podłoża w 0,05 N NaOH i umieścić na wytrząsarce orbitalnej na 1 h.
UWAGA: NaOH jest silnie i może powodować poważne oparzenia skóry i uszkodzenia oczu. Nosić rękawice ochronne, odzież i okulary ochronne. - Usunąć roztwór NaOH i spłukać podłoża 5 razydH2O. Za pomocą przefiltrowanego sprężonego powietrza wysuszyć podłoża i piec w temperaturze 110 °C na gorącej płycie do wyschnięcia (5 – 15 min). Oczyszczone podłoża można przechowywać w temperaturze pokojowej przez czas nieokreślony.
- Silanizować czyste podłoża szklane, aby zapewnić przyczepność hydrożelu poliakrylamidowego.
- Zanurz czyste szklane podłoża w świeżo przygotowanym 2% v/v 3-(trimetoksysililo)propylometakrylan (3-TPM) w etanolu. Umieść podłoża na wytrząsarce orbitalnej na 30 min.
UWAGA: 3-TPM jest cieczą palną. Przechowywać z dala od źródeł ciepła, iskier, otwartego ognia i gorących powierzchni i używać wyłącznie w dygestoriach chemicznych. - Usuń roztwór 3-TPM i zanurz podłoża w etanolu. Umieść podłoża na wytrząsarce orbitalnej na 5 minut.
- Za pomocą przefiltrowanego sprężonego powietrza wysuszyć podłoża i piec w temperaturze 110 °C na gorącej płycie, aż wyschnie (5 – 15 min). Podłoża silanizowane można przechowywać w temperaturze pokojowej do 1 miesiąca.
- Zanurz czyste szklane podłoża w świeżo przygotowanym 2% v/v 3-(trimetoksysililo)propylometakrylan (3-TPM) w etanolu. Umieść podłoża na wytrząsarce orbitalnej na 30 min.
- Opcja 1: Wytwarzanie hydrożeli poliakrylamidowych na silanizowanych szkiełkach mikroskopowych w celu uzyskania immunofluorescencji w punkcie końcowym.
- Przygotować roztwór prepolimerowy w dH2O o pożądanym stosunku procentowym akryloamid / bisakryloamid (w/v) w celu wytworzenia substratów o modułach Younga wynoszących 4 kPa (4% akrylamid, 0,4% bisakryloamidu), 13 kPa (6% akrylamidu, 0,45% bisakrylamidu) lub 30 kPa (8% akrylamidu, 0,55% bisakrylamidu) i podobnej porowatości, według Wen i wsp.41. Roztwór wirować aż do uzyskania czystości i przefiltrować za pomocą strzykawki 0,2 μm. Roztwory prepolimerowe można przechowywać w temperaturze 4 °C przez 3 miesiące.
UWAGA: Narażenie na akryloamid lub bisakryloamid może powodować ostrą toksyczność, neurotoksyczność i podrażnienie. Nosić rękawice ochronne, odzież i okulary ochronne. - Przygotować roztwór fotoinicjatora o stężeniu 20% w/v Irgacure 2959 w metanolu. Ten roztwór fotoinicjatora nie może być przechowywany i musi być za każdym razem przygotowywany na świeżo.
- Wymieszaj roztwory prepolimeru i fotoinicjatora w stosunku 9:1 (prepolimer:fotoinicjator). Opcjonalnie odgazowuje się za pomocą komory próżniowej przez 15 minut w celu usunięcia pęcherzyków.
- Umieść silanizowane szkiełka w szklanej tacce do suszenia i odpipetuj 100 μl roztworu prepolimeru: fotoinicjatora 9:1 na każde szkiełko. Delikatnie przykryj każde szkiełko szkiełkiem nakrywkowym o średnicy 22 × 60 mm, unikając tworzenia się pęcherzyków. Należy pamiętać, że szkiełko nakrywkowe zapobiega hamowaniu reakcji polimeryzacji przez tlen.
- Umieść tackę do suszenia w sieciowniku UV i naświetlaj szkiełka pod wpływem promieniowania UV A 365 nm przez 10 minut (4 W/m 2). W razie potrzeby zoptymalizuj czas polimeryzacji. Dłuższe ekspozycje mogą wiązać się z trudnościami w usunięciu szkiełka nakrywkowego z powodu nadmiernej polimeryzacji. Krótsze ekspozycje grozi niedostateczną polimeryzacją i niską stabilnością hydrożelu.
- Zanurz hydrożele w dH2O na 5 minut. Szkiełka nakrywkowe usunąć maszynką do golenia, uważając, aby nie uszkodzić spolimeryzowanych hydrożeli.
- Pozostawić hydrożele wdH2O w temperaturze pokojowej na 1 – 3 d, zmieniając dH2O codziennie. Odwodnić hydrożele w temperaturze 50 °C na gorącej płycie do wyschnięcia (15 – 30 min) i przechowywać w temperaturze pokojowej do 3 miesięcy.
- Przygotować roztwór prepolimerowy w dH2O o pożądanym stosunku procentowym akryloamid / bisakryloamid (w/v) w celu wytworzenia substratów o modułach Younga wynoszących 4 kPa (4% akrylamid, 0,4% bisakryloamidu), 13 kPa (6% akrylamidu, 0,45% bisakrylamidu) lub 30 kPa (8% akrylamidu, 0,55% bisakrylamidu) i podobnej porowatości, według Wen i wsp.41. Roztwór wirować aż do uzyskania czystości i przefiltrować za pomocą strzykawki 0,2 μm. Roztwory prepolimerowe można przechowywać w temperaturze 4 °C przez 3 miesiące.
- Opcja 2: Wytwarzanie fluorescencyjnych hydrożeli poliakrylamidowych zawierających kulki na silanizowanych 35-milimetrowych szalkach Petriego ze szklanym dnem w celu oceny na żywo interakcji komórka-substrat przy użyciu TFM.
- Sonikować roztwór podstawowy 1 μm kulek fluorescencyjnych przez 15 minut w celu rozproszenia agregatów.
- Przygotować roztwór prepolimerowy w dH2O o pożądanym stosunku procentowym akryloamid / bisakryloamid (w/v) w celu wytworzenia substratów o modułach Younga wynoszących 4 kPa (4% akrylamid, 0,4% bisakryloamidu), 13 kPa (6% akrylamidu, 0,45% bisakrylamidu) lub 30 kPa (8% akrylamidu, 0,55% bisakrylamidu) i podobnej porowatości, według Wen i wsp.41. Roztwór wirować aż do uzyskania czystości i przefiltrować za pomocą strzykawki 0,2 μm. Roztwory prepolimerowe można przechowywać w temperaturze 4 °C przez 3 miesiące.
UWAGA: Narażenie na akryloamid lub bisakryloamid może powodować ostrą toksyczność, neurotoksyczność i podrażnienie. Nosić rękawice ochronne, odzież i okulary ochronne. - Dodaj kulki fluorescencyjne do roztworu prepolimeru o końcowym stężeniu 0,2% v/v i zwiruj do wymieszania.
- Przygotować roztwór fotoinicjatora o stężeniu 20% w/v Irgacure 2959 w metanolu. Ten roztwór fotoinicjatora nie może być przechowywany i musi być za każdym razem przygotowywany na świeżo.
- Wymieszaj roztwory prepolimeru/kulki i fotoinicjatora w stosunku 9:1 (prepolimer/koralik:fotoinicjator). Opcjonalnie odgazowuje się za pomocą komory próżniowej przez 15 minut w celu usunięcia pęcherzyków.
- Umieść silanizowane płytki Petriego o średnicy 35 mm ze szklanym dnem w szklanej tacce do suszenia i odpipetuj 20 μl roztworu prepolimeru/kulki: fotoinicjatora w proporcji 9:1 na środek każdej szalki. Delikatnie przykryj każde szkiełko okrągłym szkiełkiem nakrywkowym o średnicy 12 mm, unikając tworzenia się pęcherzyków. Należy pamiętać, że szkiełko nakrywkowe zapobiega hamowaniu reakcji polimeryzacji przez tlen.
- Aby rozprowadzić kulki fluorescencyjne na powierzchni hydrożelu, odwróć naczynia i pozostaw w temperaturze pokojowej na 20 minut, według Knoll i wsp.42.
- Będąc nadal odwróconym, naświetlaj naczynia promieniowaniem UV A 365 nm przez 10 minut (4 W/m2). W razie potrzeby zoptymalizuj czas polimeryzacji. Dłuższe ekspozycje mogą wiązać się z trudnościami w usunięciu szkiełka nakrywkowego z powodu nadmiernej polimeryzacji. Krótsze ekspozycje grozi niedostateczną polimeryzacją i niską stabilnością hydrożelu.
- Zanurzyć hydrożele w 0,1 M buforze kwasu 4-(2-hydroksyetylo)-1-piperazynoetanosulfonowego (HEPES) i pozostawić na noc w temperaturze pokojowej w ciemności. Ostrożnie usuń szkiełka nakrywkowe maszynką do golenia, uważając, aby nie uszkodzić spolimeryzowanych hydrożeli.
- Odwodnić hydrożele w temperaturze 50 °C na gorącej płycie, aż wyschną (15 – 30 min). Hydrożele można przechowywać w temperaturze pokojowej w ciemności przez 3 miesiące.
2. Produkcja tablic
- Przygotuj do drukowania biomolekuł. Użyj bufora drukowania odpowiedniego dla interesujących nas biomolekuł. Bufor drukujący czynnik wzrostu (GF) jest szeroko odpowiedni dla innych klas cząsteczek, takich jak ligandy komórka-komórka.
- Aby przygotować 2× bufor do drukowania białek ECM, dodaj 164 mg octanu sodu i 37,2 mg kwasu etylenodiaminotetraoctowego (EDTA) do 6 ml dH2O. Zwirować i inkubować w temperaturze 37 °C do całkowitego rozpuszczenia. Po rozpuszczeniu dodać 50 μl podgrzanego Triton X-100 i 4 ml glicerolu. Wirować i ponownie inkubować w temperaturze 37 °C do soludyzacji. Dodać 40 – 80 μl lodowatego kwasu octowego, miareczkując w celu dostosowania pH do 4,8. 2× Bufor do drukowania białek ECM może być przechowywany w temperaturze 4 °C przez 1 miesiąc.
UWAGA: Kwas octowy jest łatwopalny i. Nosić rękawice ochronne, odzież i okulary ochronne. - Aby przygotować bufor drukujący 2× GF, dodaj 105,5 mg octanu sodu i 37,2 mg EDTA do 6 ml soli fizjologicznej buforowanej fosforanami (PBS). Wirować i inkubować w temperaturze 37 °C do całkowitego rozpuszczenia. Po rozpuszczeniu dodać 100 mg 3-[(3-cholamidopropylo)dimetyloamonio]-1-propanosulfonianu (CHAPS) i 4 ml glicerolu. 2× Bufor drukujący białko GF może być przechowywany w temperaturze 4 °C przez 1 miesiąc.
- Aby przygotować 2× bufor do drukowania białek ECM, dodaj 164 mg octanu sodu i 37,2 mg kwasu etylenodiaminotetraoctowego (EDTA) do 6 ml dH2O. Zwirować i inkubować w temperaturze 37 °C do całkowitego rozpuszczenia. Po rozpuszczeniu dodać 50 μl podgrzanego Triton X-100 i 4 ml glicerolu. Wirować i ponownie inkubować w temperaturze 37 °C do soludyzacji. Dodać 40 – 80 μl lodowatego kwasu octowego, miareczkując w celu dostosowania pH do 4,8. 2× Bufor do drukowania białek ECM może być przechowywany w temperaturze 4 °C przez 1 miesiąc.
- Przygotuj płytę źródłową.
- W 384-dołkowej mikropłytce z dnem w kształcie litery V połączyć równe objętości 2× buforu drukującego z każdym roztworem biomolekuły o podwójnym stężeniu docelowym.
UWAGA: Odpowiednie stężenie docelowe dla większości powszechnych białek ECM wynosi 250 μg/ml, podczas gdy stężenia docelowe dla innych typów czynników macierzowych różnią się w zależności od retencji w hydrożelu i funkcji biologicznej. Całkowita objętość w każdym studzience może wynosić zaledwie 5 μl i nie musi przekraczać 15 μl. Oprócz interesujących nas kombinacji biomolekuł, należy uwzględnić matrycowy marker fluorescencyjny, aby ułatwić dalszą analizę obrazu. Stosować dekstran sprzężony z rodaminą (2,5 mg/ml). - Dokładnie wymieszaj każdą z nich przez pipetowanie, uważając, aby nie powstały pęcherzyki. Odwirować mikropłytkę źródłową przez 1 minutę w temperaturze 100 × g. Mikromacierze należy wytworzyć przy użyciu płytek źródłowych przygotowanych tego samego dnia i przechowywanych w temperaturze 4 °C do czasu wytworzenia mikromacierzy.
- W 384-dołkowej mikropłytce z dnem w kształcie litery V połączyć równe objętości 2× buforu drukującego z każdym roztworem biomolekuły o podwójnym stężeniu docelowym.
- Wyczyść piny zgodnie z instrukcjami producenta przed każdym uruchomieniem produkcji mikromacierzy. Załaduj czyste piny bezpośrednio do głowicy drukującej mikromacierzy.
- Przygotuj mikromacierz i zaprogramuj ją za pomocą oprogramowania producenta. Chociaż poniższe kroki są częściowo specyficzne dla konkretnego mikromacierzy użytego tutaj, działanie większości mikromacierzy jest podobne.
- Włącz nawilżacz, ustaw nastawę na 65% RH (bez kondensacji) i poczekaj, aż reometr dopasuje się do wartości zadanej. Umieść płytę źródłową w odpowiednim adapterze.
- Odwodnić podłoża hydrożelowe w temperaturze 50 °C przez 15 minut i umieścić w odpowiednim adapterze. Mikromatryca posiada adaptery zarówno do szkiełek mikroskopowych, jak i mikropłytek. W przypadku układania szalek Petriego o średnicy 35 mm ze szklanym dnem, załaduj szalki do 6-dołkowej mikropłytki i umieść mikropłytkę w adapterze do mikropłytek na tablicy.
- Dostosuj parametry programu tak, aby dokładnie odzwierciedlały układ płytki źródłowej, konstrukcję matrycy i pożądany format (np. szkiełko mikroskopowe lub mikropłytka zawierająca szalki Petriego o średnicy 35 mm). Uwzględnij etapy mycia przy użyciu zarówno wody, jak i sulfotlenku dimetylu (DMSO) między każdym stanem, aby zapobiec przenoszeniu i zanieczyszczeniu krzyżowemu.
- Rozpocznij produkcję matrycy, sprawdzając nie rzadziej niż raz na godzinę, czy wilgotność nie spadła poniżej 65% RH (bez kondensacji) i czy styki nie są zatkane. Jeśli wilgotność nieoczekiwanie spadła, przerwij ustawianie w układzie w celu napełnienia nawilżacza i usunięcia powiązanych rurek kondensacji. Jeśli kołki są zatkane, przerwij ustawianie w szyku, aby wyczyścić kołki lub w inny sposób wymień je na wstępnie oczyszczone kołki. Należy pamiętać, że możliwe jest sekwencyjne rozmieszczenie wielu typów biomolekuł na tych samych podłożach, pod warunkiem wystarczającego czasu schnięcia (tj. 4 godzin do nocy).
- Po zakończeniu programu umieść wyprodukowane matryce w pudełku na szkiełka lub mikropłytce pokrytej folią aluminiową w temperaturze pokojowej i 65% wilgotności względnej (bez kondensacji) przez noc. Należy zauważyć, że może być konieczna ocena jakości i retencji macierzy przy użyciu ogólnych barwień białkowych lub immunofluorescencji; zobacz Brafman et al., aby uzyskać więcej informacji25.
3. Odczyt hodowli komórkowej i testu
- Następnego dnia po wytworzeniu umieścić ułożone podłoża w 4-komorowych szalkach (szkiełka mikroskopowe) lub 6-dołkowych mikropłytkach (szalki Petriego) i zanurzyć w 1% v/v penicyliny/streptomycynie w PBS; użyć 4 ml na szkiełka podstawowe i 3 ml na szalki. Wystawić na działanie promieniowania UV C przez 30 min. Zamiana roztworu penicyliny/streptomycyny na pożywkę do hodowli komórkowych.
- Zbieraj i policz komórki. Zasiewać na matryce w temperaturze 500 × 103 - 2 × 10⁶ komórek/matrycę w ilości 4 ml na szkiełko mikroskopowe i 3 ml na szalkę Petriego o średnicy 35 mm. Inkubować kultury matrycowe w temperaturze 37 °C i 5% CO2 przez 2 – 24 godziny lub do momentu powstania dobrze zaludnionych wysp komórkowych. Dostosuj zarówno gęstość, jak i czas siewu zgodnie z potrzebami dla komórek i konkretnego zastosowania. Niedostateczne podsiewanie (tj. niska gęstość lub czas wysiewu) może skutkować słabą populacją macierzy i wypaczonymi wynikami biologicznymi. Nadmierne obsiewanie (tj. duże zagęszczenie lub czas wysiewu) może skutkować zmniejszeniem integralności macierzy z powodu oderwania wyspy.
- Po umożliwieniu utworzenia wysp komórkowych, należy dwukrotnie przemyć hodowle matrycowe wstępnie podgrzanymi pożywkami do hodowli komórkowych; ponownie użyć 4 ml na szkiełka podstawowe i 3 ml na szalki. Opcjonalnie należy dodać odpowiednie kontrole i zabiegi (np. inhibitory małocząsteczkowe, czynniki wzrostu itp.) będące przedmiotem zainteresowania systemu biologicznego. Zmieniaj media w matrycach co 1 – 2 dni, aby utrzymać stężenie wszelkich zabiegów. Oceń ekspresję markera komórkowego i funkcję komórki za pomocą immunofluorescencji lub interakcji komórka-substrat za pomocą TFM w ciągu 1 – 5 dni od zainicjowania hodowli matrycowych - patrz Opcja 1 i Opcja 2 poniżej.
- Opcja 1: Wykonaj immunofluorescencję w punkcie końcowym. Należy pamiętać, że immunofluorescencja niektórych białek może wymagać bardziej rygorystycznej permeabilizacji przy użyciu metanolu, etanolu lub HCl. Ze względu na potencjalne uszkodzenie macierzy, oceń i zoptymalizuj każdy protokół permeabilizacji przed użyciem w eksperymentach na większą skalę.
- Odessać pożywki do hodowli komórkowych ze szkiełek matrycowych w 4-komorowych naczyniach i dodać 4 ml/szkiełko świeżo przygotowanego 4% v/v paraformaldehydu (PFA) do PBS. Inkubować przez 15 minut w temperaturze pokojowej.
UWAGA: Narażenie na PFA może powodować ostrą toksyczność, a także może podrażniać lub korodować skórę w kontakcie. Nosić rękawice ochronne, odzież i okulary ochronne i używać tylko w okapie oparów chemicznych. - Odessać roztwór PFA i przemyć każde szkiełko 3 razy 4 ml PBS. W tym momencie szkiełka stałe można przechowywać w temperaturze 4 °C przez 1 tydzień. Zaleca się jednak kontynuowanie immunoznakowania i montowania w tym samym dniu co utrwalanie w celu zapewnienia integralności macierzy.
- Odessać PBS i dodać 4 ml/szkiełko 0,25% v/v Triton X-100 w PBS. Inkubować przez 10 minut w temperaturze pokojowej.
- Odessać roztwór Triton X-100 i przemyć każde szkiełko 3 razy 4 ml PBS. Dodać 4 ml/szkiełko 5% v/v surowicy dopasowanej do gatunku przeciwciała drugorzędowego (np. surowicy osła dla przeciwciał drugorzędowych osła) w PBS i inkubować w temperaturze pokojowej przez 1 godzinę.
- Dokładnie usuń roztwór blokujący z każdego szkiełka. Dodać 500 μl/szkiełko pierwszorzędowego przeciwciała rozcieńczonego w 5% v/v surowicy w PBS. Objętość ta jest wystarczająca do pokrycia tablic zarówno dla 1-godzinnej inkubacji w temperaturze pokojowej, jak i dla inkubacji nocnej w temperaturze 4 °C.
- Umyj każde szkiełko 3 razy 4 ml PBS. Dokładnie usunąć ostatnie płukanie i dodać 500 μl/szkiełko odpowiedniego przeciwciała drugorzędowego rozcieńczonego w 5% v/v surowicy w PBS.
- Umyj każde szkiełko 3 razy 4 ml PBS. Przemyć krótko dH2O, a następnie ostrożnie wyjąć szkiełka z roztworu za pomocą kleszczyków. Za pomocą chusteczki laboratoryjnej usunąć lub wysuszyć resztki dH2O.
- Odpipetuj 100 μl roztworu montażowego za pomocą DAPI w poprzek szkiełka, wizualnie potwierdzając pełne pokrycie całej matrycy.
- Umieść szkiełko nakrywkowe o średnicy 22 × 60 mm na szkiełku, aby je zamontować. Uszczelnij krawędzie szkiełka nakrywkowego przezroczystym lakierem do paznokci. Przechowywać w ciemności w temperaturze 4 °C do czasu wykonania badania obrazowego, nie wcześniej niż następnego dnia.
- Obrazowanie całych matryc za pomocą skanera mikromatrycowego lub odwróconego mikroskopu fluorescencyjnego wyposażonego w stolik robotyczny. Skanery mikromacierzowe zapewniają szybszy odczyt, ale mogą wymagać fluoroforów kompatybilnych z Cy3 lub Cy5 i często mają ograniczoną rozdzielczość rzędu pojedynczych komórek (tj. 1 – 10 μm). Mikroskopy fluorescencyjne dają możliwość korzystania z różnych kanałów fluorescencyjnych i wyższej rozdzielczości (<1 μm, ~ 100× powiększenie całkowite), ale zapewniają wolniejszy odczyt w zależności od jakości stolika robotycznego i powiększenia/obiektywu.
- Zapisuj przechwycone obrazy całych tablic z dowolnej metody jako pliki TIFF, aby zapobiec kompresji lub utracie danych związanych z innymi formatami plików (np. JPG).
- Odessać pożywki do hodowli komórkowych ze szkiełek matrycowych w 4-komorowych naczyniach i dodać 4 ml/szkiełko świeżo przygotowanego 4% v/v paraformaldehydu (PFA) do PBS. Inkubować przez 15 minut w temperaturze pokojowej.
- Opcja 2: Przeprowadź ocenę interakcji komórka-substrat na żywo za pomocą TFM.
- Przygotować roztwór 1% v/v albuminy surowicy bydlęcej (BSA) i 1% v/v dodecylosiarczanu sodu (SDS) w PBS w celu dysocjacji komórek od substratów podczas TFM.
- Przenieść 35-milimetrowe szalki Petriego zawierające kultury matrycowe do inkubowanego (37 °C, 5% CO2 %), odwróconego mikroskopu fluorescencyjnego ze stolikiem robotycznym do pomiarów TFM.
- W jednym naczyniu zaznacz pozycje (współrzędna X, współrzędna Y) i płaszczyzny ostrości (współrzędna Z) poszczególnych wysp komórkowych za pomocą mikroskopii z kontrastem fazowym.
- Przełącz się na mikroskopię fluorescencyjną dalekiej czerwieni, aby uwidocznić koraliki. Wróć do każdej z pozycji zapisanych w poprzednim kroku i skoryguj współrzędną Z płaszczyzny ostrości tak, aby tylko pierwsza warstwa koralików poniżej wyspy komórek była ostra. Zapisz nowe współrzędne i przejdź do automatycznego obrazowania wszystkich wysp komórkowych, aby uchwycić kontrast fazowy przed dysocjacją i obrazy fluorescencyjne dalekiej czerwieni.
- Ostrożnie dodać 150 μl roztworu BSA/SDS do naczynia i odczekać 5 minut, aby umożliwić całkowitą dysocjację komórek od substratu; monitorować dysocjację komórek za pomocą mikroskopii z kontrastem fazowym.
- Po oddzieleniu wysp komórkowych od podłoża wróć do zaznaczonych pozycji i sprawdź, czy pierwsza warstwa koralików jest nadal ostra. Jeśli te koraliki są poza płaszczyzną z powodu deformacji wywołanej przez trakcję generowaną przez komórki, skoryguj współrzędną Z płaszczyzny ostrości, aby ponownie były ostre. Zapisz skorygowane współrzędne Z i powtórz automatyczne obrazowanie wszystkich wysp, aby uchwycić obrazy fluorescencyjne dalekiej czerwieni po dysocjacji.
- Powtórz kroki 3.5.1 – 3.5.4 dla pozostałych naczyń.
4. Analiza danych
- Analiza danych immunofluorescencyjnych.
- Przetwarzanie pozyskanych obrazów tablic. Podziel obrazy tablic kompozytowych na pliki zawierające pojedyncze kanały (np. czerwony, niebieski lub zielony) i przekonwertuj na 8-bitowe obrazy TIFF43,44. Zastosuj binning (np. 2×2 lub 4×4), aby zmniejszyć rozmiar obrazu do ~ 32 megapikseli na kanał, aby zmniejszyć zapotrzebowanie na pamięć podczas dalszej analizy pojedynczych komórek całych obrazów tablicy. Zobacz plik kodu uzupełniającego zatytułowany "array_processing.ijm", aby zapoznać się z implementacją makra ImageJ tych kroków przetwarzania tablicy.
- Zwróć uwagę na współrzędne w pikselach lewego górnego, lewego dolnego i prawego dolnego rogu znaczników dekstranu sprzężonych z rodaminą lub warunków w układzie. Współrzędne te służą do obracania 8-bitowych obrazów TIFF w celu uzyskania idealnej pionowości, a następnie do dodawania adnotacji do danych wyjściowych z analizy pojedynczej komórki w określonych warunkach w układzie. Zobacz pliki kodu uzupełniającego zatytułowane "rb_array_rotater.ijm", "rg_array_rotater.ijm", " rgb_array_rotater.ijm", oraz "array_gridding.ijm" dla implementacji tych kroków obracania i siatkowania tablicy.
- Wykonaj analizę pojedynczych komórek obróconych 8-bitowych obrazów TIFF w programie CellProfiler (wersja 2.1.1)45 przy użyciu następujących modułów: IdentifyPrimaryObjects, IdentifySecondaryObjects i MeasureObjectIntensity. IdentifyPrimaryObjects identyfikuje jądra, IdentifySecondaryObjects identyfikuje immunoznaczniki związane z każdym jądrem komórkowym, a MeasureObjectIntensity zapewnia kwantyfikacje zarówno dla znaczników jądrowych, jak i immunoznaczników.
- Wyprowadzaj dane jednokomórkowe ze wszystkich trzech modułów jako plik CSV według kanałów, korzystając z modułu ExportToSpreadsheet, aby ułatwić późniejszą analizę. Zobacz pliki kodu uzupełniającego zatytułowane "b_array_image_analysis.cppipe", "gb_array_image_analysis.cppipe", " rb_array_image_analysis.cppipe" i "rgb_array_image_analysis.cppipe" dla potoków CellProfiler implementujących te kroki dla zestawów obrazów zawierających kanały czerwone, zielone lub niebieskie.
- Aby przekształcić dane w celu uwzględnienia zmienności eksperymentalnej i niegaussowskich rozkładów pojedynczych komórek, zastosuj normalizację kwantylową za pomocą replikacji biologicznej 46. Proces ten generuje wspólny rozkład między powtórzeniami i umożliwia bezstronne porównania zmian intensywności znakowania immunologicznego. Ponadto, w przeciwieństwie do punktacji Z i innych metod parametrycznych, normalizacja kwantylowa jest nieparametryczna i nie zakłada określonego rozkładu danych, co pozwala na bardziej reprezentatywne analizy zachowania pojedynczej komórki w funkcji stanu tablicowego.
- Wykreśl dane i zinterpretuj. W zależności od systemu biologicznego i hipotezy należy obliczyć i wykreślić jedną lub więcej z następujących miar zespołowych dla każdego warunku w szyku:
- Oblicz i wykreśl komórki na wyspę jako połączoną miarę adhezji i przeżycia w trakcie eksperymentu.
- Oblicz i wykreśl znormalizowaną przez kwantyl intensywność znakowania immunologicznego jako miarę losu lub funkcji komórki.
- Obliczyć i wykreślić odsetek komórek dodatnich pod kątem immunoznacznika, określony przez intensywność powyżej stałego progu, zwykle 2 s.d. powyżej średniej intensywności kontroli ujemnej.
- Alternatywnie, wykreśl rozkłady intensywności immunoznacznika w celu zbadania i skategoryzowania zachowania pojedynczej komórki jako funkcji stanu w szyku. Rozkłady te można dalej scharakteryzować za pomocą miar tendencji centralnej (średnia, mediana, moda) i zmienności (wariancja, współczynnik zmienności, czynnik Fano) oraz metod testowania hipotez, takich jak test Kołmogorowa-Smirnowa.
- Analiza danych TFM. Poniżej opisano podejście wykorzystujące wcześniej opracowany algorytm przez Butlera i wsp. oraz Wanga i wsp.40,47.
- Użyj ImageJ, aby wsadowo przekonwertować obrazy na 8-bitowe pliki TIFF. Zastosuj uśrednianie pikseli (np. 2 × 2), aby zmniejszyć koszt obliczeniowy i czas dalszej analizy. Ponieważ algorytmy TFM koncentrowały się głównie na analizie pojedynczej komórki, duży interfejs komórka-substrat wysp (~ 17,5 × 103 μm2) w porównaniu z interfejsem komórka-substrat pojedynczej komórki (75 μm2) wymaga etapu kategoryzacji.
- Wprowadź przechwycone obrazy kontrastu fazowego i fluorescencji dalekiej czerwieni (zarówno przed dysocjacją, jak i po dysocjacji) do naukowego środowiska programistycznego, takiego jak MATLAB, i przetwarzaj przy użyciu wcześniej opracowanych algorytmów Butlera i wsp. oraz Wanga i wsp.40,47.
- Zaznacz trzy regiony oddalone od wyspy komórek. Obszary te są używane do uwzględniania przemieszczeń spowodowanych dryftem obrazu lub próbki.
- Podaj współczynnik do przeliczenia z pikseli na mikrometry (np. 0,454 piksela/μm), moduł Younga podłoża (np. 13 kPa) i współczynnik Poissona (np. 0,48 dla opisywanych tutaj żeli poliakrylamidowych).
- Dla każdej wyspy narysuj obwiednię wokół obwodu, aby zdefiniować ograniczenia geometryczne; wszystkie siły znajdujące się poza tą granicą zostaną wyzerowane. Ten ograniczony system jest rozsądny, biorąc pod uwagę dużą odległość (tj. 450 μm) między wyspami.
- Oblicz naprężenie trakcyjne średniej kwadratowej i moment skurczowy dla każdej wyspy. Moment kurczliwy jest miarą naprężenia szczątkowego na wyspie komórkowej i wykazano, że odzwierciedla siłę interakcji komórka-komórka48. Dla każdego warunku w tablicy należy uzyskać średnie wartości średniokwadratowe dla wielu wysp i replik biologicznych oraz obliczyć powiązaną wariancję na potrzeby testowania hipotez. Możliwe jest również uśrednienie rozkładu naprężeń lub momentów na wielu wyspach, aby uzyskać reprezentatywną mapę obu miar w funkcji geometrii, np. odległości od środka wyspy.
Wyniki
Wykorzystując tę platformę, zbadaliśmy rolę sygnałów biochemicznych i biofizycznych w specyfikacji losu progenitorów wątroby34,35. Ligandy Notch sprzężone z białkiem A/G wykazywały lepszą retencję i klastrowanie w hydrożelu poliakrylamidowym (Rysunek 3A) i ponadto były zdolne do stymulowania różnicowania progenitorów wątroby w kierunku losu komórek przewodów żółciowych (Rysunek 3B). Za pomocą analizy pojedynczych komórek ilościowo oceniliśmy odpowiedź na ligandy Notch dla białek ECM: kolagenu I, kolagenu III, kolagenu IV, fibronektyny i lamininy (Rysunek 3C), stwierdzając, że odpowiedź progenitorów wątroby na ligand zależy również od kontekstu ECM. Na koniec wykorzystaliśmy wyciszanie za pomocą shRNA, aby uzyskać progenitorów wątroby pozbawionych ligandów Dll1 i Jag1. Odpowiedź na unierzędyowany ligand Notch różniła się w zależności od obecności któregokolwiek z ligandów, co potwierdza, że reaktywność na ligand zewnątrzkomórkowy jest również funkcją ekspresji ligandów wewnątrzkomórkowych (Rysunek 3D). Ponadto zaobserwowaliśmy odrębną subpopulację komórek podwójnie dodatnich (ALB+/OPN+) w przypadku wyciszenia Dll1 (Rysunek 3D). Razem te reprezentatywne wyniki pokazują: (1) kombinatoryczne możliwości formatu macierzy, czego przykładem jest zestawienie wielu unierzędyowanych białek ECM i ligandów Notch z wyciszaniem poszczególnych ligandów; (2) funkcjonalność nie tylko unierzędyowanych białek ECM, ale także unierzędywanych ligandów międzykomórkowych poprzez konjugację za pośrednictwem białka A/G; oraz (3) implementację naszej analizy pojedynczych komórek i jej zdolność do rozróżniania unikalnych subpopulacji.
Zaobserwowaliśmy również, że różnicowanie prekursorów wątroby zależy zarówno od sztywności podłoża, jak i składu ECM (Rysunek 4A); konkretnie ustalono, że kolagen IV wspomaga różnicowanie zarówno na podłożach miękkich, jak i sztywnych, podczas gdy fibronektyna wspomaga różnicowanie jedynie na podłożach sztywnych (Rysunek 4B). Reprezentatywne mapy ciepła pomiarów TFM sugerowały, że utrzymujące się naprężenia trakcyjne przy niskiej sztywności podłoża na kolagenie IV promowały różnicowanie w komórki przewodów żółciowych (Rysunek 4C), co zostało potwierdzone przez średnie wartości RMS (Rysunek 4D). Wspólnie te reprezentatywne wyniki pokazują: (1) pomyślną integrację TFM z mikromacierzami komórkowymi na podłożach o regulowanej sztywności w celu oceny zarówno fenotypu komórek, jak i naprężeń trakcyjnych; (2) koordynację losu prekursorowych komórek wątroby z zarówno składem macierzy, jak i sztywnością podłoża; oraz (3) implementację naszej analizy TFM i typowych profili naprężeń trakcyjnych w mikromacierzach komórkowych.
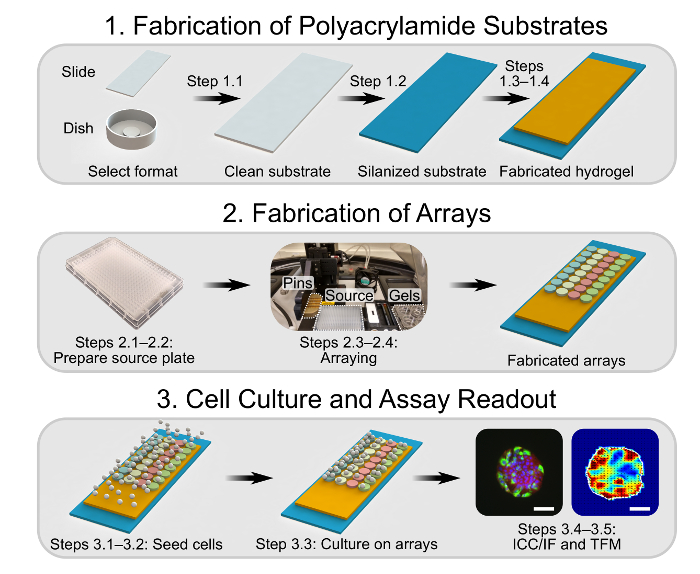
Rycina 1: Schematyczny przegląd trzech pierwszych sekcji eksperymentalnych. W sekcji 1 podłoża szklane są czyszczone i silanizowane w celu ułatwienia wytwarzania hydrożeli poliakrylamidowych. W sekcji 2 w 384-dołkowej płytce źródłowej przygotowuje się interesujące kombinacje biomolekuł. Następnie robotyczny arrayer jest ładowany czystymi pinami, płytką źródłową oraz hydrożelami poliakrylamidowymi i inicjowany, co prowadzi do wytworzenia macierzy na hydrożelach. W sekcji 3 komórki są wysiewane na obszary macierzy i pozostawione do adhezji, po czym przeprowadza się wybrany protokół hodowli. W punkcie końcowym komórki są albo utrwalane do immunocytochemii/immunofluorescencji, albo analizowane za pomocą TFM. Paski skali wynoszą 75 µm. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
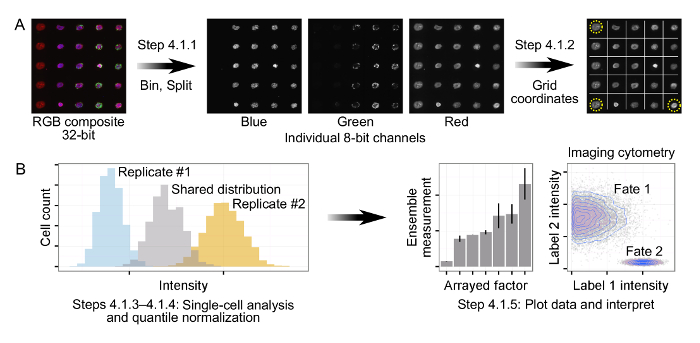
Rysunek 2: Przetwarzanie i analiza danych immunofluorescencyjnych z macierzy. (A) Kafelkowe, złożone 32-bitowe obrazy RGB są najpierw grupowane (binning), a następnie rozdzielane na poszczególne 8-bitowe kanały. Wykorzystując kombinację rozmieszczonych w macierzy markerów fluorescencyjnych i wysp komórkowych, identyfikuje się trzy narożniki macierzy, co umożliwia automatyczną orientację i siatkowanie macierzy. (B) Dla każdego kanału macierzy wejściowych generowane są dane dla pojedynczych komórek. Aby uwzględnić dryf doświadczalny, stosuje się normalizację kwantylową dla każdego powtórzenia biologicznego, co pozwala uzyskać jednolity rozkład wspólny dla wszystkich powtórzeń. Dane znormalizowane kwantylowo są następnie przedstawiane na wykresach i interpretowane poprzez obliczanie pomiarów zbiorczych (np. liczba komórek/wyspę, średnia intensywność, procent komórek wykazujących pozytywną reakcję na znacznik) lub bezpośrednią analizę rozkładów pojedynczych komórek. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
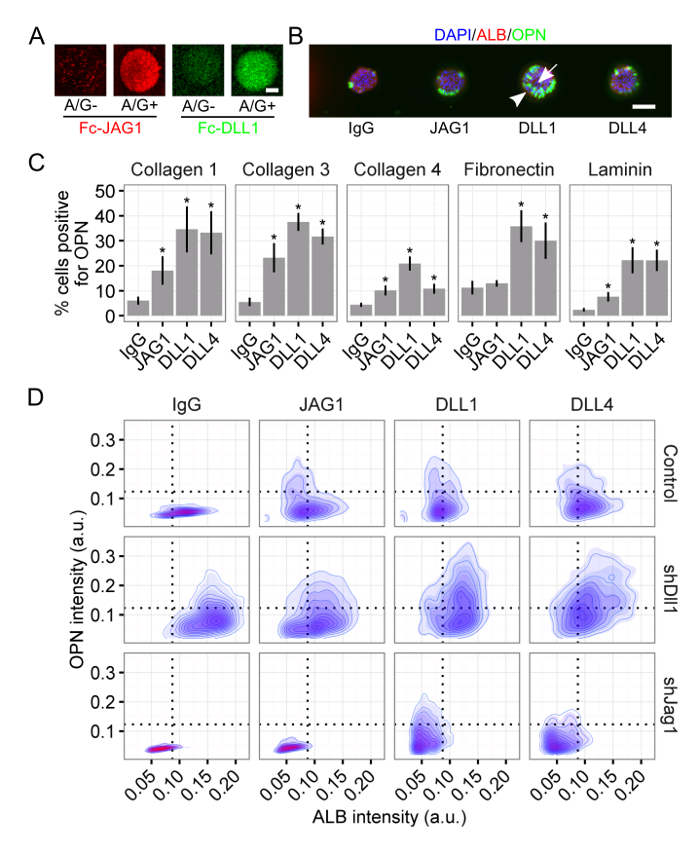
Rysunek 3: Prezentacja ligandu Notch pośredniczy w różnicowaniu progenitorów wątroby. (A) Rekombinowane ligandy Notch z domeną Fc, Jagged-1 (JAG1) i Delta-like 1 (DLL1), wykazały poprawioną retencję i klastrowanie po unieruchomieniu na białku A/G. Pasek skali wynosi 50 µm. (B) Progenitory komórek wątroby zróżnicowały się w komórki przewodów żółciowych po ekspozycji na ligand Notch. 4',6-diamidino-2-fenyloindol (DAPI) jest markerem jądrowym, albuminy (ALB) są markerem komórek wątroby, a osteopontyna (OPN) jest markerem komórek przewodów żółciowych. Pasek skali wynosi 150 µm. (C) Ilościowe oznaczenie procentowej liczby komórek wykazujących pozytywną ekspresję OPN dla ligandów Notch: JAG1, DLL1 oraz Delta-like 4 (DLL4) na białkach ECM: kolagenie I, kolagenie III, kolagenie IV, fibronektynie i lamininie. Test t-Studenta t-testy przeprowadzono w odniesieniu do kontrolnego IgG dla każdego ligandu Notch rozmieszczonego w macierzy w obrębie każdego białka ECM, z zaznaczeniem wartości p dla P<0.05 (*). (D) Cytometria obrazowa białka ALB i OPN dla komórek na kolagenie III w obecności ligandów Notch: JAG1, DLL1 i DLL4. Progenitory wątroby bez ligandów Notch Dll1 i Jag1 (t.j., shDll1 oraz shJag1) wygenerowano przy użyciu wyciszania shRNA. Dane w (C) przedstawione jako średnia ± s.e.m. Rycina została zmodyfikowana na podstawie pracy Kaylana i wsp.34. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
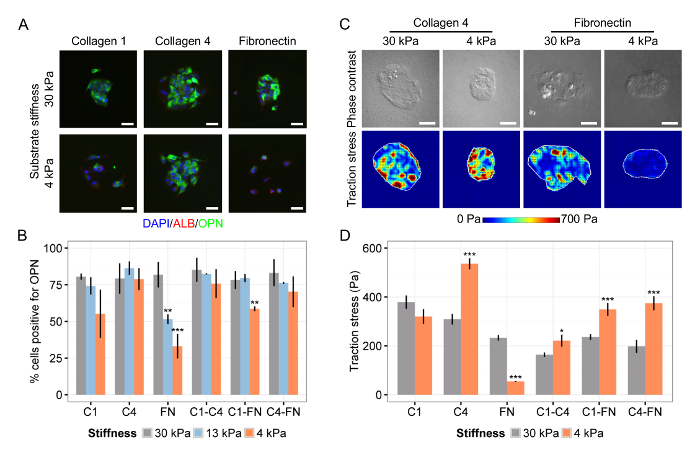
Rysunek 4: Skład macierzy i sztywność podłoża koordynują różnicowanie progenitorów wątroby. (A) Różnicowanie progenitorów wątroby w komórki przewodów żółciowych zależy zarówno od składu macierzy zewnątrzkomórkowej (ECM), jak i sztywności podłoża. DAPI jest markerem jądrowym, ALB jest markerem komórek wątrobowych, a OPN jest markerem komórek przewodów żółciowych. (B) Ilościowe oznaczenie procenta komórek wykazujących pozytywny wynik dla OPN na podłożach o module Younga wynoszącym 30 kPa, 13 kPa i 4 kPa dla kolagenu I (C1), kolagenu IV (C4), fibronektyny (FN) oraz wszystkich dwuskładnikowych kombinacji tych białek macierzy zewnątrzkomórkowej (ECM). (C) Napięcie trakcyjne komórek zależy zarówno od sztywności podłoża, jak i od składu macierzy pozakomórkowej (ECM). (D) Ilościowe oznaczenie wartości średnioquadraticznych (RMS) naprężeń trakcyjnych na podłożach o module Younga 30 kPa i 4 kPa dla kolagenu I (C1), kolagenu IV (C4), fibronektyny (FN) oraz wszystkich dwuskładnikowych kombinacji tych białek ECM. W (B) i (D), dane przedstawiono jako średnia ± błąd standardowy średniej (s.e.m.) oraz test t Studenta t-testy przeprowadzono dla wartości 30 kPa dla każdej kombinacji ECM, a wartości P wskazano dla P< 0,05 (*), P< 0,01 (**), oraz P< 0,001 (***). Paski skali wynoszą 50 µmRysunek został zmodyfikowany na podstawie pracy Kourouklisa. i wsp.35. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
| Sekcja | Problem | Potencjalne przyczyny | Roztwór |
| 1. Przygotowanie podłoża z poliakrylamidu. | Nie można usunąć szkiełka podstawowego z hydrożelu. | Nadpolimeryzacja. | Skrócić czas polimeryzacji do <10 minut (4 W/m2). Sprawdzić, czy moc wyjściowa naświetlarki UV mieści się w oczekiwanym zakresie. |
| Niewłaściwa polimeryzacja hydrożelu poliakrylamidowego. | Niedopolimeryzacja. | Zwiększyć czas polimeryzacji do >10 minut (4 W/m²2). Sprawdzić, czy moc wyjściowa urządzenia do sieciowania UV mieści się w oczekiwanym zakresie. | |
| Hydrożele poliakrylamidowe ulegają uszkodzeniu po usunięciu szkiełka nakrywki. | Miękkie hydrożele poliakrylamidowe są podatne na uszkodzenia. | Obserwujemy spadek wydajności otrzymywania hydrożeli (~50%) w przypadku najmiększych (t.j., w szczególności hydrożele o niskim module Younga (np. 4 kPa). Z hydrożelami należy obchodzić się delikatnie i zwiększyć liczbę materiałów wyjściowych, aby uzyskać pożądaną wydajność. | |
| 2. Wytwarzanie macierzy. | Słaba lub niespójna morfologia plamek. | Niestabilna praca nawilżacza. | Należy upewnić się, że nawilżacz i reometr działają prawidłowo podczas każdego procesu drukowania i utrzymują wilgotność względną (RH) na poziomie 65%. |
| Piny zablokowane w głowicy drukującej lub zapchane. | Oczyścić głowicę drukującą, aby umożliwić swobodny ruch pinów. Dokładnie czyścić piny przed lub po każdym cyklu drukowania w celu usunięcia agregatów z kanałów pinów. | ||
| 3. Hodowla komórek i przeprowadzenie testu. | Odczepianie się lub obumieranie komórek na matrycach po początkowym przytwierdzeniu. | Nadmierne wysiewanie i nadmierna proliferacja. | Zmniejsz początkową gęstość wysiewu oraz czas inkubacji. Podczas hodowli w układach macierzowych stosuj pożywki „podtrzymujące” (maintenance) lub „różnicujące” (differentiation), aby ograniczyć proliferację komórek. |
| Uwalnianie toksycznego monomeru akrylamidu z hydrożelu. | Namoczyć hydrożele w dH2O2przez co najmniej 3 dni, aby umożliwić dyfuzję/uwalnianie monomeru akrylamidu i zmniejszyć toksyczność dla komórek. | ||
| Komórki nie przywierają do matryc. | Podsiew pod okrywę. | Zwiększyć początkową gęstość zasiewu oraz czas inkubacji. Zastosować typ komórek o silniejszej adhezji. | |
| Niewłaściwe warunki osadzania macierzy lub biomolekuł. | Oczyść piny z cząsteczek i agregatów, potwierdź parametry drukowania oraz oceń naniesienie markerów fluorescencyjnych. np.dekstran sprzężony z rodamyną. | ||
| Specyfika oddziaływań komórka–macierz. | Różne typy komórek przylegają specyficznie do niektórych, a nie do wszystkich białek macierzy zewnątrzkomórkowej (ECM). Przetestuj wiele różnych białek ECM z wykorzystaniem swoich komórek. | ||
| Nieoptymalne przechowywanie macierzy po wytworzeniu. | Zalecamy przechowywanie wykonanych macierzy przez noc w temperaturze pokojowej i wilgotności względnej 65% RH, aby częściowo uniknąć zmian fazowych podczas zamrażania. Adhezja komórek jest wrażliwa na wilgotność, temperaturę oraz czas przechowywania; należy upewnić się, że parametry te są spójne lub zoptymalizowane dla przeprowadzanych eksperymentów. | ||
| Odrywanie się hydrożelu od szklanego podłoża podczas hodowli komórkowej. | Niewłaściwe oczyszczanie i silanizacja szkiełek. | Wymień roztwory robocze do czyszczenia i silanizacji szkiełek. | |
| Przewodniony hydrożel. | Nie należy pozostawiać hydrożeli do dehydratacji na płycie grzejnej dłużej niż przez 15–30 min. | ||
| 4. Analiza danych. | Wysoka zmienność między powtórzonymi punktami i preparatami. | Zmienność w wytwarzaniu matryc. | Należy sprawdzić, czy piny i głowica drukująca są czyste. Potwierdzić sprawność nawilżacza. Zwizualizować i ocenić ilościowo jakość plamek oraz macierzy przy użyciu markerów fluorescencyjnych. Macierze należy przechowywać zgodnie z powyższymi zaleceniami. |
Tabela 1: Rozwiązywanie problemów.
Dyskusja
W naszych eksperymentach odkryliśmy, że najczęstsze awarie są związane z jakością sfabrykowanych macierzy i słabo scharakteryzowaną odpowiedzią w systemie biologicznym będącym przedmiotem zainteresowania. Odsyłamy czytelnika do Tabeli 1, aby zapoznać się z typowymi trybami awarii w eksperymentach z mikromacierzami komórkowymi i powiązanymi krokami rozwiązywania problemów. W szczególności jeśli chodzi o jakość tablic, zalecamy następujące elementy. Potwierdź techniczną jakość i solidność programów, parametrów i macierzujących przy użyciu cząsteczek znakowanych fluorescencyjnie, takich jak dekstran sprzężony z rodaminą. Dokładnie wyczyść kołki przed lub po ułożeniu zgodnie z instrukcjami producenta, a następnie sprawdź wzrokowo, czy kanały sworzniowe są wolne od zanieczyszczeń za pomocą mikroskopu świetlnego. Potwierdź retencję biomolekuły w szyku za pomocą ogólnych barwień białek lub znakowania immunologicznego. Należy zauważyć, że biomolekuły o masie cząsteczkowej poniżej 70 kDa często nie są zatrzymywane w hydrożelu23,31. Walidacja funkcjonalności komórek biomolekuł w szyku przy użyciu wielu typów komórek. Należy pamiętać, że tylko przylegające komórki są zgodne z tablicami; dodatkowo adhezja do macierzy jest zależna zarówno od właściwości specyficznych dla komórki (np. profilu ekspresji integryny), jak i wybranych białek ECM.
Ze względu na ograniczoną ilość miejsca, nie przedstawiliśmy tutaj obszernego omówienia projektu, układu i produkcji tablicy i odsyłamy czytelnika do poprzednich prac 23,25. Zazwyczaj używamy 100 podtablic plamek (średnica plamki 150 μm, odległość 450 μm od środka do środka) składających się z 10–20 unikalnych warunków biomolekuł (tj. 5–10 plamek/warunek). Liczba podmatryc w jednej matrycy różni się w zależności od liczby interesujących warunków biomolekuł, które można wygodnie skalować do 1,280 na jednym szkiełku mikroskopowym 25 × 75 mm (~ 6,400 plamek w 64 podukładach)25,31. Powyższe parametry będą się dalej różnić w zależności od wielkości interesującego Cię wzoru; Piny zdolne do generowania wzorów od 75 do 450 μm są łatwo dostępne.
Eksperymenty macierzowe najlepiej uzupełnia walidacja wysoko punktowanych warunków w układzie macierzowym przy użyciu innych formatów hodowli, odczytów testów i systemów modeli biologicznych. W szczególności zalecamy dalszą walidację efektów wybranych warunków macierzowych przy użyciu kultur masowych w połączeniu ze standardowymi technikami biologii molekularnej (np. qRT-PCR, immunoblotting) lub standardowym TFM. Manipulacja genetyczna (np. knockdown lub nadekspresja) czynnika będącego przedmiotem zainteresowania w odpowiednim systemie modelu biologicznego może również służyć do potwierdzenia efektów zaobserwowanych w tablicach. Modele zwierzęce in vivo stanowią kolejny sposób walidacji i zostały ostatnio wykorzystane, na przykład, do potwierdzenia centralnej roli galektyny-3 i galektyny-8 w niszy przerzutowej raka płuc, jak początkowo zidentyfikowano za pomocą mikromacierzy komórkowej31,49.
Do zbadania mikrośrodowiskowej regulacji funkcji komórkowych wykorzystano szereg innych metod, w tym różnorodne dwuwymiarowe systemy mikrofabrykowane 18,50,51,52,53,54,55 i trójwymiarowe systemy biomateriałowe 56,57,58,59. Lokal mieszkalny 60,61. W porównaniu z innymi metodami, szczególne zalety opisanej tutaj platformy mikromacierzy komórkowych obejmują: (1) przepustowość do setek lub tysięcy różnych kombinacji czynników, umożliwiającą analizę efektów interakcji; 2) dostępne, zautomatyzowane obrazowanie i analiza; (3) integracja odczytów zarówno biochemicznych, jak i biofizycznych z kontrolowaną prezentacją czynników w układzie mięśni; (4) możliwość różnicowania właściwości materiału podłoża; oraz (5) analiza losu i funkcji komórek o wysokiej zawartości.
Podsumowując, połączenie mikromacierzy komórkowych z TFM na podłożach o regulowanej sztywności substratu umożliwia dokładne scharakteryzowanie zarówno sygnałów biochemicznych, jak i biofizycznych. Jak przedstawiono tutaj, platforma ta jest uogólniona i może być łatwo stosowana do różnych przylegających typów komórek i kontekstów tkankowych w celu lepszego zrozumienia kombinatorycznej regulacji mikrośrodowiskowej różnicowania komórek i mechanotransdukcji.
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnych interesów finansowych.
Podziękowania
Dziękujemy Austinowi Cyphersmithowi i Mayandi Sivaguru (Carl R. Woese Institute for Genomic Biology, University of Illinois at Urbana–Champaign) za pomoc w mikroskopii i hojne wykorzystanie ekranu i wideo w rdzeniu mikroskopii.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,2 &mikro; m filtr strzykawkowy | Pall Corporation | 4433 | Pasuje do plastikowych strzykawek Luer lock o odpowiedniej wielkości. |
| 100 & razy; penicylina– roztwór streptomycyny | Fisher Scientific SV30010 | ||
| 22 i 60 mm okulary nakrywkowe | Mikroskopia elektronowa Sciences | 63765 | |
| 3-(trimetysililo)metakrylan propylu (3-TPM) | Sigma-Aldrich | 440159 | Przechowywać w atmosferze gazu obojętnego zgodnie z instrukcjami producenta. Wystawienie 3-TPM na działanie powietrza może zagrozić silanizacji podłoży szklanych. UWAGA: 3-TPM jest cieczą palną. Przechowywać z dala od źródeł ciepła, iskier, otwartego ognia i gorących powierzchni i używać wyłącznie w dygestoriach chemicznych. |
| Hydrat 3-[(3-cholamidopropylo)dimetyloamonio]-1-propanosulfonianu (CHAPS) | Sigma-Aldrich | C3023 | |
| 35 mm szalki Petriego ze szklanym dnem | Komórka E& G | GBD00002-200 | 13 mm dobrze składający się ze szkła nakrywkowego #1,5. Umożliwia TFM i obrazowanie żywych komórek. |
| 384-dołkowa polipropylenowa mikropłytka z dnem w kształcie litery V, niesterylna | USA Scientific | 1823-8400 | |
| 6-dołkowe mikropłytki polistyrenowe | Fisher Scientific | 08-772-1B | 35-milimetrowe szalki Petriego ze szklanym dnem pasują do studzienek mikropłytki, ułatwiając wytwarzanie matrycy. |
| Aceton | Sigma-Aldrich | 179973 | |
| Akrylamid | Sigma-Aldrich | A3553 | UWAGA: Narażenie na akrylamid może powodować ostrą toksyczność i podrażnienie. Nosić rękawice ochronne, odzież i okulary ochronne. |
| Kolagen I, ogon szczura | EMD Millipore | 08-115MI | |
| Kolagen III, ludzki | EMD Millipore | CC054 | |
| Kolagen IV, ludzki | EMD Millipore | CC076 | |
| Środek sieciujący, 365 nm | UVP | CL-1000 | |
| Dekstran, rodamina B-sprzężona, 70 kDa | ThermoFisher Scientific | D1841 | Używany jako marker do lokalizacji tablicy. |
| Dimetylosulfotlenek | Fisher Scientific | BP231 | |
| Sól fizjologiczna buforowana fosforanami Dulbecco (PBS) | Fisher Scientific (HyClone) | SH3001302 | |
| Alkohol etylowy | Decon Labs | 2701 | |
| Kwas etylenodiaminotetraoctowy (EDTA) | Sigma-Aldrich | ED | |
| Fc-rekombinowany DLL1, mysz | R& D Systems | 5026-DL-050 | |
| Fc-rekombinant DLL4, mysz | AdipoGen | AG-40A-0145-C050 | |
| Fc-rekombinowany JAG1, szczur | R& D Systems | 599-JG-100 | |
| Fibronektyna, ludzki | Sigma-Aldrich | F2006 | |
| Mikroskop fluorescencyjny, odwrócony | Zeiss | Axiovert 200M | Upewnij się, że mikroskop jest wyposażony w stolik robotyczny zarówno do automatycznego obrazowania fluorescencyjnego, jak i TFM. Kontrola środowiska (i., 37 ° C i 5% CO2) są wysoce wskazane dla TFM. |
| Fluoromount G z DAPI | SouthernBiotech | 0100-20 | |
| Lodowaty kwas octowy | Sigma-Aldrich | 695092 | UWAGA: Kwas octowy jest łatwopalny i. Nosić rękawice ochronne, odzież i okulary ochronne. |
| Glycerol | Sigma-Aldrich | M6145 | |
| Irgacure 2959 | BASF Corporation | 55047962 | |
| Laminin, mysz | EMD Millipore | CC095 | |
| Metanol | Sigma-Aldrich | 179957 | |
| Skaner mikromacierzy | GenePix | 4000B | Fluorofory muszą być kompatybilne z Cy3 lub Cy5. |
| Mikromacierz | Digilab | OmniGrid Micro | Inne mikromacierze o podobnych lub większych możliwościach mogą być łatwo zastąpione. |
| Szkiełka mikroskopowe, 25 i razy; 75 mm | Sigma-Aldrich | CLS294775X25 | ~ 0,9 & ndash; 1,1 mm grubości. |
| N,N′ -Metylenobisakryloamid (bisakrylamid) | Sigma-Aldrich | M7279 | UWAGA: Narażenie na akrylamid może powodować ostrą toksyczność i podrażnienie. Nosić rękawice ochronne, odzież i okulary ochronne. |
| Paraformaldehyd (PFA), 16% v/v | Mikroskopia elektronowa Nauki | RT15710 | Przygotuj PFA świeży (nie przechowywać) w celu optymalnego utrwalenia. UWAGA: Narażenie na PFA może powodować ostrą toksyczność, a także może podrażniać lub korodować skórę w kontakcie. Nosić rękawice ochronne, odzież i okulary ochronne i używać tylko w okapie oparów chemicznych. |
| Białko A/G, rekombinowana | ThermoFisher Scientific | 21186 | |
| Pyrex, 2 000 mL | Fisher Scientific | 15-242B | |
| Prostokątne 4-komorowe naczynie hodowlane | Fisher Scientific (Nunc) | 12-565-495 | Do hodowli komórkowych na szkiełkach mikroskopowych. |
| Octan sodu | Sigma-Aldrich | S2889 | |
| Wodorotlenek sodu | Sigma-Aldrich | 415413 | UWAGA: NaOH jest silnie i może powodować poważne oparzenia skóry i uszkodzenie oczu. Nosić rękawice ochronne, odzież i okulary ochronne. |
| Pin stealth do układania | ArrayIt | SMP3 | Clean po każdym uruchomieniu macierzy zgodnie z instrukcjami producenta. Wytwarza domeny o wielkości 150 mikronów; Kup inne rozmiary pinów (75– 450 mikronów) zgodnie z konkretnym zastosowaniem. |
| Triton X-100 | Sigma-Aldrich | X100 |
Bibliografia
- Joyce, J. A., Pollard, J. W. Microenvironmental regulation of metastasis. Nat Rev Cancer. 9 (4), 239-252 (2009).
- Hsu, Y. C., Fuchs, E. A family business: stem cell progeny join the niche to regulate homeostasis. Nat Rev Mol Cell Biol. 13 (2), 103-114 (2012).
- Whiteside, T. L. The tumor microenvironment and its role in promoting tumor growth. Oncogene. 27 (45), 5904-5912 (2008).
- Jones, D. L., Wagers, A. J. No place like home: anatomy and function of the stem cell niche. Nat Rev Mol Cell Biol. 9 (1), 11-21 (2008).
- Discher, D. E., Mooney, D. J., Zandstra, P. W. Growth factors, matrices, and forces combine and control stem cells. Science. 324 (5935), 1673-1677 (2009).
- Trappmann, B., et al. Extracellular-matrix tethering regulates stem-cell fate. Nat Mater. 11 (7), 642-649 (2012).
- Ivanovska, I. L., Shin, J. W., Swift, J., Discher, D. E. Stem cell mechanobiology: diverse lessons from bone marrow. Trends Cell Biol. 25 (9), 523-532 (2015).
- Engler, A. J., Sen, S., Sweeney, H. L., Discher, D. E. Matrix elasticity directs stem cell lineage specification. Cell. 126 (4), 677-689 (2006).
- Chaudhuri, O., et al. Hydrogels with tunable stress relaxation regulate stem cell fate and activity. Nat Mater. 15 (3), 326-334 (2016).
- McBeath, R., Pirone, D. M., Nelson, C. M., Bhadriraju, K., Chen, C. S. Cell shape, cytoskeletal tension, and RhoA regulate stem cell lineage commitment. Dev Cell. 6 (4), 483-495 (2004).
- Legate, K. R., Wickstrom, S. A., Fassler, R. Genetic and cell biological analysis of integrin outside-in signaling. Genes Dev. 23 (4), 397-418 (2009).
- Kessenbrock, K., Plaks, V., Werb, Z. Matrix metalloproteinases: regulators of the tumor microenvironment. Cell. 141 (1), 52-67 (2010).
- Underhill, G. H. Stem cell bioengineering at the interface of systems-based models and high-throughput platforms. Wiley Interdiscip Rev Syst Biol Med. 4 (6), 525-545 (2012).
- Underhill, G. H., Galie, P., Chen, C. S., Bhatia, S. N. Bioengineering methods for analysis of cells in vitro. Annu Rev Cell Dev Biol. 28, 385-410 (2012).
- Zorlutuna, P., et al. Microfabricated biomaterials for engineering 3D tissues. Adv Mater. 24 (14), 1782-1804 (2012).
- Ruiz, S. A., Chen, C. S. Microcontact printing: A tool to pattern. Soft Matter. 3 (2), 168-177 (2007).
- Guillotin, B., Guillemot, F. Cell patterning technologies for organotypic tissue fabrication. Trends Biotechnol. 29 (4), 183-190 (2011).
- Théry, M. Micropatterning as a tool to decipher cell morphogenesis and functions. J. Cell Sci. 123 (Pt 24), 4201-4213 (2010).
- Ranga, A., Lutolf, M. P. High-throughput approaches for the analysis of extrinsic regulators of stem cell fate. Curr. Opin. Cell Biol. 24 (2), 236-244 (2012).
- Kobel, S., Lutolf, M. High-throughput methods to define complex stem cell niches. Biotechniques. 48 (4), ix-xxii (2010).
- Fernandes, T. G., Diogo, M. M., Clark, D. S., Dordick, J. S., Cabral, J. M. S. High-throughput cellular microarray platforms: applications in drug discovery, toxicology and stem cell research. Trends Biotechnol. 27 (6), 342-349 (2009).
- Montanez-Sauri, S. I., Beebe, D. J., Sung, K. E. Microscale screening systems for 3D cellular microenvironments: platforms, advances, and challenges. Cell Mol Life Sci. 72 (2), 237-249 (2015).
- Flaim, C. J., Chien, S., Bhatia, S. N. An extracellular matrix microarray for probing cellular differentiation. Nat Methods. 2 (2), 119-125 (2005).
- Underhill, G. H., Flaim, C. J., Bhatia, S. N. Methods in Bioengineering: Stem Cell Bioengineering Artech House Methods in Bioengineering. Parekkadan, B., Yarmush, M. , Artech House Publishers. Boston, MA. 63-73 (2009).
- Brafman, D. A., Chien, S., Willert, K. Arrayed cellular microenvironments for identifying culture and differentiation conditions for stem, primary and rare cell populations. Nat Protoc. 7 (4), 703-717 (2012).
- Brafman, D. A., et al. Investigating the role of the extracellular environment in modulating hepatic stellate cell biology with arrayed combinatorial microenvironments. Integr Biol. 1 (8-9), 513-524 (2009).
- Soen, Y., Mori, A., Palmer, T. D., Brown, P. O. Exploring the regulation of human neural precursor cell differentiation using arrays of signaling microenvironments. Mol Syst Biol. 2, 37(2006).
- LaBarge, M. A., et al. Human mammary progenitor cell fate decisions are products of interactions with combinatorial microenvironments. Integr Biol. 1 (1), 70-79 (2009).
- Anderson, D. G., Levenberg, S., Langer, R. Nanoliter-scale synthesis of arrayed biomaterials and application to human embryonic stem cells. Nat Biotechnol. 22 (7), 863-866 (2004).
- Brafman, D. A., Shah, K. D., Fellner, T., Chien, S., Willert, K. Defining long-term maintenance conditions of human embryonic stem cells with arrayed cellular microenvironment technology. Stem Cells Dev. 18 (8), 1141-1154 (2009).
- Reticker-Flynn, N. E., et al. A combinatorial extracellular matrix platform identifies cell-extracellular matrix interactions that correlate with metastasis. Nat Commun. 3, 1122(2012).
- Wood, K. C., et al. MicroSCALE screening reveals genetic modifiers of therapeutic response in melanoma. Sci Signal. 5 (224), rs4(2012).
- Braga Malta, D. F., et al. Extracellular matrix microarrays to study inductive signaling for endoderm specification. Acta Biomater. 34, 30-40 (2016).
- Kaylan, K. B., Ermilova, V., Yada, R. C., Underhill, G. H. Combinatorial microenvironmental regulation of liver progenitor differentiation by Notch ligands, TGFbeta, and extracellular matrix. Sci Rep. 6 (23490), 23490(2016).
- Kourouklis, A. P., Kaylan, K. B., Underhill, G. H. Substrate stiffness and matrix composition coordinately control the differentiation of liver progenitor cells. Biomaterials. 99, 82-94 (2016).
- Kaylan, K. B., et al. Mapping lung tumor cell drug responses as a function of matrix context and genotype using cell microarrays. Integr. Biol. , (2016).
- Mann, C., Leckband, D. Measuring Traction Forces in Long-Term Cell Cultures. Cellular and Molecular Bioengineering. 3 (1), 40-49 (2010).
- Heisenberg, C. P., Bellaiche, Y. Forces in tissue morphogenesis and patterning. Cell. 153 (5), 948-962 (2013).
- Schwarz, U. S., Soine, J. R. Traction force microscopy on soft elastic substrates: A guide to recent computational advances. Biochim Biophys Acta. 1853 (11 Pt B), 3095-3104 (2015).
- Butler, J. P., Tolic-Norrelykke, I. M., Fabry, B., Fredberg, J. J. Traction fields, moments, and strain energy that cells exert on their surroundings. American Journal of Physiology-Cell Physiology. 282 (3), C595-C605 (2002).
- Wen, J. H., et al. Interplay of matrix stiffness and protein tethering in stem cell differentiation. Nat Mater. 13 (10), 979-987 (2014).
- Knoll, S. G., Ali, M. Y., Saif, M. T. A novel method for localizing reporter fluorescent beads near the cell culture surface for traction force microscopy. J Vis Exp. (91), e51873(2014).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 9 (7), 671-675 (2012).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nat Methods. 9 (7), 676-682 (2012).
- Kamentsky, L., et al. Improved structure, function and compatibility for CellProfiler: modular high-throughput image analysis software. Bioinformatics. 27 (8), 1179-1180 (2011).
- Bolstad, B. M., Irizarry, R. A., Astrand, M., Speed, T. P. A comparison of normalization methods for high density oligonucleotide array data based on variance and bias. Bioinformatics. 19 (2), 185-193 (2003).
- Wang, N., et al. Cell prestress. I. Stiffness and prestress are closely associated in adherent contractile cells. Am J Physiol Cell Physiol. 282 (3), C606-C616 (2002).
- Krishnan, R., et al. Substrate stiffening promotes endothelial monolayer disruption through enhanced physical forces. Am J Physiol Cell Physiol. 300 (1), C146-C154 (2011).
- Reticker-Flynn, N. E., Bhatia, S. N. Aberrant glycosylation promotes lung cancer metastasis through adhesion to galectins in the metastatic niche. Cancer Discov. 5 (2), 168-181 (2015).
- Chen, C. S., Mrksich, M., Huang, S., Whitesides, G. M., Ingber, D. E. Geometric control of cell life and death. Science. 276 (5317), 1425-1428 (1997).
- Kilian, K. A., Bugarija, B., Lahn, B. T., Mrksich, M. Geometric cues for directing the differentiation of mesenchymal stem cells. Proc Natl Acad Sci USA. 107 (11), 4872(2010).
- Nelson, C. M., Chen, C. S. Cell-cell signaling by direct contact increases cell proliferation via a PI3K-dependent signal. FEBS Lett. 514 (2-3), 238-242 (2002).
- Hui, E. E., Bhatia, S. N. Micromechanical control of cell-cell interactions. Proc. Natl. Acad. Sci. U. S. A. 104 (14), 5722-5726 (2007).
- Lutolf, M. P., Blau, H. M. Artificial stem cell niches. Adv Mater. 21 (32-33), 3255-3268 (2009).
- Gobaa, S., et al. Artificial niche microarrays for probing single stem cell fate in high throughput. Nat. Methods. 8 (11), 949-955 (2011).
- DeForest, C. A., Anseth, K. S. Cytocompatible click-based hydrogels with dynamically tunable properties through orthogonal photoconjugation and photocleavage reactions. Nat Chem. 3 (12), 925-931 (2011).
- Nelson, C. M., VanDuijn, M. M., Inman, J. L., Fletcher, D. A., Bissell, M. J. Tissue geometry determines sites of mammary branching morphogenesis in organotypic cultures. Sci. STKE. 314 (5797), 298(2006).
- Liu Tsang, V., et al. Fabrication of 3D hepatic tissues by additive photopatterning of cellular hydrogels. FASEB J. 21 (3), 790-801 (2007).
- Albrecht, D. R., Underhill, G. H., Mendelson, A., Bhatia, S. N. Multiphase electropatterning of cells and biomaterials. Lab. Chip. 7 (6), 702-709 (2007).
- Chan, V., Zorlutuna, P., Jeong, J. H., Kong, H., Bashir, R. Three-dimensional photopatterning of hydrogels using stereolithography for long-term cell encapsulation. Lab. Chip. 10 (16), 2062-2070 (2010).
- Boghaert, E., et al. Host epithelial geometry regulates breast cancer cell invasiveness. Proc. Natl. Acad. Sci. U. S. A. 109 (48), 19632-19637 (2012).
Przedruki i uprawnienia
