Dwa algorytmy analizy obrazu, "Drosophila NMJ Morphometrics" i "Drosophila NMJ Bouton Morphometrics" zostały stworzone, aby automatycznie określić ilościowo dziewięć cech morfologicznych połączenia nerwowo-mięśniowego Drosophila (NMJ).
Artykuł metodologiczny
Dwa algorytmy wysokoprzepustowej i wieloparametrycznej kwantyfikacji morfologii połączenia nerwowo-mięśniowego Drosophila
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Morfologia synaptyczna jest ściśle związana ze skutecznością synaps, a w wielu przypadkach morfologiczne defekty synaps ostatecznie prowadzą do nieprawidłowego funkcjonowania synaps. Połączenie nerwowo-mięśniowe larw Drosophila (NMJ), dobrze ugruntowany model synaps glutaminergiczne, jest intensywnie badane od dziesięcioleci. Identyfikacja mutacji powodujących defekty morfologiczne NMJ ujawniła repertuar genów, które regulują rozwój i funkcję synaps. Wiele z nich zidentyfikowano w badaniach na dużą skalę, które koncentrowały się na jakościowych podejściach do wykrywania nieprawidłowości morfologicznych Drosophila NMJ. Wadą analiz jakościowych jest to, że wielu subtelnych graczy przyczyniających się do morfologii NMJ prawdopodobnie pozostaje niezauważonych. Podczas gdy analizy ilościowe są wymagane do wykrycia subtelniejszych różnic morfologicznych, takie analizy nie są jeszcze powszechnie wykonywane, ponieważ są pracochłonne. Protokół ten szczegółowo opisuje dwa algorytmy analizy obrazu "Drosophila NMJ Morphometrics" i "Drosophila NMJ Bouton Morphometrics", dostępne jako makra kompatybilne z Fidżi, do ilościowej, dokładnej i obiektywnej analizy morfometrycznej Drosophila NMJ. Metodologia ta została opracowana do analizy końcówek NMJ znakowanych immunologicznie powszechnie stosowanymi markerami Dlg-1 i Brp. Dodatkowo w niniejszym protokole przedstawiono jej szersze zastosowanie do innych markerów, takich jak Hrp, Csp i Syt. Makra są w stanie ocenić dziewięć cech morfologicznych NMJ: obszar NMJ, obwód NMJ, liczbę boutonów, długość NMJ, długość najdłuższej gałęzi NMJ, liczbę wysp, liczbę rozgałęzień, liczbę punktów rozgałęzień oraz liczbę aktywnych stref w terminalu NMJ.
Wprowadzenie
Zaburzenia poznawcze, takie jak niepełnosprawność intelektualna, zaburzenia ze spektrum autyzmu i schizofrenia, często charakteryzują się nieprawidłową funkcją synaptyczną1,2,3. Morfologia i funkcja synaps są ze sobą ściśle powiązane; Defekty morfologiczne mogą powodować nieprawidłowe funkcjonowanie synaps i odwrotnie, nieprawidłowa transmisja synaptyczna wpływa na dojrzewanie i morfologię synapty4,5,6.
Zastosowano szereg organizmów modelowych w celu lepszego zrozumienia biologii synaps i rzucenia światła na to, jak zmiany synaptyczne wpływają na funkcjonowanie mózgu w zdrowiu i chorobie7,8,9. Drosophila NMJ jest szeroko przebadanym i dobrze ugruntowanym modelem in vivo dla biologii synaps glutaminergiczne10,11. W ostatnich dziesięcioleciach model ten był wykorzystywany do badań fizjologicznych i skoncentrowanych na genach, a także do badań genetycznych na dużą skalę, w celu wykrycia różnic morfologicznych między NMJ. W szczególności badania genetyczne zidentyfikowały wiele kluczowych regulatorów i mechanizmów leżących u podstaw rozwoju i funkcji synaps12,13,14,15,16. Jednak większość z tych badań przesiewowych opierała się na wizualnej ocenie końcowej morfologii NMJ i jakościowym wykrywaniu nieprawidłowości synaptycznych lub półilościowej ocenie kilku cech morfologicznych. W konsekwencji łatwo przeoczyć dość subtelne nieprawidłowości morfologiczne synaptyczne, które nie są oczywiste dla ludzkiego oka. Aby móc kompleksowo wykryć różnice ilościowe, NMJ musi być dokładnie oceniony poprzez systematyczną kwantyfikację parametrów morfologicznych będących przedmiotem zainteresowania. Ręczny pomiar cech NMJ jest pracochłonny, zwłaszcza gdy istnieje kilka interesujących cech NMJ i/lub podczas wykonywania badań genetycznych na dużą skalę. W celu wsparcia wieloparametrycznej, wysokoprzepustowej analizy morfologicznej i osiągnięcia obiektywnej kwantyfikacji opracowano dwa makra "Drosophila NMJ Morphometrics" i "Drosophila NMJ Bouton Morphometrics" 17. Oba makra działają w oprogramowaniu do analizy obrazów typu open source Fiji18 i umożliwiają kwantyfikację zarówno obrazów konfokalnych, jak i niekonfokalnych.
"Drosophila NMJ Morphometrics" mierzy końcówki NMJ wybarwione immunologicznie postsynaptycznym krążkiem markerowym large-1 (Dlg-1) lub presynaptyczną peroksydazą chrzanową (Hrp), znakowaną markerem strefy aktywnej bruchpilot (Brp). Określa ilościowo dziewięć parametrów morfologicznych (opisanych poniżej): obszar NMJ, obwód NMJ, liczba boutonów, długość NMJ, najdłuższa długość gałęzi NMJ, liczba wysp, liczba gałęzi, liczba punktów rozgałęzień i liczba aktywnych stref w końcu synaptycznym (ryc. 1). Chociaż w tym makrze obecny jest algorytm określający liczbę boutonów, nie spełniał on kryteriów dokładności17. Aby prawidłowo ocenić liczbę zakłuć, konieczne jest użycie makra "Drosophila NMJ Bouton Morphometrics", który jest specjalnie zaprojektowany do ilościowego oznaczania boutonów przy użyciu preparatów NMJ wybarwionych immunologicznie anty-synaptotagminą (Syt) lub białkiem strunowym anty-cysteiny (Csp) i znakowanych immunologicznie z Brp. Makro "Drosophila NMJ Bouton Morphometrics" określa ilościowo następujące parametry: liczba boutonów, obszar bouton NMJ, długość NMJ, najdłuższa długość gałęzi NMJ, liczba wysp, liczba gałęzi, liczba punktów rozgałęzień i liczba aktywnych stref (ryc. 2).
Makra składają się z 3 pod-makr: (I) "Konwertuj na stos" identyfikuje wszystkie dostępne pliki graficzne i tworzy Z-hyperstacki oraz projekcje maksymalnej intensywności obu kanałów. Jako dane wyjściowe to makro wygeneruje dwa nowe pliki na synapsę o nazwach "stack_image_name" i "flatstack_image_name". II) "Zdefiniuj ROI" otworzy kolejno wszystkie obrazy maksymalnej projekcji "flatstack_image_name" i przedstawi je z żądaniem ręcznego zdefiniowania obszaru zainteresowania (ROI), w którym znajduje się określony terminal synaptyczny będący przedmiotem zainteresowania. Zostało to zaimplementowane, aby umożliwić wykluczenie synaps łączących się z sąsiednimi mięśniami i/lub innymi typami zakończeń synaptycznych (takimi jak 1s), które mogą być obecne na obrazach11. (III) "Analizuj" stosuje w pełni zautomatyzowaną analizę obszaru obrazu w granicach ROI. W wyniku tego kroku użytkownik otrzyma dwa nowe pliki: "results.txt", w którym zostaną opatrzone adnotacjami wszystkie pomiary numeryczne, oraz "res_image_name.tif", w którym zostaną zilustrowane segmentacje obrazu utworzone przez makro. Podczas analizy obrazu z każdego zakończenia synaptycznego wyprowadzane są trzy struktury: kontur NMJ, szkielet NMJ i liczba Brp-dodatnich stref aktywnych. Kontur NMJ służy do wyznaczenia obszaru NMJ i jego obwodu, a późniejsze oddzielenie działu wodnego zapewnia liczbę boutonów. Ze szkieletu wyprowadza się pięć cech NMJ: całkowitą długość NMJ, sumę długości najdłuższej ciągłej ścieżki łączącej dowolne dwa punkty końcowe (najdłuższa długość rozgałęzienia), liczbę niepołączonych przedziałów na NMJ (określanych jako "wyspy"), liczbę rozgałęzień i liczbę punktów rozgałęzień (jeden punkt rozgałęzienia łączy trzy lub więcej gałęzi). Liczba stref aktywnych jest określana w kanale Brp poprzez zliczanie plam Brp-dodatnich. Kontur NMJ z adnotacjami (żółta linia), szkielet NMJ (niebieska linia) oraz liczba Brp-dodatnich stref aktywnych (oznaczona białymi ogniskami) są wyświetlane na obrazie wyników, a pomiary parametrów są przetwarzane do (.txt) pliku wyjściowego (rysunek 3).
Drosophila NMJ Morphometrics" i "Drosophila NMJ Bouton Morphometrics" zostały po raz pierwszy opisane i obszernie zweryfikowane przez Nijhof et al.17. Ten manuskrypt skupia się na metodologii analizy morfologii NMJ za pomocą makr "Drosophila NMJ Morphometrics" i "Drosophila NMJ Bouton Morphometrics". Przed analizami wspomaganymi makro należy przeprowadzić sekcje NMJ i barwienie immunologiczne. Są to kluczowe etapy, a kombinacja markerów stosowanych w immunohistochemii musi być odpowiednia do analiz makro. Kroki te są pokrótce wymienione w sekcji 1 niniejszego protokołu i kierują użytkownika do odniesień opisujących szczegółowo protokoły do wykonania tych procedur.
Protokół
1. Wymagania przed przetwarzaniem obrazu
- Wykonaj preparaty Drosophila w otwartej książce larw wędrujących w trzecim stadium rozwojowym (L3), jak wcześniej opisano19.
- Koimmunologiczne terminale Drosophila NMJ przy użyciu kombinacji dwóch markerów: Dlg-1 lub Hrp wraz z Brp do analizy za pomocą "Drosophila NMJ Morphometrics" oraz Syt lub Csp razem z Brp do analizy za pomocą "Drosophila NMJ Bouton Morphometrics"20.
UWAGA: Przeciwciała tego samego gatunku można łączyć poprzez wstępne znakowanie jednego z nich za pomocą zestawu do koniugacji przeciwciał, takiego jak Zenon Alexa Labeling Kits17. - Obrazuj terminale NMJ za pomocą wybranego mikroskopu, np. fluorescencji (z lub bez ApoTome) lub mikroskopii konfokalnej.
- Uzyskaj 2-kanałowy stos obrazów terminala NMJ.
- Dostosuj ustawienia mikroskopu w taki sposób, aby kanał 1 uzyskał terminal NMJ znakowany immunologicznie Dlg-1 (lub Hrp, Syt, Csp), a kanał 2 terminal NMJ znakowany immunologicznie Brp.
- Opcjonalnie analizuj jednokanałowe obrazy (synaps znakowanych immunologicznie pojedynczym przeciwciałem) za pomocą makr. Obraz NMJ znakowane immunologicznie jednoznacznie za pomocą Dlg-1 lub Hrp do analizy za pomocą "Drosophila NMJ Morphometrics" lub Syt lub Csp dla "Drosophila NMJ Bouton Morphometrics".
UWAGA: Nie jest możliwa analiza synaps wybarwionych immunologicznie tylko anty-Brp.
- Eksportuj uzyskane obrazy jako pojedyncze pliki '.tiff. Odwróć kolejność kanałów przed uruchomieniem makr, jeśli nie zostały pobrane zgodnie ze wskazaniami.
- Uzyskaj 2-kanałowy stos obrazów terminala NMJ.
2. Wymagania dotyczące oprogramowania i instalacja
- Pobierz makra: "Drosophila NMJ Morphometrics" i "Drosophila NMJ Bouton Morphometrics" z następującej strony internetowej: https://doi.org/10.6084/m9.figshare.2077399.v121.
- Przesuń kursor do folderu "Aktualizacja makr 1" i kliknij pojawiającą się opcję "widok". Pojawi się lista z zawartością tego folderu. Folder zawiera makra "Drosophila NMJ Morphometrics" i "Drosophila NMJ Bouton Morphometrics".
UWAGA: Oba makra są zgodne z Fidżi w wersji 1.4, która również znajduje się w tym samym folderze. Makra mogą nie działać w najnowszych wersjach. Skorzystaj z dostarczonej wersji 1.4. Uruchomienie tej wersji jest bezproblemowe, nawet na komputerach z dostępną nowszą wersją Fidżi. - Kliknij "Pobierz wszystko". Zawartość folderu zostanie pobrana na komputer jako plik .zip. Rozpakuj pobrany plik.
- Skopiuj pliki Drosophila_NMJ_Morphometrics.ijm i Drosophila_NMJ_Bouton Morphometrics.ijm do Fiji.app/plugins/ katalogu. Po ponownym uruchomieniu programu makra pojawią się na dole menu rozwijanego Wtyczki.
3. Uruchom makro podrzędne "Konwertuj na stos", aby utworzyć projekcje Z i hiperstosy obrazów NMJ
- Uruchom interfejs graficzny, wybierając Wtyczki na pasku narzędzi i wybierz "Drosophila NMJ Morphometrics" z menu rozwijanego.
- Zdefiniuj ustawienie "Unikalny ciąg pliku" w interfejsie graficznym makra.
UWAGA: Oprogramowanie mikroskopu wykorzystuje sygnaturę identyfikacyjną do organizowania płaszczyzn i kanałów podczas przechowywania stosów jako indywidualnych plików ".tiff". Wprowadzone unikalne ustawienie ciągu pliku musi określać sygnaturę przypisaną przez oprogramowanie do pierwszej płaszczyzny pierwszego kanału (ważne: należy wskazać najniższą płaszczyznę i numer kanału). - Wybierz tylko makro podrzędne "Konwertuj na stos" i kliknij "ok" i wybierz folder, w którym znajdują się obrazy. Jeśli wybrany jest katalog główny z kilkoma podfolderami, przetwarzane będą wszystkie pojedyncze pliki '.tiff w głównym katalogu i podfolderze spełniające kryteria unikalnego ciągu pliku.
- Jeśli stos z zawiera tylko jeden kanał, zaznacz pole "Tylko kanał 1".
- Zwróć uwagę, że pojawią się dwa nowe pliki na obraz NMJ, domyślnie określane jako stack_image_name i flatstack_image_name. Przechowuj tylko te stosy i płaskie stosy do dalszej analizy. W tym momencie można usunąć .tiff serie plików, minimalizując wymaganą pojemność pamięci masowej i unikając potencjalnych źródeł błędów.
4. Uruchom makro podrzędne "Zdefiniuj ROI", aby wyznaczyć terminal NMJ będący przedmiotem zainteresowania
- Uruchom interfejs graficzny "Drosophila NMJ Morphometrics".
- Zaznacz tylko pole wyboru "Zdefiniuj ROI" i naciśnij "OK" i wybierz główny katalog, w którym przechowywane są obrazy zatytułowane flatstack_name i naciśnij "Wybierz". Podmakro "Zdefiniuj ROI" automatycznie przeszukuje wszystkie podfoldery w wybranym katalogu głównym.
- Gdy otworzy się pierwsza projekcja, wybierz narzędzie "Zaznaczanie odręczne" na pasku narzędzi.
- Za pomocą myszy narysuj zaznaczenie, które zawiera wyłącznie cały terminal NMJ, który Cię interesuje i kliknij "OK" w oknie "Zdefiniuj terminal". Makro przejdzie do następnej projekcji.
- Nakreśl następny zwrot z inwestycji i powtarzaj tę czynność, aż wszystkie zwroty akcji zostaną zdefiniowane. Plik obrazu ROI o nazwie "roi_image_name" będzie przechowywany w tym samym katalogu, co wcześniej wygenerowane obrazy stosu i projekcji dla każdego z przetworzonych obrazów. Wynikiem tego submakro jest binarny obraz ROI w kolorze białym na czarnym tle.
5. Uruchom makro podrzędne "Analizuj", aby określić ilościowo cechy terminala NMJ
- Przejdź do paska narzędzi, wybierz "Wtyczki" i użyj:
"Drosophila_NMJ_Morphometrics" podczas analizy synaps znakowanych immunologicznie anty-Dlg-1 lub anty-Hrp (kanał 1) razem z anty-Brp (kanał 2) lub "Drosophila_NMJ_Bouton_Morphometrics" podczas analizy synaps znakowanych immunologicznie anty-Syt lub anty-Csp (kanał 1) razem z Brp (kanał 2).- Gdy mają być analizowane stosy obrazów jednokanałowych (kanał strukturalny Dlg-1 lub HRP dla "Drosophila_NMJ_Morphometrics" lub Syt lub Csp dla "Drosophila_NMJ__Bouton_Morphometrics), zaznacz pole "Tylko kanał 1".
- Dostosuj skalę odpowiadającą obrazom, które mają być analizowane.
- Jeśli jeden piksel na obrazie odpowiada 2,5 μm, wskaż Scale-Pixels = 1, Scale-Distance w μm = 2,5. W przypadku, gdy oba ustawienia pozostaną na 0, obszar NMJ, obwód, długość i najdłuższa długość gałęzi zostaną wyrażone w liczbie pikseli.
- W razie potrzeby dostosuj domyślne ustawienia analizy makra. Regulacje należy wykonywać tylko wtedy, gdy makro podrzędne "Analizuj" zostało wcześniej uruchomione z niezadowalającymi wynikami (patrz koniec tej sekcji i sekcja 6, aby uzyskać instrukcje dotyczące optymalizacji ustawień).
- Zaznacz pola wyboru "Analizuj" i "Czekaj" i naciśnij "OK".
- Zaznacz pole wyboru "Czekaj" podczas uruchamiania makra podrzędnego "Analizuj" na obrazach 2 kanałów. W przeciwnym razie mogą wystąpić błędy w zliczaniu aktywnych stref z powodu ograniczonej pojemności komputera.
- Gdy otworzy się nowe okno "Wybierz katalog", wybierz katalog, w którym znajdują się obrazy i naciśnij "wybierz". Makro przeanalizuje wszystkie obrazy przechowywane w katalogu głównym oraz, w stosownych przypadkach, w kolejnych folderach (przy użyciu trzech plików z wykonania poprzednich makr podrzędnych: stack_image_name, flatstack_image_name i roi_image_name). Makro przetwarza każdy obraz indywidualnie i po kolei. Może to potrwać kilka minut na stos obrazów (w zależności od pojemności komputera).
- Po uruchomieniu makra należy pamiętać, że nowy plik obrazu o nazwie res_image_name dla każdej analizowanej synapsy przechowywanej zostanie utworzony w folderze nadrzędnym. Pomiary ilościowe zostaną zapisane jako plik "results.txt".
- Sprawdź wszystkie obrazy wynikowe, aby wykryć i wykluczyć obrazy z błędami segmentacji. Możliwe błędy segmentacji opisano w tabeli 3 wraz z poradami, jak dostosować ustawienia, aby obejść te błędy. Obrazy wynikowe z takimi błędami segmentacji przedstawiono jako przykłady na rysunku 4.
UWAGA: Podczas uruchamiania makra z domyślnymi ustawieniami zaobserwowanymi w interfejsie użytkownika, dokładność makra została porównana z oceną ręczną17.
6. Dostosuj ustawienia makr do obrazów
- Jeśli więcej niż 5% obrazów wykazuje błędy segmentacji, zapoznaj się z różnymi algorytmami, aby zdefiniować/wybrać najbardziej odpowiednie ustawienia makr dla obrazów.
- Dostosuj wartość promienia toczącej się kulki
UWAGA: Funkcja promienia toczącej się kuli odejmuje tło obrazu. Funkcja ta ma kluczowe znaczenie podczas pracy z obrazami uzyskanymi za pomocą mikroskopów fluorescencyjnych i/lub gdy obrazy mają wysoki poziom szumów tła. Odjęcie tła pomoże krokom automatycznego progowania makra w uzyskaniu odpowiedniej segmentacji terminali NMJ.- Wybierz trzy obrazy NMJ stack_image_name wygenerowane przez makro podrzędne "Konwertuj na stos". Wybierz obrazy, które są reprezentatywne dla zestawu danych obrazu.
- Na pasku narzędzi wybierz opcję Obraz | Kolor | Podziel kanały. Zostaną utworzone dwa stosy obrazów, jeden reprezentujący odpowiednio kanał 1, a drugi kanał 2, i zostaną one zapisane.
- Otwórz stos obrazów należący do otwartego kanału 1, odpowiadający immunoznakowaniu Dlg-1, Hrp, Syt lub Csp.
- Uruchom filtr "Odejmij tło", wybierając "Proces" na pasku narzędzi, a następnie "Odejmij tło..." z menu rozwijanego.
- Kliknij pole wyboru podglądu w wyskakującym oknie i dostosuj promień toczącej się kuli do wartości najbardziej odpowiedniej dla obrazów. Ustawienie "Promień toczącej się kuli" powinno być dostosowane do wartości zwiększających kontrast między synapsą a tłem (patrz Rysunek 5A').
- Zobacz przykład Rysunek 5. W panelu A części synapsy wykazują te same poziomy szarości co tło, podczas gdy w Rysunek 5 panel A' "Promień toczącej się kuli" wynoszący 500 powoduje silny kontrast między synapsą a tłem.
- Utwórz projekcję z, wybierając na pasku narzędzi Obraz | Stos| Projekcja Z, wybierz Typ projekcji = Maksymalna intensywność i zapisz wynikowy obraz. Po zdefiniowaniu odpowiedniej wartości promienia toczącej się kuli uruchom algorytm "Odejmij tło" na pozostałych reprezentatywnych obrazach o tej samej wartości promienia toczącej się kuli. Utwórz projekcje Z i zapisz je (w dowolnym katalogu).
UWAGA: Wartość promienia toczącej się kuli dla obrazów 8-bitowych lub RGB powinna być co najmniej tak duża, jak promień największego obiektu na obrazie, który nie jest częścią tła. W przypadku obrazów 16-bitowych i 32-bitowych promień powinien być odwrotnie proporcjonalny do zakresu wartości pikseli22.
- Określ różne progi automatyczne, które będą używane
- Otwórz projekcje Z zapisane w poprzednim kroku (6.2.6) i wybierz Obraz | Dostosuj | Funkcja AutoThreshold | Wypróbuj wszystkie.
- Ponieważ binarny obraz wynikowy z progiem pojawi się z różnymi algorytmami automatycznego progu, określ najbardziej odpowiedni algorytm dla obrazów.
- Podczas późniejszego uruchamiania makra należy odpowiednio zmienić próg w ustawieniach makra.
- Użyj bardziej restrykcyjnych progów, takich jak "RenyiEntrophy" lub "Moments" jako progu konspektu NMJ i bardziej liberalnych progów, takich jak "Li" do określenia szkieletu NMJ i "Huang" do określenia stref aktywnych. Gdy obrazy są bardzo ostre z niewielką ilością tła lub bez niego, użyj "Huang" jako "progu konturu NMJ". W przeciwnym razie po segmentacji obrazu może brakować części synapsy.
- Zobacz rysunek 5B, aby zapoznać się z przykładem. Odpowiednią segmentację synapsy uzyskuje się za pomocą autoprogów podświetlonych zielonymi polami. Niektóre przykłady nieodpowiednich progów są wyróżnione czerwonymi ramkami (sprawdź synapsy przy dużym powiększeniu). W tym drugim przypadku albo brakuje części synapsy, albo zawarte są części tła. Więcej informacji można znaleźć w odnośniku 23.
- Określ maksymalny rozmiar małych cząstek
UWAGA: Ta funkcja wykluczy z analizy wszystkie cząstki wykryte przez próg konturu NMJ i próg szkieletu, które są mniejsze niż zdefiniowana wartość w "ustawieniu małych cząstek". Wartość ta jest definiowana w pikselach. Ta funkcja służy jako filtr szumów i jest bardzo przydatna, gdy w uzyskanych obrazach występują duże ilości niejednorodnego tła (takiego jak kryształy/kurz).- Otwórz projekcje Z zapisane w kroku 6.2.6. i ustaw skalę tak, aby wykrywała liczbę pikseli za pomocą opcji Analizuj | Ustaw skalę. Zastosuj następujące ustawienia: odległość w pikselach = 1, znana odległość = 1, proporcje pikseli = 1, jednostka długości = piksel i naciśnij "OK". Kliknij narzędzie "Owalne zaznaczenie" na pasku narzędzi.
- Za pomocą myszy narysuj zaznaczenie ściśle otaczające pojedyncze cząstki, które są obecne w barwieniu immunologicznym, ale nie należą do NMJ. Naciśnij Ctrl+m dla użytkownika systemu Windows lub cmd+m dla użytkowników komputerów Mac. Otworzy się okno wyników, wskazujące obszar cząstek wybranych w liczbie pikseli.
- Powtórz poprzedni krok kilka razy z kilkoma artefaktami obecnymi na obrazach, aby określić największy obszar zanieczyszczającej cząstki/artefaktu. Będzie to wartość, którą należy ustawić w ustawieniu podczas późniejszego uruchamiania makra. Podczas uruchamiania makra ustaw "Rozmiar małych cząstek" jako najmniejszy rozmiar cząstek, obserwowany ropa margines 25%.
- Zobacz rysunek 5D, aby zapoznać się z przykładem. Największy wykryty kryształ ma powierzchnię 112 pikseli. Ustawienie "Rozmiar małych cząstek" podczas przetwarzania tego obrazu za pomocą makra powinno być ustawione na 125 - 150.
- Określ minimalny rozmiar butonu
UWAGA: Ta funkcja wykluczy z analizy wszystkie butony wykryte przez próg konturu NMJ, które są mniejsze niż zdefiniowana wartość. Wartość ta jest definiowana w pikselach.- Wykonaj te same kroki, jak opisano w sekcji 6.4, ale w tym przypadku narysuj zaznaczenie otaczające najmniejsze butony obecne w terminalu NMJ. Wybierz najmniejszy obszar odpowiadający najmniejszemu z mierzonych obszarów. Jest to wartość, którą należy ustawić w ustawieniu minimalnego rozmiaru butonu podczas późniejszego uruchamiania makra.
- Określ wartość "Maksymalna tolerancja hałasu"
- Aby zdefiniować wartość "Znajdź maksymalną tolerancję szumu" dla makra, otwórz kanał 2 Z-stack zapisany w sekcji 6.2.2.
- Przejdź do zakładki wtyczki w menu podręcznym, wybierz Proces | Maksimum (3D), a gdy pojawi się maximum_image_name (co może potrwać kilka minut), zamknij oryginalny stos obrazów.
- Wybierz Maximum..._image_name (nowo uzyskany stos obrazów) i wybierz Wtyczki | Proces | Minimum (3D), gdy pojawi się nowy obraz Minimum Maximum..._image_name zamknij stos Maksimum ... _image_name.
- Na pasku narzędzi wybierz pozycję Proces | Znajdź maksima.... Otworzy się nowe okno "Znajdź maksima...". Zaznacz pole wyboru "Podgląd wyboru punktu..." i wypełnij pole "Tolerancja hałasu" domyślnym ustawieniem makra 50. Punkty maksimów zostaną wskazane na obrazie jako małe krzyżyki.
- Zwiększ wartość "Tolerancja szumu" w przypadku zaobserwowania nadmiaru stref aktywnych z adnotacjami, tj. krzyżyków, które nie znajdują się nad aktywnymi strefami, które nie są ostre na wybranej płaszczyźnie stosu, lub fałszywych stref aktywnych, które są wykrywane w tle.
- Z drugiej strony, w przypadku obserwacji niekompletnie opisanych stref aktywnych, tj. nierozpoznania aktywnych stref w ostrości, należy zmniejszyć wartość "Maksymalna tolerancja szumu". Kontynuuj wypróbowywanie różnych wartości, postępując zgodnie z tą procedurą, aż krzyżyki odpowiednio oznaczą aktywne strefy w ostrości. Wypełnij pole "Znajdź maksymalną tolerancję hałasu" tą wartością.
- Zobacz Rysunek 5C dla przykładu. Wykryto zbyt wiele aktywnych stref. W Rysunek 5C' tylko aktywne strefy są wykrywane podczas zwiększania wartości "Maksymalna tolerancja hałasu".
- Zwiększ wartość "Tolerancja szumu" w przypadku zaobserwowania nadmiaru stref aktywnych z adnotacjami, tj. krzyżyków, które nie znajdują się nad aktywnymi strefami, które nie są ostre na wybranej płaszczyźnie stosu, lub fałszywych stref aktywnych, które są wykrywane w tle.
- Uruchom makro podrzędne "Analizuj" dla reprezentatywnych obrazów wybranych w kroku 5.1 z ustawieniami zdefiniowanymi we wszystkich poprzednich krokach.
- Dostosuj dolny i górny próg Brp-puncta
- Zwróć uwagę, że po uruchomieniu makra zgodnie z krokiem 6.6 pojawi się nowy plik o nazwie 2_active_zone_stack_image_name. W tym stosie obrazów aktywne strefy wykryte przez funkcję "Znajdź maksima" są oznaczone białymi kropkami w każdej płaszczyźnie.
- Otwórz ten plik, przeciągając go i upuszczając na pasek narzędzi i wybierz Obraz | Stos | Projekt Z | Typ projekcji = Suma wycinków. Uzyskany zostanie rzut 2_active_zone_stack_image_name.
- Wybierz punkt menu Obraz | Dostosuj | Próg. Otworzy się nowe okno "Próg". Przesuń górny pasek, aby wybrać wartość progową, w której wszystkie pożądane ogniska/Brp-dodatnie punkty są wizualizowane na czerwono.
UWAGA: Jeśli próg jest ustawiony zbyt nisko, zostanie zliczony nadmiar aktywnych stref. Jeśli zostanie ustawiona zbyt wysoko, część aktywnych stref zostanie pominięta.- Zobacz przykład Rysunek 5E. Gdy próg jest ustawiony na 400, większość aktywnych stref (symbolizowanych jako ogniska 1 piksela) nie jest uwzględniana w segmentacji, ponieważ nie są one podświetlone na czerwono (Rysunek 5E). Gdy próg jest ustawiony na wartość 50, wszystkie aktywne strefy są podświetlone na czerwono (Rysunek 5E').
- Zdefiniuj tę wartość jako minimalny próg. Pozostaw "Górny próg punktowy" na wartości maksymalnej.
- Uruchom ponownie makro podrzędne "Analizuj" dla reprezentatywnych obrazów z ustawieniami zdefiniowanymi we wszystkich poprzednich krokach tej sekcji. Krytycznie oceń wynikowe pliki graficzne i upewnij się, że segmentacja została wykonana prawidłowo. Jeśli tak nie jest, dostosuj ustawienia zgodnie z naturą błędów segmentacji (Rysunek 4, Tabela 3).
Wyniki
Plik z wynikami w formacie tekstowym pojawi się w katalogu głównym. Podsumowuje on wszystkie zmierzone parametry dla każdego obrazu. Wyniki są powiązane z nazwą pliku, a parametry zostały następnie zestawione w kolejności wskazanej w Tabelach 1 i 2.
Res_image_name to stos trzech obrazów. Pierwszy obraz podkreśla obrys i szkielet terminali NMJ wyznaczone przez makro na podstawie kanału 1 (immunoznakowanie Dlg-1, Hrp, Syt lub Csp). Drugi obraz jest kopią pierwszego obrazu i dodatkowo pokazuje zidentyfikowane punkty dodatnie dla Brp, które są wykrywane w kanale 2 jako schematyczne ogniska. Trzeci obraz przedstawia projekcję maksymalną drugiego kanału wraz ze zidentyfikowanymi ogniskami dodatnimi dla Brp.
Próg obrysu NMJ jest zaznaczony kolorem żółtym na obrazie wynikowym z makra. Na podstawie tego progu wyznacza się powierzchnię NMJ, obwód oraz liczbę butonów.
Próg szkieletu NMJ jest zaznaczony na niebiesko na obrazie wynikowym z makra. Na podstawie tego progu wyznacza się długość NMJ, długość najdłuższej gałęzi, liczbę gałęzi, punkty rozgałęzień oraz wyspy.
Próg stref aktywnych NMJ nie jest przedstawiony na obrazie wynikowym z makra. Próg ten określa obszar, w którym makro potencjalnie może zidentyfikować ogniska Brp-dodatnie. Ma on na celu stworzenie obszaru NMJ nieco większego niż ten zdefiniowany przez próg konturu NMJ. W przypadku wybrania zbyt restrykcyjnego progu, ogniska Brp-dodatnie znajdujące się na marginesie synapsy mogą zostać pominięte. Gdy próg jest zbyt liberalny, szum tła może zostać policzony jako punkty Brp-dodatnie (Ryciny 1 - 2).
Aby zwalidować działanie makra „Drosophila NMJ Morphometrics”, przetestowano trzy warianty mutantów, u których opisano już defekty synaptyczne w różnych parametrach NMJ. Każdy defekt wykryto za pomocą innej procedury segmentacji obrazu wykonywanej przez makro (odpowiednio: obrys NMJ, szkielet lub strefy aktywne17). Po wyciszeniu trzech wybranych genów za pomocą indukowalnego RNAi oraz przeprowadzeniu sekcji i immunostynowania NMJ larw L3, uruchomiono makro. Uzyskane pomiary morfologiczne NMJ porównano następnie parami (RNAi względem kontroli) przy użyciu testu t. We wszystkich trzech przypadkach stwierdzono różnice statystyczne między mutantami a kontrolami w parametrach zgodnych z wcześniej zgłaszanymi defektami morfologicznymi. Potwierdza to, że makra są rzeczywiście w stanie w sposób adekwatny zidentyfikować wcześniej opisane defekty w NMJ Drosophila.
Ankyrin 2 (Ank2, CG42734) mutanty wykazują znane defekty morfologii synaptycznej, w tym zlane pęcherzyki synaptyczne (boutons) oraz mniejsze złącza nerwowo-mięśniowe (NMJ). Defekty te zaobserwowano u mutantów Ank224,25 oraz u much z obniżoną ekspresją Ank2 (knockdown)26. Zakończenia NMJ u much z pan-neuronalnym wyciszeniem Ank2-RNAi (w;UAS-Dicer-2/UAS-Ank2 RNAi KK107238;elav-Gal4/+) wykazały istotnie mniejszą powierzchnię NMJ (średnia = 339,25 µm2; t-test p = 2,18 x 10⁻⁸) i obwód (średnia = 238,24 µm; t-test p = 1,82 x 10⁻³) w porównaniu z zestawem kontrolnym tła genetycznego (w;UAS-Dicer-2/UAS-KK60100;elav-Gal4/+) (odpowiednio średnia = 451,95 µm2 i średnia = 288,62 µm) po przeprowadzeniu analizy „Drosophila NMJ Morphometrics” (Ryciny 6A & 4B).
GTPaza Rab3 (CG7576) jest niezbędny do prawidłowej dystrybucji bruchpilot oraz rup mutant wykazuje znacznie zmniejszoną liczbę stref aktywnych27Zaobserwowano znaczny spadek liczby stref aktywnych podczas pomiaru ognisk pozytywnych w kierunku Brp za pomocą "Muszka owocówka Morfometria NMJ" makrofagi w zakończeniach NMJ neuronów pan-neuronalnych Rab3 muchy z wyciszeniem genu (w;UAS-Dicer-2/UAS-RNAi KK100787;elav-Gal4) . Średnia liczba stref aktywnych na terminal nerwowo-mięśniowy (NMJ) w Rab3-RNAi wyniosło 138, w przeciwieństwie do 290 wykrytych w zbiorze danych kontrolnych (/+) test t p = 4,43 x 10⁻²⁹) (Rycina 6A & 4C).
Highwire (hiw, CG32592) jest ważnym regulatorem wzrostu NMJ; mutacje w genie hiw prowadzą do przerostu i zwiększonego rozgałęzienia zakończeń NMJ28. Podczas pomiaru zakończeń NMJ w linii z pan-neuronalnym knockdownem Hiw-RNAi (w;UAS-Dicer-2/UAS-RNAi-GD36085;elav-Gal4/+) przy użyciu narzędzia „Drosophila NMJ Morphometrics”, zaobserwowano istotne różnice w parametrach pochodnych szkieletu: długości (średnia = 147,36 µm; średnia kontrolna = 122,07 µm; t-test p = 7,31 x 10⁻⁷), długości najdłuższego odgałęzienia (średnia = 122,19 µm; średnia kontrolna = 105,65 µm; t-test p = 4,62 x 10⁻⁴), liczby odgałęzień (średnia = 7,69; średnia kontrolna = 5,74; t-test p = 2,52 x 10⁻²) oraz liczby punktów rozgałęzień (średnia = 2,73; średnia kontrolna = 1,79; t-test p = 3,31 x 10⁻²). Wszystkie te parametry były istotnie zwiększone (120 – 180%) w porównaniu z kontrolami tła genetycznego (w;UAS-Dicer-2/UAS-GD60000;elav-Gal4/+) (Ryciny 6A & 4D).
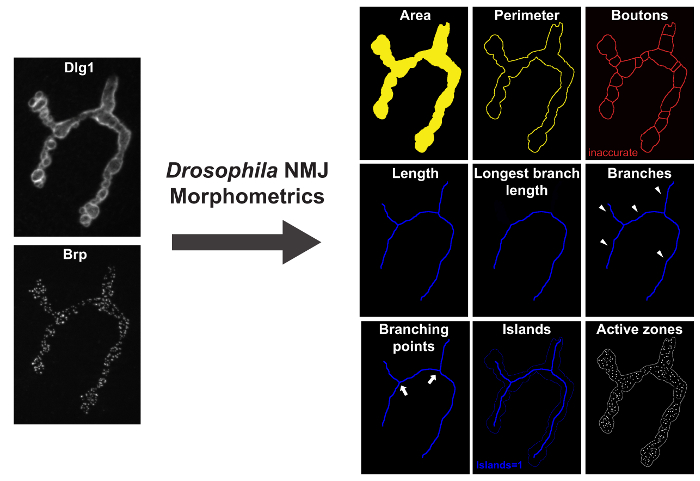
Rycina 1: Drosophila_NMJ_Morphometrics mierzy 9 parametrów NMJ u Drosophila. Po lewej stronie znajdują się immunoznakowane terminale NMJ dla Dlg-1 i Brp, obrazowane za pomocą mikroskopu fluorescencyjnego z systemem ApoTome. Po prawej stronie znajdują się obrazy wynikowe po uruchomieniu programu „Drosophila NMJ Morphometrics”. Parametry pola powierzchni, obwodu i boutonów są reprezentowane przez wskazaną żółtą obrysowaną adnotację makra. Parametry długości, długości najdłuższej gałęzi (LBL), liczby gałęzi, punktów rozgałęzień i wysp są przedstawione przez niebieską obrysowaną adnotację makra. Ogniska immunoznakowane Brp (strefy aktywne) są reprezentowane przez makro jako białe punkty na obrazach wynikowych. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
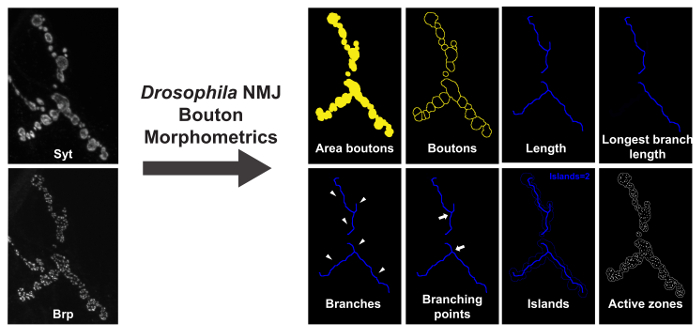
Rycina 2: Drosophila NMJ Bouton Morphometrics mierzy 8 parametrów NMJ u Drosophila. Po lewej stronie znajduje się terminal NMJ z immunoznakowaniem Syt-1 i Brp, obrazowany za pomocą mikroskopu fluorescencyjnego z systemem ApoTome. Po prawej stronie znajdują się obrazy wynikowe po uruchomieniu programu „Drosophila NMJ Bouton Morphometrics”. Parametry boutonów oraz powierzchni boutonów są reprezentowane przez żółty obrys naniesiony automatycznie. Parametry długości, długości najdłuższej gałęzi (LBL), liczby gałęzi, punktów rozgałęzień oraz wysp są reprezentowane przez niebieski obrys naniesiony automatycznie. Ogniska immunoznakowane Brp (strefy aktywne) są reprezentowane przez makro jako białe plamki na obrazach wynikowych. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
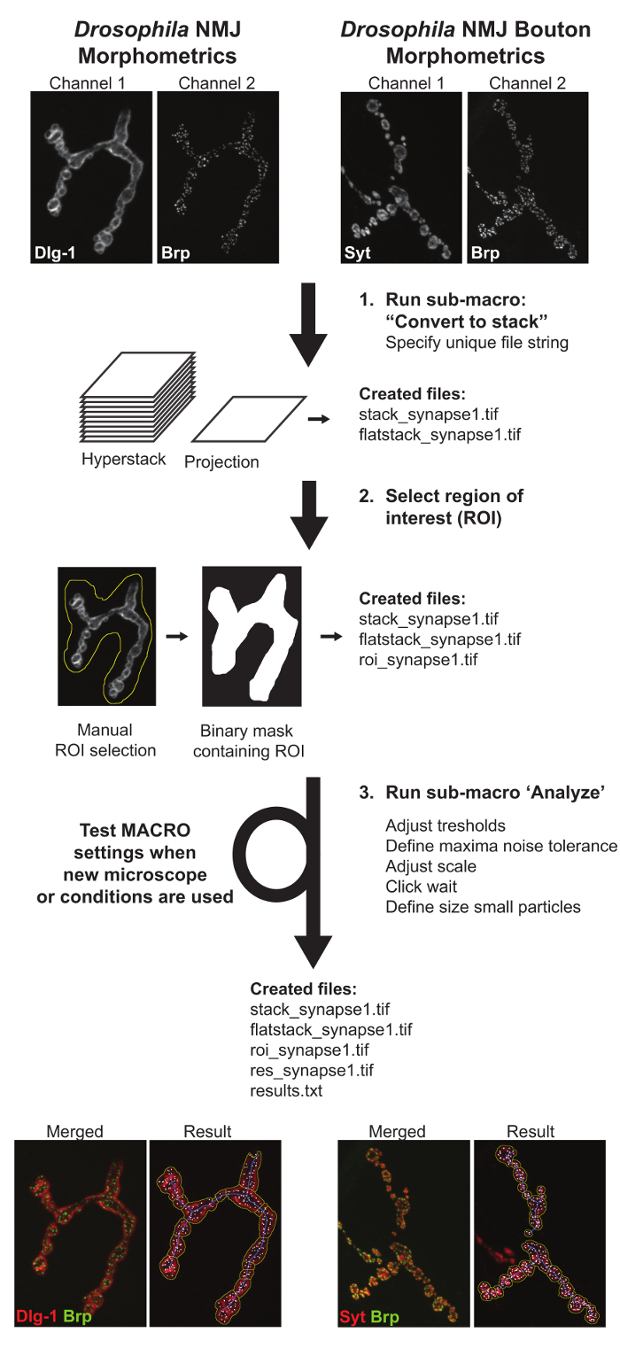
Rycina 3: Schemat blokowy przedstawiający makra do morfometrii NMJ u Drosophila oraz makra do morfometrii boutonów NMJ u Drosophila. Pierwsze submako „Convert to stack” tworzy projekcje i hiperstosy obrazów NMJ. Drugie submako „Define ROI” wymaga ręcznego określenia lokalizacji badanego zakończenia NMJ. Trzecie submako „Analyze” mierzy wszystkie parametry NMJ. W celu ułatwienia oceny działania makra tworzony jest plik tekstowy zawierający wartości ilościowe oraz plik obrazu z wynikami przedstawiający wyznaczenie parametrów. W przypadku pozyskiwania obrazów w różnych warunkach ustawienia makra muszą zostać przetestowane i skorygowane, aby zapewnić dokładną analizę. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
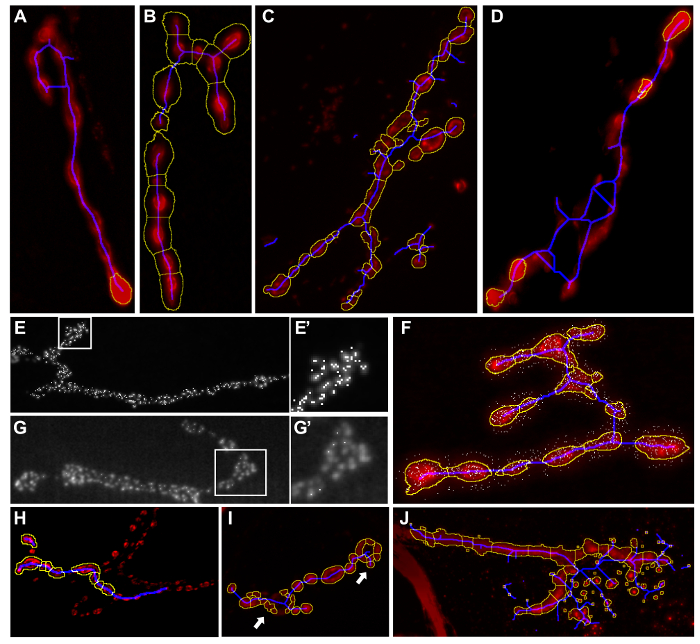
Rycina 4: Przykłady nieprawidłowych wyników makrosegmentacji. Obrazy wynikowe po uruchomieniu modułów „Drosophila NMJ Morphometrics” lub „Drosophila NMJ Bouton Morphometrics”. Fragmenty terminala synaptycznego nie zostały ujęte w żółtym obrysie (A). Fragmenty tła zostały włączone do terminala synaptycznego w żółtym obrysie (B). Niebieska linia szkieletu wykracza poza terminal synaptyczny (C - D). Wykryto zbyt wiele stref aktywnych (E - E'). Niektóre strefy aktywne nie zostały wykryte podczas analizy (G - G'). Strefy aktywne zostały wykryte poza synapsą (F). Nieprawidłowa segmentacja butonów (dotyczy tylko uruchomienia Drosophila NMJ Bouton Morphometrics) – pominięto niektóre butony (H) lub segmentacja wykryła zbyt wiele butonów (I). Cząsteczki, takie jak kryształy lub kurz, stanowiące część tła, zostały włączone do segmentacji (J). Informacje o tym, jak zmienić ustawienia, aby uniknąć tych błędów, znajdują się w Tabeli 3. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
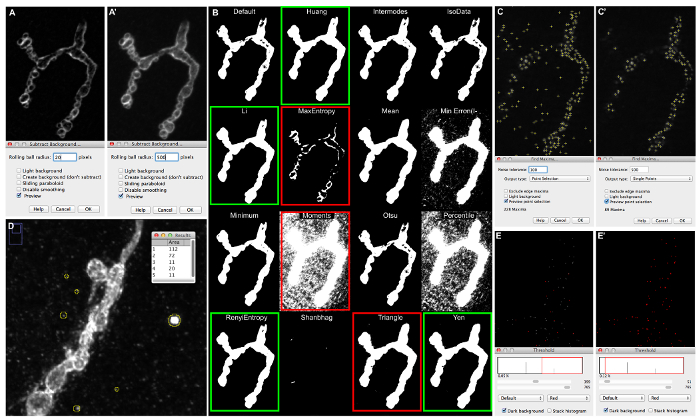
Rycina 5: Przykłady dostosowań makroustawień i ich wpływ na segmentację obrazu. (A) Podgląd odejmowania tła synapsy immunoznakowanej Dlg-1, obrazowanej za pomocą mikroskopu fluorescencyjnego z systemem ApoTome, gdy „Rolling ball radius” jest ustawiony na 20 (A) lub 500 (A'). (B) Obrazy wyjściowe uzyskane po uruchomieniu Image | Adjust | Auto-Threshold | Try all the, ilustrujące segmentację obrazu uzyskaną za pomocą 16 różnych algorytmów automatycznego progowania. (C) Podgląd „Find Maxima” przy ustawieniu „Noise tolerance” na 50 (C) i 500 (C'); strefy aktywne wykryte podczas segmentacji są oznaczone małym krzyżykiem. (D) Pomiar „małych cząstek” pojawiających się w tle obrazu synapsy immunoznakowanej przeciwciałem anty-Hrp, obrazowanej za pomocą mikroskopu konfokalnego. (E) Projekcja „Sum slices” uzyskana z pliku 2_active_zone_stack_ima-ge_name. Próg jest ustawiony na 400 (E) oraz na 50 (E'). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
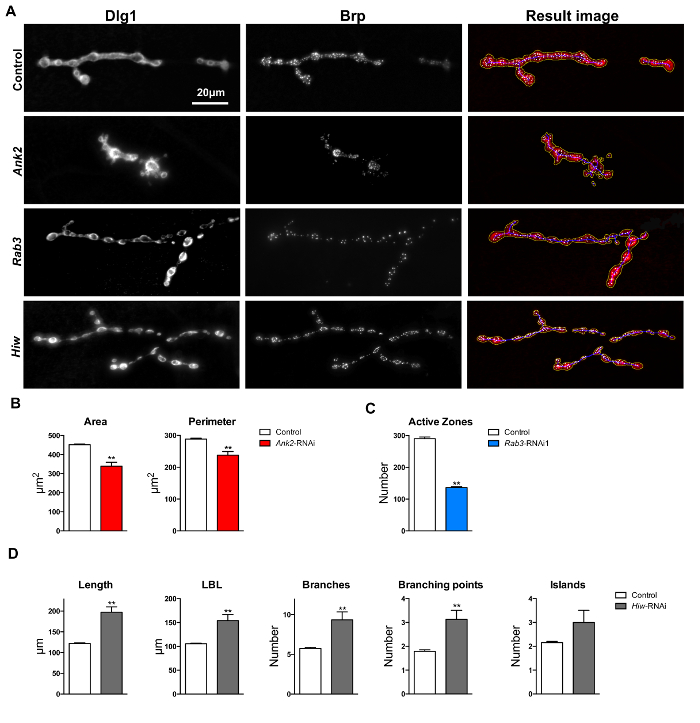
Rycina 6: Makroskopowa ocena i kwantyfikacja NMJ w mięśniu 4. (A) Obrazy wynikowe po uruchomieniu makra „Drosophila NMJ Morphometrics” na zakończeniach NMJ immunoznakowanych przeciwciałami przeciwko Dlg-1 i Brp. Parametry takie jak powierzchnia, obwód i boutons są reprezentowane przez zaznaczoną przez makro żółtą linię. Parametry długości, długości najdłuższej gałęzi (LBL), liczby gałęzi, punktów rozgałęzień i wysp są reprezentowane przez zaznaczoną przez makro niebieską linię. Ogniska immunoznakowane Brp (strefy aktywne) są reprezentowane przez makro jako białe kropki na obrazach wynikowych. Pasek skali wskazuje 20 µm. (B) Wyciszenie Ankyrin2 RNAi wykazuje mniejszą powierzchnię i obwód NMJ w porównaniu do kontroli tła genetycznego. (C) Wyciszenie Rab3 spowodowało powstanie NMJ z mniejszą liczbą Brp-dodatnich stref aktywnych w porównaniu do kontroli tła genetycznego. (D) Wyciszenie Highwire spowodowało powstanie dłuższych zakończeń NMJ, o większej długości najdłuższej gałęzi, bardziej rozgałęzionych i z większą liczbą punktów rozgałęzień na zakończenie NMJ w porównaniu do kontrolnych NMJ tła genetycznego. Słupki błędów wskazują SEM, ** p < 0.01, dwustronny test T. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
| Parametr | Struktura NMJ | Wyjaśnienie |
| Powierzchnia (µm2) | Obrys NMJ | Powierzchnia w całości oznakowanej NMJ |
| Obwód (µm) | Obrys NMJ | Obwód odpowiadający danej powierzchni |
| #Boutons | Obrys NMJ | Liczba butonów synaptycznych („perełek na sznurku”) NMJ |
| Długość (µm) | Szkielet | Całkowita długość pełnej końcówki NMJ |
| Długość najdłuższej gałęzi (µm) | Szkielet | Suma długości najdłuższej ciągłej ścieżki łączącej dwa dowolne punkty końcowe NMJ |
| #Gałęzi | Szkielet | Całkowita liczba gałęzi |
| #Punktów rozgałęzień | Szkielet | Liczba punktów rozgałęzień (z jednego punktu rozgałęzień może wychodzić kilka gałęzi) |
| #Wysp | Szkielet | Liczba niepołączonych, Dlg1-dodatnich przedziałów synaptycznych (lub innych barwień) |
| #Stref aktywnych | Plamki Brp-dodatnie | Liczba stref aktywnych na podstawie barwienia Brp |
Tabela 1: Parametry NMJ mierzone przez program „Drosophila NMJ Morphometrics”.Parametry NMJ mierzone przez makro „Drosophila NMJ Morphometrics” zostaną wyświetlone w formie listy w otrzymanym pliku tekstowym, zgodnie z kolejnością opisaną w poniższej tabeli. Tabela została przedrukowana z pracy Nijhof et al.17
| Parametr | Struktura NMJ | Wyjaśnienie |
| Przyciski | Zarys NMJ (złącza nerwowo-mięśniowego) | Liczba pęcherzyków synaptycznych („pereł na sznurku”) połączenia nerwowo-mięśniowego (NMJ) |
| Obszar butonowy | Zarys NMJ (złącza nerwowo-mięśniowego) | Całkowita powierzchnia wszystkich zakończeń presynaptycznych |
| Długość (µm) | Szkielet | Całkowita długość kompletnego zakończenia NMJ |
| Najdłuższa długość gałęzi (µm) | Szkielet | Suma długości najdłuższej ciągłej ścieżki łączącej dowolne dwa punkty końcowe połączenia nerwowo-mięśniowego (NMJ) |
| #Gałęzie | Szkielet | Całkowita liczba odgałęzień |
| #Punkty rozgałęzienia | Szkielet | Liczba punktów rozgałęzień (z jednego punktu rozgałęzień może wychodzić kilka odgałęzień) |
| #Wyspy | Szkielet | Liczba niepołączonych przedziałów synaptycznych wykazujących pozytywność na Dlg1 (lub jakiekolwiek inne barwienie) |
| #Strefy aktywne | Plamki dodatnie w kierunku Brp | Liczba stref aktywnych na podstawie barwienia Brp |
Tabela 2: Parametry NMJ mierzone za pomocą „Drosophila NMJ Bouton Morphometrics”. Parametry NMJ mierzone przez makro „Drosophila_Bouton_NMJ_Morphometrics” pojawią się w formie listy w otrzymanym pliku tekstowym, zgodnie z kolejnością opisaną w poniższej tabeli. Tabela została przedrukowana z pracy Nijhof et al.17
| Segmentacja | Zaobserwowane błędy | Przykład | Wymagane korekty | |
| Pole i obwód NMJ (reprezentowane przez żółty kontur na obrazie wynikowym) | Części zakończenia synaptycznego nie zostały uwzględnione w żółtym konturze lub fragmenty tła zostały włączone do obrysowanego na żółto zakończenia synaptycznego. | Rycina 5A-B | Dostosuj wartość „Rolling Ball Radius”. Patrz sekcja 6.1. | Dostosuj „NMJ outline threshold”. Patrz sekcja 6.2. |
| Parametry związane z długością NMJ (reprezentowane przez niebieską linię szkieletową na obrazie wynikowym) | Niebieska linia szkieletowa wykracza poza zakończenie synaptyczne lub nie jest obecna wzdłuż całego zakończenia synaptycznego. | Rycina 5C-D | Dostosuj wartość „Rolling Ball Radius”. Patrz sekcja 6.1. | Dostosuj „NMJ outline threshold”. Patrz sekcja 6.2. |
| Punkty Brp-dodatnie (reprezentowane przez kropki na obrazie wynikowym) | Wykryto zbyt wiele stref aktywnych. | Rycina 5E-E' | Zmniejsz wartość „Find maxima noise tolerance”. Patrz sekcja 6.5. | |
| Punkty Brp-dodatnie (reprezentowane przez kropki na obrazie wynikowym) | Analiza pominęła strefy aktywne. | Rycina 5G-G' | Zwiększ wartość „Find maxima noise tolerance”. Patrz sekcja 6.5. | Zmniejsz „Brp-puncta lower threshold”. Patrz sekcja 6.6. |
| Punkty Brp-dodatnie (reprezentowane przez kropki na obrazie wynikowym) | Artefakty stref aktywnych zostały wykryte poza zakończeniem synaptycznym. | Rycina 5F | Dostosuj „Active Zone threshold”, sekcja 6.2. | Zwiększ „Brp-puncta lower threshold”. Patrz sekcja 6.6. |
| Małe cząstki | Cząstki, takie jak kryształy lub kurz, będące częścią tła, wydają się być uwzględnione w segmentacji. | Rycina 5J | Zaznacz pole „Remove small particles”. Patrz sekcja 6.3. | Określ maksymalny rozmiar małych cząstek. Patrz sekcja 6.3. |
| Segmentacja butonów | Nieprawidłowa segmentacja butonów (dotyczy tylko Drosophila NMJ Bouton Morphometrics; nie używaj Drosophila NMJ Morphometrics do segmentacji butonów). | Rycina 5H-I | Dostosuj „NMJ outline threshold”. Patrz sekcja 6.1. | Określ „minimum bouton size”. Patrz sekcja 6.4. |
Tabela 3: Przewodnik rozwiązywania problemów dla różnych rodzajów błędów w segmentacji obrazu, które mogą zostać wygenerowane przez makra.Tabela ta opisuje różne rodzaje błędów segmentacji obrazu powstających w wyniku działania makr. Można je łatwo wykryć na obrazach wynikowych. Przykłady każdego typu błędu przedstawiono na Rysunku 4. W „sekcji korekt” tabeli wyróżniono ustawienia, które wymagają dostosowania, oraz odesłano użytkownika do kluczowego podpunktu sekcji 6, w którym opisano sposób regulacji tych ustawień.
Dyskusja
"Drosophila NMJ Morphometrics" i "Drosophila NMJ bouton Morphometrics" to potężne narzędzia dla badaczy zainteresowanych oceną morfologii synaps. Ręczna ocena parametrów NMJ jest pracochłonna; szacuje się, że makra zaoszczędziłyby doświadczonemu badaczowi do 15 minut/NMJ poświęconych na ręczną segmentację obrazu. Przy jednym do dwóch tuzinów synaps ocenianych pod kątem stanu lub genotypu, szybko sumuje się to do znacznej ilości zaoszczędzonego czasu, nawet w badaniach na małą skalę. W przypadku wykonywania dużych ekranów korzyści wynikające z zastosowania analizy o wysokiej przepustowości w porównaniu z ręczną oceną i kwantyfikacją mogą być ogromne. Oprócz zwiększonej przepustowości makra z łatwością zapewniają obiektywną analizę; Wykluczają one osobiste uprzedzenia, które w przeciwnym razie wymagałyby zaślepionych eksperymentów, a także różnice interpersonalne, które występują, gdy w analizę zaangażowanych jest wielu badaczy. Wreszcie, makra zapewniają czułą i dokładną analizę cech NMJ, umożliwiając identyfikację regulatorów synaptycznych, które powodują raczej subtelne niż dramatyczne defekty NMJ i do tej pory pozostawały niedocenione przez oko badacza. Szczegółowe informacje na temat procedur walidacji i algorytmów wykorzystywanych w makrach znajdują się w publikacji Nijhof et al.Rozdział 17.
Funkcjonalność makr została zwalidowana w celu odpowiedniego pomiaru cech morfologicznych NMJ Drosophila melanogaster w mięśniu 4. Następnie wykazano, że makra były również odpowiednie do analizy synaps w innych mięśniach tego organizmu. Jest prawdopodobne, że makra mogą być również wykorzystywane do pomiaru parametrów morfologicznych NMJ o podobnej budowie u innych gatunków, w tym innych gatunków Drosophila i innych owadów. Nawet NMJ bardzo odległe w ewolucji, np. NMJ myszy, wykazują dość podobną konformację strukturalną29. Makra nie były testowane na preparatach NMJ innych gatunków, ale zachęca się potencjalnych użytkowników do testowania makr w takich celach.
Bardzo ważne jest, aby użytkownik zapoznał się z różnymi automatycznymi progami i algorytmami, aby zdefiniować/wybrać najbardziej odpowiednie ustawienia makr dla obrazów. Dzięki tym ustawieniom dokładność wynosi około 95%, gdy ocena makro została porównana z oceną ręczną. Dostosowanie ustawień makr do prawidłowej segmentacji 100% obrazów może być bardzo pracochłonną lub nawet niemożliwą procedurą. Dlatego zaleca się wykluczenie obrazów, które nie są odpowiednio podzielone na segmenty, jeśli ich liczba jest mniejsza niż 5%. Oczywiście, jeśli jakość obrazów jest niska, makra będą generować wyższe proporcje niezadowalających segmentacji obrazu. Obrazy o niskiej jakości będą w podobny sposób wpływać na ocenę ręczną i dlatego nie mogą być powiązane z wydajnością makr. Niemniej jednak makra są dość solidne, ponieważ zostały zaprojektowane z myślą o obrazach generowanych za pomocą mikroskopu o wysokiej zawartości (zautomatyzowanego mikroskopu fluorescencyjnego, który umożliwia obrazowanie dużej liczby próbek)17.
Krytycznym punktem jest to, że użytkownik wizualnie sprawdza wszystkie obrazy wynikowe generowane przez makra. Pozwoli to na wykrycie i wykluczenie zdjęć z niesatysfakcjonującą segmentacją. W sekcji 6 tego protokołu użytkownik jest instruowany, jak dostosować ustawienia w celu prawidłowej segmentacji obrazu podczas uruchamiania podmakra "Analizuj". Aby szybko zapoznać się z wymaganiami makr i sposobem dostosowywania ustawień makr, w repozytorium makr znajduje się folder o nazwie "Examples_adjusting ustawienia makr" https://doi.org/10.6084/m9.figshare.2077399.v1. Dostępnych jest trzynaście podfolderów, z których każdy zawiera przykładowe obrazy uzyskane na różnych platformach mikroskopowych (mikroskopy o wysokiej zawartości/konfokalne/fluorescencyjne) i różne barwienia immunologiczne. W tym samym folderze, w którym znajdują się ustawienia wymagane dla każdego przykładu, znajduje się plik PDF zatytułowany "Przewodnik po przykładach", a także dokument tekstowy zawierający oczekiwane wyniki i obrazy wyników.
Makra zostały zaprojektowane do przetwarzania obrazów zapisanych jako .tiff oddzielnych plików, niemniej jednak niektórzy użytkownicy mogli zapisać swoje obrazy w innym formacie. Poniższa strona internetowa https://doi.org/10.6084/m9.figshare.2077399.v121 zawiera folder o nazwie "Drosophila NMJ", w którym znajdują się trzy przykładowe pliki (Przykład 1 - 3) oraz dokument "Przewodnik po przykładach" ze szczegółowymi instrukcjami, jak importować obrazy do makra, jeśli nie są przechowywane jako .tiff oddzielone pliki, można również znaleźć w tym samym folderze.
Razem, makra "Drosophila NMJ Morphometrics" i "Drosophila NMJ bouton Morphometrics" określają ilościowo dziesięć różnych cech NMJ: obszar NMJ, obwód NMJ, liczba boutonów, obszar NMJ bouton, długość NMJ, najdłuższa długość gałęzi NMJ, liczba wysp, liczba gałęzi, liczba punktów rozgałęzień i liczba aktywnych stref. Daje to ogromną przewagę nad dotychczas dostępnymi narzędziami, które mogą ocenić tylko jedną lub kilka cech synaptycznych30,31. Wieloparametryczna analiza ilościowa niesie ze sobą ogromny potencjał dla nowych odkryć, np. w celu zidentyfikowania nowych regulatorów, które kontrolują jeden z wielu aspektów biologii synaps. Zapewnia również wymaganą rozdzielczość do określenia genów, które współregulują dokładnie te same lub nakładające się na siebie cechy NMJ, a zatem prawdopodobnie działają we wspólnych szlakach molekularnych. Wreszcie, otwiera to możliwość zbadania, w jaki sposób różne parametry synaptyczne korelują ze sobą w niezakłóconych warunkach17 i które geny zapewniają takie skoordynowane korelacje morfometryczne.
Podsumowując, protokół ten ilustruje, w jaki sposób można korzystać z dwóch makr "Drosophila NMJ Morphometrics" i "Drosophila NMJ Bouton Morphometrics", które przeprowadzają obiektywną i czułą kwantyfikację dziesięciu cech morfologicznych NMJ w sposób wysokoprzepustowy.
Oświadczenia
Autorzy nie mają do ujawnienia żadnych konfliktów interesów.
Podziękowania
Dziękujemy Vienna Drosophila Resource Center i Bloomington Drosophila stock center (NIH P40OD018537)za dostarczenie szczepów Drosophila. Dziękujemy Jackowi Fransenowi z Centrum Obrazowania Mikroskopowego za fachowe wsparcie w zakresie obrazowania. Badanie to było wspierane przez granty VIDI i TOP (917-96-346, 912-12-109) z Holenderskiej Organizacji Badań Naukowych (NWO), przez dwa stypendia doktoranckie DCN/Radboud University Medical Center, przez Niemiecką Sieć Upośledzenia Umysłowego finansowaną przez program NGFN+ niemieckiego Federalnego Ministerstwa Edukacji i Badań Naukowych (BMBF) oraz przez zintegrowaną sieć Unii Europejskiej Gencodys (HEALTH-241995) na dużą skalę. Fundatorzy nie odgrywali żadnej roli w projektowaniu badania, gromadzeniu i analizie danych, podejmowaniu decyzji o publikacji lub przygotowaniu manuskryptu.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Barwienie immunologiczne | Rozcieńczenie | ||
| Mysie anty-dyski duże 1 | Badania rozwojowe Hybridoma Bank | AFFN-DLG1-4D6 | 1/25 (sprzęgnięty przy użyciu zestawu do znakowania Zenon Alexa Fluor 528) |
| Królicza peroksydaza antychrzanowa | Jackson IR | 323-005-021 | 1/500 |
| Królik anty-Synaptotagmin | Prezent od Hugo Bellen | Jan-00 | |
| Mysie białko strunowe anty-cysteinowe | Badania rozwojowe Hybridoma Bank | DCSP-1(ab49) | 1/10 (sjungowane przy użyciu zestawu do znakowania Zenon Alexa Fluor 528) |
| myszy anty-Bruchpilot | Hybridoma Bank | nc82 | Jan-50 |
| Kozioł anty-mysz Alexa Fluor 488 | Technologie życia | A11029 | 1/200 |
| Koza anty-królik Alexa Fluor 568 | Life technologies | A11011 | 1/500 |
| Zenon Alexa Fluor 568 Zestaw do etykietowania myszy IgG1 | ThermoFisher | Z25006 | |
| ProLong Gold Antifade Mountant | ThermoFisher | P36930 | |
| Materiał | Firma | Numer katalogowy | Uwagi |
| Sprzęt | |||
| Mikroskop konfokalny lub mikroskop fluorescencyjny | Leica SP5 | ||
| Zeiss Axio imager | |||
| Komputer | Mac lub PC | ||
| Materiał< | silny>Firma | Numer katalogowy | Komentarze |
| Software | |||
| FIJI |
Bibliografia
- Lin, Y. C., Koleske, A. J. Mechanisms of synapse and dendrite maintenance and their disruption in psychiatric and neurodegenerative disorders. Annu Rev Neurosci. 33, 349-378 (2010).
- van Bokhoven, H. Genetic and epigenetic networks in intellectual disabilities. Annu Rev Genet. 45, 81-104 (2011).
- Penzes, P., Buonanno, A., Passafaro, M., Sala, C., Sweet, R. A. Developmental vulnerability of synapses and circuits associated with neuropsychiatric disorders. J Neurochem. 126, 165-182 (2013).
- Mainen, Z. F., Sejnowski, T. J. Influence of dendritic structure on firing pattern in model neocortical neurons. Nature. 382, 363-366 (1996).
- Yuste, R., Majewska, A., Holthoff, K. From form to function: calcium compartmentalization in dendritic spines. Nat Neurosci. 3, 653-659 (2000).
- Vetter, P., Roth, A., Hausser, M. Propagation of action potentials in dendrites depends on dendritic morphology. J Neurophysiol. 85, 926-937 (2001).
- Bosch, M., Hayashi, Y. Structural plasticity of dendritic spines. Curr Opin Neurobiol. 22, 383-388 (2012).
- Mehnert, K. I., Cantera, R. Circadian rhythms in the morphology of neurons in Drosophila. Cell Tissue Res. 344, 381-389 (2011).
- Sigrist, S. J., Reiff, D. F., Thiel, P. R., Steinert, J. R., Schuster, C. M. Experience-dependent strengthening of Drosophila neuromuscular junctions. J Neurosci. 23, 6546-6556 (2003).
- Ruiz-Canada, C., Budnik, V. Introduction on the use of the Drosophila embryonic/larval neuromuscular junction as a model system to study synapse development and function, and a brief summary of pathfinding and target recognition. Int Rev Neurobiol. 75, 1-31 (2006).
- Menon, K. P., Carrillo, R. A., Zinn, K. Development and plasticity of the Drosophila larval neuromuscular junction. Wiley Interdiscip Rev Dev Biol. 2, 647-670 (2013).
- Kraut, R., Menon, K., Zinn, K. A gain-of-function screen for genes controlling motor axon guidance and synaptogenesis in Drosophila. Curr Biol. 11, 417-430 (2001).
- Parnas, D., Haghighi, A. P., Fetter, R. D., Kim, S. W., Goodman, C. S. Regulation of postsynaptic structure and protein localization by the Rho-type guanine nucleotide exchange factor dPix. Neuron. 32, 415-424 (2001).
- Eaton, B. A., Fetter, R. D., Davis, G. W. Dynactin is necessary for synapse stabilization. Neuron. 34, 729-741 (2002).
- Laviolette, M. J., Nunes, P., Peyre, J. B., Aigaki, T., Stewart, B. A. A genetic screen for suppressors of Drosophila NSF2 neuromuscular junction overgrowth. Genetics. 170, 779-792 (2005).
- Collins, C. A., Wairkar, Y. P., Johnson, S. L., DiAntonio, A. Highwire restrains synaptic growth by attenuating a MAP kinase signal. Neuron. 51, 57-69 (2006).
- Nijhof, B., et al. A New Fiji-Based Algorithm That Systematically Quantifies Nine Synaptic Parameters Provides Insights into Drosophila NMJ Morphometry. PLoS Comput Biol. 12, e1004823(2016).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nat Methods. 9, 676-682 (2012).
- Brent, J. R., Werner, K. M., McCabe, B. D. Drosophila larval NMJ dissection. J Vis Exp. , (2009).
- Dubos, A., et al. Conditional depletion of intellectual disability and Parkinsonism candidate gene ATP6AP2 in fly and mouse induces cognitive impairment and neurodegeneration. Hum Mol Genet. 24, 6736-6755 (2015).
- Nijhof, B., et al. Drosophila NMJ Morphometrics. , figshare https://doi.org/10.6084/m9.figshare.2077399. (2017).
- Ferreira, T., Rasband, W. ImageJ User Guide IJ 1.46. , http://rsbweb.nih.gov/ij/docs/guide/146-29.html (2014).
- Ferreira, T., Rasband, W. ImageJ User Guide IJ 1.46. , Available from: http://fiji.sc/Auto_Threshold (2014).
- Pielage, J., et al. A presynaptic giant ankyrin stabilizes the NMJ through regulation of presynaptic microtubules and transsynaptic cell adhesion. Neuron. 58, 195-209 (2008).
- Koch, I., et al. Drosophila ankyrin 2 is required for synaptic stability. Neuron. 58, 210-222 (2008).
- Iqbal, Z., et al. Homozygous and heterozygous disruptions of ANK3: at the crossroads of neurodevelopmental and psychiatric disorders. Hum Mol Genet. 22, 1960-1970 (2013).
- Prokop, A. Organization of the efferent system and structure of neuromuscular junctions in Drosophila. Int Rev Neurobiol. 75, 71-90 (2006).
- Wan, H. I., et al. Highwire regulates synaptic growth in Drosophila. Neuron. 26, 313-329 (2000).
- Shi, L., Fu, A. K., Ip, N. Y. Molecular mechanisms underlying maturation and maintenance of the vertebrate neuromuscular junction. Trends Neurosci. 35, 441-453 (2012).
- Sutcliffe, B., Forero, M. G., Zhu, B., Robinson, I. M., Hidalgo, A. Neuron-type specific functions of DNT1, DNT2 and Spz at the Drosophila neuromuscular junction. PLoS One. 8, e75902(2013).
- Carpenter, A. E., et al. CellProfiler: image analysis software for identifying and quantifying cell phenotypes. Genome Biol. 7, R100(2006).
Przedruki i uprawnienia
