Tutaj opisujemy dostarczanie mikroRNA za pomocą rekombinowanego wirusa związanego z adenowirusem serotypu 9 w mysim modelu choroby nerwowo-mięśniowej. Pojedyncze podanie obwodowe myszom spowodowało trwałą nadekspresję miRNA w neuronach mięśniowych i ruchowych, co dało możliwość zbadania funkcji miRNA i potencjału terapeutycznego in vivo.
Artykuł metodologiczny
Ogólnoustrojowe dostarczanie mikroRNA przy użyciu rekombinowanego serotypu 9 wirusa związanego z adenowirusem w leczeniu chorób nerwowo-mięśniowych u gryzoni
W tym artykule
Podsumowanie
Streszczenie
Interferencja RNA poprzez endogenny szlak miRNA reguluje ekspresję genów poprzez kontrolowanie syntezy białek poprzez posttranskrypcyjne wyciszanie genów. W ostatnich latach regulacja genów za pośrednictwem miRNA wykazała potencjał w leczeniu zaburzeń neurologicznych spowodowanych toksycznym mechanizmem wzmocnienia funkcji. Jednak skuteczne dostarczanie do tkanek docelowych ograniczyło jego zastosowanie. Tutaj użyliśmy transgenicznego modelu myszy dla rdzeniowego i opuszkowego zaniku mięśni (SBMA), choroby nerwowo-mięśniowej spowodowanej ekspansją poliglutaminy w receptorze androgenowym (AR), aby przetestować wyciszanie genów przez nowo zidentyfikowane miRNA ukierunkowane na AR, miR-298. Nadekspresja miR-298 za pomocą wektora serotypu 9 rekombinowanego wirusa związanego z adenowirusem (rAAV), aby ułatwić transdukcję niedzielących się komórek. Pojedyncze wstrzyknięcie żyły ogonowej u myszy SBMA wywołało trwałą i rozległą nadekspresję miR-298 w mięśniach szkieletowych i neuronach ruchowych oraz spowodowało poprawę fenotypu nerwowo-mięśniowego u myszy.
Wprowadzenie
MiRNA to niekodujące RNA o długości 21-23 nukleotydów, które odgrywają ważną rolę w regulacji ekspresji genów i kontroli różnych szlaków komórkowych i metabolicznych. 1 Ekspresja genów jest głównie regulowana przez indukowanie potranskrypcyjnego wyciszania genów lub degradacji mRNA. 2 MiRNA są zazwyczaj komplementarne do nieulegającego translacji regionu 3' (UTR) genów kodujących, chociaż opisano również wiązanie z 5'UTR i regiony kodujące docelowego mRNA. 3
Wraz z rozwojem obecnego zrozumienia roli miRNA w patogenezie chorób ludzkich, farmakologiczna modulacja poszczególnych miRNA lub rodzin miRNA staje się coraz bardziej realną opcją terapeutyczną. W porównaniu z innymi strategiami hamowania RNA, miRNA mają wiele zalet: miRNA są mniej toksyczne i mniej immunogenne i mogą być łatwo dostarczane do komórek ze względu na ich mały rozmiar. 4,5,6 MiRNA zazwyczaj mają wiele celów w sieciach komórkowych, dlatego należy wziąć pod uwagę potencjalne efekty niezgodne z celem i obawy dotyczące bezpieczeństwa, a także efektywne dostarczanie do tkanek docelowych.
Choroby nerwowo-mięśniowe to nabyte lub dziedziczne stany, które wpływają na neurony mięśniowe i ruchowe. Ukierunkowanie leków na mięśnie szkieletowe jest nowym obszarem badań, w którym głównym wyzwaniem jest osiągnięcie szerokiej dystrybucji w oknie terapeutycznym. 7 Neurony ruchowe są trudniejsze do namierzenia, głównie dlatego, że dostęp do leków jest uniemożliwiony przez barierę krew-mózg.
W tym badaniu wykorzystano hodowlę komórkową i mysie modele rdzeniowego i opuszkowego zaniku mięśni (SBMA). SBMA jest chorobą nerwowo-mięśniową spowodowaną toksycznym mechanizmem wzmocnienia funkcji, w którym dotknięte są zarówno neurony mięśniowe, jak i ruchowe. 8,9 SBMA (choroba Kennedy'ego; OMIM #313200) jest chorobą sprzężoną z chromosomem X, charakteryzującą się osłabieniem i zanikiem mięśni, spowodowaną ekspansją powtórzeń CAG w genie AR, który koduje wydłużony trakt poliglutaminowy w białku AR. 10 Obecnie nie jest dostępne żadne leczenie modyfikujące przebieg choroby dla tego zaburzenia. Transgeniczny model myszy zastosowany w tym badaniu podsumowuje cechy choroby, w tym specyfikę płciową, patologię neuronów ruchowych i postępujący zanik mięśni. 11
W tym badaniu nasze wysiłki skupiły się na zidentyfikowaniu miRNA, które bezpośrednio obniża ekspresję zmutowanego transgenu AR oraz na zaprojektowaniu bezpiecznego i wydajnego sposobu dostarczania miRNA do rdzenia kręgowego i mięśni szkieletowych naszego mysiego modelu choroby.
Tutaj zidentyfikowaliśmy stosunkowo mało scharakteryzowaną miRNA, miRNA-298 (numer dostępu MIMAT0004901),12 w celu bezpośredniego zmniejszenia ekspresji zmutowanej AR w modelach SBMA. Aby osiągnąć dostarczenie miR-298 do tkanek docelowych, zastosowaliśmy strategię wirusową z rekombinowanym serotypem 9 wirusa związanego z adenowirusem (rAAV9). rAAV9 jest zdolny do przekraczania bariery krew-mózg i pośredniczenia w długotrwałej ekspresji genów w niedzielących się komórkach, w tym neuronach. 13 Pojedyncze podanie systemowe AAV9-miR-298 skutkowało trwałą ekspresją miRNA, efektywną transdukcją neuronów mięśniowych i ruchowych, obniżeniem ekspresji AR i poprawą fenotypu choroby u myszy SBMA. 14 Ta metodologia może być wykorzystana do zapewnienia nadekspresji miRNA lub antagomirów in vivo.
Protokół
Wszystkie procedury zostały przeprowadzone zgodnie z Przewodnikiem National Institutes of Health Guide for the Care and Use of Laboratory Animals (8th ed., National Academies Press, Revised 2011) i zostały zatwierdzone przez Komitet ds. Opieki nad Zwierzętami NINDS.
1. Strategia projektowania AAV9-miRNA i selekcja miRNA
- Użyj predykcyjnej bazy danych miRWalk, aby wybrać kandydujące miRNA, które oddziałują z regionem mRNA 3'UTR docelowego genu. 15
UWAGA: Ogranicz minimalną długość zasiewu sekwencji miRNA do co najmniej 7 nukleotydów. Wybierz inne uznane programy do przewidywania miRNA (miRanda, miRDB, Targetscan) do analizy porównawczej. Na podstawie tych kryteriów wyboru, tutaj wybrano miR-185, miR-298, miR-873 i miR-877 do dalszej oceny. - Pobierz sekwencję wybranego miRNA z miRBazy (http://www.mirbase.org/).
- Sklonuj pri-mir (60-70 nts) i jego 250-300 nts flankującą sekwencję genomową po obu stronach lub sekwencję próbną do odpowiedniego wektora cis AAV.
UWAGA: Sekwencja flankująca jest wymagana do prawidłowej ekspresji pri-mir i przetwarzania dojrzałego mikroRNA. Wybierz wektor cis rAAV z podwójnym promotorem z kasetą ekspresji składającą się na przykład z promotora ludzkiego czynnika wydłużenia-1 alfa (EIF1α), po którym następuje wybrane miRNA lub sekwencja makiet, oraz promotor ludzkiego wirusa cytomegalii (CMV), po którym następuje cDNA kodujące znacznik fluorescencyjny GFP. Promotor EIFα został wybrany, ponieważ gwarantuje stabilną i jednorodną ekspresję, przy minimalnym ryzyku wyciszenia. W zależności od konkretnych zastosowań można stosować promotory tkankowe lub warunkowe. - Przygotuj, oczyść i miareczkuj AAV, postępując zgodnie z opublikowanymi protokołami. 16
UWAGA: W tym przypadku klonowanie pri-miru do wektora AAV i produkcja wirusa zostały przeprowadzone przez zewnętrznego producenta.
2. Iniekcja plazmidu AAV-miRNA do żyły ogonowej
UWAGA: Ten krok wymaga dostosowania do docelowego genu oraz wieku i wagi myszy. Skorzystaj z wytycznych Komitetu ds. Opieki i Użytkowania Zwierząt (IACUC), aby określić zakres dawek, objętość i najlepszą drogę podania w oparciu o wiek i wagę myszy. Oczekuje się, że sygnał fluorescencji GFP i poziomy ekspresji miRNA w tkankach docelowych osiągną szczyt od 2 tygodni po wstrzyknięciu. Poniższy protokół odnosi się do samców myszy we wczesnej dorosłości. AAV powinien być traktowany jako zagrożenie biologiczne zgodnie z wytycznymi dotyczącymi poziomu bezpieczeństwa biologicznego 1.
- Podzielić zapas plazmidu AAV-miRNA na 100-200 μl podwielokrotności zawierających miano wirusa 1010-10 11 genomów wirusa na ml (vg / ml) przy użyciu sterylnego roztworu soli fizjologicznej buforowanej fosforanem (PBS). Do obchodzenia się z roztworem AAV należy używać laboratoryjnych środków ochrony osobistej stanowiących zagrożenie biologiczne.
UWAGA: Po rozmrożeniu podwielokrotność może być przechowywana w temperaturze 4 °C przez okres do dwóch tygodni. Zapas wirusów można przechowywać w zamrażarce w temperaturze -80 °C. - Ogranicz mysz w dostępnych na rynku ogranicznikach, takich jak plastikowa lub stożkowa rurka z folii z tworzywa sztucznego o odpowiednim rozmiarze.
- Oczyść powierzchnię ogona chusteczkami nasączonymi 70% alkoholem.
- Przytrzymaj ciepłą podkładkę (28-30 °C) pod ogonem, aby zwiększyć rozszerzenie naczyń krwionośnych przez 30 s. Alternatywnie ogrzej zwierzęta za pomocą czerwonej lampy grzewczej (w odległości 2-3 stóp) lub zanurzając ogon w ciepłej wodzie.
- Zaczynając od dystalnej części ogona, wbij igłę (27-30 G) obciążoną podwielokrotnością wirusa, skosem do góry, 15° od ogona, do żyły. Przed wstrzyknięciem należy upewnić się, że igła została prawidłowo wkłuta.
- Jeśli podczas wstrzykiwania odczuwalny jest opór lub pod skórą pojawi się obrzęk, należy przerwać zabieg. Wyjąć igłę i ponownie wprowadzić igłę powyżej poprzedniego miejsca wstrzyknięcia.
UWAGA: Alternatywnie można to osiągnąć, delikatnie zasysając igłę i obserwując krew. Twarde aspiracje mogą spowodować zapadnięcie się żyły ogonowej. Jeśli żyła blednie podczas wstrzyknięcia, oznacza to, że igła jest wprowadzana prawidłowo.
- Jeśli podczas wstrzykiwania odczuwalny jest opór lub pod skórą pojawi się obrzęk, należy przerwać zabieg. Wyjąć igłę i ponownie wprowadzić igłę powyżej poprzedniego miejsca wstrzyknięcia.
- Po zakończeniu wstrzyknięcia należy odczekać kilka sekund przed podniesieniem igły.
- Należy obserwować miejsce wstrzyknięcia pod kątem krwawienia. Wywieraj umiarkowany nacisk dwoma palcami na miejsce, aż krwawienie ustanie.
- Umieść zwierzę z powrotem w klatce.
3. Testy behawioralne
UWAGA: Wszystkie eksperymenty były przeprowadzane na ślepo przez stronę trzecią, z ukrywaniem leczenia za pomocą unikalnie oznaczonych fiolek. Kolejność zabiegów była losowa. Podczas wykonywania badań opisanych poniżej, warunki doświadczalne (rodzaj pomieszczenia i pora dnia) powinny być kontrolowane w celu zmniejszenia zmienności. Ten test należy przeprowadzić na myszach starszych niż cztery tygodnie, aby uzyskać wiarygodne wyniki. Mysz została poddana ocenie behawioralnej raz przed wstrzyknięciem wirusa w wieku 5 tygodni, aby uzyskać punkt odniesienia normalnej wydajności. Po wstrzyknięciu wirusa myszy oceniano raz w tygodniu, począwszy od 48 godzin po wstrzyknięciu, do 40 tygodnia życia.
- Proszę przenieść mysz, której wstrzyknięto AAV, do cichego, ciemnego pomieszczenia, w którym nie ma hałasu ani innych zakłóceń, co najmniej 30 minut przed rozpoczęciem badań. Nie należy przeszkadzać zwierzętom w tym okresie aklimatyzacji.
- Zaaklimatyzuj mysz w nowym pomieszczeniu przez 30 minut, a następnie rozpocznij następujące testy behawioralne (kroki 3.3 i 3.4). Zachowaj 10-minutową przerwę między każdym testem behawioralnym.
- Test drutu wiszącego
UWAGA: Ten test monitoruje siłę mięśni i dysfunkcję motoryczną.- Użyj prześcieradła wyściółkowego, które będzie pełnić funkcję poduszki. Podnieś mysz za ogon i umieść ją na środku stojaka z siatki drucianej. Podnieś stojak 15-20 cali nad powierzchnię i powoli odwróć ekran, aby zwierzę mogło dostosować chwyt do ekranu.
- Gdy stojak zostanie całkowicie odwrócony, uruchom stoper i zapisz czas do upadku.
UWAGA: Myszy będą wisiały z czterema kończynami na siatce. Jeśli przewód jest ustawiony zbyt nisko, myszy mogą się nie zawiesić. Jeśli myszy spadną z sieci przed upływem 60 sekund, umieść je z powrotem na siatce, zresetuj timer i powtórz tę procedurę do dwóch kolejnych prób. Zarejestruj najlepszą wydajność. - Po osiągnięciu limitu czasu 60 s należy zwrócić zwierzę z powrotem do klatki.
- Test odcisku stopy
UWAGA: Arkusz chłonny powinien być wąskim pasem startowym o długości około 70 cm i szerokości 5 cm ze ściankami o wysokości 5 cm.- Chwyć delikatnie mysz jedną ręką i nałóż czerwony tusz na przednie łapy i niebieski tusz na tylne łapy za pomocą pędzla.
- Umieść arkusz chłonny na podłodze wąskiego pasa startowego.
- Pozwól myszy chodzić lub przebiegać po chłonnym arkuszu w linii prostej na pasie startowym z jednego końca na drugi.
- Powtórz ten proces jeszcze dwa razy za pomocą myszy, używając świeżego chłonnego arkusza.
- Zmierz odległość między dwoma kolejnymi krokami w ruchu do przodu. Nie dołączaj pierwszych i ostatnich kilku śladów, w których zwierzę właśnie rozpoczyna i kończy swój bieg.
4. Eutanazja i pobieranie tkanek
- Użyj komory eutanazyjnej lub słoika z dzwonem. Jeśli używasz słoika dzwonowego, wykonaj procedurę pod wyciągiem.
- Namocz bawełnę izofluranem i umieść ją w słoiku. Użyj fizycznego separatora, aby zapobiec fizycznemu kontaktowi zwierzęcia z materiałem znieczulającym. Umieść zwierzę w słoiku natychmiast po wykonaniu tego kroku.
UWAGA: Słoik nie powinien być wstępnie naładowany izofluranem, aby uniknąć możliwości hipoksemii u zwierząt. - Ekspozycję na izofluran należy kontynuować do 30 s po ustaniu oddychania.
- Natychmiast po wyjęciu myszy ze słoika poddaj się eutanazji przez zwichnięcie szyjki macicy.
UWAGA: Ten krok powinien nastąpić tak szybko, jak to możliwe, aby uniknąć degradacji tkanki. - Najpierw zbierz rdzeń kręgowy, a następnie mięsień czworogłowy uda.
- Aby pobrać rdzeń kręgowy, odsłoń tył myszy i przymocuj cztery kończyny z boku do deski preparcyjnej.
- Umyć miejsce sekcji 70% etanolem.
- Wykonaj zwichnięcie szyjki macicy za pomocą ostrych nożyczek.
- Wykonaj nacięcie w skórze w linii środkowej. Usuń skórę poprzez przecięcie lub ostrożne rozdarcie skóry w płaszczyźnie poprzecznej, a następnie podciągnięcie skóry do góry i nad głową. Usuń głowę, przecinając nożyczkami pod łopatkami i w obszarze C1-2 kolumny (znajdującym się w sąsiedztwie podstawy czaszki).
- Przetnij mięśnie ściany brzucha po stronie brzusznej i kontynuuj na boki, w jednym kierunku na raz, aż do osiągnięcia kręgosłupa.
- Za pomocą ostrych nożyczek usuń kręgi, zaczynając od rdzenia kręgowego w odcinku szyjnym. Usuń boczne części kręgów, przecinając łuki kręgowe po obu stronach.
- Po usunięciu całych kręgów należy zwolnić rdzeń kręgowy.
- Błyskawiczne zamrożenie pobranych tkanek we wstępnie schłodzonym 2-metylobutanie przy użyciu następującej metody:
- Napełnij do połowy miskę ze stali nierdzewnej 2-metylobutanem i zanurz dolną ćwiartkę miski w pojemniku wypełnionym ciekłym azotem.
- Wstępnie schłodzić 2-metylobutan w ciekłym azocie przez 1-2 minuty.
- Umieść mięśnie szkieletowe za pomocą kleszczy w 2-metylobutanie, aż zmienią kolor na biały. Natychmiast przenieść chusteczkę do suchego lodu, a następnie przechowywać ją w temperaturze -80 °C.
- W celu barwienia immunologicznego rdzenia kręgowego należy zanurzyć tkankę w blokach parafiny w temperaturze pokojowej przed zamrożeniem zatrzaskowym, jak opisano. 17
- Do analizy biochemicznej i kwantyfikacji miRNA, 1 umieść pobraną tkankę w kriowiale i zamroź w ciekłym azocie. Próbki należy przechowywać w temperaturze -80 °C.
Wyniki
Dawkę wirusową 101 vg AAV9-miR-298 wstrzyknięto w pojedynczej iniekcji do żyły ogonowej 5-tygodniowym myszom z modelem SBMA. Myszy te posiadają ludzki transgen AR z nieprawidłowo wydłużonym ciągiem poliglutaminy w białku AR (AR97Q) i wykazują objawy choroby nerwowo-mięśniowej do 10. tygodnia życia (utrata masy ciała, zgarbienie oraz zanik mięśni).1 Rdzeń kręgowy w odcinku lędźwiowym oraz mięsień czworogłowy uda pobrano w 2., 4., 8. i 12. tygodniu po podaniu preparatu w celu ilościowego oznaczenia miRNA, przeprowadzenia analiz biochemicznych oraz immunohistochemii (Rysunek 1). Podanie leczenia oraz późniejsze analizy zostały przeprowadzone przez badaczy w warunkach zaślepienia.
Analiza qRT-PCR wykazała ekspresję miR-298 w mięśniach szkieletowych i rdzeniu kręgowym odpowiednio dwa i cztery tygodnie po leczeniu, z najwyższymi poziomami ekspresji w 8. tygodniu w mięśniach szkieletowych i w 12. tygodniu w rdzeniu kręgowym po wstrzyknięciu (Rycina 2). Przy użyciu mikroskopu (Axiovert 10 M) wykryto sygnał zielonej fluorescencji w tkance mięśniowej oraz w motoneuronach rdzeniowych poprzez kolokalizację GFP i markera motoneuronów — cholinoacetylotransferazy (ChAT) w 10. tygodniu po leczeniu, kiedy u myszy zaczęły pojawiać się objawy choroby (Rycina 2).
Stosując ten sam schemat dawkowania, kohortę myszy SBMA randomizowano do otrzymania miR-298 lub mock w 7. tygodniu życia poprzez wstrzyknięcie do żyły ogonowej w celu przeprowadzenia analiz biochemicznych i charakterystyki funkcjonalnej. Po wstrzyknięciu tygodniowo oceniano masę ciała i zachowanie aż do 40. tygodnia życia. Analiza qRT-PCR wykazała, że leczenie miR-298 redukuje poziomy zmutowanego AR w dotkniętych tkankach (Rysunek 3), a także zwiększa masę ciała i poprawia sprawność ruchową (Rysunek 4), począwszy od 10. tygodnia po wstrzyknięciu.
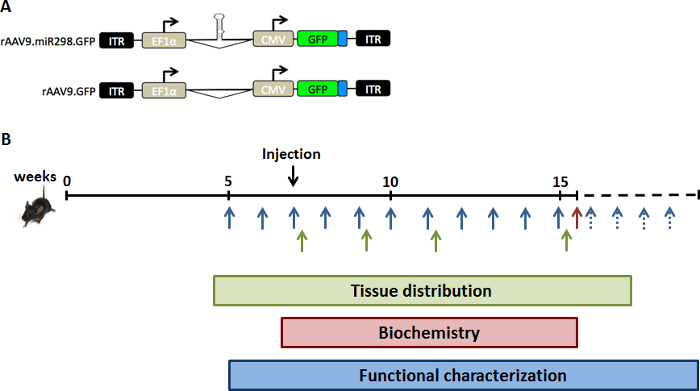
Rycina 1: Schemat planu badania. Aby zwiększyć poziomy ekspresji miR-298 in vivo, wstrzyknęliśmy myszom z SBMA (A) plazmid wektora AAV z podwójnym promotorem, wykazujący ekspresję GFP oraz miR-298 lub kontrolę (mock). (B) Myszy poddano pojedynczemu wstrzyknięciu dożylnie do ogona w 7. tygodniu życia (etap przedsymptomatyczny). Od grupy myszy z SBMA w różnych punktach czasowych pobrano rdzeń kręgowy oraz mięsień czworogłowy do analizy rozkładu tkankowego (kolor zielony). Grupę myszy z SBMA leczono i uśmiercono w 16. tygodniu życia w celu przeprowadzenia analiz biochemicznych (kolor czerwony). Pomiary masy ciała oraz testy behawioralne wykonywano co tydzień aż do 40. tygodnia życia w celu charakterystyki funkcjonalnej (kolor niebieski). Proszę kliknąć tutaj, aby wyświetlić większą wersję tej ryciny.
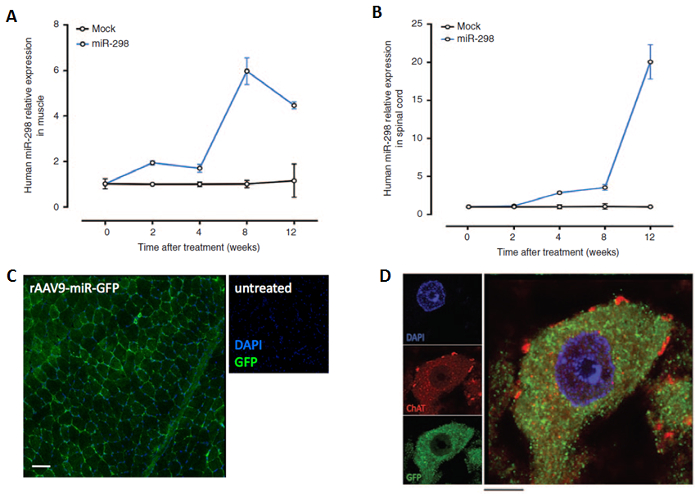
Rysunek 2: Dostarczanie AAV9-miR-298 u myszy. Stosując opisaną tutaj metodę, myszy otrzymały drogą dożylną wtryskiwanie AAV9-miR-298-GFP lub AAV9-mock-GFP. Całkowite miRNA pobrano z lędźwiowego odcinka rdzenia kręgowego oraz mięśnia czworogłowego w 2., 4., 8. i 12. tygodniu po wstrzyknięciu. Przeprowadzono analizę qRT-PCR w celu oszacowania poziomu ekspresji miR-298 w (A) mięsień czworogłowy uda (n = 5) (B) rdzeń kręgowy odcinka lędźwiowego (n = 5, P <0,01). Wszystkie dane przedstawiono jako średnie ± błąd standardowy średniej. Powszechną transdukcję wektora AAV w tkankach pobranych 10 tygodni po leczeniu potwierdzono poprzez lokalizację barwienia GFP w (C) mięsień czworogłowy uda (powiększenie oryginalne, 10X. Pasek skali =) 100 µm) i (D) neurony ruchowe w lędźwiowym odcinku rdzenia kręgowego (powiększenie oryginalne, 40X. Pasek skali = 10 µmGFP (zielony), ChAT (czerwony) i DAPI (niebieski). Rycina została zmodyfikowana na podstawie doi: 10.1038/mt.2016.13.14 Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
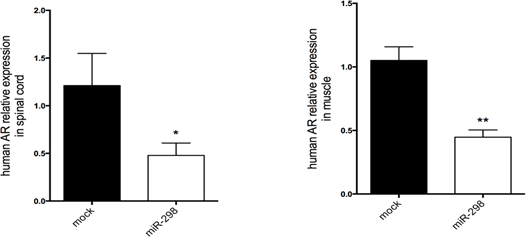
Rycina 3: Nadmierna ekspresja miRNA-298 obniża poziom zmutowanego AR w rdzeniu kręgowym i mięśniu czworogłowym u myszy. Przeprowadzono analizę qRT-PCR w celu oszacowania poziomów ekspresji mRNA dla AR w (A) rdzenia kręgowego w odcinku lędźwiowym i (B) mięsień czworogłowy uda traktowany AAV9-miR-298-GFP lub AAV9-mock-GFP. Poziomy transkrypcji znormalizowano względem snoRNA202 (n = 5 na grupę). *P <0,05, **P <0.01. Wszystkie dane przedstawiono jako średnie ± błędy standardowe. Rycina została zmodyfikowana na podstawie doi: 10.1038/mt.2016.13.14
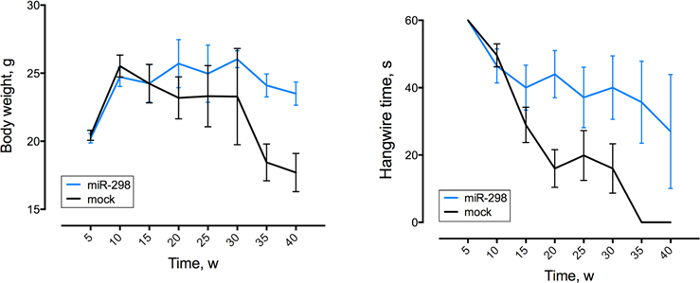
Rysunek 4: Nadekspresja miR-298 poprawia funkcje motoryczne i zmniejsza utratę masy ciała. Ocenę behawioralną przeprowadzano raz w tygodniu (w), od 5. do 40. tygodnia. Masa ciała (po lewej) i wyniki testu zawieszonego drutu (po prawej) u myszy (n = 15 w grupie). Wszystkie dane przedstawiono jako średnie ± błędy standardowe. Rysunek został zmodyfikowany na podstawie doi: 10.1038/mt.2016.13.14
Dyskusja
Tutaj demonstrujemy wysoce wydajną i dostępną metodologię selekcji i dostarczania miRNA za pomocą iniekcji ogonowej przy użyciu rAAV9 jako wektora wirusowego do celowania w mięśnie szkieletowe i neurony ruchowe u myszy. 14 W porównaniu z innymi strategiami RNAi, miRNA są mniej toksyczne i mniej immunogenne. 18 Ponadto ich niewielkie rozmiary sprawiają, że dobrze nadają się do ograniczonej pojemności pakowania wektorów wirusowych. 2 Algorytmy obliczeniowe i narzędzia predykcyjne pozwalają na identyfikację przypuszczalnych celów miRNA-mRNA. Po zidentyfikowaniu należy zweryfikować wpływ miRNA na ekspresję genu docelowego. Powszechnym podejściem jest nadekspresja danego miRNA in vitro i wykrycie docelowych poziomów ekspresji białka za pomocą analizy zachodniej. Pytania z dnia 14,19 TGL
W różnych badaniach stosowano wirusowe i niewirusowe strategie dostarczania miRNA. 13 W tym przypadku użyliśmy wirusa związanego z adenowirusem (AAV) jako narzędzia dostarczania genów. W porównaniu z innymi wektorami wirusowymi, AAV wywołuje niską immunogenność, umożliwia długotrwały transfer genów i ma szerokie spektrum tropizmu w komórkach dzielących się i niedzielących. 18 Ta metoda dostarczania może również obejść potrzebę modyfikacji chemicznej, która może wpływać na funkcjonalność i swoistość cząsteczki RNA. Istnieje kilka serotypów AAV, które są w większości determinowane przez skład białek kapsydu. Te serotypy różnią się tropizmem i transdukują różne typy komórek. Konieczne jest wybranie odpowiedniego serotypu przy rozważaniu tkanki docelowej. Wybraliśmy rAAV9 ze względu na jego wysoką skuteczność transdukcji w ośrodkowym układzie nerwowym i mięśniach szkieletowych po podaniu obwodowym19,20. Podejście to wykazało większą skuteczność transdukcji u noworodków w porównaniu z dorosłymi zwierzętami, prawdopodobnie ze względu na różnice w składzie macierzy zewnątrzkomórkowej, stosunku neuronów do komórek glejowych i dojrzałości bariery krew-mózg. Pytania z dnia 21,22 na drugi guzik
Ważnym krokiem w tym protokole jest zaprojektowanie wektora wyrażenia. W porównaniu z wektorami bicystronicznymi, które są hamowane przez niższą ekspresję drugiego genu w porównaniu z pierwszym genem obok promotora, wektor podwójnego promotora umożliwia konfigurację back-to-back, dając wysoką ekspresję zarówno miRNA, jak i EGFP, umożliwiając w ten sposób lokalizację miRNA w tkance myszy za pomocą immunofluorescencji.
Dożylne wstrzyknięcie AAV9 skutkowało wysoką skutecznością i jednorodną transdukcją w tkankach docelowych, mięśniach szkieletowych i neuronach ruchowych. Ta droga iniekcji pozwala na dotarcie podanej dawki do krążenia ogólnoustrojowego i przekroczenie bariery krew w mózgu, co jest ważne w przypadku terapii ukierunkowanych na ośrodkowy układ nerwowy. Ponadto jest to nieinwazyjna metoda dostarczania do OUN. Ekspresja MiR-298 wzrosła w rdzeniu kręgowym i mięśniach po 2-4 tygodniach po pojedynczym wstrzyknięciu obwodowym w wieku 5 tygodni. W przypadku stosowania jednoniciowych wektorów AAV genomu, synteza de novo drugiej nici DNA może odpowiadać za opóźnioną transdukcję. 23
Poziomy ludzkiego miR-298 były niewykrywalne u leczonych myszy 20 tygodni po pojedynczym podaniu, co sugeruje, że w przypadku chorób przewlekłych może być konieczne wielokrotne wstrzyknięcie, aby osiągnąć korzyści terapeutyczne. Jednak degradacja miRNA w czasie może być ograniczająca, gdy wymagane jest wielokrotne podawanie przez całe życie. Ponadto odporność adaptacyjna na wektory AAV może stanowić kolejną barierę dla pomyślnego dostarczania genów. 24 W związku z tym generowanie wektorów AAV, które są obojętne immunologicznie, ma kluczowe znaczenie dla wielokrotnego podawania i osiągania długoterminowych efektów dzięki temu obiecującemu systemowi dostarczania. 25
Ograniczeniem stosowania miRNA jako strategii terapeutycznej jest ryzyko wystąpienia efektów niedocelowych. MiRNA mogą wchodzić w interakcje poprzez niekomplementarne parowanie zasad z innymi transkryptami genów, co stanowi zagrożenie dla bezpieczeństwa przy tym podejściu. Ulepszone projektowanie sekwencji RNAi, w tym wykorzystanie niekanonicznych miRNA, takich jak mirtrony, które omijają kompleks mikroprocesorowy, oraz szeroko zakrojone długoterminowe badania bezpieczeństwa i tolerancji mają kluczowe znaczenie przed przełożeniem tej strategii na bezpieczną i skuteczną terapię. 26,27,28
Opisana tutaj metoda została pierwotnie opracowana w celu nadekspresji miRNA, ale może być również wykorzystana do terapii hamowania miRNA przy użyciu antagomirów.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Autorzy deklarują brak konfliktu interesów. Dziękujemy firmie SignaGen Laboratories (Rockvile, MD, USA) za produkcję wirusa AAV9. Badania te były wspierane przez Intramural Research Program NINDS, NIH. Philip R. Lee był wspierany przez fundusze z Wydziału Badań Wewnętrznych NICHD. Carlo Rinaldi był wspierany przez stypendium Association Française contre les Myopathies (AFM).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Odczynnik do lizy QIAzol | Qiagen | 79306 | Liza tkanek tłuszczowych i standardowych przed izolacją RNA |
| miRNeasy Mini Kit | Qiagen | 217004 | Oczyszczanie miRNA i całkowitego RNA |
| Zestaw do odwrotnej transkrypcji TaqMan MicroRNA | ThermoFisher Scientific | 4366596 | Wysoce specyficzny zestaw, który określa ilościowo tylko dojrzałe miRNA |
| Podkład snoRNA202 | ThermoFisher Naukowy | miRNA 1232 | Taqman w mysim |
| podkładu miR-298 | ThermoFisher Scientific | 2190 | Test miRNA-298 Taqmana u myszy |
| Przeciwciało anty-GFP | abcam | ab290 | Królik poliklonalny do GFP - klasa ChIP |
| Czerwona poduszka z tuszem | Dovecraft Essentials | ||
| z tuszem | Dovecraft Essentials | ||
| AAV9-GFP wektor | SignaGen Laboratories | SL100840 | Budowa, pakowanie i oczyszczanie plazmidu AAV na dużą skalę |
| mmu-miR-298-5p | ThermoFisher Scientific | MC12525 | miRNA mirVana naśladuje |
| AAV9-EF1a-has-mir-298-GFP | Vector Biosystems Inc |
Bibliografia
- Broderick, J. A., Zamore, P. D. miRNA therapeutics. Gene Therapy. 18, 1104-1110 (2011).
- Esteller, M. Non-coding RNAs in human disease. Nat Rev Genet. 12, 861-874 (2011).
- Pickering, B. M., Willis, A. E. The implications of structured 5' untranslated regions on translation and disease. Semin Cell Dev Biol. 16, 39-47 (2005).
- Bilen, J., Liu, N., Burnett, B. G., Pittman, R. N., Bonini, N. M. MicroRNA pathways modulate polyglutamine-induced neurodegeneration. Mol Cell. 24, 157-163 (2006).
- Lee, Y., Samaco, R. C., Gatchel, J. R., Thaller, C., Orr, H. T., Zoghbi, H. Y. miR-19, miR-101 and miR-130 co-regulate ATXN1 levels to potentially modulate SCA1 pathogenesis. Nat Neurosci. 11, 1137-1139 (2008).
- Liu, N., et al. The microRNA miR-34 modulates ageing and neurodegeneration in Drosophila. Nature. 482, 519-523 (2012).
- Ebner, D. C., et al. Strategies for skeletal muscle targeting in drug discovery. Curr Pharm Des. 10, 1327-1336 (2015).
- Giorgetti, E., Lieberman, A. P. Polyglutamine androgen receptor-mediated neuromuscular disease. Cell Mol Life Sci. 73, 3991-3999 (2016).
- Grunseich, C., Rinaldi, C., Fischbeck, K. H. Spinal and bulbar muscular atrophy: pathogenesis and clinical management. Oral Dis. 20, 6-9 (2014).
- La Spada, A. R., Wilson, E. M., Lubahn, D. B., Harding, A. E., Fischbeck, K. H. Androgen receptor gene mutations in X-linked spinal and bulbar muscular atrophy. Nature. 352, 77-79 (1991).
- Katsuno, M., Adachi, H., Kume, A., Li, M., Nakagomi, Y., Niwa, H., Sang, C., Kobayashi, Y., Doyu, M., Sobue, G. Testosterone reduction prevents phenotypic expression in a transgenic mouse model of spinal and bulbar muscular atrophy. Neuron. 35, 843-854 (2002).
- Boissonneault, V., Plante, I., Rivest, S., Provost, P. MicroRNA-298 and microRNA-328 regulate expression of mouse beta-amyloid precursor protein-converting enzyme 1. J Biol Chem. 284, 1971-1981 (2009).
- Choudhury, S. R., et al. Widespread central nervous system gene transfer and silencing after systemic delivery of novel AAV-AS vector. Mol Ther. 24, 726-735 (2016).
- Pourshafie, N., et al. MiR-298 counteracts mutant androgen receptor toxicity in spinal and bulbar muscular atrophy. Mol Ther. 24, 937-945 (2016).
- Dweep, H., Sticht, C., Pandey, P., Gretz, N. miRWalk--database: prediction of possible miRNA binding sites by "walking" the genes of three genomes. J Biomed Inform. 44, 839-847 (2011).
- McClure, C., Cole, K. L., Wulff, P., Klugmann, M., Murray, A. J. Production and titering of recombinant adeno-associated viral vectors. J Vis Exp. (57), e3348(2011).
- Stuard, D. A., Oorschot, D. E. Embedding, sectioning, immunocytochemical and stereological methods that optimise research on the lesioned adult rat spinal cord. J Neurosci Methods. 61, 5-14 (1995).
- Huang, F., et al. miR-25 alleviates polyQ-mediated cytotoxicity by silencing ATXN3. FEBS Lett. 588, 4791-4798 (2014).
- Kuhn, D. E., Martin, M. M., Feldman, D. S., Terry, A. V., Nuovo, G. J., Elton, T. S. Experimental validation of miRNA targets. Methods. 44, 47-54 (2008).
- Yang, N. An overview of viral and nonviral delivery systems for microRNA. Int J Pharm Investig. 5, 179-181 (2015).
- Bourdenx, M., Dutheil, N., Bezard, E., Dehay, B. Systemic gene delivery to the central nervous system using Adeno-associated virus. Front Mol Neurosci. 7, 50(2014).
- Foust, K. D., Nurre, E., Montgomery, C. L., Hernandez, A., Chan, C. M., Kaspar, B. K. Intravascular AAV9 preferentially targets neonatal neurons and adult astrocytes. Nat Biotechnol. 27, 59-65 (2009).
- Wang, Z., Ma, H. -I., Li, J., Sun, L., Zhang, J., Xiao, X. Rapid and highly efficient transduction by double-stranded adeno-associated virus vectors in vitro and in vivo. Gene Therapy. 10, 2105-2111 (2003).
- Saunders, N. R., Joakim Ek, C., Dziegielewska, K. M. The neonatal blood-brain barrier is functionally effective, and immaturity does not explain differential targeting of AAV9. Nat Biotechnol. 27, 804-805 (2009).
- Boudreau, R. L., Spengler, R. M., Davidson, B. L. Rational design of therapeutic siRNAs: minimizing off-targeting potential to improve the safety of RNAi therapy for Huntington’s disease. Mol Ther. 19, 2169-2177 (2011).
- Duque, S., Joussemet, B., Riviere, C., Marais, T., Dubreil, L., Douar, A. M., et al. Intravenous administration of self-complementary AAV9 enables transgene delivery to adult motor neurons. Mol Ther. 17, 1187-1196 (2009).
- Lowenstein, P. R. Crossing the rubicon. Nat Biotechnol. 27, 42-44 (2009).
- Sibley, C. R., Seow, Y., Curtis, H., Weinberg, M. S., Wood, M. J. Silencing of Parkinson's disease-associated genes with artificial mirtron mimics of miR-1224. Nucleic Acids Res. 40, 9863-9875 (2012).
Przedruki i uprawnienia
