Metodologia wirowania o zmodyfikowanej gęstości oparta na gradimencie została wykorzystana do izolacji komórek nabłonkowych z tkanki jelitowej Rhipicephalus microplus. Białka związane z powierzchnią poddano biotynylacji i oczyszczono za pomocą kulek magnetycznych streptawidyny w celu wykorzystania w dalszych zastosowaniach.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Oczyszczanie biotynylowanych białek powierzchniowych komórek z nabłonkowych komórek jelitowych Rhipicephalus microplus
W tym artykule
Podsumowanie
Streszczenie
Rhipicephalus microplus - kleszcz bydlęcy - jest najbardziej znaczącym ektopasożytem pod względem wpływu ekonomicznego na zwierzęta gospodarskie jako wektor kilku patogenów. Podjęto wysiłki w zakresie zwalczania kleszczy u bydła w celu zmniejszenia ich szkodliwych skutków, koncentrując się na odkryciu kandydatów na szczepionki, takich jak BM86, zlokalizowanych na powierzchni komórek nabłonka jelit kleszcza. Obecne badania koncentrują się na wykorzystaniu cDNA i bibliotek genomowych do badań przesiewowych w poszukiwaniu innych kandydatów na szczepionki. Izolacja komórek jelitowych kleszczy stanowi ważną zaletę w badaniu składu białek powierzchniowych na błonie komórek jelitowych kleszcza. Praca ta stanowi nowatorską i wykonalną metodę izolacji komórek nabłonkowych z zawartości jelita kleszcza częściowo nabrzmiałego R. microplus. Protokół ten wykorzystuje TCEP i EDTA do uwalniania komórek nabłonka z podnabłonkowych tkanek podporowych oraz gradientu wirowania o nieciągłej gęstości w celu oddzielenia komórek nabłonka od innych typów komórek. Białka powierzchniowe komórek poddano biotynylacji i wyizolowano z komórek nabłonka jelita kleszcza za pomocą kulek magnetycznych połączonych streptawidyną, co pozwoliło na dalsze zastosowania w analizie FACS lub LC-MS/MS.
Wprowadzenie
Rhipicephalus microplus, kleszcz bydlęcy, jest najbardziej znaczącym ektopasożytem pod względem wpływu ekonomicznego na przemysł hodowlany w regionach tropikalnych i subtropikalnych, ponieważ jest wektorem pomoru kleszczowego bydła (babeszjozy), anaplazmozy i piroplazmozy koni1,2,3,4. Podjęto wysiłki w celu zwalczania kleszczy u bydła, aby zmniejszyć szkodliwy wpływ, jednak konwencjonalne metody, takie jak stosowanie chemicznych akarycydów, mają ukryte wady, takie jak obecność pozostałości chemicznych w mleku i mięsie oraz wzrost częstości występowania chemoodpornych kleszczy5,6,7. W związku z tym zbadano rozwój alternatywnych metod zwalczania kleszczy, takich jak stosowanie bydła o naturalnej odporności, kontrola biologiczna (biopestycydy) i szczepionki4,5,6,7,8,9.
W poszukiwaniu białek, które mogłyby być wykorzystane jako kandydaci na szczepionki, obecne badania koncentrują się na jelitach kleszczy. Ściana jelita środkowego jest zbudowana z pojedynczej warstwy komórek nabłonka spoczywających na cienkiej blaszce podstawnej, przy czym zewnętrzna strona blaszki podstawy tworzy sieć mięśni. Obserwacje pod mikroskopem świetlnym i elektronowym wskazują, że jelito środkowe składa się z trzech typów komórek: rezerwowych (niezróżnicowanych), wydzielniczych i trawiennych. Liczba typów komórek różni się znacznie w zależności od fazy fizjologicznej. Zarówno komórki wydzielnicze, jak i trawienne pochodzą z komórek rezerwowych18,19,20.
Budowa bibliotek cDNA do badania składu jelita kleszcza doprowadziła do identyfikacji białek antygenowych, takich jak Bm86, jako potencjalnych kandydatów na szczepionki2,3,4. Glikoproteina Bm86 jest zlokalizowana na powierzchni komórek jelitowych kleszcza i indukuje ochronną odpowiedź immunologiczną przeciwko kleszczowi bydlęcemu (R. microplus) u zaszczepionego bydła. IgG anty-Bm86 wytwarzane przez uodpornionego gospodarza są połykane przez kleszcza, rozpoznają ten antygen na powierzchni komórek jelitowych kleszcza, a następnie zaburzają funkcję i integralność tkanki jelitowej kleszcza. Szczepionki oparte na antygenach Bm86 wykazały skuteczną kontrolę R. microplus i Rhipicephalus annulatus, poprzez zmniejszenie liczby, masy i zdolności reprodukcyjnej nabrzmiałych samic, co skutkuje zmniejszoną inwazją larw w kolejnych pokoleniach kleszczy4. Jednak szczepionki oparte na Bm86 nie są skuteczne przeciwko wszystkim stadiom kleszcza i wykazały niezadowalającą skuteczność przeciwko niektórym geograficznym szczepom R. microplus, w związku z czym przemysł wołowy i mleczarski słabo przyjęły te szczepionki2,4.
Zdolność do izolowania komórek nabłonkowych z jelita kleszcza jest znaczącą innowacją, która umożliwiłaby postęp badań w celu określenia składu błony białkowej, w tym morfologii i fizjologii w różnych warunkach środowiskowych. Opisana tutaj metoda wykorzystuje czynnik chelatujący kwas etylenodiaminotetraoctowy (EDTA) i czynnik redukujący tris(2-karboksyetylo)fosfinę (TCEP) w celu uwolnienia nabłonka z jego podnabłonkowych tkanek podporowych10. Nabłonek jest odzyskiwany po mechanicznym rozerwaniu tkanek przez wstrząsanie, a następnie nieciągłe wirowanie gradientowe w Percoll. W artykule opisano wykonalną i nowatorską technikę izolacji komórek nabłonka jelitowego kleszcza. Biotynylowane białka powierzchniowe komórek, wyizolowane z powierzchni tych komórek nabłonkowych, mogą być następnie analizowane w dalszych zastosowaniach, takich jak analiza FACS i/lub LC-MS/MS.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Disekcja nabłonka jelita R. microplus
- W dniu eksperymentu zebrać z bydła kleszcze w stadium częściowego nasycenia. Przeprowadzić sekcję kleszczy w ciągu 24 h od usunięcia ich z żywiciela.
- Przykleić pasek taśmy naprawczej do dna szalki Petriego o wymiarach 92 mm x 16 mm. Nanieść kroplę superglue na taśmę. Umieścić kleszcza stroną brzuszną na superglue i pozostawić do wyschnięcia na 2 min.
- Wlać do szalki Petriego 100 mL soli fizjologicznej z buforem fosforanowym (PBS) lub do momentu całkowitego zanurzenia kleszcza.
- Za pomocą skalpela nr 11 wykonać nacięcia od górnej części oczu do dolnych festonów po obu stronach kleszcza.
- Używając sterylnej pęsety, całkowicie usunąć scutum oraz alloscutum, aby odsłonić organy wewnętrzne.
- Usunąć cienkie, białe, nitkowate organy (tchawice) oraz pozostałe błony, aby zapobiec zanieczyszczeniu próbki.
- Usunąć jelito za pomocą pęsety, chwytając jego górną część i wyciągając z odwłoka. Usunąć wszelkie pozostałości tkanek jelita, upewniając się, że nie uszkodzono innych tkanek.
- Przechowywać jelito w lodowatym zrównoważonym roztworze soli Hanksa (HBSS) bez chlorku wapnia i siarczanu magnezu z dodatkiem koktajlu inhibitorów proteinaz (PIC). Szybko zamrozić jelita w suchym lodzie i przechowywać w temperaturze -20 °C.
Uwaga: W celu uzyskania pomocy przy sekcji jelit oraz szczegółowych informacji o organach wewnętrznych kleszczy należy odnieść się do rozdziału 3.1 publikacji D. Sonenshine, „Biology of Ticks“19.
2. Dysocjacja komórek nabłonkowych
- Przenieś wypreparowany jelito na sitko komórkowe 70 µm umieszczone w probówce 50 mL.
- Płucz tkankę jelita 50 mL lodowatego roztworu HBSS z PIC, aż roztwór stanie się przejrzysty, a jelita przybiorą biało-przezroczysty wygląd.
- Resuspenduj jelita w 30 mL lodowatego HBSS z PIC, delikatnie wymieszaj i wiruj przy 500 x g w temperaturze 4 °C przez 10 min, aby uzyskać osad z jelit. Usuń nadsącz i powtórz proces płukania trzy razy.
- Aby uwolnić komórki nabłonka jelitowego, resuspenduj jelita w 10 mL pożywki do hodowli komórkowej DMEM (Dulbecco's modified eagle medium) z dodatkiem 2% płodowej surowicy cielęcej (FCS), 0,5 mM kwasu etylenodiaminotetraoctowego (EDTA), 1 mM Tris(2-karboksyetyl)fosfiny (TCEP) oraz PIC i inkubuj przez 60 min w 37 °C przy powolnej rotacji za pomocą walcaka z prędkością 6 rpm.
- Przefiltruj zawiesinę przez sitko komórkowe 250 µm, wymieszaj przefiltrowany roztwór na wirówce typu vortex i przefiltruj go przez sitko komórkowe 70 µm, zbierając pozostały filtrat.
- Wiruj zawiesinę przy 500 x g w temperaturze 4 °C przez 20 min, aby uzyskać osad z pojedynczych komórek.
3. Izolacja pojedynczych komórek nabłonkowych przy użyciu gradientowego wirowania w gęstości
- Przygotować gradient do wirowania gęstościowego (np. Percoll), filtrując go przez papier filtracyjny wstępny AP15. Przygotować 40% i 20% Percoll w mqH20 (v/v) i chłodzić w temperaturze 4 °C przez 1 h przed nakładaniem warstw gradientu.
- Używając pompy perystaltycznej ustawionej na najniższą prędkość, nalać 3 mL 40% gradientu do wirowania gęstościowego do probówki do ultrawirowania o pojemności 16 mL, pozostawiając go na lodzie na 15 min. Prędkość pompy powinna zapewniać przepływ <1 mL na min.
- Przechylając probówkę pod kątem 45°, użyć pompy perystaltycznej, aby nałożyć 20% gradient do wirowania gęstościowego na warstwę 40%. Prędkość pompy powinna zapewniać przepływ <1 mL na min. Pozostawić warstwy na lodzie na 15 min.
- Używając pompy perystaltycznej przy przepływie <1 mL na min, nałożyć 3 mL pożywki DMEM zawierającej komórki jelita kleszcza na gradient do wirowania gęstościowego 20-40%.
- Zaprogramować wirówkę na maksymalne przyspieszenie i minimalne zwolnienie. Wirować przy 600 x g przez 10 min. Zebrać interfazy pomiędzy DMEM a 20% gradientem do wirowania gęstościowego oraz pomiędzy 20% a 40% gradientem do wirowania gęstościowego, aby wyizolować pojedyncze komórki nabłonkowe. Zebrane interfazy przechowywać w temperaturze 4 °C do późniejszych analiz.
4. Ocena izolacji komórek
- Hemacytometr
- Oczyścić szkiełko hemacytometru alkoholem.
- .Resuspenderować komórki, delikatnie pipetując je w górę i w dół. Odpiptować 100 µL zawiesiny komórkowej i przenieść do probówki mikrocentryfugowej o pojemności 1.5 mL.
- Dodać 400 µL 0.4% błękitu Trypan. Delikatnie wymieszać, strzepując probówkę.
- Pipetować 100 µL zawiesiny komórkowej potraktowanej błękitem Trypan, powoli wypełniając obie komory hemacytometru.
- Umieścić hemacytometr pod mikroskopem świetlnym, ustawiając ostrość na liniach siatki hemacytometru przy użyciu obiektywu 10X.
- Używając ręcznego licznika, policzyć żywe, niebarwione komórki w zestawie 16 pól. W tych samych polach policzyć niebieskie, martwe komórki. Kontynuować liczenie, aż policzone zostaną cztery zestawy po 16 pól.
- Obliczyć całkowitą liczbę komórek na mL, korzystając ze wzoru:
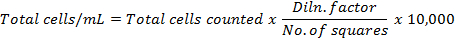
- Obliczyć procentową żywotność komórek, korzystając ze wzoru:
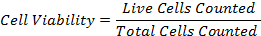
- Wizualizacja izolatu komórkowego
- Rozcieńczyć 1 µL izolowanych komórek w 9 µL HBSS w probówce mikrocentryfugowej o pojemności 1.5 mL. Delikatnie strzepnąć probówkę mikrocentryfugową w celu wymieszania.
- Pipetować 5 µL izolowanych komórek w HBSS na środek szkiełka przedmiotowego. Nanieść trzy krople medium montażowego z 4', 6-diamidino-2-fenyloindolem (DAPI).
- Inkubować szkiełko w temperaturze pokojowej przez 5 min. Ostrożnie nałożyć szkiełko nakrywkowe na preparat, unikając powstania pęcherzyków powietrza.
- Wizualizować komórki zabarwione DAPI przy pobudzeniu 360 nm i emisji 460 nm pod mikroskopem fluorescencyjnym.
5. Biotynylacja białek powierzchni komórki
- Przeprowadzić biotynylację 100 µL pojedynczych komórek nabłonkowych przy użyciu zestawu Biotin (Type A) Conjugation kit, zachowując molowy stosunek białka powierzchniowego do koniugatu 1:1, zgodnie z instrukcjami producenta
- W celu lizy komórek do biotynylowanych komórek dodać 100 µL PBS, 1% Triton X-100, 10% glicerolu, 100 µM utlenionego glutationu oraz PIC. Inkubować na lodzie przez 1 h, delikatnie mieszając co 10 min.
- Odwirować biotynylowane komórki z prędkością 20,000 x g w temperaturze 4 °C przez 20 min, aby wytrącić materiał nierozpuszczalny. Zebrać nadsącz zawierający białka cytoplazmatyczne oraz biotynylowane białka błonowe.
- Oznaczyć stężenie białka za pomocą metody Bradforda.
6. Izolacja biotynilowanych białek powierzchniowych
- Do probówki do mikrocentryfugi o pojemności 1,5 mL dodać 50 µL magnetycznych kulek z streptawidyną.
- Umieścić probówkę w statywie magnetycznym, aby zgromadzić kulki przy ściance probówki. Odpiąć i usunąć nadsącz.
- Do probówki dodać 1000 µL buforu TBS z 0,1% Tween-20. Delikatnie wymieszać i zgromadzić kulki za pomocą statywu magnetycznego. Odpiąć i usunąć nadsącz.
- Połączyć 40 µg biotynilowanych białek powierzchni komórki, rozcieńczonych do objętości 300 µL w 1x PBS, z wypłukanymi kulkami magnetycznymi. Inkubować przez 2 h w temperaturze pokojowej przy wytrząsaniu.
- Zgromadzić kulki za pomocą statywu magnetycznego, a następnie odpiąć i usunąć nadsącz.
- Do probówki dodać 300 µL buforu TBS z 0,1% Tween-20, delikatnie mieszając w celu resuspensji kulek. Zgromadzić kulki, a następnie odpiąć i usunąć nadsącz. Powtórzyć ten etap płukania dwukrotnie.
- Do kulek magnetycznych dodać 100 µL 0,1 M glicyny o pH 2,0 i inkubować w temperaturze pokojowej przez 5 min. Zgromadzić kulki i usunąć nadsącz zawierający eluowane biotynilowane białka powierzchniowe.
- Wizualizować wyizolowane białka powierzchniowe na żelu SDS-PAGE 4-20% Tris-MOPS.
7. Ocena biotinylowanych białek powierzchniowych
- Dot Blot
- Wytnij pasek membrany nitrocelulozowej o wymiarach 7 cm x 3 cm.
- Nanieś na membranę 10 µg całkowitej zawartości jelita kleszcza (z punktu 1.8 powyżej) oraz 10 µg biotynilowanego białka powierzchniowego. Pozostaw do wyschnięcia na 15 min w temperaturze pokojowej.
- Przenieś membranę do pojemnika i zanurz w 100 mL buforu blokującego. Inkubuj w temperaturze pokojowej z wytrząsaniem przez godzinę. Odlej bufor blokujący.
- Przemyj membranę nitrocelulozową w 100 µL PBS, 0,05% Tween-20 przez 5 min z wytrząsaniem. Odlej bufor do mycia i powtórz proces mycia trzy razy.
- Inkubuj w roztworze Streptawidyny-peroksydazy chrzanowej (HRP) w stężeniu 1/5000 w 100 µL PBS, 0,05% Tween-20 przez 2 h z wytrząsaniem w temperaturze pokojowej, a następnie odlej pozostały roztwór.
- Przemyj membranę nitrocelulozową w 100 µL PBS, 0,05% Tween-20 przez 5 min z wytrząsaniem. Odlej bufor do mycia i powtórz mycie trzy razy.
- W celu detekcji rozpuść 1 tabletkę 4-chloro-1-naftolu w 10 mL lodowatego metanolu. Dodaj 4 mL roztwoku zapasu metanolowego do 20 mL TBS. Dodaj 10 µL świeżego 30% nadtlenku wodoru i natychmiast nanieś na membranę nitrocelulozową.
- Inkubuj z wytrząsaniem w temperaturze pokojowej, aż substrat wytworzy nierozpuszczalny niebieski produkt końcowy. Może to potrwać od 2 do 15 min.
- Odlej roztwór detekcyjny i przemyj membranę trzy razy w 100 µL mqH2O.
- Test ELISA
- Rozcieńcz 200 ng każdej próbki w 400 µL 100 mM węglanowego buforu do powlekania i pokryj 2 ścieżki pierwszego rzędu (A#) płytki ELISA (dołki z płaskim dnem).
- Dodaj 100 µL 100 mM węglanowego buforu do powlekania do wszystkich pozostałych odpowiadających im dołków w rzędach (B-H).
- Przygotuj rozcieńczenia seryjne każdej próbki, pobierając 100 µL z każdego dołka w rzędzie A i przenosząc je do rzędu B. Wymieszaj delikatnie poprzez pipetowanie, unikając powstawania pęcherzyków powietrza. Powtarzaj rozcieńczenia w dół każdego rzędu, odlewając końcowe 100 µL z każdego dołka w rzędzie H.
- Przykryj płytkę parafilmem i inkubuj w temperaturze 4 °C przez noc.
- Przemyj płytkę 200 µL PBS, 0,05% Tween-20 na dołek trzy razy.
- Dodaj 200 µL buforu blokującego do powlekanych dołków, przykryj Parafilmem i inkubuj w temperaturze 4 °C przez noc.
- Rozcieńcz Streptawidynę-HRP 1/15 000 w buforze blokującym i dodaj 100 µL do każdego dołka płytki. Przykryj parafilmem i inkubuj w temperaturze 4 °C przez noc.
- Przemyj płytkę w 200 µL PBS, 0,05% Tween-20 na dołek pięć razy.
- W celu detekcji dodaj 100 µL odczynnika TMB na dołek. Po uzyskaniu odpowiedniego wybarwienia, zazwyczaj między 10 a 15 min, dodaj 100 µL 1 M kwasu fosforowego, aby zatrzymać reakcję.
- Odczytaj absorbancję każdego dołka przy λ = 450nm.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Komórki nabłonkowe wyizolowano z tkanek jelita R. microplus zgodnie ze schematem przedstawionym na Rysunku 1. Reprezentatywne obrazy z mikroskopii fluorescencyjnej komórek nabłonkowych jelita kleszcza przygotowanych zgodnie z tym protokołem przedstawiono na Rysunku 2A oraz 2B. Ponieważ izolację komórek przeprowadzono na częściowo nasyconych R. microp...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Inwazje kleszczy u bydła stanowią poważny problem dla przemysłu hodowlanego w tropikalnych i subtropikalnych regionach świata, przy czym najpowszechniejsza metoda zwalczania opiera się na stosowaniu akarycydów 1,4. Bm86 został wcześniej zidentyfikowany na powierzchni nabłonka jelita kleszcza jako antygen ochronny przeciwko inwazji R. microplus 10, z ograniczonym sukcesem jako strategia szczepionki ze względu na zmienność sekwencji...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Autorzy pragną podziękować Biosecurity Tick Colony (Queensland Department of Agriculture & Fisheries, Australia) za dostarczenie kleszczy Rhipicephalus microplus wykorzystanych w tym badaniu, oraz Lucasowi Karbanowiczowi za pomoc w filmowaniu.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,4% Trypan Blue | ThermoFisher Scientific 15250061 | ||
| Probówka do mikrowirówek 1,5 ml | Eppendorf | 3322 | |
| 100mM Bufor | 3,03 g Na2CO3, 6,0 g NaHCO3 1000 ml wody destylowanej pH 9,6 | ||
| 16 mL probówki wirówkowe z nasadką uszczelniającą | Thermo Scientific | 3138-0016 | Schłodzić w lodzie przed gradientem |
| 250 µ Filtr siatkowy komórek M | Thermo Fisher | 87791 | |
| 3,3′,5,5′-tetrametylobenzydyna (TMB) System płynnego podłoża do ELISA | Sigma | T0440 | przechowywany w 4C |
| 30% nadtlenku wodoru | Labscene | BSPA5.500 | |
| 4-20% Tris-MOPS Gel | Gen Script | M42015 | |
| 4-chloro-1-naftol tabletka | Sigma-Aldrich | C6788 | |
| 50 ml Falcon Tube | Corning Blue | 30 x 115 mm. Rurka stożkowa z polipropylenu. | |
| 70 &mikro; Filtr siatkowy M | BD Falcon | 352350 | |
| AP15 bibuła filtracyjna | Millipore | AO1504200 | |
| Biotyna (typ A) Zestaw do koniugacji Abcam | Ab102865 | ||
| Mikroskop preparacyjny | Olympus | SZX7 | |
| DP Manager | Olympus | 2.2.1.195 | Oprogramowanie do obrazowania komórek |
| Taśma klejąca Domowa | złota rączka | 48 mm x 25 mm Taśma klejąca | |
| Dulbecco' s Modified Eagle Medium | Gibco | 11995-065 | DMEM - lodowaty dla protokołu |
| EDTA | Amresco | 0105-500G | |
| F96 Maxisorp Immuno Plate | Nunc | 439454 | |
| Płodowa surowica bydlęca | Sigma-Aldrich | 12003C | |
| FCS Mikroskop fluorescencyjny | Olimpia | BX51 | |
| Fluoroshield z DAPI | Sigma-Aldrich | F6057-20ML | DAPI |
| Dumont | #9 Dumont - Switerzland | ||
| Glicerol | Sigma-Aldrich | G5516 | Glicerol do biologii molekularnej >99% |
| Glycine | Sigma-Aldrich | 410225 | |
| Lada ręczna | Prace biurowe | JA0376230 | |
| Hank' s Zrównoważony roztwór soli | Sigma Life Sciences | H9394 | HBSS – lodowaty dla protokołu |
| Hemacytometr | Optik Lakor | - | |
| -L-Glutation utleniony | Sigma-Aldrich | G4376 | |
| Magnetyczny stojak separacyjny | Novagen-4-Tube | Magnetic Serate | |
| Metanol | Sigma-Aldrich | 179337 | |
| Milli-Q Water | Millipore | ZRXQ003WW | Zintegrowany system oczyszczania wody do wody ultraczystej |
| Membrana nitrocelulozowa | Sciences | 66485 | 30cm x 3M membrana z czystej nitrocelulozy |
| PageRuler Drabinka białkowa wstępnie barwiona | Thermo-Fisher | SM0671 | |
| PBS | 1,16 g Na2HPO4, 0,1 g KCl, 0,1 g K3PO4, 4,0 g NaCl (500 ml wody destylowanej) pH 7,4 | ||
| Percoll | Sigma-Aldrich | P1644-500ML | |
| Pompa perystaltyczna | Masterflex | 7518-10 | |
| Kwas fosforowy | Sigma-Aldrich | P6560 | |
| Pierce Białkowy bufor blokujący T20 PBS | Thermo-Scientific | 37573 | przechowywany w temperaturze 4C. Blokujący koktajl inhibitorów |
| proteazy | buforowej Sigma-Aldrich | P8215-5ML | – przechowywany w temperaturze -20 ° C |
| Szybki start Odczynnik barwnikowy Bradford 1x | Biorad | 500-0205 | Do testu Bradford |
| Szybki start Standardy BSA Biorad | 500-0207 | Standardy BSA dla Bradford Assay | |
| Scalpel | Lab. Co | Rozmiar 11 Skalpel | |
| SilverQuest TM Zestaw do barwienia | Invitrogen | LC6070 | |
| Simply Blue TM Safe Stain | Ultrawirówka Invitrogen | LC6060 | |
| Sorvall C6+ | Thermo Scientific | 46910 | |
| Streptawidyna (HRP) | Abcam | AB7403 | |
| Streptawidyna Kulki magnetyczne | New England Biolabs | S1420S | |
| Super Glue - Ultra szybki mini | klej UHU | UHU Super Glue 1mg. Ultra szybka mini | |
| wirówka stołowa | Eppendorf | 22331 | |
| TCEP | Thermo Fisher | 20490 | |
| Triton X-100 | Biorad | 161-0407 | |
| Tween-20 | Sigma | P2287-500ML | |
| Mieszalnik wirowy | Ratek | VM1 | |
| Dotacja do kąpieli wodnej | GD100 |
Bibliografia
- Rodriguez-Valle, M., et al. Efficacy of Rhipicephalus (Boophilus) microplus Bm86 against Hyalomma dromedarii and Amblyomma cajennense tick infestations in camels and cattle. Vaccine. 30, 3453-3458 (2012).
- De Rose, R., et al. Bm86 antigen induces a protective immune-response against Boophilus microplus following DNA and protein vaccination in sheep. Vet. Immunol. Immunopathol. 71, 151-160 (1999).
- García-García, J. C., et al. Sequence variations in the Boophilus microplus Bm86 locus and implications for immunoprotection in cattle vaccinated with this antigen. Exp. Appl. Acarol. 23, 883-895 (1999).
- Abbas, R. Z., Zaman, M. A., Colwell, D. D., Gilleard, J., Iqbal, Z. Acaricide resistance in cattle ticks and approaches to its management: The state of play. Vet. Parasitol. 203, 6-20 (2014).
- Kearney, S. Acaricide (chemical) resistance in cattle ticks. , AgNote No. K58. (2013).
- Foil, L. D., et al. Factors that influence the prevalence of acaricide resistance and tick-borne diseases. Vet. Parasitol. 125, 163-181 (2004).
- Rodriguez, M., et al. High level expression of the B. microplus Bm86 antigen in the yeast Pichia pastoris forming highly immunogenic particles for cattle. J Biotechnol. 33, 135-146 (1994).
- Rodriguez, M., et al. Effect of vaccination with a recombinant Bm86 antigen preparation on natural infestations of Boophilus microplus in grazing dairy and beef pure and cross-bred cattle in Brazil. Vaccine. 13 (18), 1804-1808 (1995).
- Lew-Tabor, A. E., Rodriguez Valle, M. A review of reverse vaccinology approaches for the development of vaccines against ticks and tick borne diseases. Ticks Tick Borne Dis. 7, 573-585 (2016).
- Capella, A. N., Terra, W. R., Ribeiro, A. F., Ferreira, C. Cytoskeleton removal and characterization of the microvillar membranes isolated from two midgut regions of Spodoptera frugiperda (Lepidoptera). Insect Biochem. Mol. Biol. 27, 793-801 (1997).
- Cioffi, M., Wolfersberger, M. G. Isolation of separate apical, lateral and basal plasma membrane from cells of an insect epithelium. A procedure based on tissue organization and ultrastructure. Tissue Cell. 15, 781-803 (1983).
- Koefoed, B. M. A simple mechanical method to isolate the basal lamina of insect midgut epithelial cells. Tissue Cell. 17, 763-768 (1985).
- Roche, J. K. Isolation of a purified epithelial cell population from human colon. Methods Mol. Med. 50, 15-20 (2001).
- Terra, W. R., Costa, R. H., Ferreira, C. Plasma membranes from insect midgut cells. An. Acad. Bras. Ciênc. 78, 255-269 (2006).
- Vargas, A. E., Markoski, M. M., Cañedo, A. D., Helena, F., Nardi, N. B. Identification, isolation and culture of intestinal epithelial stem cells from murine intestine. Stem Cells. 879, 479-490 (2012).
- Autengruber, A., Gereke, M., Hansen, G., Hennig, C., Bruder, D. Impact of enzymatic tissue disintegration on the level of surface molecule expression and immune cell function. Eur. J. Microbiol. Immunol. 2, 112-120 (2012).
- Karhemo, P. R., et al. An optimized isolation of biotinylated cell surface proteins reveals novel players in cancer metastasis. J. Proteomics. 77, 87-100 (2012).
- Obenchain, F. R., Galun, R. Physiology of Ticks. Current Themes in Tropical Science Volume 1. , Pergamon Press. 201-205 (1982).
- Sonenshine, D., Roe, R. Chapter 3.1. "Biology of Ticks". 1, Two, Oxford University Press. (2014).
- Raikhel, A. S., Balashov, Y. S. "An Atlas of Ixodid Tick Ultrastructure" (English Translation). , Entomology Society of America Entomological Society of America. (1983).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
