Tutaj prezentujemy eksperymentalne i analityczne procedury opisujące dynamikę czasową zmiennych neuronalnych i sercowych snu nie-REM u myszy, które modulują reakcję snu na bodźce akustyczne.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Kwantyfikacja dynamiki mocy widmowej i tętna w podczerwieni u śpiących myszy
W tym artykule
Podsumowanie
Streszczenie
Trzy stany czujności dominują w życiu ssaków: czuwanie, sen bez szybkich ruchów gałek ocznych (non-REM) i sen REM. W miarę jak u swobodnie poruszających się zwierząt identyfikuje się coraz więcej neuronalnych korelatów zachowania, ten potrójny podział staje się zbyt uproszczony. Podczas czuwania zespoły globalnych i lokalnych czynności korowych, wraz z parametrami obwodowymi, takimi jak średnica źrenic i równowaga współczulno-owagalna, określają różne stopnie pobudzenia. Nie jest jasne, w jakim stopniu sen tworzy również kontinuum stanów mózgu – w obrębie których stopień odporności na bodźce sensoryczne i pobudzenie, a być może także inne funkcje snu, zmieniają się stopniowo – oraz jak zmieniają się peryferyjne stany fizjologiczne. Badania rozwijające metody monitorowania wielu parametrów podczas snu, a także przypisywanie konstelacjom tych funkcjonalnych atrybutów, mają kluczowe znaczenie dla udoskonalenia naszego zrozumienia snu jako wielofunkcyjnego procesu, podczas którego musi zostać osiągniętych wiele korzystnych efektów. Identyfikacja nowych parametrów charakteryzujących stany snu otworzy możliwości dla nowych ścieżek diagnostycznych w zaburzeniach snu.
Przedstawiamy procedurę opisu dynamicznych zmian stanów snu myszy nie-REM poprzez połączone monitorowanie i analizę sygnałów elektroencefalogramu (EEG)/elektrokortykogramu (ECoG), elektromiogramu (EMG) i elektrokardiogramu (EKG) przy użyciu standardowych technik zapisu polisomnograficznego. Stosując to podejście, odkryliśmy, że sen myszy nie-REM jest zorganizowany w cykle skoordynowanych oscylacji nerwowych i sercowych, które generują kolejne 25-sekundowe interwały wysokiej i niskiej wrażliwości na bodźce zewnętrzne. Dlatego ośrodkowy i autonomiczny układ nerwowy są skoordynowane, aby tworzyć behawioralnie odrębne stany snu podczas skonsolidowanego snu nie-REM. Przedstawiamy manipulacje chirurgiczne do monitorowania polisomnograficznego (tj. EEG/EMG w połączeniu z EKG) w celu śledzenia tych cykli u swobodnie śpiącej myszy, analizy w celu ilościowego określenia ich dynamiki oraz protokołów stymulacji akustycznej w celu oceny ich roli w prawdopodobieństwie przebudzenia. Nasze podejście zostało już rozszerzone na sen człowieka i obiecuje rozwikłać powszechne zasady organizacji stanów snu innych niż REM u ssaków.
Wprowadzenie
Sen ssaków to behawioralny stan odpoczynku i odporności na bodźce środowiskowe. Pomimo tej pozornej jednorodności, parametry polisomnograficzne i autonomiczne wskazują, że sen porusza się między jakościowo i ilościowo różnymi stanami neuronalnymi i somatycznymi w różnych skalach czasowych i przestrzennych1. W ciągu kilku minut do kilkudziesięciu minut następuje przełączanie między snem innym niż REM a uśpieniem REM. Senowi non-REM towarzyszy aktywność EEG o dużej amplitudzie i niskiej częstotliwości, ze szczytem widmowym około ~0,5 - 4 Hz, podczas gdy sen REM wykazuje regularną aktywność EEG w paśmie theta (6 - 10 Hz), wraz z atonią mięśniową2. W ramach snu non-REM ludzie przechodzą przez światło (S2) i głęboki sen wolnofalowy (SWS). Jak wskazuje ich nazwa, te dwa etapy wykazują niższe i wyższe progi pobudzenia3,4, odpowiednio, i różnią się przede wszystkim gęstością mocy korowego EEG o niskiej częstotliwości, określanej jako aktywność wolnofalowa (SWA; 0,75 - 4 Hz). Niejednorodność utrzymuje się w poszczególnych atakach S2 i SWS w skali czasowej od minuty do sekundy, co jest obszernie udokumentowane przez zmienną obecność SWA w trakcie ataku5,6, ale także przez EEG i rytmy potencjału pola o wyższych częstotliwościach, w tym fale wrzecionowe w paśmie sigma (10-15 Hz) i rytmy gamma (80 - 120 Hz) (dla przeglądu, Zobacz7,8,9,10).
Zamiast być subtelne, te zmiany zmieniają stan uśpienia u ludzi do skrajności spektrum. W przypadku snu innego niż REM wahają się one od przewagi SWA do stanów, które przybliżają aktywność podobną do czuwania, ponieważ zawierają znaczną część składników o wysokiej częstotliwości11,12. U gryzoni i kotów, chociaż sen nie-REM nie jest podzielony na etapy, krótki okres zwany snem pośrednim (IS) pojawia się przed rozpoczęciem snu REM13. Podczas IS inicjowane są cechy snu REM, takie jak aktywność theta hipokampa i fale ponto-genikulo-potyliczne, podczas gdy sygnatury snu inne niż REM, takie jak fale wrzecionowe i SWA, są nadal obecne, co wskazuje na mieszanie się tych dwóch stanów snu14,15. Niemniej jednak, IS może być funkcjonalnie odrębny, ponieważ jest modulowany przez leki przeciwdepresyjne16 oraz poprzez prezentację nowego obiektu podczas wcześniejszego przebudzenia17, i przyczynia się do ustawienia progu pobudzenia18. Co więcej, wykresy przestrzeni stanów parametrów EEG i EMG swobodnie poruszających się szczurów pokazują klaster punktów14, który jest ciągły między snem innym niż REM, snem REM i czuwaniem. Występują również sporadyczne spadki SWA, bez wchodzenia w stan czuwania lub snu REM, co prowadzi do znacznych wahań względnej obecności składników o niskiej i wysokiej częstotliwości podczas skonsolidowanego ataku snu bez fazy REM14,19,20. Wreszcie, zmienne proporcje rytmów SWA i wyższych częstotliwości podczas snu non-REM występują nie tylko w czasie, ale także pokazują regionalne różnice w amplitudzie i synchronizacji między obszarami korowymi19.
Sen ssaków nie-REM jest daleki od jednolitości. Nie jest jednak jasne, czy taka niejednorodność prowadzi do stanów różniących się funkcjami i atrybutami behawioralnymi. W kilku rodzajach zaburzeń snu ciągły sen jest zakłócany przez spontaniczne przebudzenia i niewłaściwe zachowania motoryczne. Co więcej, analizy spektralne wykazują zmiany we względnej obecności wyższych częstotliwości w EEG21 oraz w parametrach autonomicznych, takich jak tempo oddychania i bicie serca22. Uporządkowana sekwencja stabilnych stanów snu zostaje w ten sposób zaburzona, a elementy pobudzenia korowego i/lub autonomicznego wdzierają się w niekontrolowany sposób. Dlatego zrozumienie kontinuum stanów snu może mieć znaczenie dla choroby. Dodatkowo, zakłócenia snu spowodowane hałasem środowiskowym w środowiskach miejskich są związane z ogólnymi zagrożeniami dla zdrowia, co sprawia, że kluczowe jest zidentyfikowanie momentów zwiększonej wrażliwości podczas snu23.
Eksperymenty z pobudzeniem behawioralnym u śpiących ludzi wskazują, że najtrudniej jest obudzić się ze snu nie-REM zdominowanego przez SWA (etap S3), podczas gdy lekki sen non-REM (etap S2) i sen REM wykazują porównywalne i niższe progi pobudzenia4. Korowe przetwarzanie krótkich bodźców dźwiękowych różni się znacznie między fazą REM, S2 i S324,25, co wskazuje, że wzorce aktywności korowej specyficzne dla stanu modulują pierwsze etapy przetwarzania sensorycznego. W przypadku snu innego niż REM u ludzi skłonność do budzenia się w odpowiedzi na hałas zmienia się w zależności od obecności fal wrzecionowych i rytmów alfa w EEG26,27,28. Rytmiczności korowo-wzgórzowej podczas wrzecion towarzyszy zwiększone hamowanie synaps zarówno na poziomie wzgórza, jak i kory mózgowej, co uważa się za przyczynianie się do tłumienia przetwarzania sensorycznego7.
Jak są zorganizowane okresy snu odporne na hałas i wrażliwe i jakie są ich determinanty? Zarówno u myszy, jak i u ludzi zidentyfikowaliśmy ostatnio oscylację rytmów neuronalnych o 0,02 Hz i powolną podczerwienią. W zależności od fazy tej oscylacji 0,02 Hz, myszy wykazywały zmienną reaktywność na bodźce zewnętrzne, budząc się lub śpiąc w hałasie. Co ciekawe, oscylacja ta była skorelowana z szybkością bicia serca, co wskazuje, że autonomiczny układ nerwowy uczestniczy w modulacji podatności snu na bodźce zewnętrzne1. Rytmy hipokampa związane z pamięcią były również zorganizowane w tym rytmie i, co najbardziej uderzające, jego siła korelowała z jakością konsolidacji pamięci u ludzi. Oscylacja 0,02 Hz wydaje się być zatem zasadą organizującą sen nie-REM gryzoni i ludzi, która moduluje zarówno wrażliwość na środowisko, jak i przetwarzanie pamięci wewnętrznej. To ponownie podkreśla potrzebę wieloparametrycznej i ciągłej oceny stanów snu w celu rozpoznania ich funkcjonalności i zidentyfikowania miejsc o potencjalnej podatności.
Tutaj prezentujemy procedurę ekstrakcji kształtu fali tej dynamiki, w tym chirurgiczne wszczepienie implantacji myszom w celu połączonych pomiarów EEG/ECoG i EMG-EKG, ekspozycję na bodźce sensoryczne i procedury analizy. Procedura ta stanowi podstawę do postrzegania snu jako stale zmieniającego się, ale wysoce zorganizowanego stanu czujności, podczas którego sekwencyjnie wykonywane są różne podstawowe funkcje snu. Mówiąc bardziej ogólnie, procedura ta ma zastosowanie do podejść mających na celu wyodrębnienie cech spektralnych i autonomicznych, które poprzedzają wynik behawioralny podczas snu zarówno w stanie zdrowia, jak i choroby.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wszystkie procedury eksperymentalne zostały przeprowadzone zgodnie z wytycznymi Komitetu ds. Opieki nad Zwierzętami Uniwersytetu w Lozannie oraz Service de la Consommation et des Affaires Vétérinaires kantonu Vaud.
1. Operacja w celu rejestracji EEG/EMG-EKG
- Zakwaterowanie i wybór zwierząt.
- Zwierzęta (C57Bl/6J, 7 - 9 tygodni, 25 - 30 g) utrzymywać w cyklu ciemności/światła 12:12-h, w pojedynczych klatkach, w standardowych warunkach (wilgotność 40%, 22 °C), z dostępem do pożywienia i wody ad libitum.
- Używać wyłącznie samców, aby uniknąć wpływu cyklu hormonalnego na sen.
- Przygotowanie elektrod.
- Wykonać elektrody EEG/ECoG (używane w kroku 1.3.11), stosując odcinki złotego drutu o długości ~0.5 cm (75% Au, 13% Ag i 12% Cu; średnica: 0.2 mm), z których każdy należy przylutować do pozłacanego stalowego wkręta (długość 3 mm, średnica u podstawy 1.1 mm; patrz Rysunek 1). Przygotować 2 elektrody EEG na zwierzę i oczyścić je w 70% etanolu.
- Przygotować elektrody EMG-ECG ze złotych drutów o długości 3 - 4 cm (75% Au, 13% Ag i 12% Cu; średnica: 0.2 mm). Zgiąć druty pod kątem 90° w odległości 1 cm od jednego końca, a na drugim końcu uformować cewkę (ø 1 - 2 mm) (Rysunek 1). Pomiędzy końcami zgiąć drut, tworząc niewielkie zakrzywienie odpowiadające profilowi powierzchni kości między móżdżkiem a lambdą.
- Przygotować 2 elektrody EMG-ECG na zwierzę.
- Przygotować 6-kanałowy konektor głowowy gniazdo-bolec (raster: 2.54 mm x 2.54 mm, rozmiar: 5 mm x 8 mm x 9 mm, długość bolca: 5 mm; patrz Rysunek 1).
- Zakleić taśmą podstawę zarówno gniazd, jak i bolców konektora .
- Na końcówki 4 z 6 bolców nałożyć niewielką ilość spoiwa lutowniczego, aby ułatwić lutowanie elektrod EEG i EMG-ECG podczas operacji (patrz krok 1.3.16).

Rycina 1. Schematyczne przedstawienie miejsc implantacji elektrod EEG i EMG na czaszce myszy.
Kraniotomie nr 1 i nr 2 znajdują się ~2 mm bocznie od linii środkowej i ~2 mm rostralnie od bregma. Kraniotomie nr 3 i nr 4 znajdują się ~2 mm rostralnie od lambda i są odpowiednio 4 i 2 mm bocznie od linii środkowej. Dwie elektrody EEG, wykonane poprzez przylutowanie złotego drutu do górnej części pozłacanej stalowej śruby (#2 i #4), znajdują się w prawej półkuli. Dwie lewe śruby (#1 i #3) służą jako podpory. Należy pamiętać, że elektrody EMG-ECG nie powinny stykać się z tymi dwiema śrubami wspierającymi. Elektrody EMG-ECG to złote druty o długości 3 - 4 cm, zgięte pod kątem 90° na odcinku 1 cm na ich końcach rostralnych i zwinięte w pętlę (ø 1 - 2 mm) na końcach kaudalnych. 2 elektrody EEG i 2 elektrody EMG są połączone z 2-krotny 3-kanałowym konektorem głowicowym poprzez przylutowanie jednego drutu do jednego pinu narożnego, co pokazano za pomocą przerywanych linii. Dalsze szczegółowe informacje na temat tych elektrod i ich implantacji można znaleźć w 29. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
- Operacja implantacji.
- Zanurzyć zwierzę w komorze indukcyjnej z izofluranem (4 - 5% izofluranu + O2 w przepływie 1 - 2 L/min przez 3 - 4 min). Po wyjęciu myszy z komory, przed unieruchomieniem stereotaktycznym, wstrzyknąć dożylnie (i.p.) 5 µg/g karprofenu.
- Postępować zgodnie ze standardowymi procedurami unieruchamiania myszy w aparacie stereotaktycznym. Utrzymać znieczulenie izofluranem za pomocą maski gazowej (3% izofluranu + O2 podczas unieruchamiania przy 1 L/min). Przez cały czas trwania operacji utrzymywać temperaturę ciała na poziomie 37 °C, korzystając z maty grzewczej.
- Chronić oczy przed wysychaniem, nakładając maść z witaminą A. Sprawdzić poziom tolerancji chirurgicznej zwierzęcia poprzez test odruchu cofania łapy.
- Unieruchomić głowę, pozycjonując pręty uszne na czaszce ich tępymi, przeciwstawnymi końcami, a nie końcówkami (bez wprowadzania ich do kanałów słuchowych)29. Umieścić pręt podżuchwowy (jak zwykle), aby zapewnić poziome ustawienie głowy.
UWAGA: Takie unieruchomienie minimalizuje uszkodzenia uszu, co jest istotne dla eksperymentów z pobudzeniem akustycznym (patrz sekcja 4 niniejszej procedury). - Monitorować oddychanie zwierzęcia podczas zabiegu; powinno ono wynosić ~2 - 3 oddechów/2 s. W razie potrzeby dostosować stężenie izofluranu w dozowniku gazu; powinno ono stopniowo spadać w trakcie operacji, z 3% podczas unieruchamiania do 1,0 - 1,5% pod koniec zabiegu.
- W celu nawodnienia zwierzęcia wstrzykiwać 100 µL 0,9% NaCl i.p. raz na godzinę, używając ultracienkiej strzykawki insulinowej.
- Zapewnić oświetlenie głowy zwierzęcia za pomocą jasnego źródła światła.
- Oczyścić obszar 70% EtOH oraz środkiem dezynfekcyjnym na bazie jodu (zwilżenie futra zapobiega przedostawaniu się włosów do pola operacyjnego).
- Podnieść skórę w centrum czaszki pęsetą Adsona i delikatnie naciąć uniesioną część skóry wzdłuż linii środkowej, od szczytu szyi do poziomu oczu, używając drobnych nożyczek. Usunąć skórę głowy (~1 cm w przekroju przednio-tylnym, ~0,5 - 0,8 cm bocznie).
- Upewnić się, że okno jest wystarczająco duże (po obu stronach), aby wyraźnie widzieć bregma oraz szczeliny lambda czaszki. Unieruchomić skórę po obu stronach za pomocą zacisków typu bulldog, aby zapewnić dostęp do kości.
- Usunąć tkankę łączną (okostną), ostrożnie zdrapując ją skalpelem. Oczyścić obszar środkiem dezynfekcyjnym na bazie jodu i osuszyć czaszkę gazikiem antyseptycznym.
- Używając ostrego ostrza skalpela (rozmiar 15), wydrapać czaszkę, aby uzyskać oczyszczoną i zmatowiałą powierzchnię kości. Używając wyłącznie czubka skalpela, wydrapać siatkę rowków w odstępach ~1 - 2 mm.
UWAGA: Poprawia to przyczepność dwuskładnikowego kleju epoksydowego do czaszki w kroku 1.3.15. - Za pomocą mikrowiertarki z wiertłem o rozmiarze 1/005 wykonać 4 kraniotomie (~0,7 mm ø) w czaszce w określonych miejscach (Rysunek 1; patrz również krok 1.3.11.3.). Wydmuchać pył kostny za pomocą pipety Pasteura i oczyścić wszelkie krwawienia gazikami antyseptycznymi.
- W przypadku wystąpienia krwawienia upewnić się, że zostało ono całkowicie zatamowane przed wznowieniem procesu. Użyć gąbki hemostatycznej, aby przyspieszyć hemostazę.
- Dwie kraniotomie w prawej półkuli wykorzystać do wprowadzenia elektrod śrubowych (kraniotomie nr 2 i nr 4).
- Dwie kraniotomie w lewej półkuli wykorzystać do wprowadzenia śrub kotwiczących, które ustabilizują implant (kraniotomie nr 1 i nr 3).
UWAGA: W celu zwiększenia stabilności zastosowano do 4 śrub kotwiczących29.
UWAGA: Precyzyjne współrzędne stereotaktyczne to: 2 mm od linii środkowej w obu półkulach i 2 mm rostralnie od bregmy (kraniotomie nr 1 i nr 2), 2 mm rostralnie od lambdy i 4 mm bocznie w lewo od linii środkowej (kraniotomia nr 3), 2 mm rostralnie od lambdy i 2 mm bocznie w prawo od linii środkowej (kraniotomia nr 4). Patrz Rysunek 1.
- W lewej półkuli wkręcić przez kraniotomie dwie pozłacane śruby wspierające.
- Zacisnąć śrubę w kleszczykach hemostatycznych i trzymać ją pionowo nad kraniotomią. Ostrożnie zbliżyć dół śruby do otworu kraniotomii. Obracać śrubę, nie odchylając jej od pozycji pionowej.
UWAGA: Wystarczy zaledwie 1,5 obrotu, aby uzyskać dobrą stabilność mechaniczną i wysoką jakość sygnałów, minimalizując jednocześnie nacisk na tkanki pod nimi25. - Po prawej stronie wkręcić przez kraniotomie wcześniej przygotowane elektrody (opisane w kroku 1.2.1.).
- Zacisnąć śrubę w kleszczykach hemostatycznych i trzymać ją pionowo nad kraniotomią. Ostrożnie zbliżyć dół śruby do otworu kraniotomii. Obracać śrubę, nie odchylając jej od pozycji pionowej.
- Pomocą pęsety ostrożnie unieść brzeg skóry od mięśni szyi. Wprowadzić przewody EMG-ECG, z rozwiniętymi końcami wewnątrz mięśni (lewym i prawym). Przykleić środkowe części do czaszki tak, aby lewy przewód EMG-ECG wychodził obok tylnej lewej śruby kotwiczącej, a prawy przewód EMG-ECG znajdował się obok przedniej lewej śruby kotwiczącej.
- Aby wykrywać sygnały ECG z serca podczas snu, upewnić się, że przewody EMG-ECG są wprowadzone do mięśnia na głębokość ~0,8 - 1 cm, a ich pętlami są oddalone od siebie tak bardzo, jak to możliwe.
- Za pomocą szpatułki pokrytej dwuskładnikowym klejem epoksydowym nałożyć klej na czaszkę pomiędzy śruby i wokół nich. Pozostawić do wyschnięcia w świetle, chroniąc jednocześnie oczy zwierzęcia przed zbyt silnym oświetleniem.
UWAGA: Podstawy śrub muszą być zakryte; dostępne powinny być jedynie wychodzące z kleju przewody. - Upewnić się, że klej wypełnia przestrzeń między dwiema elektrodami EMG-ECG wychodzącymi na powierzchnię, tak aby nie było między nimi a śrubami wspierającymi kontaktu elektrycznego. Zachować szczególną ostrożność, aby nie przykleić skóry do czaszki; skóra powinna pozostać wolna i móc swobodnie przesuwać się wokół kleju.
- Przyciąć przewody EEG i EMG-ECG tak, aby wystawały z kleju na ok. 0,5 mm. Przylutować cztery piny w narożniku złącza przygotowanego w kroku 1.2.3. do czterech przewodów wychodzących z kleju (Rysunek 1).
- Starać się umieścić piny złącza jak najbliżej siebie, aby zminimalizować wysokość implantu; użyć małego zacisku typu krokodyl przymocowanego do uchwytu stereotaktycznego, który utrzyma pozycję złącza. Zminimalizować czas kontaktu z grotem lutownicy, ponieważ szybko nagrzewa ona śruby.
- Wypełnić przestrzeń między klejem a złączem cementem dentystycznym, aby zakryć części lutowane. Wygładzić powierzchnie i unikać ostrych krawędzi, które mogłyby zranić zwierzę. Ponadto unikać dotykania skóry, gdyż prowadzi to do świądu.
- Zdjąć zaciski typu bulldog. W razie potrzeby zamknąć ranę za pomocą sterylnej nici chirurgicznej (wchłanialnej) przed i za złączem, tworząc proste szwy przerywane i dwa węzły kwadratowe (igła 5-0 FS-3, nić 45 cm).
- Monitorować zwierzę aż do całkowitego wybudzenia. Zważyć zwierzę po operacji i przenieść je do klatki macierzystej w celu rekonwalescencji.
- Opieka pooperacyjna i podłączenie do systemu.
- Monitorować zwierzę codziennie przez tydzień. Zwracać uwagę na utratę masy ciała, zmniejszoną lub nieprawidłową aktywność oraz oznaki infekcji. Postępować zgodnie z procedurą oceny ustaloną przez właściwe organy weterynaryjne.
- 5-6 dni po operacji podłączyć kabel rejestrujący do złącza na głowie zwierzęcia, pozostawiając je w klatce macierzystej. Odczekać dodatkowe 4 - 5 dni przed rozpoczęciem rejestracji, aby zwierzę przyzwyczaiło się do tych warunków i spało naturalnie.
2. Podstawowa ocena danych EEG/EMG-ECG w celu określenia stanu czujności
- Rejestruj dane EEG oraz EMG-ECG przez 48 h przy użyciu komercyjnego oprogramowania do polisomnografii (np. (Somnologica, SleepSign lub Sirenia). Należy zastosować typowe ustawienia, takie jak wzmocnienie 2000x; częstotliwość próbkowania podczas akwizycji wynoszącą 2000 Hz, z późniejszą decymacją do 200 Hz po akwizycji; oraz filtr górnoprzepustowy 0,7 Hz dla EEG i filtr górnoprzepustowy 10 Hz dla EMG-ECG.
- Wyeksportuj dane w ".edf" format pliku
- Otwórz ".edf" pliki z napisanym przez autora (np. oprogramowanie (w środowisku Matlab), które półautomatycznie klasyfikuje każdą 4-sekundową epokę jako stan czuwania, sen NREM, sen REM oraz odpowiadające im artefakty.
UWAGA: Alternatywnie dostępne jest kilka programów do półautomatycznego punktowania. Niniejsza procedura opisuje niektóre z podstawowych kroków, które należy wykonać w celu skonfigurowania punktowania przy użyciu oprogramowania zastosowanego w tym badaniu; inne systemy półautomatycznego punktowania mogą opierać się na innych parametrach. - Za pomocą oprogramowania oddziel ".edf" pliki z czterech 12-godzinnych serii nagrań.
- Usuń artefakty wynikające z aktywności EMG-EKG obecnej w sygnale EEG lub z nieprzypisywalnego stanu behawioralnego1,29.
- Oblicz średnią z wartości bezwzględnych EEG (EEGśrednia) oraz EMG (EMGśrednia) wartości w ciągu 12 h rejestracji odpowiednio z zapisów EEG oraz EMG-EKG.
- Wyznacz średnie wartości EEG/EMG dla każdej 4-sekundowej epoki (EEGEpoka/EMGEpoka).
- Klasyfikuj epoki jako "Wybudzenie" kiedy EEGEpoka<EEG (elektroencefalografia)średnia oraz EMGEpoka>EMG (elektromiografia)średnia oraz jako "Sen NREM (sen bez szybkich ruchów gałek ocznych)" kiedy EEGEpoka>EEGśrednia oraz EMGEpoka<EMG (elektromiografia)średnia
- Zaklasyfikuj epoki, które nie spełniają tych kryteriów, przy użyciu algorytmu korygującego opartego na epokach poprzedzających i następujących.
- Klasyfikuj epoki jako sen REM, gdy EEGEpoka<EEGśrednia oraz EMGEpoka<EMG (elektromiografia)średnia.
- Udoskonalić punkty krytyczne, takie jak przejścia ze snu NREM do stanu czuwania, epoki snu REM oraz mikrowybudzenia podczas snu NREM. Dokonać wizualnej inspekcji punktacji, aby zapewnić prawidłowe określenie stanu czuwania.29,30.
UWAGA: Zawsze należy przeprowadzić końcową inspekcję wizualną i walidację punktacji.
3. Analiza oscylacji infraszybkich w EEG i rytmie serca
- Do tej analizy wybierz tylko epizody snu non-REM trwające ≥ 96 s (t.j. co najmniej 24 epoki po 4 s); patrz Rysunek 2.
UWAGA: Spersonalizowane procedury są dostępne na żądanie1.

Rysunek 2. Określanie dynamiki mocy pasma sigma podczas niezakłóconego snu non-REM.
(A) Góra: zapisy EEG (czarny) i EMG-ECG (szary) podczas pierwszych 100 min fazy jasnej u jednej myszy. Stany czuwania są oznaczone kolorowym paskiem nad surowymi zapisami. Środek: typowy przykład ciągłego (>96 s) epizodu snu non-REM. Dół: losowo wybrany 16-sekundowy przedział ilustrujący podział na 4-sekundowe epoki. Następny krok analizy pokazano tylko dla tych czterech epok, ale jest on właściwy dla każdej epoki zawartej w epizodzie. (B) Góra: cztery kolejne FFT wygenerowane z 4-sekundowych epok pokazanych w dolnym panelu A. Pasmo sigma (10-15 Hz) jest zaznaczone na czerwono. Górny prawy róg: 1-sekundowy wstawka z ostatniej epoki pokazująca fale R obecne w podniesionym do kwadratu sygnale EMG-ECG. Dół: przebieg czasowy mocy sigma wyekstrahowanej z odpowiadającego powyżej widma. Linie przerywane ilustrują kontynuację wartości mocy przed i po czterech wybranych do wyświetlenia epizodach non-REM. (C) Przebiegi czasowe znormalizowanej mocy sigma (czerwony) i tętna (w BPM) (szary), gdzie część zilustrowana w (B) znajduje się między pionowymi liniami przerywanymi. Poniżej znajduje się odpowiadający przefiltrowany sygnał EEG w paśmie sigma (10 - 15 Hz). (D) Wynik FFT obliczonego dla przebiegu czasowego mocy sigma pokazanego w (C), wykazujący dominujący szczyt przy 0,016 Hz. Kliknij tutaj, aby zobaczyć większą wersję tego rysunku.
- Wyodrębnij wartości mocy dla pasma częstotliwości sigma (10-15 Hz) mocy widmowej w 4-s przedziałach (Rysunek 2A i B), wykorzystując obliczenia szybkich transformat Fouriera (FFT)1.
- Oblicz bazową moc widmową dla snu non-REM, uśredniając wartości w każdym przedziale częstotliwości dla wszystkich epok snu non-REM (z tego uśredniania wyklucza się artefakty oraz epoki przejścia między stanami czuwania). Znormalizuj wartości mocy sigma każdej epoki do średniej mocy pasma sigma podczas snu non-REM w interesującym przedziale czasowym. Przedstaw wyniki na wykresie w funkcji czasu (Rysunek 2C).
- Oblicz FFT przebiegu czasowego mocy sigma z zastosowaniem okna Hamminga, aby ujawnić oscylacyjne komponenty częstotliwości dynamiki mocy (Rysunek 2D)1.
- Należy pamiętać, że ponieważ epizody snu non-REM mają różny czas trwania, otrzymane FFT mają różną rozdzielczość częstotliwości. Przeprowadź interpolację, aby dostosować rozdzielczość do najwyższej uzyskanej z najdłuższego epizodu snu non-REM, a następnie uśrednij FFT wszystkich epizodów.
- Kontynuuj te analizy, aby opisać zależności fazowe między dynamiką sygnałów EEG i ECG.
- Wyodrębnij dane o uderzeniach serca z kwadratu sygnału EMG-ECG po filtrowaniu górnoprzepustowym 30-Hz, używając odpowiednich procedur do detekcji szczytów załamka R.
UWAGA: Ograniczenie minimalnego odstępu czasu między dwoma kolejnymi załamkami R do 80 ms pomaga uniknąć włączenia sporadycznych szczytów artefaktowych wynikających z drgań mięśni1. - Zmierz odstępy RR i oblicz średnią częstość akcji serca w uderzeniach na minutę (BPM) dla każdego 4-s przedziału (Rysunek 2B i C).
4. Narażenie na hałas
- Generuj szumy (np. szum biały) za pomocą specjalistycznego oprogramowania. Ustaw czas trwania na 20 s i natężenie na 90 dB SPL (mierzone wewnątrz klatki). Odtwarzaj szumy przez standardowe głośniki aktywne1.
- Po zabiegu chirurgicznym, podczas habituacji do warunków rejestracji, odtwarzaj szumy eksperymentalne losowo, kilka razy w ciągu dnia i w różnych momentach1.
- W warunkach eksperymentalnych (podczas rejestracji danych EEG/EMG/EKG) odtwarzaj szum pseudolosowo podczas pierwszych 100 min od początku fazy światła (ZT0). Aby odtworzyć szum, spełnij następujące warunki1:
- Upewnij się, że mysz znajduje się w śnie non-REM od > 40 s.
- Upewnij się, że poprzednia ekspozycja miała miejsce więcej niż 4 min wcześniej.
UWAGA: Skutkuje to ok. 15 ekspozycjami na sesję.
- Oznacz początek czasu rejestracji oraz moment wystąpienia każdej ekspozycji na szum. Przez cały czas trwania procedury eksperymentator nie powinien znać składu widmowego snu non-REM.
- Gromadź wszystkie dane za pomocą oprogramowania do polisomnografii1,29.
5. Retrospektywna analiza snu w oparciu o wynik behawioralny podczas ekspozycji na hałas
- Ręcznie oceń zapisy EEG/EMG-ECG w rozdzielczości 4 s, nie znając czasu ekspozycji na hałas1.
- Użyj specjalnie napisanego skryptu do wyodrębnienia danych EEG/EMG-ECG oraz danych o ekspozycji na hałas1.
- Zaklasyfikuj zdarzenie jako „przespanie” (sleep-through), gdy sygnały EEG i EMG pozostają niezmienione podczas ekspozycji na hałas (Rysunek 3A). Uznaj za „wybudzenie” (wake-up), gdy amplituda EEG spada, a częstotliwość EEG wzrasta, w połączeniu z wykrytą aktywnością mięśniową na elektrodzie EMG-ECG (Rysunek 3B).
- Odrzuć próby, w których zwierzęta obudziły się w okresie przedstymulacyjnym lub w ciągu pierwszych 4 s ekspozycji na hałas (Rysunek 3D).
- Zdefiniuj wskaźnik skuteczności pobudzenia jako proporcję prób z wybudzeniem do wszystkich uwzględnionych prób („Wybudzenie” oraz „Przespanie”).
- We wszystkich uwzględnionych próbach zbadaj dynamikę mocy pasma sigma w okresie przedstymulacyjnym (Rysunek 3E)1.
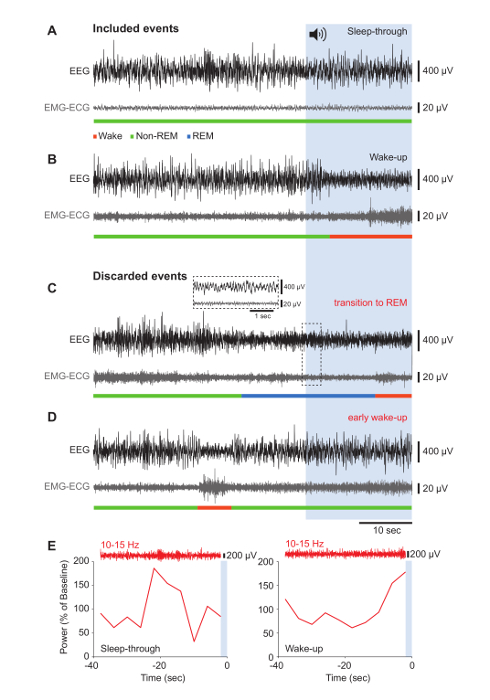
Rysunek 3Efekty behawioralne w odpowiedzi na początek hałasu: reprezentatywne wyniki, które włączono do analizy lub z niej wykluczono.
(A-D) Surowe zapisy sygnałów EEG (czarne) i odpowiadających im sygnałów EMG-EKG (szare) z 40 s przed wystąpieniem szumu oraz z 20 s trwania szumu, reprezentowanego przez obszar zacieniowany na niebiesko. Stany czuwania zostały oznaczone kodem kolorystycznym. Aby zilustrować dane uwzględnione w analizie, przedstawiono reprezentatywne "Ciągłość snu" (A) i "Wybudzanie" (B) zdarzenia zostały przedstawione. Odrzucone wyniki zawierały przejścia do snu REM (C) oraz przedwczesny "Wybudzanie" odpowiedź (D). Wstawka przedstawia powiększony fragment zapisów EEG oraz EMG-ECG charakterystycznych dla fazy snu REM. (E) Typowe przykłady dynamiki mocy pasma sigma w oknie 40 s przed wystąpieniem szumu podczas a "Przesypianie nocy" (lewa) oraz a "Wybudzanie" (prawo) zdarzenie. Powyżej przedstawiono surowy zapis EEG przefiltrowany pasmowo dla pasma sigma. Obszar niebieski reprezentuje początek szumu. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Rysunek 2A (górny panel) pokazuje 100-minutowe odcinki spontanicznych zachowań związanych ze snem i czuwaniem, rejestrowane przez elektrody polisomnograficzne wszczepione zgodnie z opisem (patrz Rysunek 1). Wzrosty i spadki amplitudy EEG i EMG przy początku snu innego niż REM są wyraźnie widoczne. Przerywany sen REM charakteryzuje się spadkiem amplitudy EEG i dalszym spadkiem tonu EMG, który nie jest widoczny w te...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Tutaj pokazujemy, jak ustalić ciągły profil czasowy snu innego niż REM, który integruje zmienne EEG, EMG i EKG. Jest to pierwszy krok w kierunku opracowania integracyjnego opisu snu myszy, który może pomóc w zidentyfikowaniu wcześniej nierozpoznanej skali czasowej, w której organizowana jest wysoka i niska odporność na hałas podczas snu innego niż REM1. Podobna struktura czasowa została również opisana w ludzkim śnie nie-REM za pomocą analogicznej analizy1.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnego interesu finansowego.
Podziękowania
Dziękujemy wszystkim członkom laboratorium za ich wkład w napisanie i uważne przeczytanie tego manuskryptu. Jesteśmy wdzięczni Paulowi Frankenowi za inspirujące dyskusje, dr Gisèle Ferrand za pomocne komentarze na temat protokołu chirurgicznego oraz dr Jean-Yves Chatton za dostarczenie oryginalnych plików wykonywalnych Labview do ekspozycji na hałas. Finansowanie zostało zapewnione przez Szwajcarską Narodową Fundację Nauki (granty 31003A_146244 i 31003A_166318) oraz Etat de Vaud.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 2-składnikowy klej epoksydowy | Henkel | Loctite EA 3450 | |
| Wchłanialne włókno szyjące (Prolen) | Ethicon | 5-0 FS-3 | |
| Kleszcze Adson | FST | 11006-12 | |
| Wacik antyseptyczny | VWR | 149-0332 | |
| Attane Isoflurane | Piramal | Isofluran 250mL | |
| Złącza 3 x 2-kanałowe | ENA AG | 2.316 | Raster 2,54 x 2,54 mm; rozmiar 5 x 8 x 9 mm; rozmiar pinu 5 mm; http://www.ena.ch/ |
| Komutator | Dragonfly Model | #SL-10 | |
| Wzmacniacz EMBLA | EMBLA | Cienkie | |
| nożyczki | FST | 14108-09 | |
| Śruba stalowa z płaskim pozłacana | J.I. Morris | FF00CE125 | https://jimorrisco.com/ |
| Złoty drut | CMSA | T.69 5gr | http://www.cmsa.ch/en/ |
| Gąbka hemostatyczna | Pfizer | Gelfoam | |
| środek dezynfekujący na bazie jodu (Betadine) | Mundipharma | standardowy roztwór 60mL | |
| Komet stal wiertnicza 1/005PM104 | UNOR AG | 22310 | |
| Oprogramowanie do analizy Matlab | MathWorks | R2016b | https://ch.mathworks.com/products/matlab.html |
| Microdrill | Fine Science Tools | 96758 | |
| Uchwyt głowicy do znieczulenia gazem dla myszy | Kopf Instruments | Model 923-B | Maść http://kopfinstruments.com/product/model-923-b-mouse-gas-anesthesia-head-holder/ |
| okulistyczna | Pharmamedica | VITA-POS | |
| Paladur (płyn) | UNOR AG | 2260215 | do cementu dentystycznego |
| Palavit (proszek) | UNOR AG | 5410929 | do cementu dentystycznego |
| Rama stereotaktyczna dla małych zwierząt | Kopf Instruments | Model 930 | http://kopfinstruments.com/product/model-930-small-animal-stereotaxic-frame-assembly/ |
| Drut lutowniczy | Regulator temperatury Stannol | 593072 | |
| - Mini sonda doodbytnicza | Phymep | 4090502 | http://www.phymep.com/produit/dc-temperature-controller/ |
| Regulator temperatury - poduszka grzewcza | Phymep | 4090205 | http://www.phymep.com/produit/dc-temperature-controller/ |
Bibliografia
- Lecci, S., et al. Coordinated infra-slow neural and cardiac oscillations mark fragility and offline periods in mammalian sleep. Sci Adv. 3 (2), 1602026(2017).
- Rechtschaffen, A., Kales, A. A manual of standardized terminology, techniques and scoring system for sleep of human subjects. U.S. Department of Health, Education, and Welfare. , Washington, DC. (1968).
- Blake, H., Gerard, R. W. Brain potentials during sleep. Am J Physiol. 119, 692-703 (1937).
- Rechtschaffen, A., Hauri, P., Zeitlin, M. Auditory awakening threshold in REM and NREM sleep stages. Percept Mot Skills. 22 (3), 927-942 (1966).
- Achermann, P., Borbély, A. A. Low-frequency (< 1 Hz) oscillations in the human sleep electroencephalogram. Neuroscience. 81 (1), 213-222 (1997).
- Aeschbach, D., Borbély, A. A. All-night dynamics of the human sleep EEG. J. Sleep Res. 2 (2), 70-81 (1993).
- Astori, S., Wimmer, R. D., Lüthi, A. Manipulating sleep spindles--expanding views on sleep, memory, and disease. Trends Neurosci. 36 (12), 738-748 (2013).
- Brown, R. E., Basheer, R., McKenna, J. T., Strecker, R. E., McCarley, R. W. Control of sleep and wakefulness. Physiol Rev. 92 (3), 1087-1187 (2012).
- Buzsáki, G., Wang, X. J. Mechanisms of gamma oscillations. Annu Rev Neurosci. 35, 203-225 (2012).
- Rasch, B., Born, J. About sleep's role in memory. Physiol Rev. 93 (2), 681-766 (2013).
- Halász, P., Bòdizs, R. Dynamic structure of NREM sleep. , Springer. (2013).
- Terzano, M. G., Parrino, L., Spaggiari, M. C. The cyclic alternating pattern sequences in the dynamic organization of sleep. Electroencephalogr Clin Neurophysiol. 69 (5), 437-447 (1988).
- Gottesmann, C. Detection of seven sleep-waking stages in the rat. Neurosci Biobehav Rev. 16 (1), 31-38 (1992).
- Benington, J. H., Kodali, S. K., Heller, H. C. Scoring transitions to REM sleep in rats based on the EEG phenomena of pre-REM sleep: an improved analysis of sleep structure. Sleep. 17 (1), 28-36 (1994).
- Sullivan, D., Mizuseki, K., Sorgi, A., Buzsáki, G. Comparison of sleep spindles and theta oscillations in the hippocampus. J Neurosci. 34 (2), 662-674 (2014).
- Vas, S., et al. Differential adaptation of REM sleep latency, intermediate stage and theta power effects of escitalopram after chronic treatment. J Neural Transm (Vienna). 120 (1), 169-176 (2013).
- Schiffelholz, T., Aldenhoff, J. B. Novel object presentation affects sleep-wake behavior in rats. Neurosci Lett. 328 (1), 41-44 (2002).
- Wimmer, R. D., et al. Sustaining sleep spindles through enhanced SK2-channel activity consolidates sleep and elevates arousal threshold. J Neurosci. 32 (40), 13917-13928 (2012).
- Fernandez, L. M. J., et al. Highly dynamic spatiotemporal organization of low-frequency activities during behavioral states in the mouse cerebral cortex. Cereb Cortex. , (2016).
- Franken, P. Long-term vs. short-term processes regulating REM sleep. J Sleep Res. 11 (1), 17-28 (2002).
- Feige, B., et al. The microstructure of sleep in primary insomnia: an overview and extension. Int J Psychophysiol. 89 (2), 171-180 (2013).
- Parrino, L., Halasz, P., Tassinari, C. A., Terzano, M. G. CAP, epilepsy and motor events during sleep: the unifying role of arousal. Sleep Med Rev. 10 (4), 267-285 (2006).
- Akinseye, O. A., et al. Sleep as a mediator in the pathway linking environmental factors to hypertension: a review of the literature. Int J Hypertens. 2015, 926414(2015).
- Campbell, K., Muller-Gass, A. The extent of processing of near-hearing threshold stimuli during natural sleep. Sleep. 34 (9), 1243-1249 (2011).
- Nir, Y., Vyazovskiy, V. V., Cirelli, C., Banks, M. I., Tononi, G. Auditory responses and stimulus-specific adaptation in rat auditory cortex are preserved across NREM and REM sleep. Cereb Cortex. 25 (5), 1362-1378 (2015).
- Dang-Vu, T. T., et al. Interplay between spontaneous and induced brain activity during human non-rapid eye movement sleep. Proc Natl Acad Sci USA. 108 (37), 15438-15443 (2011).
- Elton, M., et al. Event-related potentials to tones in the absence and presence of sleep spindles. J Sleep Res. 6 (2), 78-83 (1997).
- McKinney, S. M., Dang-Vu, T. T., Buxton, O. M., Solet, J. M., Ellenbogen, J. M. Covert waking brain activity reveals instantaneous sleep depth. PLoS One. 6 (3), 17351(2011).
- Mang, G. M., Franken, P. Sleep and EEG phenotyping in mice. Curr Protoc Mouse Biol. 2 (1), 55-74 (2012).
- Borbély, A. A., Tobler, I., Hanagasioglu, M. Effect of sleep deprivation on sleep and EEG power spectra in the rat. Behav Brain Res. 14 (3), 171-182 (1984).
- Jurysta, F., et al. The impact of chronic primary insomnia on the heart rate--EEG variability link. Clin Neurophysiol. 120 (6), 1054-1060 (2009).
- Silvani, A., Calandra-Buonaura, G., Benarroch, E. E., Dampney, R. A. L., Cortelli, P. Bidirectional interactions between the baroreceptor reflex and arousal: an update. Sleep Med. , (2015).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
