Przedstawiamy metodę ilościowego określania powierzchni mięśniowej, która jest pośrednią metodą określania masy mięśniowej u dorosłych Drosophila. Demonstrujemy zastosowanie naszej metodologii, analizując pośrednie mięśnie lotu w modelu Drosophila choroby dystrofii miotonicznej.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Optyczne oznaczanie obszaru mięśni w przekroju poprzecznym dorosłych mięśni lotu pośredniego Drosophila melanogaster
W tym artykule
Podsumowanie
Streszczenie
Zanik masy mięśniowej, znany jako zanik mięśni, jest powszechnym fenotypem w modelach chorób nerwowo-mięśniowych Drosophila. Użyliśmy pośrednich mięśni lotu (IFM) much, w szczególności mięśni grzbietowo-podłużnych (DLM), jako obiektu eksperymentalnego do pomiaru fenotypu zanikowego spowodowanego różnymi przyczynami genetycznymi. W tym protokole opisujemy, jak osadzić mięśnie klatki piersiowej muchy do półcienkiego przekroju, jak uzyskać dobry kontrast między mięśniem a otaczającą tkanką oraz jak przetwarzać obrazy mikroskopu optycznego w celu półautomatycznego pozyskiwania i analizy danych wymiernych. Opisujemy trzy konkretne zastosowania potoku metodologicznego. Po pierwsze, pokazujemy, w jaki sposób można zastosować tę metodę do ilościowego określenia zwyrodnienia mięśni w modelu muchy dystrofii miotonicznej; Po drugie, pomiar pola przekroju poprzecznego mięśni może pomóc w identyfikacji genów, które promują lub zapobiegają atrofii mięśni i/lub zwyrodnieniu mięśni; Po trzecie, protokół ten można zastosować do określenia, czy związek kandydujący jest w stanie znacząco zmodyfikować dany fenotyp zanikowy wywołany przez mutację powodującą chorobę lub przez czynnik środowiskowy.
Wprowadzenie
Klatka piersiowa muszki owocówki zawiera dwie różne klasy mięśni lotnych, które różnią się pod względem funkcjonalnym, fizjologicznym i anatomicznym. Mięśniami tymi są: pośrednie mięśnie lotne (IFM), składające się z mięśni grzbietowo-podłużnych (DLM) i grzbietowo-brzusznych (DVM) (Rycina 1), oraz synchroniczne mięśnie sterujące lotem1,2. Mięśnie te wspólnie generują wysoką moc mechaniczną niezbędną do lotu. Wielkość, rozkład i ułożenie rostro-kaudalne IFM ułatwiają orientację podczas przecinania poprzecznego3 (Rycina 2A). Z tego powodu wybraliśmy te mięśnie do badania zaniku mięśni u Drosophila melanogaster.

Rycina 1. Schemat klatki piersiowej muszki owocówki przedstawiający układ pośrednich mięśni lotnych (IFMs).(Lewo) przedstawia widok boczny, a (Prawo) przekrój poprzeczny klatki piersiowej. IFMs składają się z mięśni grzbietowo-podłużnych (DLM) (na czerwono) oraz mięśni grzbietowo-brzusznych (DVM) (na zielono).
Zachowanie struktury tkanki oraz kontrola orientacji osi grzbietowo-brzusznej w przekrojach histologicznych są kluczowe dla zapewnienia prawidłowej oceny pola powierzchni przekroju poprzecznego mięśni. W celu zachowania struktury mięśni zastosowano mieszaninę utrwalającą zmodyfikowaną według Tomlinson et al.4. Ponadto, ponieważ mięśnie są tkankami wewnętrznymi, problemem jest nieprzepuszczalność egzoszkieletu Drosophila, która uniemożliwia penetrację mieszanin utrwalających do tkanek docelowych. Aby rozwiązać ten problem, usunięto głowę, odnóża, skrzydła oraz dwa ostatnie segmenty odwłoka muchy, tworząc otwory umożliwiające wniknięcie mieszaniny utrwalającej. W ramach protokołu utrwalania zastosowano traktowanie tetratlenkiem osmu (OsO4)5, który jest powszechnie stosowany ze względu na zdolność do utrwalania tłuszczów, w tym triglicerydów. OsO4 bardzo dobrze konserwuje większość struktur, szczególnie na poziomie cytologicznym, a jednocześnie zapewnia kontrast obrazu. Po utrwaleniu klatki piersiowe Drosophila zatopiono w żywicy w celu wykonania poprzecznych przekrojów półcienkich (1.5 µm). Dla poprawy kontrastu tkankę można dodatkowo barwić błękitem toluidyny. Obrazy całych klatek piersiowych wykonano przy powiększeniu 10X, a pole powierzchni mięśni określono za pomocą oprogramowania ImageJ poprzez binaryzację obrazów (o jednakowych wymiarach) i obliczenie procentowego udziału pikseli odpowiadających tkance mięśniowej (piksele czarne) w całkowitej liczbie pikseli.
Modyfikacje w przygotowaniu tkanek i mieszaninach utrwalających, takie jak zwiększenie stężenia OsO4 oraz roztworu glutaraldehydu wprowadzone w niniejszym protokole, pozwoliły na unikalną konserwację tkanki mięśniowej. Protokół ten zapobiega degradacji i deformacji tkanki, co sprawia, że późniejsza analiza próbek jest bardziej wiarygodna nawet w warunkach silnego zaniku mięśni towarzyszących chorobom neurodegeneracyjnym, takim jak dystrofia miotoniczna (DM). W swojej najczęstszej postaci, DM typu 1, to rzadkie zaburzenie genetyczne jest wywoływane przez ekspansję powtórzeń CUG w transkryptach myotonic dystrophy protein kinase (DMPK). Agregaty mutantowego RNA DMPK tworzą ogniska rybonuklearne, które sekwestrują jądrowe białka wiążące RNA z rodziny Muscleblind-like (MBNL1-3; Muscleblind (Mbl) u Drosophila)6. Wygenerowaliśmy model dystrofii miotonicznej u Drosophila poprzez ekspresję 250 powtórzeń CTG pod promotorem ciężkiego łańcucha miozyny mięśniowej (Mhc-Gal4). Muchy modelowe nie latały, wykazywały typowy fenotyp „podniesionych skrzydeł” i miały poważny zanik mięśni w IFM (Ryc. 2B). Wcześniejsze badania przeprowadzone w naszym laboratorium wykazały, że pomiar pola powierzchni mięśni IFM jest wiarygodną metodą ilościowego określania wpływu różnych chemicznych lub genetycznych modyfikatorów zaniku mięśni u tych much modelowych7. Przykładowo, nadekspresja izoformy C białka Mbl u much wykazujących ekspresję 250 powtórzeń CTG w mięśniach doprowadziła do przywrócenia pola powierzchni mięśni, ponieważ sekwestracja prowadząca do niedoboru Mbl jest czynnikiem inicjującym patogenezę DM18 (Ryc. 2C). Pole powierzchni mięśni zostało również przywrócone po podaniu muchom modelowym DM peptydy Abp1, heksapeptydu o udowodnionym działaniu przeciwko DM19 (Ryc. 2D).
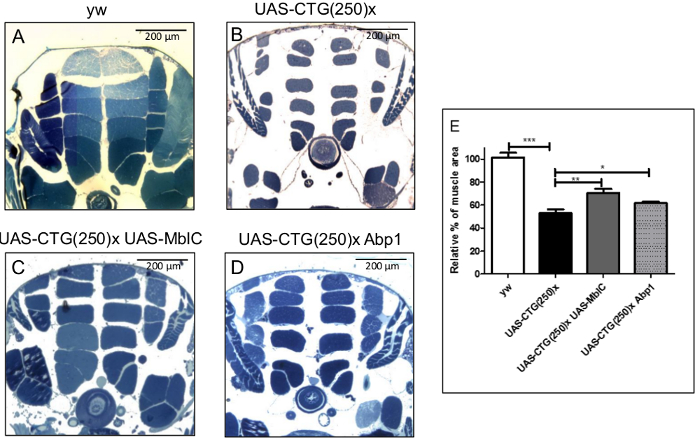
Rycina 2. Ilościowa analiza przekrojów grzbietowo-brzusznych toraksów osobników dorosłych zatopionych w żywicy. (A-D) Mięśnie pośrednie lotne Drosophila melanogaster o wskazanych genotypach. (A) Muchy kontrolne (yw). (B) Ekspresja 250 niekodujących powtórzeń CTG w mięśniach (UAS-CTG(250)x) spowodowała zmniejszenie powierzchni mięśni w DLM w porównaniu z muchami kontrolnymi. (C) Ten fenotyp zaniku mięśni został odwrócony przez nadekspresję Muscleblind (MblC) (UAS-CTG(250)x UAS-MblC) oraz (D) podanie muchom modelowym heksapeptydu Abp1 (UAS-CTG(250)x Abp1). Na wszystkich zdjęciach strona grzbietowa znajduje się na górze. Ekspresja transgenów w mięśniach była sterowana przez promotor ciężkiego łańcucha miozyny (Mhc)-Gal4. (E) Ilościowe oznaczenie procentowej powierzchni mięśni w stosunku do much kontrolnych potwierdziło, że różnice były istotne. Histogram przedstawia średnie ± S.E.M. **p<0.01 oraz *p<0.05 (test t Studenta). Pasek skali: 200 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Opisana tutaj metoda będzie interesująca dla badaczy zajmujących się rozwojem, utrzymaniem i starzeniem się mięśni, patologią chorób oraz testowaniem leków, ponieważ dostarcza wiarygodnych informacji o tym, jak tkanka mięśniowa reaguje na czynniki endogenne i zewnętrzne.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Fixacja i zatapianie w żywicy
- Znieczoną muchy dwutlenkiem węgla (CO2) lub poprzez hipotermię, używając kostek lodu. Przy użyciu mikroskopu sekcyjnego (z niskim powiększeniem, aby widzieć całą muchę) oraz nożyczek usuń odnóża, skrzydła, głowę i końcową część odwłoka, aby ułatwić penetrację utrwalacza. Na tym etapie wymagana jest ostrożna manipulacja ciałami owadów, aby uniknąć deformacji klatki piersiowej.
UWAGA: Należy zacząć od co najmniej 12 much na genotyp, aby zapewnić wystarczającą liczbę prawidłowo przetworzonych osobników na koniec procedury. - Przenieś ciała owadów do probówek 1,5 mL w lodzie (umieszczając maksymalnie 6 osobników w jednej probówce) zawierających 200 µL roztworu 1.
UWAGA: Ciała owadów nie mogą pozostawać w roztworze 1 dłużej niż przez 20 min.- W celu przygotowania roztworu 1 zmieszaj składniki w następujących proporcjach objętościowych: ¼ 4% paraformaldehydu, ¼ 8% glutaraldehydu, ¼ 0,2 M Na2HPO4 oraz ¼ 0,2 M NaH2PO4.
- Dodaj 200 µL roztworu 2 i inkubuj w lodzie przez 30 min.
- Roztwór 2: Zmieszaj roztwór 1 i OsO4 w proporcji 1:1 (v/v).
OSTROŻNIE: OsO4 jest niezwykle toksyczny. Należy go używać w dygestorium, stosując odpowiednie środki bezpieczeństwa i utylizacji.
- Roztwór 2: Zmieszaj roztwór 1 i OsO4 w proporcji 1:1 (v/v).
- Odsącz cały płyn. Dodaj 200 µL roztworu 2 i inkubuj w lodzie przez 1-2 h.
- Usuń roztwór i odwodnij próbki w gradacji etanolu w następujący sposób: raz w 30%, 50%, 70%, 90% oraz dwukrotnie w etanolu bezwodnym; każda inkubacja trwa 5 min. Dodaj 1 mL etanolu, aby przykryć próbki.
UWAGA: Po umieszczeniu tkanki w 90% etanolu kolejne kroki można wykonywać w temperaturze pokojowej. - Inkubuj próbki dwukrotnie w tlenku propylenu przez 10 min podczas każdej inkubacji.
OSTROŻNIE: Tlenek propylenu jest toksyczny, należy go używać w dygestorium. - Zastąp tlenek propylenu mieszaniną żywicy epoksydowej i tlenku propylenu w stosunku 1:1 (v/v) i inkubuj w temperaturze pokojowej przez noc.
OSTROŻNIE: Żywica w stanie ciekłym jest niezwykle toksyczna. Żywica jest dostępna jako zestaw czterech komponentów (A, B, C i D).- Aby przygotować żywicę epoksydową, dodaj do jednorazowego zlewka 54 g żywicy (A), 44,5 g utwardzacza (B), 2,5 g akceleratora (C) i 10 g plastyfikatora (D). Wszystkie składniki żywicy należy łączyć w dygestorium. Żywicę przechowuj w alikwotach w temperaturze -20 °C (do 6 miesięcy) lub -80 °C (przez kilka lat).
- Aby zutylizować żywicę, wypal ją w temperaturze 70 °C przez 24 h, ponieważ żywica stała nie jest toksyczna. Wszystkie poprzednie roztwory należy zutylizować w grupie metali ciężkich zgodnie z odpowiednimi procedurami międzynarodowymi, ponieważ roztwory mogą zawierać śladowe ilości OsO4.
- Zastąp poprzednią mieszaninę 100% żywicą i inkubuj próbki przez 4 h.
- Przenieś ciała owadów do plastikowych form zawierających nową żywicę (jedno ciało w każdym wgłębieniu formy). Użyj zaostrzonego drewnianego patyczka lub igły, aby przenieść i zorientować ciała owadów we wgłębieniach, a następnie pozostaw żywicę do polimeryzacji przez noc w piecu Pasteura w temperaturze 70 °C.
UWAGA: Aby zapewnić odpowiednią orientację ciał owadów do późniejszego przycinania i sekcjonowania, powinny one leżeć na boku, a przednia część ciała powinna znajdować się bardzo blisko krawędzi wgłębienia.
2. Przycinanie i krojenie bloków
- Wyjąć zformowane bloki żywicy z form. Za pomocą żyletek odciąć nadmiar żywicy, nadając jej kształt trapezoidalny wokół preparatu i odpowiednio zorientować go w mikrotomie. Rozpocząć wykonywanie skrawków wszystkich preparatów za szwem poprzecznym, aby uzyskać porównywalne wyniki.
UWAGA: Aby prawidłowo przyciąć próbkę, przekrój musi być prostopadły do osi przednio-tylnej DLMs ( Rycina 3).
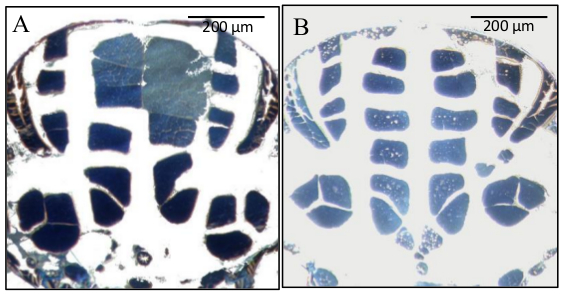
Rycina 3. Przekroje grzbietowo-brzuszne klatki piersiowej dorosłych much z modelu dystrofii miotonycznej zatopionych w żywicy. W (A) przycięcie próbki było nieprawidłowe, ponieważ przekrój w górnej prawej części obrazu nie był całkowicie poprzeczny do mięśni. W konsekwencji trzy pęczki mięśniowe po prawej stronie wydają się większe od tych po lewej stronie. Błąd ten prowadziłby do przeszacowania powierzchni mięśni. (B) Przekrój z prawidłowo przyciętego bloku żywicznego. Pasek skali: 200 µm.
- Wyciąć przekroje o grubości 1,5-µm za pomocą ultramikrotomu i przenieść je do kropel wody na żelatynowanych szkiełkach.
- Pobrać przekroje z segmentu mezotoraksu dla wszystkich próbek, aby uzyskać porównywalne wyniki.
- Umieścić szkiełka z przekrojami na bloku grzejnym w temperaturze 70-80 °C do czasu odparowania H2O. Na tym etapie próbki można obserwować z kontrastem OsO4 (Rysunek 4A).
3. Barwienie przekrojów IFM
- Przykryj przekroje odpowiednią ilością błękitu toluidyny i pozostaw na bloku grzejnym przez około 30 s.
- W celu przygotowania roztworu błękitu toluidyny, rozpuść 1% błękitu toluidyny i 1% boraksu w H2O.
- Przepłucz w H2O i pozostaw preparaty na płycie grzejnej do odparowania wody. Powtórz barwienie błękitem toluidyny, jeśli konieczne jest zwiększenie kontrastu (Rycina 4B).
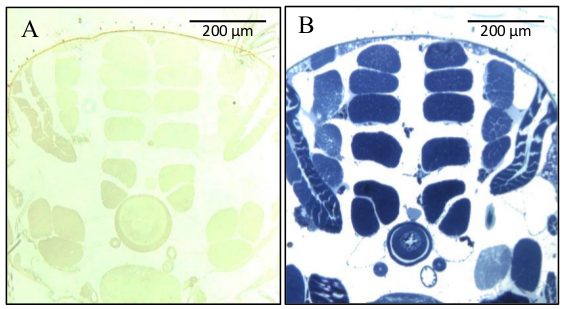
Rysunek 4. Przekroje grzbietowo-brzuszne zatopionych w żywicy klatek piersiowych osobników dorosłych z różnymi barwieniami kontrastowymi. Oba panele przedstawiają obrazy much modelu DM1 karmionych Abp1, jak pokazano na Rysunku 2D. (A) Obraz przekroju z kontrastem OsO4 . (B) Przekrój barwiony błękitem toluidyny umożliwia lepszą wizualizację pęczków mięśniowych. Pasek skali: 200 µm.
4. Montowanie skrawków do IFM
- Osusz preparaty na bloku grzewczym, aż H2O odparuje.
- Nanieś 1 lub 2 krople medium montażowego na skrawki i nałóż szkiełko nakrywkę.
Uwaga: Ten krok należy przeprowadzić w dygestorium, ponieważ medium montażowe jest toksyczne.
5. Pozyskiwanie obrazów i kwantyfikacja powierzchni mięśnia
- Wykonać zdjęcia przy niskim powiększeniu, tak aby cały zestaw mięśni DLM znajdował się w ostrości. Zazwyczaj stosujemy powiększenie 10X.
- Do analizy statystycznej należy wykonać co najmniej 5 zdjęć seryjnych na jedną muchę i przeanalizować co najmniej 5 much na grupę eksperymentalną.
- Wybrać zdjęcie zawierające kompletne mięśnie (Rysunek 5A). Sprawdzić oś lub orientację przekroju i odrzucić próbki o niewłaściwej orientacji, co mogłoby zniekształcić wyniki (porównać Rysunki 3A i 3B, aby odróżnić odpowiednio przekroje źle i dobrze zorientowane).
- Użyć oprogramowania ImageJ, aby zaznaczyć obszar (w pikselach) zawierający wyłącznie mięśnie DLM (Rysunek 5A/5B). W przypadku porównań między różnymi grupami eksperymentalnymi, obszarem referencyjnym powinna być zawsze mucha z największymi mięśniami. Na wszystkich zdjęciach porównywanych genotypów należy zaznaczyć obszar zawierający mięśnie DLM o wymiarach równych obszarowi referencyjnemu (Rysunek 5B).
- Zbinaryzować obrazy za pomocą polecenia Image-J: Process/Binary/Make binary i usunąć obszary lub piksele, które nie odpowiadają badanym mięśniom (Rysunek 5C).
- W przypadku pojawienia się artefaktów w postaci czarnych plam w obszarach innych niż mięśnie, usunąć je za pomocą narzędzia Drawing tools, wybierając symbol gumki.
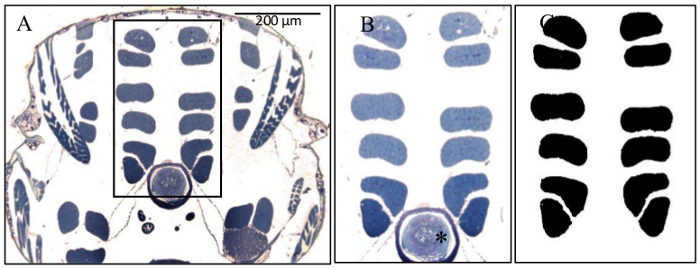
Rycina 5. Procedura analizy obrazu w celu wyznaczenia powierzchni mięśni. (A) Przekrój poprzeczny klatki piersiowej muchy będącej modelem dystrofii miotonowej typu 1 z prostokątem obejmującym DLM. (B) Wybrany obszar zawierający wyłącznie pośrednie mięśnie lotne i jelito (*). (C) Obraz zbinaryzowany. Obszary czarne odpowiadają badanym mięśniom. Jelito zostało usunięte w celu dokładnej kwantyfikacji powierzchni mięśni. Pasek skali: 200 µm.
- Określ procentowy udział pikseli odpowiadających tkance mięśniowej (czarne piksele) w stosunku do całkowitej liczby pikseli za pomocą komendy: Analyze/Measurement, wybierając opcję area fraction. Ten procent powierzchni stanowi oszacowanie masy mięśniowej DLM każdej muchy.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Aby określić, czy nadekspresja MblC lub podanie Abp1 miały jakikolwiek wpływ na atroficzny fenotyp modelu muchy z dystrofią miotoniczną, skupiliśmy się na DLM, które są częścią IFM (Rysunek 1). Ustaliliśmy, że muchy modelowe, które wyrażają 250 niekodujących powtórzeń KTG w całej muskulaturze napędzanej przez promotor łańcucha ciężkiego miozyny (Mhc)-Gal4, miały o 50% zmniejszenie powierzchni mięśniowej w porównaniu z muchami kontrolnymi. Natomiast ko...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Wykazano, że Drosophila melanogaster jest użytecznym modelem do badania ludzkich chorób nerwowo-mięśniowych7,10,11, w tym dystrofii miotonicznych, które charakteryzują się występowaniem zaniku mięśni. Przedstawiony tutaj protokół jest przydatnym narzędziem do ilościowego określania stopnia degeneracji mięśni spowodowanej wystąpieniem lub postępem konkretnej choroby w modelu muchy. Na przykład, przeprowadzając tę analizę...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Nie stwierdzono konfliktu interesów.
Podziękowania
Autorzy chcieliby podziękować członkom Grupy Translational Genomics oraz Kathryn J Hanson za informacje zwrotne i ulepszenia tego protokołu. Projekt ten został zrealizowany z grantu badawczego SAF2015-64500-R, który obejmuje Europejski Fundusz Rozwoju Regionalnego, przyznanego R.A przez Ministerio de Economia y Competitividad.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Oprogramowanie Image-J | National Institutes of Health | https://imagej.nih.gov/ij/ | |
| Ultramikrotom, | Leica | , Leica UC6 | |
| Mikroskop | Leica | , Leica MZ6 | Technika jasnego pola. |
| Żyletki | Mikroskopia elektronowa Nauki | 71970 | Istnieje kilku alternatywnych dostawców. |
| Świat nożyczek | Świat precyzji | 14003 | Istnieje kilku alternatywnych dostawców. |
| Formy do zatapiania | Mikroskopia elektronowa Nauki | 70900 | Istnieje kilku alternatywnych dostawców. |
| Aldehyd glutarowy | Fluka (Sigma) | 49624 | Toksyczny. |
| OsO4 | Polyscience | 0972A | Ekstremalnie toksyczny. |
| Tlenek propylenu | Sigma Aldrich | 82320-250ML | Niezwykle toksyczny. |
| żywica (Durcupan) | Sigma Aldrich | 44611-44614 | Rakotwórcze, gdy jest niespolimeryzowane. |
| Błękit toluidynowy | Panreac | 251176 | toksyczny. |
| Mocowanie średnie (DPX) | Sigma Aldrich | 44581 | Niebezpieczne. |
| Paraformaldehyd | Sigma Aldrich | P6148-500G | Szkodliwy. |
| Na2HPO4 | Panreac | 122507 | rozcieńczeniu 0,2 M. |
| NaH2PO4 | Panreac | 121677 | rozcieńczeniu 0,2 M. |
| Boraks | Panreac | 3052 | Toksyczny. |
Bibliografia
- Fernandes, J., Bate, M., Vijayraghavan, K. Development of the indirect flight muscles of Drosophila. Development. 113, 67-77 (1991).
- Fernandes, J. J., Keshishian, H. Patterning the dorsal longitudinal flight muscles (DLM) of Drosophila: insights from the ablation of larval scaffolds. Development. 122, 3755-3763 (1996).
- Hartenstein, V. Atlas of Drosophila Development. Atlas Drosoph. Dev. , 1-57 (1993).
- Tomlinson, A., Ready, D. F. Cell fate in the Drosophila ommatidium. Dev. Biol. 123, 264-275 (1987).
- Griffith, W. P. Osmium Tetroxide And Its Applications. Platin Met Rev. 18, 94-96 (1974).
- Bird, T. D. Myotonic Dystrophy Type 1. GeneReviews. 1, 1-23 (1993).
- Bargiela, A., et al. Increased autophagy and apoptosis contribute to muscle atrophy in a myotonic dystrophy type 1 Drosophila model. Dis Model Mech. 8, 679-690 (2015).
- Llamusi, B., et al. Muscleblind, BSF and TBPH are mislocalized in the muscle sarcomere of a Drosophila myotonic dystrophy model. Dis. Model. Mech. 6, 184-196 (2012).
- García-López, A., Llamusí, B., Orzáez, M., Pérez-Payá, E., Artero, R. D. In vivo discovery of a peptide that prevents CUG-RNA hairpin formation and reverses RNA toxicity in myotonic dystrophy models. Proc. Natl. Acad. Sci. U.S.A. 108, 11866-11871 (2011).
- van der Plas, M. C., et al. Drosophila Dystrophin is required for integrity of the musculature. Mech. Dev. 124, 617-630 (2007).
- Lloyd, T. E., Taylor, J. P. Flightless flies: Drosophila models of neuromuscular disease. Ann New York Acad Sci. , 1184(2010).
- Babcock, D. T., Ganetzky, B. An improved method for accurate and rapid measurement of flight performance in Drosophila. J. Vis. Exp. , e51223(2014).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
