Przedstawiono protokół badania desensytyzacji i odzyskiwania wrażliwości fotoreceptorów raków w funkcji czasu okołodobowego.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Odczulanie i odzyskiwanie fotoreceptorów raków po dostarczeniu bodźca świetlnego
W tym artykule
Podsumowanie
Streszczenie
Przedstawiono metodę badania desensytyzacji i odzyskiwania fotoreceptorów raków. Przeprowadziliśmy wewnątrzkomórkowe zapisy elektryczne komórek fotoreceptorowych w izolowanych gałkach ocznych przy użyciu nieciągłej konfiguracji napięcie-cęgi przełączane pojedynczą elektrodą. Najpierw żyletką wykonaliśmy otwór w grzbietowej rogówce, aby uzyskać dostęp do siatkówki. Następnie włożyliśmy szklaną elektrodę przez otwór i przeniknęliśmy do ogniwa, zgodnie z zapisem ujemnego potencjału. Potencjał błonowy został zaciśnięty na potencjale spoczynkowym fotoreceptora i zastosowano impuls świetlny w celu aktywacji prądów. Na koniec zastosowano protokół dwóch błysków świetlnych do pomiaru odczulania i odzyskiwania prądu. Pierwszy błysk świetlny wyzwala, po okresie opóźnienia, transdukcyjny prąd jonowy, który po osiągnięciu szczytowej amplitudy zanika w kierunku stanu odczulenego; Drugi błysk, stosowany w różnych odstępach czasu, ocenia stan przewodnictwa aktywowanego światłem. Aby scharakteryzować prąd wywołany światłem, zmierzono trzy parametry: 1) opóźnienie (czas, jaki upłynął między dostarczeniem błysku światła a momentem, w którym prąd osiąga 10% swojej maksymalnej wartości); 2) prąd szczytowy; oraz 3) stała czasowa odczulania (wykładnicza stała czasowa fazy zaniku prądu). Na wszystkie parametry ma wpływ pierwszy impuls.
Aby określić ilościowo powrót do zdrowia po odczulaniu, zastosowano stosunek p2/p1 w stosunku do czasu między impulsami. P1 to szczytowy prąd wywołany przez pierwszy impuls świetlny, a P2 to szczytowy prąd wywołany przez drugi impuls. Dane te dopasowano do sumy funkcji wykładniczych. Ostatecznie pomiary te zostały przeprowadzone w funkcji czasu okołodobowego.
Wprowadzenie
Aby światło docierające do oczu mogło być odbierane jako bodziec wizualny, musi zostać przekształcone w sygnał elektryczny. W związku z tym we wszystkich organizmach wzrokowych światło wyzwala transdukcyjny prąd jonowy, który z kolei powoduje zmianę potencjału błonowego komórek fotoreceptorów, tak zwanego potencjału receptorowego. Z tego powodu wrażliwość oka na światło zależy przede wszystkim od stanu przewodnictwa aktywowanego światłem, które może być albo aktywowane, albo odczulane.
W fotoreceptorach raków światło wyzwala powolny, przemijający prąd jonowy1. Po oświetleniu prąd transdukcji powstaje po opóźnieniu lub opóźnieniu, zanim osiągnie maksimum; Następnie zanika, ponieważ kanały transdukcji wpadają w stan odczulania, w którym nie reagują na dalsze bodźce świetlne2. Oznacza to, że światło, oprócz aktywacji prądu transdukcji odpowiedzialnego za widzenie, indukuje również przejściowe zmniejszenie wrażliwości komórek fotoreceptorowych. Odczulanie może stanowić ogólny mechanizm ochronny przed nadmierną ekspozycją na odpowiedni bodziec. Wrażliwość oka na światło zostaje odzyskana, gdy przewodność transdukcji odzyskuje się po odczulaniu.
Zapis wewnątrzkomórkowy jest użyteczną techniką pomiaru aktywności elektrycznej komórek pobudliwych3,4,5,6,7,8. Chociaż zapis wewnątrzkomórkowy stał się rzadszy wraz z pojawieniem się techniki patch-clamp9, nadal jest to wygodne podejście, gdy komórki są albo trudne do wyizolowania, albo mają geometrię, która utrudnia tworzenie giga-uszczelek zaciskających łatki (tj. uszczelnień lub ścisłych kontaktów między elektrodą łatową a membranami o rezystancji elektrycznej rzędu 109omów). Przykładami tych ostatnich są plemniki10 oraz badane tutaj komórki fotoreceptorowe. Z naszego doświadczenia wynika, że fotoreceptory Procambarus clarkii są trudne do wyizolowania i utrzymania w hodowli pierwotnej; Dodatkowo są to cienkie pręty, które utrudniają tworzenie giga-uszczelnień. W nagraniach wewnątrzkomórkowych ostra elektroda jest wprowadzana do komórki, która jest utrzymywana na miejscu przez otaczającą tkankę. Elektroda jest cięta przez szybki obwód przełączający wzmacniacza, więc prąd jest próbkowany między impulsami napięciowymi. Ten tryb jest znany jako nieciągły zacisk napięcia pojedynczej elektrody (tryb dSEVC)11. Wysoka rezystancja (mały otwór) elektrody utrudnia wymianę dyfuzyjną między ogniwem a roztworami pipet, powodując minimalne zakłócenia środowiska wewnątrzkomórkowego3. Potencjalną wadą tej techniki jest to, że włożenie elektrody może wytwarzać nieselektywny prąd upływowy; Dlatego należy zachować ostrożność, aby uniknąć nagrywania z komórek, w których wielkość prądu upływowego może zakłócać zamierzone pomiary4,12.
Tutaj używamy izolowanych łodyg ocznych raków do oceny desensytyzacji i odzyskiwania przewodnictwa jonów aktywowanych światłem, wykonując wewnątrzkomórkowe zapisy elektryczne komórek fotoreceptorowych w warunkach zacisku napięcia.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
UWAGA: Eksperymenty są zgodne z przepisami o ochronie zwierząt w Meksyku.
1. Konfiguracja eksperymentalna
- Podłączenia ogólne
- Podłącz wzmacniacz do odpowiedniego komputera poprzez przetwornik analogowo-cyfrowy i użyj oscyloskopu do monitorowania eksperymentu (Rysunek 1).
- Podłącz fotostymulator do przetwornika A/C.
- Komora rejestracyjna
- Umieść komorę rejestracyjną na stole antywibracyjnym wewnątrz klatki Faradaya.
UWAGA: Zapobiega to wibracjom mechanicznym i szumom elektrycznym, które mogą wpłynąć na rejestrację. Nasza klatka Faradaya była wykonana z przyciemnianej siatki drucianej. Użyto własnej akrylowej komory rejestracyjnej o pojemności 2 mL (Rysunek 2). - Przygotuj roztwór kąpielowy w celu utrzymania żywotności preparatu13: 205 mM NaCl; 5 mM KCl; 2 mM MgSO4; 13 mM CaCl2; 5 mM Hepes-NaOH, pH 7,3.
UWAGA: Roztwór nie zawiera dekstrozy ani nie jest napowietrzany mieszaniną 95% O2 i 5% CO2, ponieważ procedura eksperymentalna jest na tyle krótka, by wykryć uszkodzenia spowodowane rejestracją elektryczną (szczegóły w punkcie 4.2.3).
- Umieść komorę rejestracyjną na stole antywibracyjnym wewnątrz klatki Faradaya.
- Elektrody
- Jako elektrodę odniesienia zastosuj elektrodę z drutu srebrnego pokrytego chlorkiem
UWAGA: Powłoka z chlorku srebra jest niezbędna, aby umożliwić reakcję elektrodową: AgCl(s) + e−↔ Ag(s) + Cl-. - Przeszlifuj drut srebrny (grubość ~ 1 mm, długość ~ 10 cm) papierem ściernym o drobnej ziarnistości w celu oczyszczenia jego powierzchni.
- Opłucz drut srebrny wodą destylowaną.
- Zanurz oczyszczony drut srebrny w 4-6% roztworze podchlorynu sodu (NaClO) do czasu, aż stanie się ciemny (około 20 min).
- Jako elektrodę wewnątrzkomórkową zastosuj cienkie pipety szklane wypełnione roztworem elektrolitu (2,7 M KCl).
- Wytnij szklaną kapilarę (średnica wewnętrzna ≈ 1 mm) za pomocą mikro-wyciągarki pipet, aby uzyskać cienką końcówkę z małym otworem (0,01-0,1 µm)14.
- Wypełnij wyciągniętą kapilarę szklaną roztworem 2,7 M KCl. Najpierw wypełnij ją poprzez kapilarność (zanurzając końcówkę pipety w roztworze 2,7 M KCl), a następnie wypełnij połowę pipety za pomocą cienkiej igły wstrzyknięcia. W razie potrzeby ostukaj pipetę elektrody, aby usunąć pęcherzyki powietrza.
- Podłącz elektrodę do uchwytu. Podłącz uchwyt do przedwzmacniacza (headstage) wzmacniacza. Ustaw zestaw elektroda-uchwyt-przedwzmacniacz za pomocą stabilnego trójwymiarowego mikromanipulatora. Obniż elektrodę, aż roztwór kąpielowy pokryje jej końcówkę.
UWAGA: Elektroda musi być ustawiona pionowo
- Jako elektrodę odniesienia zastosuj elektrodę z drutu srebrnego pokrytego chlorkiem
- Wybierz tryb mostkowy (Bridge Mode) wzmacniacza (w sekcji Mode wzmacniacza naciśnij przycisk Bridge) i zmierz rezystancję elektrody. Upewnij się, że rezystancja wynosi około 50 MΩ1.
UWAGA: Taka wielkość elektrody pozwala na wysokiej jakości rejestrację elektryczną przy ograniczonym uszkodzeniu komórki. - Zneutralizuj prąd offsetowy i skompensuj przejścia pojemnościowe, używając przycisku Holding Position w sekcji Voltage Clamp wzmacniacza oraz przycisku Capacitance Neutralization w sekcji Microelectrode 1 wzmacniacza.
- System superfuzji
- Wlej roztwór kąpielowy (punkt 1.2.2) do odpowiedniego naczynia (fiolka po serum 250 mL) i podłącz go do zestawu rurek irygacyjnych (średnica wewnętrzna 3,2 mm), podłączając go tym samym do komory rejestracyjnej. Użyj grawitacyjnego systemu superfuzji. Ureguluj szybkość przepływu do ~ 0,5 mL/s.
- Podłącz komorę do urządzenia ssącego. Ureguluj system odsysania roztworu w taki sposób, aby całkowita objętość komory rejestracyjnej nie ulegała zmianie. Do odsysania użyj pompy próżniowej.
UWAGA: Stała objętość w komorze rejestracyjnej jest ważna dla zachowania stałych pojemności pasożytniczych przez cały czas trwania eksperymentu.
2. Materiał biologiczny
Uwaga: Należy użyć dorosłych raków P. clarkii (długość 7-10 cm) w stadium międzylynień, bez względu na płeć.
- Czas okołodobowy
- Na miesiąc przed rozpoczęciem eksperymentów utrzymuj 10 raków w cyklu 12 h światła/12 h ciemności15 (światło białe, 2,4 kW/m2).
UWAGA: Jeden miesiąc jest wystarczającym czasem do zsynchronizowania populacji raków. - Wyznacz czas okołodobowy populacji raków poprzez ocenę amplitudy elektroretinogramów pięciu losowo wybranych zwierząt15.
UWAGA: 0 h czasu okołodobowego (CT 0) oznacza początek subiektywnego dnia, tj. czas, w którym organizm jest zazwyczaj aktywny16,17,18,19 (Rysunek 3). Rak jest zwierzęciem nocnym, zatem w cyklu 12 h światła/12 h ciemności jest aktywny podczas fazy ciemnej.
- Na miesiąc przed rozpoczęciem eksperymentów utrzymuj 10 raków w cyklu 12 h światła/12 h ciemności15 (światło białe, 2,4 kW/m2).
- Procedura izolacji oczu
- W wyznaczonym czasie okołodobowym znieczul wybranego raka poprzez zanurzenie w wodzie z kranu w temperaturze 0-4 °C na 15 min.
- Za pomocą precyzyjnych nożyczek oddziel gałkę oczną u podstawy.
- Uzyskaj dostęp do siatkówki, wykonując za pomocą żyletki otwór (~ 1-mm2) w grzbietowej części rogówki.
- Umieść gałkę oczną w centrum komory rejestracyjnej (otwór zakryty silikonem) tak, aby otwór dostępu do siatkówki znajdował się na górze komory.
- Przechowuj gałkę oczną w stałej ciemności przez 20 min.
UWAGA: 20 min jest wystarczającym czasem, aby komórki fotoreceptorowe w pełni zaadaptowały się do ciemności.
3. Nakłuwanie fotoreceptorów
- Ustaw mikroelektrodę równolegle do osi podłużnej oczostalku w taki sposób, aby mikroelektroda była wycentrowana w celu uzyskania dostępu do siatkówki. Użyj mikroskopu stereoskopowego (10X), aby umieścić urządzenia w prawidłowej konfiguracji.
- Monitoruj różnicę napięć między elektrodą referencyjną a rejestrującą, wybierając tryb mostkowy (Bridge Mode1) wzmacniacza.
- Opuść elektrodę do kąpieli, a następnie umieść ją bezpośrednio nad siatkówką.
- Odsuń mikroskop i ustaw lampę fotostymulatora równolegle do osi podłużnej oczostalku.
UWAGA: Odległość między lampą a komorą perfuzyjną wynosi około 15 cm. - Powoli opuszczaj mikroelektrodę, aż do wykrycia nagłego spadku napięcia.
UWAGA: Spadek napięcia o wartości około −50 mV wskazuje na przebicie zdrowej komórki fotoreceptora. - Podaj testowy błysk światła (światło białe, 7,2 kW/m2, czas trwania 10 µs), aby zarejestrować potencjał receptorowy fotoreceptora.
UWAGA: Potencjał receptorowy fotoreceptora jest potencjałem depolaryzacyjnym o amplitudzie 10-15 mV i czasie trwania 30 ms (Rysunek 4).
4. Rejestracja elektryczna
- Upewnij się, że fotoreceptory są całkowicie zaadaptowane do warunków ciemności (patrz krok 2.3).
- Podawaj błysk światła testowego co 2 min. Zautomatyzuj czas między błyskami, wybierając odpowiednią wartość (120 s) dla parametru „time between episodes” w oprogramowaniu do akwizycji danych.
UWAGA: 2 min to czas niezbędny do pełnego powrotu prądów leżących u podstawy odpowiedzi elektrycznej fotoreceptora. - Monitoruj spoczynkowy potencjał błonowy oraz amplitudę i czas trwania potencjału receptora. Przyjmij, że fotoreceptor jest całkowicie zaadaptowany, gdy potencjał błonowy, amplituda i czas trwania potencjału receptora pozostają niezmienne. Stożki oczne, które wcześniej były utrzymywane w stałej ciemności przez 20 min (krok 2.3), kończą adaptację w ciągu około 5 min.
- Zaprzestań stymulacji komórki na 2 min przed rejestracją prądu wywołanego światłem.
- Podawaj błysk światła testowego co 2 min. Zautomatyzuj czas między błyskami, wybierając odpowiednią wartość (120 s) dla parametru „time between episodes” w oprogramowaniu do akwizycji danych.
- Rejestracja prądu
- Ustabilizuj napięcie na zmierzonym poziomie spoczynkowego potencjału błonowego komórki, wybierając „Holding amplitude” w oprogramowaniu do akwizycji danych (w programie Waveform w sekcji Analog Output Channel).
- Wybierz tryb dSEVC wzmacniacza. W sekcji Mode wzmacniacza naciśnij przycisk SEVC i przełącz dźwignię do pozycji Discont SEVC.
- Ustaw częstotliwość przełączania na 500-1 0 Hz (za pomocą przycisku Rate Adjust wzmacniacza), zgodnie z prędkością elektrody1.
- Podaj błysk światła i obserwuj wywołany napływ jonów.
UWAGA: Jest to prąd transdukcyjny lub wywołany światłem (Rysunek 5). - Powróć do trybu Bridge we wzmacniaczu i zarejestruj potencjał receptora, podając błysk światła (patrz sekcja 3). Upewnij się, że komórka fotoreceptora jest całkowicie zaadaptowana do warunków ciemności. Zmierz charakterystyki potencjału receptora (amplitudę i czas trwania) i porównaj je z pierwszymi pomiarami. Przyjmij, że nakłuta komórka fotoreceptora jest zdrowa, jeśli wykazuje te same charakterystyki.
UWAGA: Po ablacji stożka ocznego preparat biologiczny pozostaje żywotny przez kolejne 2 h.
- Protokół dwóch impulsów: Zmierz powrót z desensybilizacji za pomocą protokołu dwóch błysków światła.
UWAGA: Protokół dwóch błysków światła jest podobny do standardowego protokołu dwóch impulsów napięciowych stosowanego do pomiaru powrotu z inaktywacji kanałów sterowanych napięciem20. Pierwszy błysk światła powoduje tymczasową zmianę wrażliwości komórki fotoreceptora, a drugi błysk pozwala ocenić stan przewodnictwa aktywowanego światłem.- Podaj parę impulsów światła. Zastosuj drugi błysk pożądanym odstępie czasu (od 30 ms do 2 min).
- Zdigitalizuj prądy przy częstotliwości próbkowania 10 KHz za pomocą oprogramowania do akwizycji danych i zapisz dane do analizy offline1.
UWAGA: Tabela z wartościami konfiguracyjnymi oprogramowania jest dołączona jako materiał uzupełniający.
5. Analiza danych
- Kinetyka prądu wywołanego światłem
- Zmierz trzy parametry prądowe: latencję aktywacji L, czyli czas od podania błysku światła do momentu, gdy prąd osiągnie 10% swojej maksymalnej amplitudy (Rysunek 5); amplitudą szczytową lub maksymalną prądu Ip; oraz stałą czasową desensytyzacji T. Stałą czasową desensytyzacji (Τ) należy wyznaczyć poprzez dopasowanie fazy spadku prądu do równania:

gdzie A = -I(t=0) jest stałą dodatnią (Rycina 5).
- Zmierz trzy parametry prądowe: latencję aktywacji L, czyli czas od podania błysku światła do momentu, gdy prąd osiągnie 10% swojej maksymalnej amplitudy (Rysunek 5); amplitudą szczytową lub maksymalną prądu Ip; oraz stałą czasową desensytyzacji T. Stałą czasową desensytyzacji (Τ) należy wyznaczyć poprzez dopasowanie fazy spadku prądu do równania:
- Desensytyzacja i regeneracja
Uwaga: Stopień powrotu z desensybilizacji oceniano jako stosunek p2/p1, gdzie p1 czy jest to odpowiedni parametr (zarówno L, jak i Ip, lub T) prądu kontrolnego oraz p2 jest odpowiadającym mu parametrem drugiego prądu pomiarowego.- Wykres p2/p1 (albo L, Iplub T) jako funkcję czasu pomiędzy impulsami.
- W zależności od parametru dopasuj punkty każdego wykresu do:
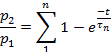
lub do:
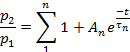
- Należy zastosować odpowiedni test statystyczny, aby określić liczbę członów wykładniczych niezbędnych do dopasowania danych eksperymentalnych.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
W pierwszej kolejności uzyskano reprezentatywny potencjał receptorowy komórek photoreceptorów homara (Rysunek 4). Następnie zastosowano testowy błysk światła w celu wywołania prądu transdukcji świetlnej (Rysunek 5). Kationowy prąd transdukcji1 aktywuje się po opóźnieniu, osiąga wartość maksymalną, a następnie powoli spada do stanu absorpcyjnego odczulenia, z którego powoli się regeneruje.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Rak okazał się doskonałym modelem ze względu na swoją zdolność do przetrwania w warunkach nienaturalnych. Istnieje łatwy dostęp do analiz elektrofizjologicznych in vivo i in vitro . Ponadto skorupiaki są grupą korzystną dla badań neurobiologicznych z zakresu chronobiologii porównawczej21.
W niniejszej pracy przedstawiono badania nad odczulaniem i odzyskiwaniem aktywowanego światłem prądu transdukcji komórek fotoreceptorów raków przy użyciu techniki zap...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Nie mamy nic do ujawnienia.
Podziękowania
Ta praca była wspierana przez DGAPA-UNAM IN224616-RN224616 grant. Autorzy pragną podziękować Pani Josefinie Bolado, Kierownikowi Działu Tłumaczeń Prac Naukowych z División de Investigación na Facultad de Medicina, UNAM, za redakcję angielskojęzycznej wersji tego manuskryptu.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Axoclamp2A | Wzmacniacz Axon Instruments Inc | ||
| Interfejs Digidata 1200 | Axon Instruments Inc | Oscyloskop digitizer | |
| TDS430A | Tektronix | Oscyloskop analogowy | |
| Fotostymulator PS33 Plus | Ściągacz do lampy trawiastej | ||
| PC-100 | Ściągacz do mikropipet | Narishige | |
| P-97 | Sutter Instruments | Ściągacz do mikropipet | |
| Szklana rurka kapilarna Kimax-51 | Produkty Kimble | 34502 | 0,8, 1,10, 100 mm |
| HS-2 Scena czołowa | Axon Instruments Inc | ||
| Mikromanipulator czołowy MX-4 | Narishige | Mikromanipulator mechaniczny | |
| Mikroskop stereoskopowy | Mikroskop Zeiss | ||
| pClamp | Axon Instruments Inc | Oprogramowanie do akwizycji danych dla interfejsu digidata 1200 | |
| Clampfit | Axon Instruments, Inc | Oprogramowanie analityczne połączone z pClamp | |
| Origin | OriginLab Corp. | Oprogramowanie do analizy danych i tworzenia wykresów | |
| Chlorek sodu | Sigma | S7653 | >99,5% |
| Chlorek potasu | Sigma | P-9333 | Minimum 99% |
| Siarczan magnezu | Sigma | M7506 | Minimum 99,5% |
| Chlorek wapnia | Sigma | C5080 | Minimum 99,0% |
| Hepes | Sigma | H7523 | >99,5% |
| Wodorotlenek sodu | Sigma | S8045 | 98,00% |
| podchlorynu sodu | Sigma | 425044 | Dostępny chlor, 10-15% |
Bibliografia
- Barriga-Montoya, C., Gómez-Lagunas, F., Fuentes-Pardo, B. Effect of pigment dispersing hormone on the electrical activity of crayfish visual photoreceptors during the 24-h cycle. Comp. Biochem. Physiol. A Comp. Physiol. 157 (4), 338-345 (2010).
- Barriga-Montoya, C., de la O-Martínez, A., Fuentes-Pardo, B., Gómez-Lagunas, F. Desensitization and recovery of crayfish photoreceptors. Dependency on circadian time, and pigment-dispersing hormone. Comp. Biochem. Physiol. A Comp. Physiol. 203, 297-303 (2017).
- Wickenden, A. D. Overview of electrophysiological techniques. Curr. protoc. pharmacol. 11, 1-17 (2014).
- Brette, R., Destexhe, A. Intracellular recording. Handbook of Neural Activity Measurement. , 44-91 (2012).
- Cummins, D., Goldsmith, T. H. Cellular identification of the violet receptor in the crayfish eye. J. Comp. Physiol. 142 (2), 199-202 (1981).
- Eguchi, E. Rhabdom structure and receptor potentials in single crayfish retinular cells. J. Cell and Comp. Physiol. 66, 411-430 (1965).
- Nosaki, H. Electrophysiological study of color encoding in the compound eye of crayfish, Procambarus clarkii. Z. vergl. Physiologie. 64 (3), 318-323 (1969).
- Miller, C. S., Glantz, R. M. Visual adaptation modulates a potassium conductance in retinular cells of the crayfish. Vis Neurosci. 17 (3), 353-368 (2000).
- Hamill, O. P., Marty, A., Neher, E., Sakmann, B., Sigworth, F. J. Improved patch-clamp techniques for high-resolution current recording from cells and cell-free membrane patches. Pflugers Arch. 391 (2), 85-100 (1981).
- Lishko, P., Clapham, D. E., Navarro, B., Kirichok, Y. Sperm patch-clamp. Methods Enzymol. 525, 59-79 (2013).
- Finkel, A. Axoclamp-2A microelectrode clamp theory and operation. Axon Instruments, Inc. , (1990).
- Single-channel recording. Sakmann, B. , Springer Science & Business Media. (2013).
- Van Harreveld, A. A physiological solution for freshwater crustacea. Proc. Soc. Exp. Biol. Med. 34 (4), 428-432 (1936).
- Oesterle, A. pipette cookbook. , Sutter Instruments. Novato, CA. 97(2008).
- Fuentes-Pardo, B., Ramos-Carvajal, J. The phase response curve of electroretinographic circadian rhythm of crayfish. Comp. Biochem. Physiol. A Comp. Physiol. 74 (3), 711-714 (1983).
- Pace-Schott, E. F., Hobson, J. A. The neurobiology of sleep: genetics, cellular physiology and subcortical networks. Nat. Rev. Neurosci. 3 (8), 591-605 (2002).
- Pittendrigh, C. S. On the mechanism of the entrainment of a circadian rhythm by light cycles. Circadian Clocks. Aschoff, J. , North Holland, Amsterdam. 277-297 (1965).
- Pittendrigh, C. S. Circadian systems: entrainment. Handbook Behavioral Neurobiology Biological Rhythms. Aschoff, J. , Plenum, New York. 94-124 (1981).
- Vitaterna, M. H., Takahashi, J. S., Turek, F. W. Overview of circadian rhythms. Alcohol Res. Health. 25 (2), 85-93 (2001).
- Hille, B. Ion channels of excitable membranes. 507, Sinauer. Sunderland, MA. (2001).
- Dircksen, H., Strauss, J. Circadian clocks in crustaceans: identified neuronal and cellular systems. Front Biosci. 15, 1040-1074 (2010).
- Terakita, A., Hariyama, T., Tsukahara, Y., Katsukura, Y., Tashiro, H. Interaction of GTP-binding protein Gq with photoactivated rhodopsin in the photoreceptor membranes of crayfish. FEBS Lett. 330, 197-200 (1993).
- Terakita, A., Takahama, H., Hariyama, T., Suzuki, T., Tsukahara, Y. Light regulated localization of the beta-subunit of Gq-type G-protein in the crayfish photoreceptors. J Comp Physiol A. 183 (4), 411-417 (1998).
- Terakita, A., Takahama, H., Tamotsu, S., Suzuki, T., Hariyama, T., Tsukahara, Y. Light-modulated subcellular localization of the alpha-subunit of GTP-binding protein Gq in crayfish photoreceptors. Vis Neurosci. 13 (3), 539-547 (1996).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
