Opisujemy nową metodę liczenia ryb oraz szacowania względnej obfitości (MaxN) i gęstości ryb za pomocą obrotowych systemów kamer stereo-video. Pokazujemy również, jak wykorzystać odległość od kamery (odległość Z) do oszacowania wykrywalności specyficznej dla gatunku.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Opracowanie nowych metod ilościowego określania zagęszczenia ryb za pomocą podwodnych narzędzi stereo-wideo
W tym artykule
Podsumowanie
Streszczenie
Wykorzystanie systemów kamer wideo w badaniach ekologicznych ryb nadal zyskuje na popularności jako opłacalna, nieekstrakcyjna metoda pomiaru długości ryb i szacowania obfitości ryb. Opracowaliśmy i wdrożyliśmy narzędzie do obrotowej kamery stereo-wideo, które obejmuje pełne próbkowanie 360 stopni, co maksymalizuje wysiłek związany z próbkowaniem w porównaniu ze stacjonarnymi narzędziami kamery. Różnorodne badania szczegółowo opisały zdolność statycznych systemów kamer stereoskopowych do uzyskiwania bardzo dokładnych i precyzyjnych pomiarów ryb; Skoncentrowano się na opracowaniu podejść metodologicznych do ilościowego określania zagęszczenia ryb za pomocą systemów kamer obrotowych. Pierwszym podejściem było opracowanie modyfikacji metryki MaxN, która zazwyczaj jest konserwatywnym zliczaniem minimalnej liczby ryb zaobserwowanych podczas danego badania kamerą. Na nowo definiujemy MaxN jako maksymalną liczbę ryb obserwowanych w dowolnym obrocie systemu kamer. Gdy podejmowane są środki ostrożności w celu uniknięcia podwójnego liczenia, ta metoda dla MaxN może dokładniej odzwierciedlać rzeczywistą obfitość niż ta uzyskana z kamery stałopozycyjnej. Po drugie, ponieważ stereowideo pozwala na mapowanie ryb w przestrzeni trójwymiarowej, dla każdej ryby można uzyskać dokładne oszacowania odległości od kamery. Wykorzystując 95% percentyl obserwowanej odległości od kamery do ustalenia badanych obszarów specyficznych dla danego gatunku, uwzględniamy różnice w wykrywalności między gatunkami, unikając jednocześnie rozcieńczania szacunków gęstości poprzez użycie maksymalnej odległości, w jakiej zaobserwowano gatunek. Uwzględnienie tego zakresu wykrywalności ma kluczowe znaczenie dla dokładnego oszacowania liczebności ryb. Metodologia ta ułatwi integrację rotacyjnych narzędzi stereo-wideo zarówno w kontekście nauk stosowanych, jak i zarządzania.
Wprowadzenie
Wzdłuż amerykańskiego wybrzeża Pacyfiku, wiele gatunków ważnych dla komercyjnego i rekreacyjnego połowu ryb dennych (np. kompleks ryb skalnych (Sebastes spp.) i Lingcod (Ophiodon elongatus)) są silnie związane z siedliskami o twardym dnie1,2,3,4,5. Stereofoniczne kamery zrzutowe są atrakcyjnym narzędziem nieekstrakcyjnym do stosowania w skalistych siedliskach ze względu na względną łatwość i prostotę obsługi. Na półkuli południowej, w ekosystemach płytkiej wody, na półkuli południowej, opracowano i wdrożono różnorodne systemy kamer stereo-wideo6,7,8,9,10, a ostatnio kamery zrzutowe wideo zyskały na popularności jako narzędzie do zarządzania środowiskami głębokich skalistych raf wzdłuż wybrzeża Pacyfiku11,12,13. Staraliśmy się zmodyfikować te istniejące konstrukcje kamer stereoskopowych poprzez użycie systemu kamer stereo (zwanego dalej "Lander") w celu bardziej efektywnego scharakteryzowania populacji ryb na dnie morskim o wysokiej rzeźbie wzdłuż środkowego wybrzeża Pacyfiku (patrz Tabela Materiałów). Zastosowany lądownik różnił się od istniejących systemów wideo, ponieważ kamery były zamontowane na centralnej obrotowej belce, co pozwalało na pełne pokrycie 360° dna morskiego w miejscu zrzutu14. Lądownik wykonywał jeden pełny obrót na minutę, co pozwoliło nam szybko scharakteryzować liczebność i skład społeczności na danym obszarze oraz osiągnąć ten sam poziom mocy statystycznej przy mniejszej liczbie rozmieszczenia lądownika. (Zobacz Starr (2016)14, aby uzyskać więcej szczegółów na temat konfiguracji lądownika). Wstępne testy w systemie badawczym sugerowały, że osiem obrotów kamer w naszych badaniach wystarczyło do scharakteryzowania liczebności i bogactwa gatunków. Ustalenia tego dokonano na podstawie obserwacji malejących zwrotów w obfitości gatunków i zagęszczeniu ryb przy dłuższych spadkach. Zalecamy, aby w każdym nowym systemie przeprowadzono badanie pilotażowe obejmujące dłuższe czasy namaczania w celu określenia optymalnego czasu wygrzewania dla danego ekosystemu/badanego gatunku.
Korzystając z sparowanych kamer stereo, zarówno całkowity obszar badania, jak i bezwzględne zagęszczenie ryb mogą być obliczane dla każdego badania wideo; jednak użycie kamer obrotowych wymagało modyfikacji tradycyjnych wskaźników liczenia ryb. Stacjonarne systemy wideo najczęściej używają "MaxN" jako konserwatywnej liczby ryb na wdrożeniu6,10. Tradycyjny MaxN opisuje maksymalną liczbę ryb danego gatunku obserwowanych razem w jednej klatce wideo, aby uniknąć podwójnego liczenia ryby, która opuściła kadr i wróciła do niego. MaxN jest zatem oszacowaniem minimalnej liczby ryb, o których wiadomo, że są obecne, i może zaniżać rzeczywistą obfitość ryb6,10. Metryka MaxN została przedefiniowana tak, aby reprezentowała największą liczbę ryb widzianych w każdym pełnym obrocie kamer.
Drugą modyfikacją poprzednich metod stereo było uwzględnienie faktu, że gatunki o różnych rozmiarach, kolorach i kształtach mają różne maksymalne odległości niezawodnej identyfikacji. Na przykład duże gatunki, takie jak O. elongatus, mają wyraźny wydłużony kształt i można je niezawodnie zidentyfikować ze znacznie większych odległości w porównaniu z małymi i tajemniczymi gatunkami, takimi jak skalniak kwadratowy (Sebastes hopkinsi). Te różne maksymalne zakresy wykrywalności zmieniają efektywny obszar pobierany przez lądownik dla każdego gatunku. Ponieważ kamery stereoskopowe pozwalają nam umieścić każdą rybę w przestrzeni trójwymiarowej z dużą dokładnością, można określić odległość od kamer, w której każda ryba została zmierzona (tj. "odległość Z", nazwana tak od "osi z", która jest prostopadła do linii prostej narysowanej między kamerami). Dla każdego gatunku odległość, w której zaobserwowano 95% wszystkich osobników (zwana dalej "odległością 95% Z") została uznana za promień badanego obszaru i została wykorzystana do obliczenia całkowitego obszaru objętego badaniem. Oprócz cech charakterystycznych dla danego gatunku, na identyfikowalność będą miały wpływ warunki środowiskowe, takie jak zmętnienie wody. Ponieważ czynniki te mogą różnić się w czasie i przestrzeni, ważne jest, aby używać statystyki 95% Z tylko w ujęciu zagregowanym. Chociaż będzie bardzo dokładny w przypadku dużych prób, każde pojedyncze badanie może różnić się badanym obszarem.
Protokół opisany poniżej zawiera wskazówki, jak tworzyć i używać tych wskaźników. Chociaż skupiono się na scharakteryzowaniu głębokowodnych skalistych siedlisk wzdłuż wybrzeża Pacyfiku, metodologia opisana dla zmodyfikowanego zliczania MaxN jest łatwo stosowana do każdego systemu obrotowych kamer zrzutowych. Liczba obrotów kamery potrzebna do scharakteryzowania populacji ryb będzie zależała od dynamiki lokalnego ekosystemu, ale konceptualizacja zmodyfikowanego MaxN pozostanie taka sama. Podobnie, podczas gdy użyliśmy oprogramowania fotogrametrycznego 3D do analizy stereo wideo, opisane tutaj techniki można łatwo zastosować na różnych platformach oprogramowania, o ile możliwa jest dokładna lokalizacja ryb w przestrzeni trójwymiarowej. Ponadto podejście polegające na zastosowaniu wartości odległości 95% Z może być brane pod uwagę w przyszłych badaniach z użyciem kamer stereoskopowych, aby uwzględnić specyficzne dla gatunku zakresy wykrywalności i dokładniej obliczyć liczebność ryb.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
UWAGA: Zrzuty ekranu z krokami obsługi oprogramowania zostały dołączone jako Pliki uzupełniające. Należy pamiętać, że opisane poniżej kroki są specyficzne dla wybranego oprogramowania (patrz Tabela materiałów). Ogólne podejście można zastosować do dowolnej platformy oprogramowania do stereomikroskopii.
1. Przygotowanie materiału wideo z kamery stereoskopowej do analizy
UWAGA: Zaleca się przeprowadzanie kalibracji przy użyciu kostki kalibracyjnej. Kostka kalibracyjna to trójwymiarowa aluminiowa rama z precyzyjnie rozmieszczonymi odblaskowymi punktami na powierzchni. Stosowana wraz z oprogramowaniem kalibracyjnym, kostka kalibracyjna zapewnia większą precyzję i dokładność niż metody oparte na szachownicy9.
- Kalibruj kamery landera za pomocą oprogramowania do kalibracji stereoskopowej (Rycina 1 i Rycina 2; patrz Tabela materiałów w celu rekomendacji oprogramowania).
UWAGA: Kalibrację można zweryfikować przed użyciem w terenie poprzez pomiar obiektów o znanych rozmiarach w różnych odległościach (patrz Wideo uzupełniające 1). Średni błąd pomiaru dla celu o długości 50 cm w odległości 3 m (lub mniejszej) nie powinien przekraczać 2% znanej długości celu. Należy również pamiętać, że dana kalibracja będzie ważna tylko wtedy, gdy pozycje kamer względem siebie nie ulegną zmianie. Niezwykle ważne jest zachowanie ostrożności i unikanie niezamierzonego poruszenia kamerami aż do czasu przeprowadzenia wszystkich pomiarów. - Zbierz dane terenowe przy użyciu skalibrowanego landera (Rycina 1, Film uzupełniający 2).
- Po zakończeniu badań terenowych należy utworzyć nowy folder projektu zawierający zarówno pliki wideo, jak i pliki kalibracyjne.
UWAGA: W każdym folderze projektu muszą znajdować się co najmniej pięć plików: pliki kalibracyjne „.Cam” dla lewego i prawego kanału, pliki wideo dla lewego i prawego kanału (wyłącznie w formacie .MP4 lub .AVI) oraz lista gatunków (w formacie .txt). - W oprogramowaniu do pomiarów stereoskopowych rozpocznij nowy projekt pomiarowy, a następnie załaduj odpowiednie pliki wideo i pliki kalibracyjne.
UWAGA: Zrzuty ekranu wszystkich kroków w oprogramowaniu są dostępne wśród Pliki uzupełniające.- Przejdź do sekcji „Pomiar” > Nowy plik pomiarowy
- Ustaw katalog obrazów, przechodząc do folderu „Picture” > Wybierz „Set picture directory”, a następnie wskaż folder zawierający wszystkie pliki projektu.
- Wczytaj plik „.Cam” lewej kamery, przechodząc do sekcji „Stereo”. > Kamery > Lewy > „Załaduj plik kamery” i wybór odpowiedniego pliku.
- Powtórz krok 1.4.3, aby wczytać plik „.Cam” prawej kamery
UWAGA: Pliki te zawierają pomiary kalibracyjne dla każdej kamery (np., rozmiar piksela, współczynnik proporcji, dystorsja radialna, dystorsja decentrowania, itp.) i zostanie wykorzystany do pomiaru ryb oraz obliczenia odległości od kamery (t. j., odległość Z). - Zdefiniuj sekwencję filmów dla lewego pliku wideo, przechodząc do sekcji „Obraz” (Picture) > „zdefiniuj sekwencję filmu” i wybranie pliku wideo z kamery lewej.
- Wczytaj lewy plik wideo do oprogramowania pomiarowego, wybierając opcję „Picture”. > wczytaj obraz
UWAGA: Przed wczytaniem plików wideo należy upewnić się, że pole „Lock” jest odznaczone. Pozwala to na jednoczesne wczytanie obu filmów. - Zdefiniuj sekwencję klatek i wczytaj plik wideo dla odpowiedniego obrazu za pomocą menu „Stereo” > obraz > „zdefiniuj sekwencję filmu” i „Stereo” > obraz > załaduj obraz
- Załaduj listę gatunków, przechodząc do sekcji „Measurement” > Atrybuty > Edytuj/wczytaj plik gatunków.
- Wprowadź informacje o identyfikatorze ankiety w sekcji „Pola informacyjne” > Zmień wartość pola i zapisz plik, aby utworzyć projekt .EMObs.
- Zsynchronizuj filmy, używając błysku światła, klaśnięcia, znacznika czasu UTC (Coordinated Universal Time) lub dowolnego innego konkretnego zdarzenia czasowego występującego w obu nagraniach.
- W przypadku korzystania ze znacznika czasu UTC, należy przesuwać klatki do przodu w lewym filmie, aż znacznik czasu wskaże początek nowej sekundy. W przeciwnym razie należy przesuwać klatki do przodu, aż do momentu wystąpienia błysku światła lub klaśnięcia.
- Przesuwaj obraz w prawym filmie klatka po klatce do przodu, aż znacznik czasu będzie dokładnie odpowiadał czasowi w lewym filmie. W przeciwnym razie przesuwaj obraz klatka po klatce do przodu, aż moment błysku światła lub klaśnięcia będzie dokładnie odpowiadał lewemu filmowi.
UWAGA: Ważne jest, aby nagrania wideo były zsynchronizowane do tej samej klatki. Synchronizację wideo należy okresowo sprawdzać za pomocą znacznika czasu, aby uniknąć rozsynchronizowania klatek kamer podczas analizy. W celu sprawdzenia, czy nagrania z lewej i prawej strony są zsynchronizowane do tej samej klatki, na początku i na końcu filmu można zastosować nagranie klaśnięcia dłońmi.
- Kliknij przycisk „Zablokuj”, aby zapewnić wspólne odtwarzanie filmów i zachować ich synchronizację.
2. Generowanie liczb punktów i obliczanie MaxN
UWAGA: Każda ryba jest początkowo oznaczana punktem 2D do najniższej możliwej rozdzielczości taksonomicznej. Ryby o niepewnej identyfikacji powinny zostać oznaczone do późniejszego przeglądu.
- Wstrzymaj się z liczeniem ryb do czasu zakończenia pełnego obrotu kamery, aby upewnić się, że wykorzystano pełne 360 stopni. Należy również poczekać, aż opadnie osad (zazwyczaj <1 - 2 min po kontakcie z dnem).
- Gdy tylko Lander rozpocznie pierwszy obrót, kliknij prawym przyciskiem myszy, aby zdefiniować nowy okres próbkowania: 'Period definitions' > 'Add new start period'. Wpisz nazwę pierwszego okresu jako „01” i kliknij „OK”.
- W miarę obrotu Landera zacznij zaznaczać każdą rybę pojawiającą się w kadrze za pomocą punktu 2D, korzystając wyłącznie z lewej kamery.
- Aby dodać punkt 2D, kliknij prawym przyciskiem myszy, wybierz 'Add point' i wskaż odpowiednią nazwę gatunku. Oznacz rybę na najniższym możliwym poziomie taksonomicznym, wybierając 'spp.' dla gatunków nieznanych, a następnie kliknij „OK”.
- Kontynuuj zaznaczanie każdej nowej ryby zgodnie z krokiem 2.2.1 aż do zakończenia obrotu.
- Powtórz procedury protokołu 2.1 - 2.2 dla każdego kolejnego obrotu Landera – upewniając się, że na początku każdego obrotu kamery zdefiniowano nowy okres.
UWAGA: Do ustalenia, że średnio osiem obrotów było wystarczających do określenia liczebności ryb w niniejszym badaniu, wykorzystano krzywe akumulacji gatunków. Badacze powinni rozważyć przeprowadzenie wstępnych testów z dodatkowymi obrotami kamery, przy dłuższym czasie ekspozycji, aby określić optymalną liczbę obrotów kamery dla konkretnego ekosystemu. - Oblicz liczebność osobników dla poszczególnych gatunków zaobserwowanych podczas jednego obrotu kamery.
- Po zliczeniu wszystkich obrotów wyeksportuj punkty 2D, przechodząc do 'Measurement' > 'Measurement summaries' > 'Point measurements', i zapisz punkty 2D w pliku .txt.
- Otwórz zapisany plik z punktami 2D.txt w arkuszu kalkulacyjnym i utwórz tabelę przestawną (PivotTable) zestawiającą gatunki i numery obrotów w celu podsumowania liczebności (Tabela 1), przechodząc do 'Insert' > 'PivotTable'. W polu 'Row Label' wybierz „Genus and Species”, a w polu 'Column Label' wybierz „Period”.
- Wyznacz wartość MaxN dla każdego gatunku, wybierając obrót kamery, w którym odnotowano największą liczbę osobników tego gatunku (Tabela 1).
- W przypadku ryb zidentyfikowanych jedynie do poziomu rodzaju, wybierz MaxN na poziomie rodzaju na podstawie obrotu, w którym zidentyfikowano największą liczbę osobników należących do tego konkretnego rodzaju na poziomie gatunku.
UWAGA: Krok ten pomaga uniknąć wielokrotnego liczenia pojedynczych ryb, które można było przypisać jedynie do wyższych grup taksonomicznych (np. tylko do rodzaju lub rodziny). Na przykład w Tabeli 1 „obrót 1” zawierał 10 niezidentyfikowanych Sebastes spp. oraz 3 przedstawicieli rodzaju Sebastes zidentyfikowanych do gatunku, podczas gdy „obrót 3” zawierał tylko dwa niezidentyfikowane Sebastes spp. i 43 przedstawicieli rodzaju Sebastes zidentyfikowanych do gatunku. W związku z tym do obliczenia MaxN dla nieznanych Sebastes spp. wykorzystano by „obrót 3”. W ten sposób przyjęto konserwatywne założenie, że 8 niezidentyfikowanych Sebastes spp. z „obrotu 1” zostało zidentyfikowanych w „obrocie 8”. - Jeśli kilka obrotów ma taką samą liczbę MaxN dla danego gatunku, wybierz pierwszy obrót z MaxN do pomiarów punktów 3D.
- Dla każdego gatunku wykonaj pomiary 3D ryb w obrocie, w którym wystąpiło MaxN.
- Wykorzystaj zapisane punkty 2D zebrane w krokach 2.1 - 2.3, aby zlokalizować dokładnie te same ryby do pomiaru 3D.
- Zastosuj powiększenie co najmniej 4-krotne, aby lepiej zidentyfikować czubek ryja ryby oraz krawędzie płetw ogonowych (Rysunek 3).
UWAGA: Może być konieczne przesunięcie kadru do przodu lub do tyłu, aby znaleźć najlepszą orientację ryby do pomiaru 3D. Za „najlepszą” orientację uznaje się taką, w której zarówno ryj, jak i krawędzie płetw ogonowych są widoczne w obu kamerach. - Kliknij ręcznie na czubku ryja, a następnie na krawędzi ogona w lewej kamerze, a potem powtórz wybór w tej samej kolejności w prawym wideo.
- Wybierz poprawną identyfikację gatunkową z list rozwijanych, tak jak zrobiono to w punkcie 2.2.1.
- Jeśli pomiar długości 3D nie jest możliwy, na przykład gdy głowa i ogon ryby nie są widoczne w obu kamerach, zaznacz zamiast tego punkt 3D, klikając lewym przyciskiem myszy w tej samej pozycji ryby w obu filmach (lewym i prawym). Wypełnij pola informacyjne jak wcześniej i wpisz w komentarzu „Exclude from length measurement”.
UWAGA: MaxN może wystąpić w różnych obrotach kamer dla różnych gatunków; jednak dla każdego konkretnego gatunku pomiary powinny odbywać się tylko w jednym obrocie (Tabela 1).
- Po zakończeniu pomiarów 3D dla wszystkich ryb wyeksportuj dane do pliku .txt w celu dalszej analizy.
- Przejdź do 'Measurement' > 'Measurement summaries' > '3D Point and length measurements' i zapisz plik .txt do eksportu.
3. Procedura wyznaczania odległości Z dla 95% dla obszarów badawczych specyficznych dla gatunków
UWAGA: Dystans Z 95% jest szacunkiem średniej odległości, z której gatunek mógłby zostać wiarygodnie zidentyfikowany w danym badaniu, z wyłączeniem przypadków wyjątkowych warunków przejrzystości wody lub oświetlenia. Obliczenie to uwzględnia średnie warunki oceanograficzne dla danego badania i będzie wymagało ponownego przeliczenia dla każdego nowego badania.
- Zastosuj prosty bootstrapping, aby ustalić, czy wielkość próby jest wystarczająca do określenia dystansu wiarygodnej detekcji dla każdego gatunku.
- Dla każdej klasy wielkości próbek (np., przedziały wielkości próby co 5 ryb), wykonaj 10 losowań z powtórzeniami dla wybranej wielkości próby z populacji próby, oblicz średnią kwantylu 95% odległości dla tych 10 losowań i wykreśl otrzymaną krzywą asymptotyczną. Patrz w dostarczonym kodzie w Pliki uzupełniające 1 & 2.
- Należy zweryfikować, czy pobrano odpowiednią liczbę próbek, porównując rzeczywistą wielkość próby z asymptotą odległości Z dla poziomu ufności 95% wraz ze wzrostem wielkości próby.
- Oblicz wartość odległości Z dla poziomu 95% jako kwantyl 95% zmierzonej dla danego gatunku odległości od kamery we wszystkich badaniach.
- Oblicz efektywną powierzchnię monitoringu dla każdego gatunku, wykorzystując wartość Z dla poziomu ufności 95%.
UWAGA: W przypadku obrotowego lądownika (Landera) wartość Z dla 95% reprezentuje promień zewnętrzny przebadanego pasa, podczas gdy promień wewnętrzny jest określony przez fizyczną konfigurację narzędzia oraz to, jak blisko podstawy kamery są w stanie prowadzić obserwację. W miarę obrotu lądownika powstaje obszar badań w kształcie „pączka” (donuta) (Rysunek 4).- Obliczyć zbadany obszar według wzoru:
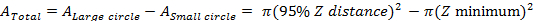
UWAGA: Na przykład w przypadku stosunkowo dużego gatunku, takiego jak rybak żółtooki (Sebastes ruberrimus) wykazywał 95% odległości Z wynoszącą 3,3 m oraz efektywny obszar pomiarowy o wielkości 30,9 m2 na wdrożenie lądownika: 34,3 m2 (zewnętrzny okrąg) – 3,4 m2 (okrąg wewnętrzny) = 30,9 m2 (całkowity obszar badania).
- Obliczyć zbadany obszar według wzoru:
- Wykorzystując obliczony obszar badawczy (krok 3.3.1), należy przeliczyć liczbę osobników poszczególnych gatunków (MaxN) na szacunkową gęstość dla każdego badania wizualnego, stosując następujące równanie:
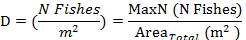
UWAGA: Podobną procedurę można by zastosować do obliczenia gęstości objętościowej zamiast gęstości powierzchniowej; proces ten nie został jednak tutaj opisany.
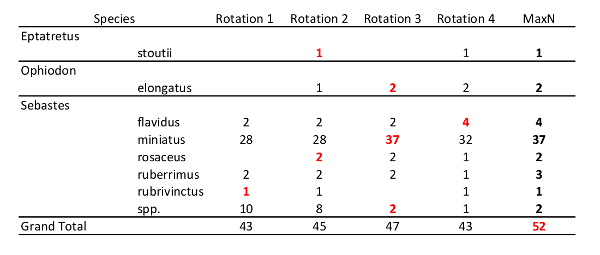
Tabela 1: Przykładowa tabela podsumowująca MaxN. Wybór wartości MaxN dla każdego gatunku został zaznaczony czerwonym kolorem i pogrubieniem. Należy zauważyć, że konserwatywna wartość MaxN dla niezidentyfikowanych Sebastes wyznaczono przez rotację z największą Sebastes zidentyfikowano na poziomie gatunku (rotacja 3). Ponadto, choć w badaniu zastosowano osiem rotacji kamery, wyświetlono tylko cztery rotacje w Tabela 1 dla uproszczenia. Proces wyboru MaxN jest identyczny niezależnie od liczby rotacji.
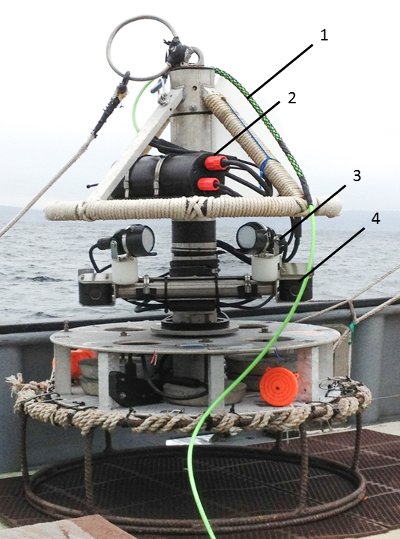
Rysunek 1Wideo stereoskopowe lądownika. Kluczowe elementy sprzętowe są ponumerowane (1) 30 m przewodu pępowinowego, (2) dwa cyfrowe rejestratory wideo (DVR) z wyjmowanymi kartami pamięci 32 GB wewnątrz wodoodpornej butelki, (3) dwie diody LED emitujące 3 0 lumenów przy temperaturze barwowej 5 0 K oraz (4) dwie kamery o rozdzielczości 620 linii telewizyjnych (TVL). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
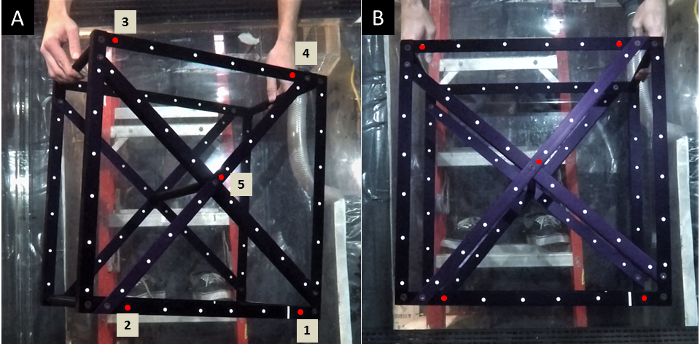
Rycina 2Kostka kalibracyjna (50 mm x 50 mm x 300 mm). Przykład kalibracji z użyciem „kostki kalibracyjnej” przedstawiony w dwóch różnych orientacjach: (A) prawa strona sześcianu jest wypchnięta w stronę kamer, a (B) Ścianka sześcianu jest równoległa do płaszczyzny kamer. Czerwone kropki oznaczają punkty odniesienia wykorzystywane w tej konkretnej metodzie kalibracji, które muszą być zawsze identyfikowane w kolejności numerycznej. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
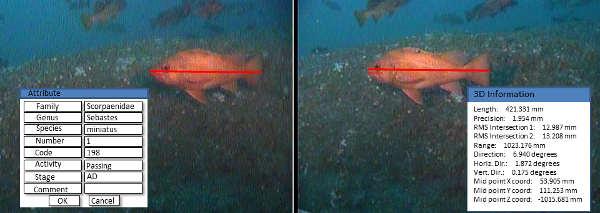
Rysunek 3pomiar 3D umieszczony na Sebastes miniatusW każdej klatce obrazu z kamer zidentyfikowano czubek ryjca oraz koniec ogona, aby umożliwić pomiar stereoskopowy. Kliknij tutaj, aby wyświetlić powiększoną wersję tej figury.
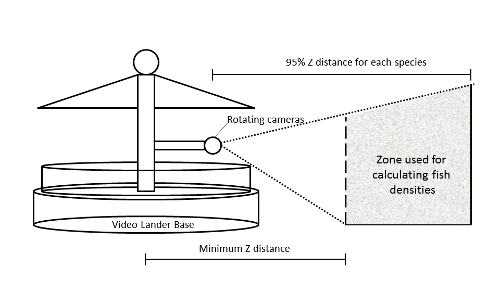
Rysunek 4Obszar zbadany za pomocą narzędzia Lander. Efektywny obszar zbadany przez narzędzie Lander był ograniczony przez minimalną odległość Z oraz odległość Z dla 95% dla każdego gatunku. Należy zauważyć, że obszar ten utworzył objętość badania w kształcie „pączka” wokół urządzenia Lander. Aby wyświetlić powiększoną wersję tej ryciny, kliknij tutaj.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
W latach 2013–2014 przeprowadziliśmy 816 badań z wykorzystaniem obrotowego lądownika stereo-wideo (Rycina 1) wzdłuż centralnego wybrzeża Kalifornii i zebraliśmy dane dotyczące MaxN oraz odległości Z 95% (Rycina 4) dla ponad 20 gatunków. Zaobserwowano wyraźne wzorce w efektywnym zasięgu wykrywalności gatunków, co prawdopodobnie wynika z interakcji między rozmiarem, kształtem i ubarwieniem gatunków (Rycina 5
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Tradycyjna metryka MaxN opiera się na idei liczenia gwarantowanej minimalnej liczby osób obecnych podczas ankiety. Jeśli pewna liczba ryb jest jednocześnie widoczna w jednej klatce wideo, nie może być ich mniej, ale ponieważ ryby są mobilne i niejednorodnie rozmieszczone, prawdopodobieństwo zobaczenia wszystkich osobników jednocześnie w jednej klatce wideo jest niskie. Jest zatem prawdopodobne, że tradycyjny MaxN zaniża rzeczywistą liczebność ryb16,17. Ponadto wy...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia
Podziękowania
Ta praca została sfinansowana przez The Nature Conservancy i prywatnych darczyńców, Resources Legacy Fund Foundation, Gordon and Betty Moore Foundation, Environmental Defense Fund, California Sea Grant Program, NMFS National Cooperative Research Program, oraz NOAA Saltonstall-Kennedy Grant #13-SWR-008. Marine Applied Research and Exploration (Dirk Rosen, Rick Botman, Andy Lauerman i David Jefferies) opracowało, zbudowało i utrzymywało narzędzie wideo Lander. Dziękujemy Jimowi Sagerowi i oprogramowaniu SeaGIS™ za wsparcie techniczne. Kapitan i rybak komercyjny Tim Maricich oraz załoga na pokładzie F/V Donna Kathleen zapewniali wsparcie w rozmieszczeniu lądownika w latach 2012-2015. Dziękujemy wszystkim, którzy wzięli udział w zbieraniu lub analizie danych wideo (Anne Tagini, Donna Kline, porucznik Amber Payne, Bryon Downey, Marisa Ponte, Rebecca Miller, Matt Merrifield, Walter Heady, Steve Rienecke, EJ Dick i John Field).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| kostka kalibracyjna | SeaGIS | http://www.seagis.com.au/hardware.html | 1000x1000x500 mm to preferowane wymiary. Dostępne są inne metody kalibracji. |
| Oprogramowanie do kalibracji CAL | SeaGIS | http://www.seagis.com.au/bundle.html | |
| EventMeasure | SeaGIS | http://www.seagis.com.au/event.html | |
| R | Core Team 2017 (v. 3.4.0) | Kod startowy można znaleźć: https://github.com/rfields2017/JoVE-Bootstrap-Function | |
| Arkusz kalkulacyjny | Microsoft Excel | ||
| 2 wodoodporne kamery | Deep Sea Power i Light | Preferowana jakość HD | |
| 2 wodoodporne światła o głębokości | Deep Sea Power and Light: 3000 lumenów LED z temperaturą barwową | ||
| Rejestrator DVR | Stack LTD DVR | ||
| standard PC | 10 preferowany system operacyjny | ||
| obrotowa platforma | lądownikaMorskie Badania Stosowane i Inżynieria (MARE) |
Bibliografia
- Love, M. S., Yoklavich, M. M., Thorsteinson, L. K. The Rockfishes of the Northeast Pacific. , University of California Press. Berkley. (2002).
- Laidig, T. E., Watters, D. L., Yoklavich, M. M. Demersal fish and habitat associations from visual surveys on the central California shelf. Estuar. Coast. Shelf Sci. 83 (4), 629-637 (2009).
- Anderson, T. J., Yoklavich, M. M. Multiscale habitat associations of deepwater demersal fishes off central California. Fish. Bull. 105 (2), 168-179 (2007).
- Yoklavich, M. M., Cailliet, G. M., Sullivan, D. E., Lea, R. N., Love, M. S. Habitat associations deep-water rockfishes a submarine canyon an example of a natural refuge. Fish. Bull. 98 (3), 625-641 (2000).
- Status of the Pacific Coast Groundfish Fishery, Stock Assessment and Fishery Evaluation. , Pacific Fishery Management Council. Portland, OR. (2016).
- Cappo, M., Harvey, E., Malcolm, H., Speare, P. Potential of video techniques to monitor diversity, abundance and size of fish in studies of marine protected areas. Aquatic protected areas- What works best and how do we know. Beumer, J. P., Grant, A., Smith, D. C. , Proc. World Congr. on Aquat Protected Areas. Australian Soc. for Fish Bio. North Beach, Western Australia. 455-464 (2003).
- McLean, D. L., Green, M., Harvey, E. S., Williams, A., Daley, R., Graham, K. J. Comparison of baited longlines and baited underwater cameras for assessing the composition of continental slope deepwater fish assemblages off southeast Australia. Deep-Sea Research Part I: Oceanographic Research Papers. 98, 10-20 (2015).
- Parker, D., Winker, H., et al. Insights from baited video sampling of temperate reef fishes: How biased are angling surveys. Fish. Res. 179, 191-201 (2016).
- Boutros, N., Shortis, M. R., Harvey, E. S. A comparison of calibration methods and system configurations of underwater stereo-video systems for applications in marine ecology. Limnol. Oceanogr. Methodss. 13 (5), 224-236 (2015).
- Harvey, E. S., Cappo, M., Butler, J. J., Hall, N., Kendrick, G. A. Bait attraction affects the performance of remote underwater video stations in assessment of demersal fish community structure. Mar. Ecol. Prog. Ser. 350, 245-254 (2007).
- Watson, J. L., Huntington, B. E. Assessing the performance of a cost-effective video lander for estimating relative abundance and diversity of nearshore fish assemblages. J. Exp. Mar. Bio. Ecol. 483, 104-111 (2016).
- Easton, R. R., Heppell, S. S., Hannah, R. W. Quantification of Habitat and Community Relationships among Nearshore Temperate Fishes Through Analysis of Drop Camera Video. Mar. Coast. Fish. 7 (1), 87-102 (2015).
- Hannah, R. W., Blume, M. T. O. Tests of an experimental unbaited video lander as a marine fish survey tool for high-relief deepwater rocky reefs. J. Exp. Mar. Bio. Ecol. 430, 1-9 (2012).
- Starr, R. M., Gleason, M. G., et al. Targeting Abundant Fish Stocks while Avoiding Overfished Species: Video and Fishing Surveys to Inform Management after Long-Term Fishery Closures. Plos One. 11 (12), 0168645(2016).
- Love, M. S. Certainly more than you want to know about the fishes of the Pacific Coast: a postmodern experience. , Really Big Press. Santa Barbara, CA. (2011).
- Campbell, M. D., Pollack, A. G., Gledhill, C. T., Switzer, T. S., DeVries, D. A. Comparison of relative abundance indices calculated from two methods of generating video count data. Fish. Res. 170, 125-133 (2015).
- Cappo, M., Speare, P., De'ath, G. Comparison of baited remote underwater video stations (BRUVS) and prawn (shrimp) trawls for assessments of fish biodiversity in inter-reefal areas of the Great Barrier Reef Marine Park. J. Exp. Mar. Bio. Ecol. 302 (2), 123-152 (2004).
- Schobernd, Z. H., Bacheler, N. M., Conn, P. B., Trenkel, V. Examining the utility of alternative video monitoring metrics for indexing reef fish abundance. Can. Jour. Fish. Aquat. Sci. 71 (3), 464-471 (2014).
- Hansen, M. J., Schorfhaar, R. G., Selgeby, J. H. Gill-Net Saturation by Lake Trout in Michigan Waters of Lake Superior. North Am. J. Fish. Manag. 18 (4), 847-853 (1998).
- Dauk, P. C., Schwarz, C. J. Catch estimation in the presence of declining catch rate due to gear saturation. Biometrics. 57 (1), 287-293 (2001).
- Hilborn, R., Walters, C. J. Quantitative Fisheries Stock Assessment Choice, Dynamics and uncertainty. , Springer. Dordrecht. (1992).
- Erisman, B. E., Allen, L. G., Claisse, J. T., Pondella, D. J., Miller, E. F., Murray, J. H. The illusion of plenty: hyperstability masks collapses in two recreational fisheries that target fish spawning aggregations. Can. Jour. Fish. Aquat. Sci. 68, 1705-1716 (2011).
- Buckland, S. T., Anderson, D. R., Burnham, K. P., Laake, J. L. Distance Sampling: Estimating abundance of biological populations. , Chapman and Hill. London. (1993).
- Ronconi, R. A., Burger, A. E. Estimating seabird densities from vessel transects: Distance sampling and implications for strip transects. Aquat. Bio. 4 (3), 297-309 (2008).
- Caselle, J. E., Rassweiler, A., Hamilton, S. L., Warner, R. R. Recovery trajectories of kelp forest animals are rapid yet spatially variable across a network of temperate marine protected areas Recovery trajectories of kelp forest animals are rapid yet spatially variable across a network of temperate marine protected. Nat. Publ. Gr. , 1-14 (2015).
- Starr, R. M., Wendt, D. E., et al. Variation in Responses of Fishes across Multiple Reserves within a Network of Marine Protected Areas in Temperate Waters. Plos One. 10 (3), 0118502(2015).
- Lester, S., Halpern, B., et al. Biological effects within no-take marine reserves: a global synthesis. Mar. Ecol. Prog. Ser. 384, 33-46 (2009).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
