Ten protokół opisuje nowatorską metodę badania formy chemicznej neurostymulacji całych siatkówek szczurów in vitro za pomocą neuroprzekaźnika glutaminianu. Neurostymulacja chemiczna jest obiecującą alternatywą dla konwencjonalnej neurostymulacji elektrycznej neuronów siatkówki w leczeniu nieodwracalnej ślepoty spowodowanej chorobami zwyrodnieniowymi fotoreceptorów.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Metodologia biomimetycznej neuromodulacji chemicznej siatkówki szczura za pomocą neuroprzekaźnika glutaminianu in vitro
W tym artykule
Podsumowanie
Streszczenie
Choroby zwyrodnieniowe fotoreceptorów powodują nieodwracalną ślepotę poprzez postępującą utratę komórek fotoreceptorów w siatkówce. Protezy siatkówki są nową metodą leczenia chorób zwyrodnieniowych fotoreceptorów, która ma na celu przywrócenie wzroku poprzez sztuczną stymulację ocalałych neuronów siatkówki w nadziei na wywołanie zrozumiałej percepcji wzrokowej u pacjentów. Obecne protezy siatkówki wykazały sukces w przywracaniu ograniczonego wzroku pacjentom przy użyciu szeregu elektrod do elektrycznej stymulacji siatkówki, ale napotykają znaczne bariery fizyczne w przywracaniu pacjentom wysokiej ostrości, naturalnego widzenia. Neurostymulacja chemiczna z wykorzystaniem natywnych neuroprzekaźników jest biomimetyczną alternatywą dla stymulacji elektrycznej i może ominąć podstawowe ograniczenia związane z protezami siatkówki za pomocą neurostymulacji elektrycznej. W szczególności neurostymulacja chemiczna ma potencjał, aby przywrócić pacjentom bardziej naturalne widzenie z porównywalną lub lepszą ostrością wzroku poprzez wstrzykiwanie bardzo małych ilości neuroprzekaźników, tych samych naturalnych środków komunikacji używanych przez synapsy chemiczne siatkówki, w znacznie lepszej rozdzielczości niż obecne protezy elektryczne. Jednakże, jako stosunkowo niezbadany paradygmat stymulacji, nie ma ustalonego protokołu osiągania chemicznej stymulacji siatkówki in vitro. Celem tej pracy jest zapewnienie szczegółowych ram do osiągnięcia chemicznej stymulacji siatkówki dla badaczy, którzy chcą zbadać potencjał chemicznej neuromodulacji siatkówki lub podobnych tkanek nerwowych in vitro. W tej pracy opisujemy eksperymentalną konfigurację i metodologię wywoływania reakcji kolców komórek zwojowych siatkówki (RGC) podobnych do reakcji światła wzrokowego w siatkówkach szczurów typu dzikiego i zdegenerowanych przez fotoreceptory poprzez wstrzykiwanie kontrolowanych objętości neuroprzekaźnika glutaminianu do przestrzeni podsiatkówkowej za pomocą szklanych mikropipet i niestandardowego wieloportowego urządzenia mikroprzepływowego. Ta metodologia i protokół są na tyle ogólne, że można je dostosować do neuromodulacji przy użyciu innych neuroprzekaźników, a nawet innych tkanek nerwowych.
Wprowadzenie
Choroby zwyrodnieniowe fotoreceptorów, takie jak barwnikowe zwyrodnienie siatkówki i zwyrodnienie plamki żółtej związane z wiekiem, są głównymi dziedzicznymi przyczynami utraty wzroku i są obecnie nieuleczalne1,2. Chociaż choroby te wynikają z różnych specyficznych mutacji genetycznych, choroby zwyrodnieniowe fotoreceptorów charakteryzują się jako grupa postępującą utratą komórek fotoreceptorowych w siatkówce, co ostatecznie powoduje ślepotę. Utrata fotoreceptorów powoduje powszechną przebudowę siatkówki, ale neurony siatkówki, które przeżyły, w tym komórki dwubiegunowe i RGC, pozostają nienaruszone i względnie funkcjonalne nawet w zaawansowanych stadiach zwyrodnienia fotoreceptorów3,4,5,6,7.
Mechanizmy i patologie tych chorób zostały dobrze scharakteryzowane3,4,5,6,7 ale skuteczne leczenie pozostaje nieuchwytne. W ciągu ostatnich trzech dekad naukowcy na całym świecie badali różne metody leczenia przywracające wzrok osobom dotkniętym chorobami zwyrodnieniowymi wywołanymi przez fotoreceptory, w tym terapię genową8, leczenie komórkami macierzystymi9, przeszczep siatkówki10 oraz sztuczna stymulacja11,12 neuronów siatkówki, które przeżyły. Spośród nich najbardziej dostępne klinicznie są protezy siatkówki, które są sztucznymi urządzeniami do neurostymulacji, które tradycyjnie wykorzystują układ elektrod do elektrycznej stymulacji komórek dwubiegunowych lub RGC w określonych wzorach w celu stworzenia sztucznej percepcji wzrokowej u pacjentów11. Protezy elektryczne obecnej generacji, takie jak Argus II13 i Alpha-IMS14, uzyskały aprobatę kliniczną, a wstępne badania wykazały, że mogą poprawić jakość życia pacjentów poprzez przywrócenie pomiaru widzenia przy użyciu wszczepionych urządzeń zarówno nasiatkówkowych (przód siatkówki), jak i podsiatkówkowych (tył siatkówki)15,16. Grupy badawcze na całym świecie pracują nad rozwojem protez siatkówki wykraczającym poza sukcesy tych urządzeń pierwszej generacji17,18,19,20 ale napotkały trudności z zaprojektowaniem protezy elektrycznej zdolnej do przywrócenia pacjentom wysokiej ostrości widzenia poniżej ustawowego poziomu ślepoty. Ostatnie badania wykazały, że osiągnięcie wyższej rozdzielczości przestrzennej niż ta, którą umożliwiają protezy elektryczne obecnej generacji, jest wyzwaniem ze względu na limit wstrzykiwania ładunku, co wymaga użycia dużych elektrod do bezpiecznej stymulacji neuronów siatkówki kosztem rozdzielczości przestrzennej, tj. ostrości wzroku11,21. Co więcej, stymulacja elektryczna jest dodatkowo ograniczona, ponieważ zazwyczaj stymuluje wszystkie pobliskie komórki, a zatem wywołuje nienaturalne i mylące percepcje u pacjentów, głównie dlatego, że jest to z natury nienaturalny paradygmat stymulacji21. Niemniej jednak wczesne sukcesy stymulacji elektrycznej pokazały, że sztuczna neurostymulacja może być skutecznym sposobem leczenia chorób zwyrodnieniowych fotoreceptorów. Prowadzi to do hipotezy, że jeszcze skuteczniejsze leczenie może być osiągalne poprzez stymulację siatkówki neuroprzekaźnikami chemicznymi, naturalnymi czynnikami komunikacji w synapsach chemicznych. Celem metody przedstawionej w niniejszej pracy jest zbadanie możliwości terapeutycznej stymulacji chemicznej, która ma na celu naśladowanie naturalnego systemu komunikacji synaptycznej między neuronami siatkówki, jako biomimetycznej alternatywy dla stymulacji elektrycznej protezy siatkówki.
Tłumaczenie koncepcji terapeutycznej stymulacji chemicznej na chemiczną protezę siatkówki polega na chemicznej aktywacji docelowych neuronów siatkówki za pomocą małych ilości natywnych neuroprzekaźników, takich jak glutaminian, uwalnianych przez urządzenie mikroprzepływowe zawierające dużą gamę mikroportów w odpowiedzi na stymulację wzrokową. W ten sposób chemiczna proteza siatkówki byłaby zasadniczo biomimetyczną sztuczną warstwą fotoreceptorów, która tłumaczy fotony naturalnie docierające do siatkówki na sygnały chemiczne. Ponieważ te sygnały chemiczne wykorzystują te same neuroprzekaźniki, które są wykorzystywane w normalnej sygnalizacji siatkówki i stymulują ocalałe neurony siatkówki zdegenerowanej siatkówki poprzez te same szlaki synaptyczne, które są używane przez normalne ścieżki widzenia, wynikowa percepcja wzrokowa uzyskana przez chemiczną protezę siatkówki może być bardziej naturalna i zrozumiała w porównaniu z tą, która jest wywoływana przez protezę elektryczną. Co więcej, ponieważ mikroporty, przez które uwalniane są neuroprzekaźniki, mogą być bardzo małe i ułożone w dużej gęstości, w przeciwieństwie do elektrod, potencjalna proteza chemiczna może być w stanie osiągnąć większą stymulację ogniskową i wyższą rozdzielczość przestrzenną niż proteza elektryczna. Tak więc, w oparciu o te potencjalne zalety, chemiczna proteza siatkówki stanowi bardzo obiecującą alternatywę dla protez elektrycznych.
Chemiczna stymulacja siatkówki, do niedawna była stosunkowo mało zbadana. Podczas gdy elektryczna stymulacja siatkówki została dobrze scharakteryzowana przez dziesięciolecia pracy w ramach in vitro22,23, in vivo23,24, oraz badań klinicznych13,14, badania nad stymulacją chemiczną zostały ograniczone wyłącznie do kilku prac in vitro25,26,27,28. Iezzi i Finlayson26 oraz Inayat et al.27 zademonstrował epiretinalną stymulację chemiczną siatkówki in vitro za pomocą odpowiednio pojedynczej elektrody i matrycy wieloelektrodowej (MEA), w celu zarejestrowania wywołanych glutaminianem reakcji neuronów siatkówki. Ostatnio Rountree i wsp.28 zademonstrował różnicową stymulację ścieżek siatkówkowych OFF i ON za pomocą glutaminianu od strony podsiatkówkowej i MEA do rejestrowania odpowiedzi neuronalnych z wielu miejsc na siatkówce. Chociaż prace te wstępnie ustaliły wykonalność stymulacji chemicznej, niezbędne są dalsze badania, aby zbadać wiele aspektów tego podejścia poza tymi, które omówiono do tej pory25,26,27,28 i dostroić parametry stymulacji terapeutycznej zarówno in vitro, jak i in vivo modele zwierzęce przed przełożeniem tej koncepcji na chemiczną protezę siatkówki, jak omówiono powyżej. Obecnie jednak w literaturze nie ma ustalonej metodyki przeprowadzania chemicznej stymulacji siatkówki, a metody zastosowane w poprzednich pracach nie zostały opisane na tyle szczegółowo, aby było to niezbędne dla badań replikatywnych. Dlatego uzasadnieniem dla tego artykułu jest zapewnienie dobrze zdefiniowanych ram do prowadzenia chemicznej stymulacji siatkówki in vitro dla tych badaczy zainteresowanych powtórzeniem naszych poprzednich badań27,28 lub dalszym rozwojem tej rodzącej się koncepcji neurostymulacji chemicznej.
Tutaj demonstrujemy metodę przeprowadzania in vitro chemicznej stymulacji neuronów siatkówki w całych siatkówkach dzikich szczurów oraz model zdegenerowanego fotoreceptora szczura, który ściśle naśladuje postęp chorób zwyrodnieniowych fotoreceptorów u ludzi. Przesłanką do opracowania tej metody stymulacji w modelach in vitro jest ocena zakresów terapeutycznych różnych parametrów stymulacji oraz zbadanie charakterystyk odpowiedzi neuronalnej, które byłyby niemożliwe lub trudne do zaobserwowania w modelach in vivo, zwłaszcza podczas wstępnych badań skoncentrowanych na ocenie wykonalności tego podejścia. W tej procedurze pokazujemy zarówno jednomiejscową, jak i jednoczesną wielomiejscową stymulację chemiczną siatkówki poprzez dostarczanie niewielkich ilości 1 mM glutaminianu w pobliżu docelowych neuronów siatkówki za pomocą dostępnych na rynku jednoportowych szklanych mikropipet i niestandardowego wieloportowego urządzenia mikroprzepływowego poddanego mikroobróbce. Podczas gdy zarówno stymulacje jednomiejscowe, jak i wieloośrodkowe spełniają podstawowy cel, jakim jest zbadanie terapeutycznej wykonalności neuromodulacji chemicznej, każda z nich służy innemu celowi z unikalną zaletą. Stymulacja w jednym miejscu, która może być osiągnięta za pomocą dostępnych na rynku wstępnie wyciągniętych szklanych mikropipet, może być wykorzystana do wstrzykiwania chemikaliów bezpośrednio do podpowierzchni siatkówki w jednym miejscu i służy do zbadania, czy obserwowalne reakcje na impulsy RGC, które są podobne do wizualnie wywołanych reakcji świetlnych, mogą być wywołane ogniskowo pod miejscem wstrzyknięcia. Z drugiej strony, stymulacja wielomiejscowa, która wymaga specjalnie wyprodukowanego wieloportowego urządzenia mikroprzepływowego, może być wykorzystywana do przestrzennego wstrzykiwania chemikaliów w wiele miejsc na powierzchni siatkówki i służy do zbadania, jak dobrze wzorce odpowiedzi RCG wywołane glutaminianem odpowiadają wzorcom wstrzykiwania glutaminianu w badaniach stymulacji wzorców.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wszystkie eksperymenty na zwierzętach zostały przeprowadzone zgodnie z wytycznymi określonymi w National Research Council's Guide for the Care and Use of Laboratory Animals. Protokoły obchodzenia się ze zwierzętami i eutanazji zostały przeanalizowane i zatwierdzone przez Institutional Animal Care and Use Committee (IACUC) na University of Illinois at Chicago.
1. Modele zwierzęce
- Szczury Long-Evans typu dzikiego
- Pozyskać szczura Long Evans Hooded typu dzikiego w wieku 24 - 32 dni, dowolnej płci, hodowanego w standardnym 12-godzinnym rytmie dzień/noc.
- Przeprowadzić adaptację szczura do ciemności, umieszczając go w całkowicie zaciemnionym pomieszczeniu na 1 h przed rozpoczęciem eksperymentu.
- Szczury S334ter-3
- Skrzyżować transgeniczną albinotyczną homozygotyczną linię szczurów S334ter-3 (dowolnej płci), wykazującą ekspresję dwóch kopii zmutowanego genu rodopsyny, z pigmentowanym szczurem Long-Evans typu dzikiego w celu otrzymania pigmentowanych heterozygotycznych szczurów S334ter-3, u których występuje degeneracja fotoreceptorów o przebiegu podobnym do ludzkiego zapalenia sieciówki z przebiegającym zanikiem (retinitis pigmentosa)29,30.
- Hodować heterozygotyczne potomstwo w standardowym 12-godzinnym rytmie dzień/noc i wykorzystać szczury dowolnej płci w następujących grupach wiekowych, odpowiadających kolejnym etapom degeneracji fotoreceptorów: wczesny etap degeneracji: 14 - 20 dni; średni etap degeneracji: 21 - 27 dni; późny etap degeneracji: 28 - 35 dni; całkowita ślepota: >50 dni.
- Przeprowadzić adaptację szczura do ciemności, umieszczając go w całkowicie zaciemnionym pomieszczeniu na 1 h przed rozpoczęciem eksperymentu.
2. Przygotowanie roztworu pożywki Amesa i systemu perfuzji
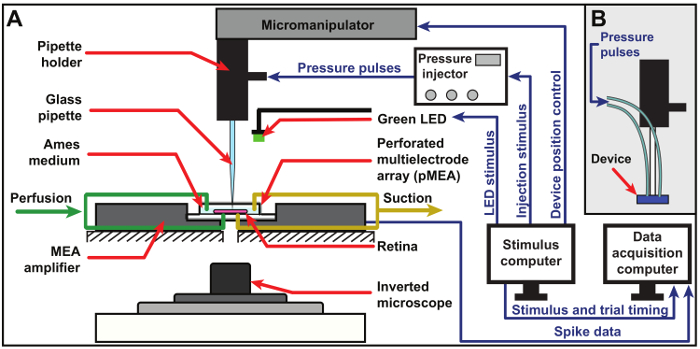
Rysunek 1: Schemat układu eksperymentalnego. Schemat układu eksperymentalnego do stymulacji chemicznej z wykorzystaniem szklanej mikropipety (A) oraz specjalnie zaprojektowanego wieloportowego urządzenia mikroprzepływowego (B). Siatkówka jest umieszczona na pMEA i stale perfundowana świeżym, natlenionym roztworem pożywki Ames od góry i od dołu przez perforacje pMEA. Sygnały odpowiedzi neuronalnej rejestrowane przez elektrody pMEA są przesyłane przez wzmacniacz MEA do komputera służącego do akwizycji danych. Stymulację wizualną i chemiczną realizuje się odpowiednio za pomocą zielonej diody LED oraz 8-kanałowego wtryskiwacza ciśnieniowego; oba bodźce są wyzwalane przez dedykowany komputer sterujący stymulacją, który służy również do pozycjonowania pipety za pomocą precyzyjnego 3-osiowego mikromanipulatora. Do obserwacji siatkówki podczas eksperymentu wykorzystuje się mikroskop odwrócony. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
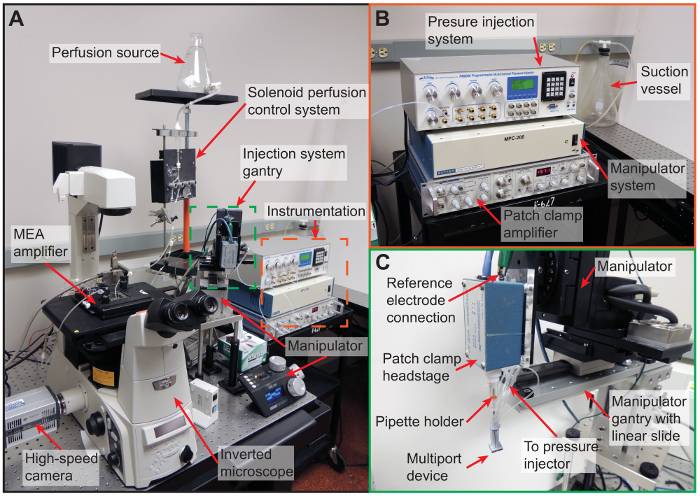
Rysunek 2: Układ doświadczalny. (A) Zdjęcie kompletnego układu doświadczalnego przedstawiające wzajemne położenie wszystkich komponentów. System wzmacniaczy MEA umieszczono na mikroskopie odwróconym, który służy do wizualnej inspekcji siatkówki oraz cyfrowego obrazowania interfejsu urządzenie-siatkówka za pomocą dołączonej kamery wysokiej prędkości podczas eksperymentu. Perfuzja górna i dolna są niezależnie sterowane za pomocą systemu perfuzji sterowanego elektrozaworami. Wtryskiwanie, kontrola położenia oraz pomiary impedancji są realizowane odpowiednio przy użyciu wtryskiwacza ciśnieniowego, mikromanipulatora i wzmacniacza patch clamp (pomarańczowa ramka; szczegółowo pokazane w B). Mikropipetę lub urządzenie wkłada się do głowicy wzmacniacza patch clamp w celu pomiaru impedancji i montuje na stelażu (oznaczonym zieloną ramką; szczegółowo pokazane w C), aby ułatwić pozycjonowanie za pomocą mikromanipulatora. (B) Zbliżenie instrumentów pomiarowych i sterujących użytych w eksperymencie: 8-kanałowego wtryskiwacza ciśnieniowego, systemu sterowania mikromanipulatorem, wzmacniacza patch clamp do pomiaru impedancji oraz naczynia ssącego do usuwania perfuzji. (C) Zbliżenie stelaża systemu wtryskiwania przedstawiające urządzenie wieloportowe połączone z uchwytem pipety, głowicą patch clamp i mikromanipulatorem. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
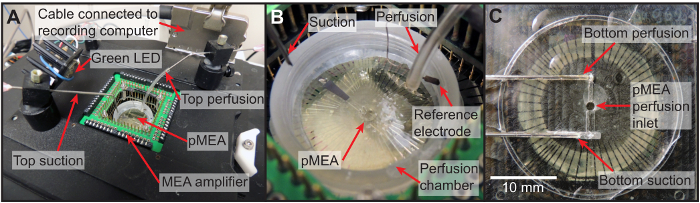
Rycina 3: Układ perfuzyjny. (A) Zdjęcie górnej części wzmacniacza MEA przedstawiające rozmieszczenie górnego wlotu perfuzyjnego i ssania oraz zielonej diody LED używanej do wizualnej stymulacji światłem. (B) Zbliżenie komory perfuzyjnej pMEA ilustrujące dokładne położenie górnego wlotu perfuzyjnego i ssania, pMEA oraz elektrody referencyjnej używanej do pomiaru impedancji. (C) Fotomikrograf dolnej płyty perfuzyjnej. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
UWAGA: Patrz Rysunek 1, Rysunek 2 oraz Rysunek 3
- Odmierz 900 mL wody dejonizowanej w temperaturze pokojowej (~21 °C) i przelej do pojemnika o pojemności 1 L.
- Napowietrz wodę 100% CO2 za pomocą mechanizmu bąbelkowania.
- Dodaj 8,8 g sproszkowanej pożywki Ames do wody w pojemniku 1 L.
- Przepłucz pojemnik po pożywce Ames kilkoma mL wody dejonizowanej, aby usunąć wszelkie pozostałości proszku, i dodaj do pojemnika 1 L.
- Dodaj 25,3 mL roztworu wodorowęglanu sodu (7,5% w/v31) do pojemnika 1 L.
- Dolej wody do uzyskania końcowej objętości roztworu 1 L.
- Kontynuuj napowietrzanie wody CO2 przez około 5 min.
- Zatrzymaj napowietrzanie CO2 i rozpocznij napowietrzanie roztworu medyczną mieszaniną gazów 95% O2 i 5% CO2 przez co najmniej 30 min lub do momentu ustabilizowania się pH na poziomie 7,4.
UWAGA: Na potrzeby niniejszego protokołu pożywka Ames jest utrzymywana w temperaturze pokojowej (~21 °C) przez cały czas trwania eksperymentu, aby zapobiec odgazowywaniu CO2 lub O2, co mogłoby doprowadzić do zablokowania linii perfuzyjnych pęcherzykami powietrza. - Oczyść dolną i górną rurkę perfuzyjną, napełniając je 70% etanolem, a następnie przemyj obie linie 3 razy wodą dejonizowaną. Napełnij dolną linię wodą dejonizowaną, a górną powietrzem. Zamknij obie linie za pomocą układu zaworów elektromagnetycznych.
- Podłącz główną rurkę perfuzyjną do złącza luer pojemnika z pożywką Ames o pojemności 1 L.
- Otwórz górny zawór perfuzyjny i pozostaw go otwartym do momentu, aż roztwór wypłynie z górnego wylotu perfuzyjnego. Zamknij górny zawór perfuzyjny.
- Otwórz dolny wylot perfuzyjny i pozostaw go otwartym, aż wszystkie pęcherzyki powietrza zostaną usunięte przez dolny wylot perfuzyjny.
- Podłącz pusty naczynie do ssania do głównej linii ssącej i włącz źródło ssania. Upewnij się, że zarówno górny, jak i dolny wlot ssący są otwarte i sprawne.
- Upewnij się, że wszystkie ekrany komputerów są zakryte czerwonymi filtrami, aby uniknąć niezamierzonej stymulacji wizualnej siatkówki.
3. Przygotowanie preparatu całej siatkówki
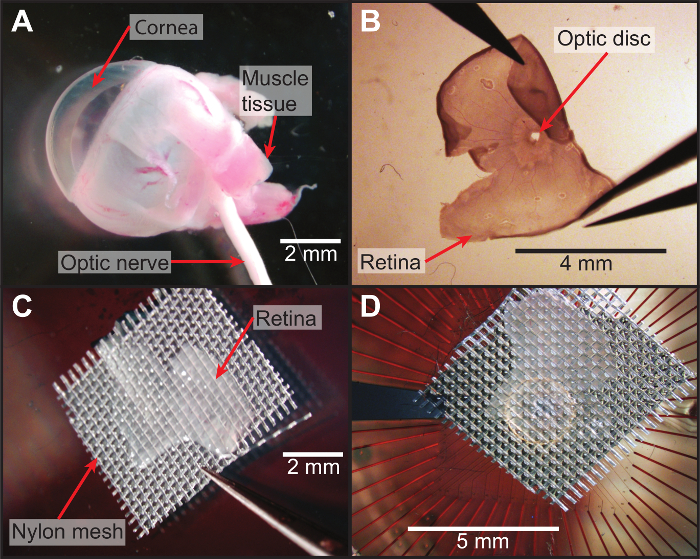
Rysunek 4: Disekcja i przygotowanie siatkówki do badania w całości (wholemount). (A) Zdjęcie nienaruszonej czary gałki ocznej pobranej od zwierzęcia z degeneracją fotoreceptorów. (B) Mikrofotografia siatkówki z nacięciami wzdłużnymi w celu jej spłaszczenia. (C) Po spłaszczeniu siatkówkę umieszcza się na siatce, tak aby strona z fotoreceptorami stykała się z siatką, a następnie spłaszcza na powietrzu (poza medium perfuzyjnym), aby upewnić się, że nie ma fałd ani zawiniętych krawędzi. (D) Siatkę wraz z siatkówką szybko przenosi się na pMEA, tak aby strona z komórkami zwojowymi stykała się z elektrodami, i natychmiast perfunduje natlenionym medium Ames. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
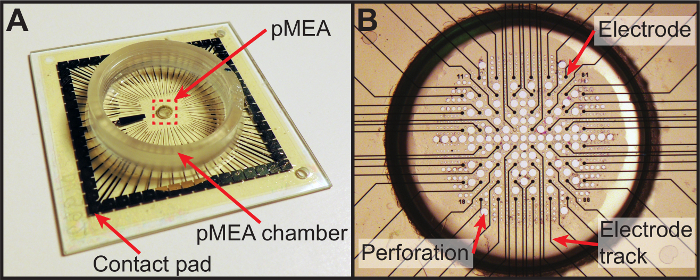
Rysunek 5: Perforowana matryca wieloelektrodowa. (A) Fotografia perforowanej matrycy wieloelektrodowej użytej w protokole. Siatkówkę umieszcza się na matrycy elektrod (oznaczonej czerwonym prostokątem, przedstawionym bardziej szczegółowo w części B) wewnątrz komory pMEA, aby umożliwić ciągłą perfuzję natlenionym medium Amesa. (B) Fotomikrografia samej matrycy elektrod ilustrująca rozmieszczenie perforacji pomiędzy elektrodami. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
UWAGA: Patrz Rysunek 4 i Rysunek 5
- Używając ręcznej latarki LED emitującej czerwone światło w celu zapewnienia przyciemnionego, czerwonego oświetlenia, uśmierć zwierzę poprzez uduszenie dwutlenkiem węgla, a następnie zwichnięcie szyi lub inną wybraną metodą, zgodnie z protokołami IACUC.
- Wykonaj enukleację obu oczu za pomocą pęsety jubilerskiej nr 5 i umieść wyjęte gałki oczne w szalce Petriego o średnicy 60 mm zawierającej około 3 - 4 mL świeżego, natlenionego roztworu pożywki Ames.
- Obserwując oko przez stereomikroskop sekcyjny z oświetleniem górnym i dolnym zakrytym czerwonym filtrem, wykonaj niewielkie nacięcie w rogówce za pomocą skalpela lub ostrych nożyczek.
- Przecnij tkankę od tego małego nacięcia do brzegu rogówki, a następnie przedłuż cięcie wzdłuż całego obwodu brzegu rogówki. Usuń oddzieloną rogówkę wraz z soczewką, przezroczystym ciałkiem wodnistym i szklistym.
- Delikatnie trzymając gałkę oczną jedną pęsetą, ostrożnie wykonaj dwa niewielkie nacięcia po przeciwnych stronach gałki. Następnie za pomocą dwóch pęset delikatnie rozsuń tkankę w miejscach nacięć i oddziel siatkówkę od twardówki. Powoli unieś całą siatkówkę z twardówki i gałki ocznej. Przetnij nerw wzrokowy, jeśli nadal jest przyczepiony.
- Za pomocą nożyczek wykonaj cięcia wzdłużne w siatkówce, aby uzyskać sekcje w postaci połówek lub ćwiartek, a następnie delikatnie rozłóż jedną sekcję siatkówki na siatce nylonowej (średnica nici 100 µm, oczka 350 µm) tak, aby komórki zwojowe (wklęsła strona siatkówki) były skierowane od strony przeciwnej do siatki.
- Umieść siatkę wraz z siatkówką na perforowanej macierzy wieloelektrodowej (pMEA) w taki sposób, aby komórki zwojowe stykały się z powierzchnią pMEA. Następnie delikatnie połóż obciążoną kratkę do plastrów na wierzchu siatki, aby unieruchomić siatkówkę.
4. Konfiguracja MEA i systemu akwizycji danych
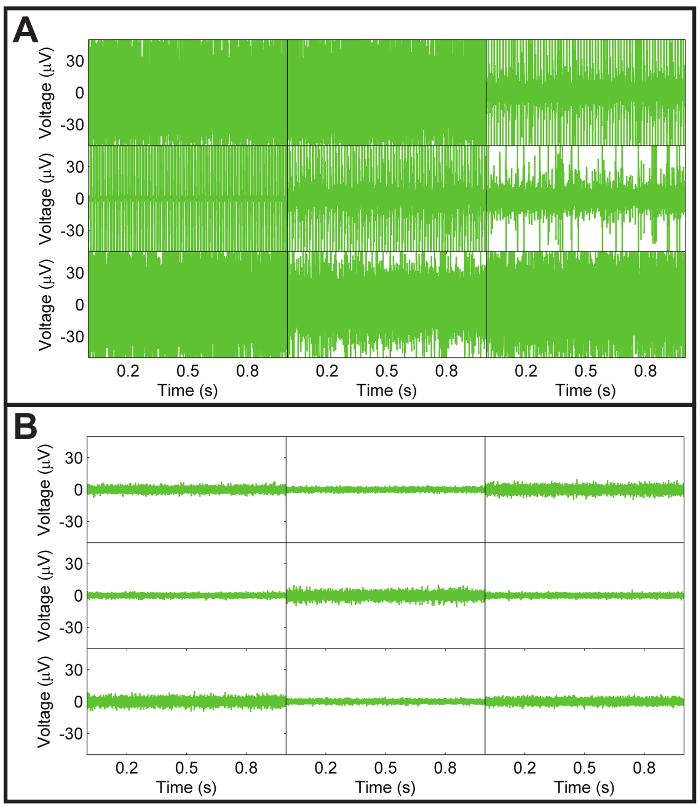
Rysunek 6: Poziomy szumów w pMEA. (A) Reprezentatywny zapis z podzbioru elektrod pMEA wykazujących wysoki, stały szum. Szum ten wynika zazwyczaj z braku odpowiedniego kontaktu między polami kontaktowymi pMEA a pinami wzmacniacza MEA w wyniku normalnego zużycia cienkiej, perforowanej warstwy poliimidu na pMEA, szczególnie w obrębie pól kontaktowych. Innym możliwym źródłem szumów jest zazwyczaj wyciek roztworu na pola kontaktowe wzmacniacza pMEA. Stały szum spowodowany słabym kontaktem pinów i/lub wyciekiem roztworu na pola kontaktowe można zazwyczaj skorygować odpowiednio poprzez przesunięcie pozycji pMEA we wzmacniaczu w celu uzyskania lepszego kontaktu oraz poprzez oczyszczenie i osuszenie pól kontaktowych. Jeśli szumów nie można wyeliminować poprzez czyszczenie lub zmianę pozycji pMEA, może być konieczna całkowita wymiana pMEA. (B) Reprezentatywny zapis poziomów szumów z podzbioru elektrod z czystego pMEA z dobrym kontaktem między pMEA a wzmacniaczem. Zazwyczaj średni poziom szumów mieści się w granicach ±16 µV. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
UWAGA: Patrz Rysunek 6
- Przy słabym czerwonym oświetleniu umieść pMEA w wzmacniaczu MEA i zamknij zatrzaski wzmacniacza.
- Jeśli na pierścieniu komory pMEA nie ma jeszcze znaczników referencyjnych, wytraw dwa znaki w kształcie litery „X” w odstępach około 5 mm w obszarze łatwo widocznym z góry za pomocą mikroskopu zamontowanego na wysięgniku.
- Umieść górny wylot perfuzyjny wewnątrz komory pMEA i otwórz górny zawór perfuzyjny, aby uzyskać szybkość perfuzji około 3 mL na minutę. Umieść górny wlot ssawki na pożądanym poziomie perfuzatu (~5 mm głębokości) i upewnij się, że działa poprawnie.
- Otwórz oprogramowanie do akwizycji danych na komputerze do akwizycji danych i kliknij przycisk „play”, aby rozpocząć odbiór danych. Upewnij się, że wszystkie kanały pMEA są wolne od szumów i rejestrują sygnały neuronalne. W przeciwnym razie zmień położenie pMEA we wzmacniaczu, aby uzyskać lepszy kontakt między pinami wzmacniacza a stykami pMEA (patrz Rysunek 5).
- Upewnij się, że dolna linia perfuzyjna jest wolna od pęcherzyków powietrza, a jeśli jest wolna od pęcherzyków, otwórz dolny zawór perfuzyjny, aby zapewnić dopływ tlenu i składników odżywczych do dolnej części siatkówki.
- Włącz szybką kamerę przymocowaną do odwróconego mikroskopu optycznego (powiększenie 10X z N.A. 0,45) i otwórz oprogramowanie do obrazowania. Upewnij się, że iluminator mikroskopu odwróconego jest zakryty czerwoną folią filtrującą, aby emitował tylko czerwone światło, a następnie ustaw iluminator na niski poziom natężenia światła, aby uniknąć fotoblaknięcia siatkówki.
- Obserwując na monitorze cyfrowy obraz pola widzenia mikroskopu odwróconego w czasie rzeczywistym, sprawdź dolną powierzchnię pMEA, aby potwierdzić przepływ roztworu przez dolną płytkę perfuzyjną.
- Po potwierdzeniu przepływu dolnej perfuzji, powoli zwiększaj ssanie dolne, ręcznie obracając pokrętło ciśnienia próżni w zestawie do odpadów próżniowych, obserwując siatkówkę przez mikroskop odwrócony. Przestań zwiększać ssanie, gdy na siatkówkę zacznie działać zauważalna siła ssąca. Należy uważać, aby siła ssania nie była zbyt duża ani zbyt mała.
- Po upewnieniu się, że ssanie dolne utrzymuje siatkówkę w miejscu, zdejmij z niej obciążoną siatkę do plastrów za pomocą pęsety i delikatnie usuń nylonową siatkę, ostrożnie odklejając jeden róg od siatkówki. Powinna ona oddzielić się łatwo, pozostawiając siatkówkę mocno przymocowaną do dna pMEA z odsłoniętą powierzchnią podsiatkówkową na górze. Kontynuuj perfuzję przez około 30 min, aby umożliwić stabilizację siatkówki po urazie chirurgicznym.
5. Przygotowanie do stymulacji glutaminianem
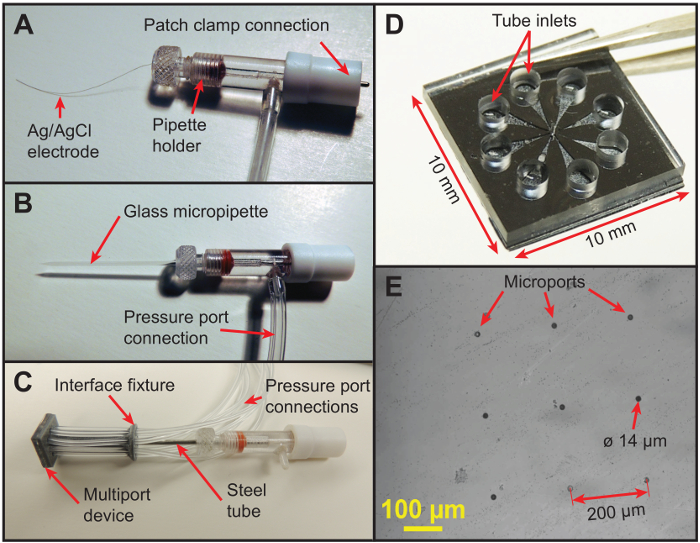
Rysunek 7: Szklana mikropipeta i wieloportowe urządzenie mikrofluidyczne. (A) Uchwyt do pipety przed włożeniem mikropipety lub urządzenia. Elektroda srebro/chlorek srebra (średnica 50 µm) jest sprzężona elektrycznie z adapterem na końcu w celu połączenia z przedwzmacniaczem głowicowym patch-clamp. (B) Fotografia szklanej mikropipety połączonej z uchwytem do pipety, pokazująca położenie portu ciśnienia używanego do inicjowania iniekcji pneumatycznych. (C) Niestandardowe wieloportowe urządzenie mikrofluidyczne (1 cm 1 cm 0,134 cm) przymocowane do niestandardowego uchwytu wydrukowanego w technologii 3D i połączone z uchwytem do pipety za pomocą rurki ze stali nierdzewnej. Urządzenie, wykonane z dwóch warstw, posiada osiem mikroportów (średnica 14 µm) w warstwie dolnej (grubość 340 µm) oraz osiem rezerwuarów na chipie (średnica 1,6 mm) do przechowywania glutaminianu w warstwie górnej (grubość 1 mm). Każdy z ośmiu mikroportów w dolnej warstwie urządzenia jest niezależnie połączony z rezerwuarem na chipie w warstwie górnej za pomocą mikrokanału w płaszczyźnie, a każdy rezerwuar na chipie jest z kolei połączony z portem ciśnienia 8-kanałowego iniektora ciśnieniowego za pomocą elastycznej rurki, co umożliwia niezależną aktywację mikroportów w celu przeprowadzania wzorcowych iniekcji wielomiejscowych. (D) Zbliżenie urządzenia wieloportowego trzymanego pęsetą przed przymocowaniem uchwytu interfejsu rurek, pokazujące układ ośmiu niezależnie adresowalnych rezerwuarów na chipie i wlotów rurek. (E) Fotomikrografia dolnej powierzchni urządzenia pokazująca osiem mikroportów o średnicy 14 µm ułożonych w konfiguracji 3 x 3 z odstępami 200 µm, aby dopasować je do elektrod pMEA. Osiem zewnętrznych mikroportów jest wykorzystywanych do iniekcji wielomiejscowych, natomiast port centralny służył wyłącznie do wyrównania podczas produkcji urządzenia. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
UWAGA: Patrz Rysunek 7.
- Przygotować roztwór glutaminianu, mieszając roztwór zapasowy glutaminianu z natlenionym roztworem pożywki Ames, aby uzyskać próbkę o objętości 0,5 mL o stężeniu roboczym 1 mM glutaminianu.
- Ostrożnie wprowadzić dociągniętą mikropipetę o średnicy 10 µm lub pręt ze stali nierdzewnej połączony z wieloportowym urządzeniem mikroprzepływowym do standardowego uchwytu pipety zawierającego elektrodę drutową ze srebra/chlorku srebra o średnicy 50 µm.
UWAGA: Jeśli detekcja impedancji nie jest dostępna, można pominąć elektrodę drutową ze srebra/chlorku srebra. - Połączyć uchwyt pipety z przedwzmacniaczem patch-clamp, a złącze Luer portu ciśnieniowego uchwytu pipety połączyć z kanałem 1 systemu wtrysku ciśnieniowego (w przypadku stosowania szklanej mikropipety) lub połączyć złącza Luer portów ciśnieniowych każdego z 8 portów wtryskowych z kanałami 1–8 systemu wtrysku ciśnieniowego (w przypadku stosowania urządzenia wieloportowego).
- Ręcznie włączyć system wtrysku ciśnieniowego i uruchomić kanał 1 (lub kanały 1–8, w zależności od potrzeb). Upewnić się, że system jest odpowietrzony do atmosfery, i ustawić ciśnienie wtrysku na 0,1 psi.
- Włączyć mikromanipulator i skalibrować go, naciskając przycisk „Calibrate” na sterowniku manipulatora. Ustawić mikromanipulator tak, aby końcówka mikropipety (lub dół urządzenia, w zależności od potrzeb) znajdowała się około 30 mm nad wzmacniaczem MEA.
- Napełnić małą szalkę Petriego roztworem glutaminianu (1 mM glutaminianu w standardowej pożywce Ames) i umieścić ją pod mikromanipulatorem. Obniżyć końcówkę mikropipety (lub urządzenie) do roztworu i napełnić ją, naciskając przycisk „Fill” w systemie wtrysku ciśnieniowego (ciśnienie ssania -13 in H2O), aż w szklanej mikropipecie lub rurkach urządzenia wieloportowego będzie widoczne około 20 mm roztworu.
- W przypadku stosowania urządzenia wieloportowego wyłączyć kanał 1 wtryskiwacza ciśnieniowego i powtórzyć protokół dla kanałów 2–8. Unieść końcówkę mikropipety lub urządzenie z roztworu, usunąć szalkę Petriego i ustawić mikromanipulator nad komorą pMEA.
- Za pomocą stereomikroskopu zamontowanego na statywie ustawić końcówkę mikropipety lub narożniki urządzenia w osi znaków referencyjnych wytrawionych w pierścieniu komory pMEA. Zapisać pozycje manipulatora w oprogramowaniu sterującym za pomocą przycisków „Store Reference A” i „Store Reference B” (lub po prostu ręcznie zanotować współrzędne manipulatora), aby zmapować układ współrzędnych manipulatora z elektrodami pMEA.
- W oprogramowaniu sterującym manipulatorem wybrać docelową elektrodę pMEA o silnej aktywności spontanicznej i kliknąć przycisk „Move to Channel”, aby wyrównać szklaną mikropipetę z docelową elektrodą. W przypadku stosowania urządzenia wieloportowego wyrównać mikroporty urządzenia z docelowymi elektrodami pMEA o silnej aktywności spontanicznej, stosując tę samą procedurę.
6. Interfejs z siatkówką
- Jeśli pomiar impedancji jest dostępny, należy włączyć wzmacniacz patch-clamp i uruchomić oprogramowanie do wizualizacji impedancji, klikając przycisk „Start”, aby zwizualizować impedancję elektrody srebro/chlorek srebra znajdującej się w uchwycie pipety. Obserwując sygnały impedancji w czasie rzeczywistym, należy powoli opuszczać mikropipetę lub urządzenie, aż do momentu kontaktu z powierzchnią siatkówki, co zostanie zasygnalizowane gwałtownym wzrostem sygnału impedancji (patrz Rycina 8). Należy zapisać lub odnotować pozycję powierzchni siatkówki.
- Jeśli pomiar impedancji jest niedostępny, kontakt z powierzchnią siatkówki należy wykryć poprzez obserwację wizualną, co będzie jednak mniej precyzyjne. Opuszczaj pipetę lub urządzenie, aż do widocznego kontaktu z górną powierzchnią roztworu medium Ames w komorze MEA.
- Następnie, obserwując górną część siatkówki za pomocą mikroskopu odwróconego, należy powoli opuszczać pipetę lub urządzenie, aż do widocznego odkształcenia górnej powierzchni siatkówki, co wskazuje na nawiązanie kontaktu z powierzchnią siatkówki. Należy zapisać lub odnotować pozycję powierzchni siatkówki.
- W przypadku stymulacji podpowierzchniowej należy opuścić pipetę o kolejne 40 µm (dla siatkówek S334ter-3) lub 70 µm (dla siatkówek typu dzikiego).
- Należy wykonać kilka krótkotrwałych (10 - 30 ms) iniekcji przy użyciu systemu iniekcji ciśnieniowej (0,1 psi), aby ustalić, czy komórki w pobliżu końcówki mikropipety lub mikroportów urządzenia reagują na stymulację glutaminianem, obserwując sygnały neuronalne za pomocą oprogramowania do akwizycji danych.
UWAGA: Skuteczne iniekcje wywołają wyraźnie widoczny wzrost częstotliwości impulsów (burst) lub inhibicję impulsów (patrz Rycina 9). Jeśli nie zaobserwowano odpowiedzi, należy zmienić położenie mikropipety lub urządzenia na inną elektrodę.
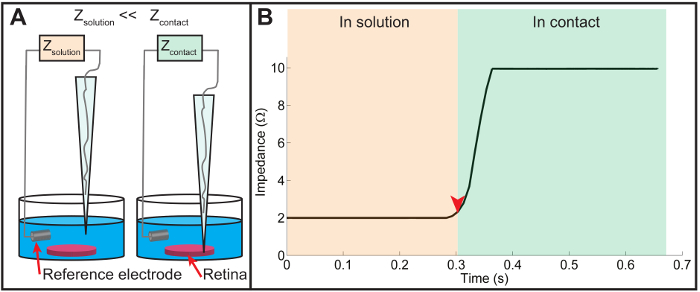
Rysunek 8: Pomiar impedancji. (A) Schemat techniki pomiaru impedancji. Przy użyciu wzmacniacza patch-clamp impedancja mikropipety jest stale monitorowana podczas jej powolnego opuszczania w kierunku powierzchni siatkówki. Gdy mikropipeta znajduje się nad siatkówką, stosunkowo wysokie przewodnictwo jonowe pożywki Ames skutkuje niskim odczytem impedancji. W momencie kontaktu mikropipety z powierzchnią siatkówki przewodnictwo jonowe przez drucik srebrny/chlorek srebra ulega zmniejszeniu, co powoduje gwałtowny wzrost mierzonej impedancji. (B) Wykres przedstawiający zmianę impedancji zarejestrowaną tuż przed i po kontakcie końcówki pipety z powierzchnią siatkówki. Mierzona impedancja jest stosunkowo niska, gdy końcówka mikropipety znajduje się w roztworze bezpośrednio przed kontaktem (oznaczone pomarańczowym obszarem po lewej stronie). Po nawiązaniu kontaktu (oznaczone czerwoną grotą strzałki i zielonym obszarem po prawej stronie) impedancja gwałtownie rośnie z powodu zmniejszonego przewodnictwa jonowego w momencie kontaktu z tkanką siatkówki. W praktyce powierzchnię siatkówki rejestruje się jako wysokość odpowiadającą początkowi stromego wzrostu mierzonej impedancji (miejsce wskazane czerwoną grotą strzałki). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
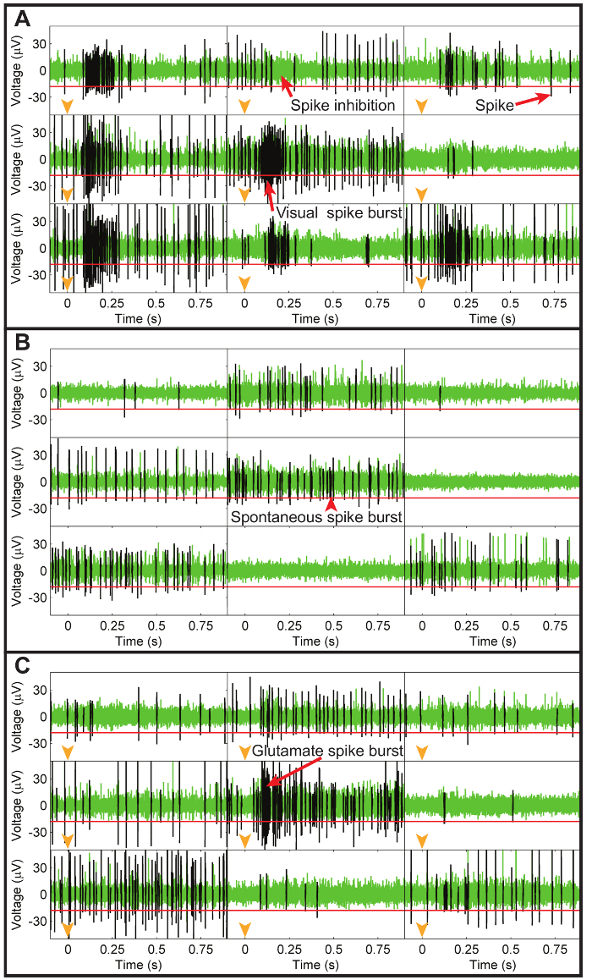
Rysunek 9: Rejestracje elektrodowe aktywności neuronalnej podczas rejestracji wzrokowej, spontanicznej oraz po wstrzyknięciu glutaminianu. (A) Reprezentatywne rejestracje z dziewięciu elektrod pMEA pokazujące dane elektrodowe przefiltrowane filtrem górnoprzepustowym podczas stymulacji światłem wzrokowym za pomocą zielonej diody LED, gdzie każdy prostokąt przedstawia dane neuronalne z pojedynczej elektrody. Każda rejestracja elektrodowa ilustruje dane zebrane w pierwszej sekundzie po włączeniu zielonej diody LED (czas zaznaczony pomarańczowymi grotami strzałek na każdym wykresie) ze wspólną skalą napięcia pokazaną na lewych osiach y. Impulsy (spikes) zidentyfikowano za pomocą napięcia progowego -18 µV (pozioma czerwona linia na każdym wykresie elektrody) i są one reprezentowane przez czarne ślady na zielonych danych elektrodowych. Stymulacja wzrokowa spowodowała wystąpienie serii impulsów (pobudzenie) we wszystkich elektrodach z wyjątkiem górnej środkowej, która wykazała odpowiedź hamującą na światło. (B) Analogiczny wykres dla tych samych elektrod pokazujący spontaniczną aktywność neuronalną bez stymulacji wzrokowej lub iniekcyjnej. Mimo występowania mniejszych serii impulsów, wzorce impulsacji były bardzo odmienne od tych zarejestrowanych w odpowiedzi na stymulację wzrokową. (C) Reprezentatywne rejestracje z tego samego podzbioru elektrod wykonane bezpośrednio po wstrzyknięciu glutaminianu do elektrody centralnej (czas zaznaczony pomarańczowymi grotami strzałek na każdym wykresie). Wstrzyknięty glutaminian wywołał serię impulsów w elektrodzie centralnej, która była bardzo podobna do serii impulsów wywołanych wzrokowo. Wszystkie pozostałe elektrody nie zostały poddane wpływowi wstrzykniętego glutaminianu, co demonstruje wysoką rozdzielczość przestrzenną techniki stymulacji chemicznej. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
7. Uruchomienie rejestracji siatkówki i programu stymulacji
- Skieruj zieloną diodę LED w stronę górnej powierzchni siatkówki. Rozpocznij rejestrację za pomocą oprogramowania do akwizycji danych na dedykowanym komputerze rejestrującym, wpisując nazwę pliku i klikając przycisk „record”.
- Po rozpoczęciu rejestracji otwórz program sterowania bodźcami i wczytaj domyślny plik bodźców, klikając przycisk „Read Stimulus File”. Następnie kliknij przycisk „Run Stimulus File”, aby uruchomić domyślny plik bodźców zawierający bodźce i protokół akwizycji danych opisane w poniższej uwadze.
UWAGA: (i) 30 prób pełnopolowego błysku (natężenie 5 lm/m2) trwających 2 s ON i 2 s OFF z użyciem zielonej diody LED. (ii) 120 s rejestracji danych bez użycia zielonej diody LED w celu zarejestrowania spontanicznej aktywności siatkówki w podobnej skali czasowej. (iii) 1 lub więcej serii iniekcji glutaminianu, składających się z 30 prób iniekcji glutaminianu pod ciśnieniem 0,1 psi, z czasem iniekcji 10 - 30 ms (około 100 - 300 pL na iniekcję) i 3 s odstępami między impulsami. W przypadku iniekcji wielomiejscowych należy wybrać 2 lub więcej portów do jednoczesnej iniekcji. (iv) 90 s spontanicznej aktywności. - Po zakończeniu pliku bodźców zatrzymaj rejestrację (naciskając przycisk „Stop”), aby zapisać plik do późniejszej segregacji impulsów (spike sorting) i analizy danych (przykład przedstawiono na Rysunku 10).
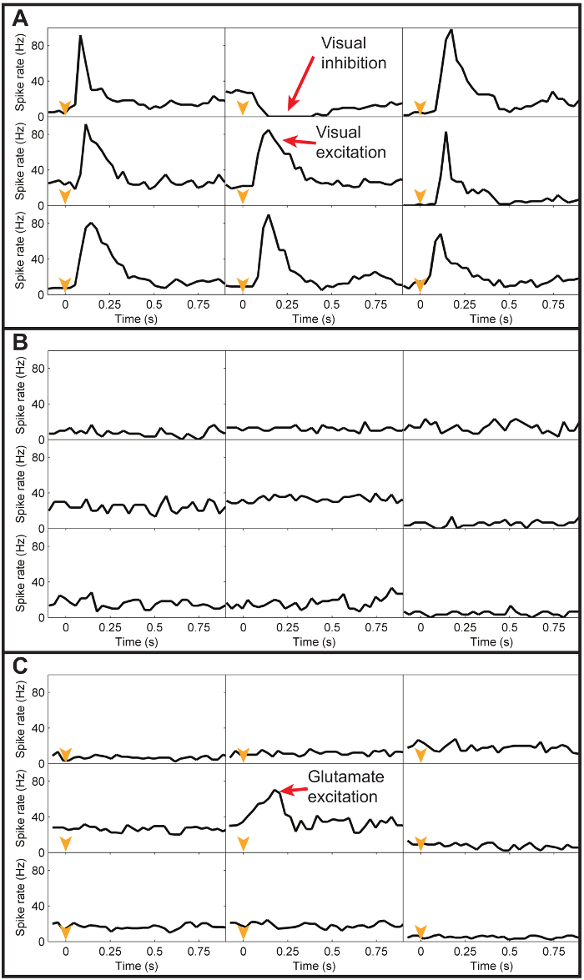
Rycina 10: Histogramy perystymulacyjne odpowiedzi wzrokowych, spontanicznych i glutaminianowych. (A) Reprezentatywne histogramy perystymulacyjne (szerokość kosza 30 ms) danych o impulsach z podzbioru elektrod z Ryciny 9A, uśrednione z 20 prób stymulacji światłem wzrokowym. Do wszystkich elektrod zastosowano wspólną skalę częstości impulsów, przedstawioną na lewych osiach y. Czarna linia na wykresie każdej elektrody reprezentuje średnią częstość impulsów dla wszystkich impulsów zarejestrowanych w ciągu pierwszej sekundy po włączeniu zielonej diody LED. Jak widać, stymulacja wzrokowa wywołała przejściową pobudzającą odpowiedź w postaci zwiększenia częstości impulsów we wszystkich elektrodach z wyjątkiem górnej środkowej elektrody, która wykazała przejściową odpowiedź hamującą na światło. (B) Średnie odpowiedzi w postaci spontanicznej częstości impulsów zarejestrowane w tych samych elektrodach bez żadnej stymulacji wzrokowej lub chemicznej. Bez stymulacji częstości impulsów dla każdej elektrody są stosunkowo stałe. (C) Średnie odpowiedzi w postaci częstości impulsów zarejestrowane w tych samych elektrodach w odpowiedzi na wstrzyknięcie glutaminianu w miejscu nad środkową elektrodą. Jedyną widoczną odpowiedzią przejściową jest odpowiedź pobudzająca w elektrodzie znajdującej się bezpośrednio pod miejscem wstrzyknięcia. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Ten protokół może być używany do chemicznej stymulacji zarówno normalnych, dzikich siatkówk, jak i zdegenerowanych przez fotoreceptory, pomimo znacznej przebudowy komórkowej spowodowanej utratą fotoreceptorów. Przed rozpoczęciem eksperymentów z siatkówkami zdegenerowanymi przez fotoreceptory lub dzikimi, sprzęt do rejestracji i stymulacji (Rysunek 1 i Rysunek 2) muszą być przygotowane, a pMEA (Rysunek 5...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Przedstawiona tutaj metoda demonstruje unikalny paradygmat stymulacji neuronalnej, w którym neurony siatkówki są stymulowane chemicznie poprzez wstrzykiwanie natywnych neuroprzekaźników chemicznych do podpowierzchni siatkówki in vitro. Ta technika stymulacji chemicznej oferuje kilka korzyści w porównaniu z konwencjonalną techniką stymulacji elektrycznej, w tym selektywność i wysoką swoistość ogniskową docelowych neuronów. Powyższy protokół szczegółowo opisuje, w jaki sposób pneumatyczne wstrzyknięcia neuroprzeka...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Praca przedstawiona w artykule była wspierana przez National Science Foundation, grant programu Emerging Frontiers in Research and Innovation (NSF-EFRI) numer 0938072. Wyłączną odpowiedzialność za treść tego artykułu ponoszą autorzy i niekoniecznie reprezentują one oficjalne poglądy NSF. Autorzy pragną również podziękować dr Samsoonowi Inayatowi za jego pracę polegającą na zaprojektowaniu i przetestowaniu wstępnej eksperymentalnej konfiguracji do stymulacji chemicznej oraz panu Ashwinowi Raghunathanowi za jego pracę nad zaprojektowaniem, wyprodukowaniem i oceną wieloportowego urządzenia mikroprzepływowego użytego w tym badaniu.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Układ mikroelektrod, układ perforowany | Multi Channel Systems, GmbH | 60pMEA200/30iR-Ti-pr | http://www.multichannelsystems.com/products/microelectrode-arrays/60pmea20030ir-ti |
| Wzmacniacz | MEA Multi Channel Systems, GmbH | MEA1060-Inv | http://www.multichannelsystems.com/products/mea1060-inv |
| Dolna płyta perfuzyjna do pMEA | Multi Channel Systems, GmbH | MEA1060-Inv-(BC)-PGP | |
| http://www.multichannelsystems.com/products/mea1060-inv-bc-pgp 3-osiowy zmotoryzowany mikromanipulator | Sutter Instruments, Novato, CA | MP-285 | https://www.sutter.com/MICROMANIPULATION/mp285.html |
| System sterowania mikromanipulatorem | Sutter Instruments, Novato, CA | MPC-200 | https://www.sutter.com/MICROMANIPULATION/mpc200.html |
| Styl bramowy Statyw mikromanipulatora z prowadnicą liniową | Sutter Instruments, Novato, CA | MT-75/LS | |
| https://www.sutter.com/STAGES/mt75.html 8-kanałowy programowalny wielokanałowy wtryskiwacz ciśnienia | OEM: MicroData Instrument, S. Plainfield, NJ Dostawca: Harvard Apparatus UK | PM-8000 lub PM-8 | OEM: http://www.microdatamdi.com/pm8000.htm Producent: https://www.harvardapparatus.co.uk/webapp/wcs/stores/servlet/product_11555_10001_39808_-1 _HAUK_ProductDetail |
| Axopatch 200A Integrujący wzmacniacz zacisków krosowych | Urządzenia molekularne, Sunnyvale, CA | Axopatch 200A | Axopatch 200A został zastąpiony nowszym modelem Axopatch 200B: https://www.moleculardevices.com/systems/axon-conventional-patch-clamp/axopatch-200b-amplifier |
| Zacisk krosowy headstage | Molecular Devices, Sunnyvale, CA | CV 201A | http://mdc.custhelp.com/app/answers/detail/a_id/16554/~/axopatch-200a%3A-selection-cv-headstage |
| Zestaw do usuwania próżni | ALA Scientific Instruments, Farmingdale, NY | VMK | http://alascience.com/product/vacuum-waste-kit/ |
| Uchwyt na pipety | Warner Instruments, Hamden, CT | QSW-A10P | https://www.warneronline.com/product_info.cfm?id=915 |
| Wstępnie wyciągnięte 10 μ Średnica końcówki m Mikropipety | szklane World Precision Instruments, Sarasota, FL | TIP10TW1 | https://www.wpiinc.com/products/laboratory-supplies/make-selection-pre-pulled-glass-pipettes-plain/ |
| Zoom stereomikroskop | Nikon, Tokio, Japonia | SMZ-745T | https://www.nikoninstruments.com/Products/Stereomicroscopes-and-Macroscopes/Stereomicroscopes/SMZ745 |
| Statyw do mikroskopu z podwójną kulką liniową ramię łożyska | Old School Industries, Inc., Dacono, CO | OS1010H-16BB | http://www.osi-incorp.com/productdisplay/dual-linear-ball-bearing-arm |
| Mikroskop stereoskopowy z hybrydowym stojakiem LED C-LEDS Nikon | , Tokio, Japonia | SMZ-445 | https://www.nikoninstruments.com/Products/Stereomicroscopes-and-Macroscopes/Stereomicroscopes/SMZ445 |
| Odwrócony system mikroskopowy | Nikon, Tokio, Japonia | Zaćmienie Ti-E | https://www.nikoninstruments.com/Products/Inverted-Microscopes/Eclipse-Ti-E |
| Ames medium | Sigma-Aldrich, St. Louis, MO | A1420 | http://www.sigmaaldrich.com/catalog/product/sigma/a1420 |
| Kwas L-glutaminowy (glutaminian) | Sigma-Aldrich, St. Louis, MO | G5667 | http://www.sigmaaldrich.com/catalog/product/mm/100291 |
| Wodorowęglan sodu | Sigma-Aldrich, St. Louis, MO | S8761 | http://www.sigmaaldrich.com/catalog/product/sigma/s8761 |
| Szalka Petriego 60 mm (wysokość 10 mm) | Fischer Scientific, Waltham, MA | FB0875713A | 60 mm przezroczysta szalka Petriego; https://www.fishersci.com/shop/products/fisherbrand-petri-dishes-clear-lid-12/fb0875713a |
| Jubilerzy #5 Kleszcze | World Precision Instruments, Sarasota, FL | 555227F | https://www.wpiinc.com/products/laboratory-supplies/555227f-jewelers-5-forceps-11cm-straight-titanium/ |
| Standard Scalpel Blad #24 | World Precision Instruments, Sarasota, FL | 500247 | https://www.wpiinc.com/products/laboratory-supplies/500247-standard-scalpel-blade-24/ |
| Rękojeść skalpela #4 | World Precision Instruments, Sarasota, FL | 500237 | https://www.wpiinc.com/products/laboratory-supplies/500237-scalpel-handle-4-14cm/ |
| Vannas Tubingen Dissectsors | World Precision Instruments, Sarasota, FL | 503378 https://www.wpiinc.com/products/laboratory-supplies/503378-vannas-tubingen-scissors-8cm-straight-german-steel/ | |
| zestaw siatek nylonowych | Warner Instruments, Hamden, CT | NYL/MESH | https://www.warneronline.com/product_info.cfm?id=1173 |
| Siatka do plastrów harfy | ALA Scientific Instruments, Farmingdale, Nowy Jork | HSG-5AD | http://alascience.com/product/standard-harp-slice-grids/ |
| Ag/AgCl granulat elektrody referencyjnej | Multi Channel Systems, GmbH | P1060 | http://www.multichannelsystems.com/products/p1060 |
| 4-kanałowy system perfuzji grawitacyjnej sterowany zaworem | ALA Instrumenty naukowe, Farmingdale, NY | VC3-4xG | Kamera |
| mikroskopowa http://alascience.com/product/4-channel-valve-controlled-gravity-perfusion-system/ Zyla 5.5 sCMOS | Andor Technology, Belfast, Wielka Brytania | Zyla 5.5 sCMOS | http://www.andor.com/scientific-cameras/neo-and-zyla-scmos-cameras/zyla-55-scmos |
| Srebrny drut (50 μ średnica m) | Fischer Scientific, Waltham, MA | AA44461G5 | https://www.fishersci.com/shop/products/silver-wire-0-05mm-0-002-in-dia-annealed-99-99-metals-basis-3/aa44461g5 |
| rurki z mikrootworami Tygon (średnica 1,6 mm) | Cole Parmer, Vernon Hills, IL | EW-06419-01 | https://www.coleparmer.com/i/tygon-microbore-tubing-0-020-x-0-060-od-100-ft-roll/0641901 |
| Uchylny uchwyt narzędziowy ze stalową kaniulą | ALA Scientific Instruments, Farmingdale, Nowy Jork | TILTPORT | Po jednym z nich wykorzystano do górnej perfuzji i odsysania; http://alascience.com/product/tilting-tool-holder-with-steel-cannula/ |
| Roscolux #26 Jasnoczerwony arkusz filtracyjny | Rosco Laboratories Inc., 52 Harbor View, Stamford, CT | R2611 | Producent: http://us.rosco.com/en/products/catalog/roscolux Producent: https://www.bhphotovideo.com/c/product/43957-REG/Rosco_RS2611_26_Filter_Light.html |
| Smith & Wesson Galaxy Czerwona latarka | Smith & Wesson, 2100 Roosevelt Avenue, Springfield, MA | 4588 | Producent: https://www.smith-wesson.com/ Producent: http://www.mypilotstore.com/mypilotstore/sep/4588 |
| MC_Rack Software | Multi Channel Systems, GmbH | MC_Rack | http://www.multichannelsystems.com/software/mc-rack |
| Labview Software | National Instruments, Austin, TX | LabVIEW | http://www.ni.com/labview/ |
| NIS-Elements: Oprogramowanie do badań podstawowych | Nikon, Tokio, Japonia | NIS-Elements BR | https://www.nikoninstruments.com/Products/Software/NIS-Elements-Basic-Research |
Bibliografia
- Pascolini, D., Mariotti, S. P. Global estimates of visual impairment: 2010. Br J Ophthalmol. , (2011).
- Fritsche, L. G., Fariss, R. N., Stambolian, D., Abecasis, G. R., Curcio, C. A., Swaroop, A. Age-Related Macular Degeneration: Genetics and Biology Coming Together. Annu Rev Genomics Hum Genet. 15, 151-171 (2014).
- Marc, R. E., et al. Neural reprogramming in retinal degeneration. Invest Ophthalmol Vis Sci. 48, 3364-3371 (2007).
- Jones, B. W., Kondo, M., Terasaki, H., Lin, Y., McCall, M., Marc, R. E. Retinal remodeling. Jpn J Ophthalmol. 56, 289-306 (2012).
- Soto, F., Kerschensteiner, D. Synaptic remodeling of neuronal circuits in early retinal degeneration. Front Cell Neurosci. 9, (2015).
- Trenholm, S., Awatramani, G. B. Origins of spontaneous activity in the degenerating retina. Front Cell Neurosci. 9, (2015).
- Euler, T., Schubert, T. Multiple Independent Oscillatory Networks in the Degenerating Retina. Front Cell Neurosci. 9, (2015).
- Boye, S. E., Boye, S. L., Lewin, A. S., Hauswirth, W. W. A Comprehensive Review of Retinal Gene Therapy. Mol Ther. 21, 509-519 (2013).
- Schwartz, S. D., et al. Human embryonic stem cell-derived retinal pigment epithelium in patients with age-related macular degeneration and Stargardt's macular dystrophy: follow-up of two open-label phase 1/2 studies. The Lancet. 385, 509-516 (2015).
- Reh, T. A. Photoreceptor Transplantation in Late Stage Retinal Degeneration. Invest Ophthalmol Vis Sci. 57, (2016).
- Zrenner, E. Fighting blindness with microelectronics. Sci Transl Med. 5, (2013).
- Humayun, M. S., de Juan, E. Jr, Dagnelie, G. The Bionic Eye: A Quarter Century of Retinal Prosthesis Research and Development. Ophthalmol. 123, S89-S97 (2016).
- Cruz, L., et al. The Argus II epiretinal prosthesis system allows letter and word reading and long-term function in patients with profound vision loss. Br J Ophthalmol. 97, 632-636 (2013).
- Zrenner, E., et al. Subretinal electronic chips allow blind patients to read letters and combine them to words. P R Soc B. 278, 1489-1497 (2011).
- Stronks, H. C., Dagnelie, G. The functional performance of the Argus II retinal prosthesis. Expert Rev Med Devices. 11, 23-30 (2014).
- Stingl, K., et al. Artificial vision with wirelessly powered subretinal electronic implant alpha-IMS. P R Soc B. 280, (2013).
- Rizzo, J. F. Update on retinal prosthetic research: the Boston Retinal Implant Project. J Neuroophthalmol. 31, 160-168 (2011).
- Ayton, L. N., et al. First-in-Human Trial of a Novel Suprachoroidal Retinal Prosthesis. PLoS ONE. 9, e115239(2014).
- Chuang, A. T., Margo, C. E., Greenberg, P. B. Retinal implants: a systematic review. Br J Ophthalmol. 98, 852-856 (2014).
- Cai, C., Twyford, P., Fried, S. The response of retinal neurons to high-frequency stimulation. J Neural Eng. 10, 036009(2013).
- Eiber, C. D., Lovell, N. H., Suaning, G. J. Attaining higher resolution visual prosthetics: a review of the factors and limitations. J Neural Eng. 10, 011002(2013).
- Humayun, M., Propst, R., de Juan, E., McCormick, K., Hickingbotham, D. Bipolar surface electrical stimulation of the vertebrate retina. Arch Ophthalmol. 112, 110-116 (1994).
- Zrenner, E., et al. Can subretinal microphotodiodes successfully replace degenerated photoreceptors? Vision Res. 39, 2555-2567 (1999).
- Majji, A. B., Humayun, M. S., Weiland, J. D., Suzuki, S., D'Anna, S. A., de Juan, E. Long-Term Histological and Electrophysiological Results of an Inactive Epiretinal Electrode Array Implantation in Dogs. Invest Ophthalmol Vis Sci. 40, 2073-2081 (1999).
- Peterman, M. C., Noolandi, J., Blumenkranz, M. S., Fishman, H. A. Localized chemical release from an artificial synapse chip. PNAS. 101, 9951-9954 (2004).
- Finlayson, P. G., Iezzi, R. Glutamate stimulation of retinal ganglion cells in normal and s334ter-4 rat retinas: a candidate for a neurotransmitter-based retinal prosthesis. Invest Ophthalmol Vis Sci. 51, 3619-3628 (2010).
- Inayat, S., Rountree, C. M., Troy, J. B., Saggere, L. Chemical stimulation of rat retinal neurons: feasibility of an epiretinal neurotransmitter-based prosthesis. J Neural Eng. 12, 016010(2015).
- Rountree, C. M., Inayat, S., Troy, J. B., Saggere, L. Differential stimulation of the retina with subretinally injected exogenous neurotransmitter: A biomimetic alternative to electrical stimulation. Sci Rep. 6, 38505(2016).
- Ray, A., Sun, G. J., Chan, L., Grzywacz, N. M., Weiland, J., Lee, E. -J. Morphological alterations in retinal neurons in the S334ter-line3 transgenic rat. Cell Tissue Res. 339, 481-491 (2010).
- Martinez-Navarrete, G., Seiler, M. J., Aramant, R. B., Fernandez-Sanchez, L., Pinilla, I., Cuenca, N. Retinal degeneration in two lines of transgenic S334ter rats. Exp Eye Res. 92, 227-237 (2011).
- Sigma Aldrich. Sigma Aldrich Ames Medium Product Information Sheet. , Available from: https://www.sigmaaldrich.com/content/dam/sigma-aldrich/docs/Sigma/Product_Information_Sheet/1/a1420pis.pdf (2017).
- Reinhard, K., et al. Step-By-Step instructions for retina recordings with perforated multi electrode arrays. PLoS ONE. 9, e106148(2014).
- Izumi, Y., Kirby, C. O., Benz, A. M., Olney, J. W., Zorumski, C. F. Müller cell swelling, glutamate uptake, and excitotoxic neurodegeneration in the isolated rat retina. Glia. 25, 379-389 (1999).
- Tunnicliff, G. Glutamate uptake by chick retina. Biochem J. 150, 297-299 (1975).
- Schwartz, E. A., Tachibana, M. Electrophysiology of glutamate and sodium co-transport in a glial cell of the salamander retina. J Physiol (Lond). 426, 43-80 (1990).
- Muller, A., Maurin, L., Bonne, C. Free radicals and glutamate uptake in the retina. Gen Pharmacol- Vasc S. 30, 315-318 (1998).
- Dhingra, N. K., Kao, Y. -H., Sterling, P., Smith, R. G. Contrast threshold of a brisk-transient ganglion cell in vitro. J of Neurophysiol. 89, 2360-2369 (2003).
- Ahlers, M. T., Ammermüller, J. A system for precise temperature control of isolated nervous tissue under optical access: Application to multi-electrode recordings. J of Neurosci Methods. 219, 83-91 (2013).
- Feke, G. T., Tagawa, H., Deupree, D. M., Goger, D. G., Sebag, J., Weiter, J. J. Blood flow in the normal human retina. Invest Ophthalmol Vis Sci. 30, 58-65 (1989).
- The Retina. Neuroscience. Purves, D., et al. , 2nd edition, Sinauer Associates. (2001).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
