Architektura kompleksów białkowych jest niezbędna dla ich funkcjonowania. Połączenie różnych technik spektrometrii mas okazało się skuteczne w badaniu ich składania. Udostępniamy protokoły sieciowania chemicznego i natywnej spektrometrii mas oraz pokazujemy, w jaki sposób te uzupełniające się techniki pomagają wyjaśnić architekturę wielopodjednostkowych zespołów białkowych.
Artykuł metodologiczny
Połączenie chemicznego sieciowania i spektrometrii mas nienaruszonych kompleksów białkowych w celu zbadania architektury wielopodjednostkowych zespołów białkowych
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Białka oddziałują ze swoimi ligandami, tworząc aktywne i dynamiczne zespoły, które pełnią różne funkcje komórkowe. Wyjaśnienie tych interakcji ma zatem fundamentalne znaczenie dla zrozumienia procesów komórkowych. Jednak wiele kompleksów białkowych to dynamiczne złożenia, które nie są dostępne za pomocą konwencjonalnych technik strukturalnych. Spektrometria mas przyczynia się do badań strukturalnych tych zespołów, a w szczególności połączenie różnych technik spektrometrii mas dostarcza cennych informacji na temat ich strukturalnego układu.
W tym artykule opisujemy zastosowanie i kombinację dwóch uzupełniających się technik spektrometrii mas, a mianowicie chemicznego sieciowania sprzężonego ze spektrometrią mas i natywnej spektrometrii mas. Sieciowanie chemiczne polega na kowalencyjnym wiązaniu aminokwasów w bliskiej odległości za pomocą odczynników chemicznych. Po trawieniu z proteazami, usieciowane di-peptydy są identyfikowane za pomocą spektrometrii mas i odkrywane są miejsca interakcji białek. Z drugiej strony natywna spektrometria mas to analiza nienaruszonych zespołów białek w fazie gazowej spektrometru masowego. Ujawnia stechiometrie białek, a także interakcje białek i ligandów. Obie techniki dostarczają zatem uzupełniających się informacji na temat struktury zespołów białko-ligand, a ich połączenie okazało się skuteczne we wcześniejszych badaniach.
Wprowadzenie
Badanie strukturalne zespołów białek stało się szczególnie ważne dla zrozumienia procesów komórkowych. W związku z tym wiele technik zostało opracowanych i ulepszonych w biologii strukturalnej1. Jednak zastosowanie tych technik jest czasami ograniczone ze względu na wielkość, elastyczność lub niejednorodność badanych kompleksów białkowych. Spektrometria mas może poradzić sobie z tymi wyzwaniami i dlatego stała się potężnym narzędziem w biologii strukturalnej2,3,4,5. Największą zaletą spektrometrii mas jest jednak możliwość jednoznacznej identyfikacji białek nawet w złożonych i niejednorodnych mieszaninach6. W tym celu białka są zwykle trawione za pomocą endoproteinaz, a powstała mieszanina peptydów jest rozdzielana za pomocą chromatografii cieczowej i bezpośrednio eluowana do spektrometru masowego. Następnie określa się masy peptydów i wybiera jony prekursorowe do dalszej fragmentacji peptydów. Białka są następnie identyfikowane poprzez przeszukiwanie peptydów i odpowiadających im mas fragmentów w znanej bazie danych. Procedura ta pozwala nie tylko na identyfikację peptydów/białek, ale także na ich modyfikacje potranslacyjne, które powodują przesunięcie masy peptydów prekursorowych i jonów fragmentacyjnych przenoszących modyfikację7. Niektóre z wielu technik strukturalnej spektrometrii mas opierają się na tej zasadzie4,8. Na przykład techniki etykietowania, takie jak wymiana deuteru wodorowego9,10, strategie etykietowania chemicznego11,12, lub odcisk stopy rodnika hydroksylowego13,14, dają wgląd w dostępność powierzchniową białek w określonych warunkach.
Inną techniką jest (chemiczne) sieciowanie polegające na kowalencyjnym wiązaniu aminokwasów znajdujących się w bliskim sąsiedztwie poprzez ich grupy funkcyjne. W tym celu stosuje się odczynniki chemiczne, odczynniki aktywowane promieniami UV lub aminokwasy15,16. Po usieciowaniu białka są zwykle hydrolizowane proteazami, a usieciowane dipeptydy są analizowane za pomocą spektrometrii mas sprzężonej z chromatografią cieczową. Identyfikacja produktów sieciowania poprzez przeszukiwanie baz danych wymaga jednak użycia specjalistycznego oprogramowania, które łączy sekwencje peptydowe różnych białek i różnych regionów17,18,19. Zastosowanie chemicznych środków sieciujących ma tę zaletę, że można je zastosować do prawie każdego kompleksu białkowego będącego przedmiotem zainteresowania i nie wymaga wprowadzania aminokwasów aktywowanych promieniowaniem UV, co można osiągnąć tylko podczas ekspresji białka będącego przedmiotem zainteresowania w komórkach gospodarza. W związku z tym sieciowanie jest wszechstronnym narzędziem i zostało z powodzeniem zastosowane w wielu badaniach strukturalnych nawet dużych zespołów białek20.
Spektrometria mas nienaruszonych kompleksów białkowych (czasami nazywana 'natywną' spektrometrią mas), z drugiej strony, polega na analizie nienaruszonych białek i kompleksów białkowych bez hydrolizy do peptydów. Ujawnia skład, niejednorodność, stechiometrię, topologię i interakcje podjednostek kompleksów białkowych21,22. W połączeniu z ruchliwością jonów, natywna spektrometria mas pozwala dodatkowo określić ich konformację23,24. To sprawia, że jest to potężne narzędzie do badań strukturalnych kompleksów białkowych, które są trudne do oceny za pomocą konwencjonalnych technik strukturalnych. Jednak natywna spektrometria mas wymaga analitycznych, które utrzymują niekowalencyjne oddziaływania białek podczas jonizacji elektrorozpylania. Zwykle osiąga się to za pomocą wodnych, lotnych, takich jak octan amonu25. Ponadto konieczne są modyfikacje przyrządu, aby zapobiec dysocjacji podczas transmisji do fazy gazowej spektrometru mas26. Zastosowano w ten sposób wiele (dużych) kompleksów białkowych. Imponującymi przykładami są badania nienaruszonych rybosomów27, ATP synthase28 lub wirusy29.
Połączenie natywnej spektrometrii mas i sieciowania okazało się szczególnie skuteczne w poprzednich badaniach. Na przykład, stechiometrie kompleksów opiekuńczych, w tym nieoczekiwany dimer Hsp70, można było uzyskać z eksperymentów spektrometrii mas nienaruszonych kompleksów białkowych, podczas gdy chemiczne sieciowanie ujawniło ułożenie białek w zespołach30,31. W innym badaniu badano wpływ modyfikacji potranslacyjnych na nienaruszony kompleks syntazy ATP. Natywna spektrometria mas dostarczyła informacji na temat stabilności kompleksu białkowego w obecności lub braku fosforylacji lub acetylacji32,33. Porównawcza strategia sieciowania34 ujawniła następnie zmiany konformacyjne kompleksu białkowego w różnych warunkach.
Tutaj udostępniamy protokoły identyfikacji białek za pomocą spektrometrii mas, (chemicznego) sieciowania i natywnej spektrometrii mas, w tym analizy i interpretacji danych (Rysunek 1). Pokazano kombinację uzupełniających się wyników uzyskanych tymi metodami za pomocą dwóch dobrze scharakteryzowanych kompleksów białkowych35. Nasz protokół można zastosować do dowolnego zestawu białek, które można oczyścić przy określonej czystości i stężeniu. Podejście to jest w niektórych przypadkach ograniczone przez analizę danych sieciujących, tj. wielkość zastosowanej bazy danych, która określa wymaganą przestrzeń i czas wyszukiwania. Ponadto często wymagana jest ręczna walidacja zidentyfikowanych wiązań, co dodatkowo zmniejsza wydajność. Natywna spektrometria mas jest w dużej mierze ograniczona jakością próbki, np. i adduktami stosowanymi podczas oczyszczania oraz możliwością ich wymiany na wodne i lotne. Jednak kompleksy białkowe oczyszczone do analizy strukturalnej zwykle mają jakość wymaganą do pomyślnej analizy za pomocą naszych protokołów.
Protokół
1. Oczyszczanie kompleksów białkowych
- Przygotuj kompleks białkowy zgodnie ze zoptymalizowanymi standardowymi protokołami.
UWAGA: Protokół jest tutaj pokazany z kompleksem RvB1/B2 z Chaetomium thermophilum i syntazą fosforanu karbamoilu (CPS) z Escherichia coli. RvB1/B2 i CPS zostały oczyszczone zgodnie z opisem36,37. Każdy kompleks białkowy wymaga indywidualnego protokołu oczyszczania. Dostosuj odpowiednio protokół. Do chemicznego sieciowania należy stosować wolne od amin, takie jak sól fizjologiczna buforowana fosforanami (PBS) lub kwas 2-[4-(2-hydroksyetylo)piperazyno-1-ylo]etanosulfonowy (HEPES). Jeśli to możliwe, wymień bufor podczas oczyszczania.
UWAGA: Nie należy stosować żadnych metod ani odczynników, które zaburzają natywne składanie kompleksu białkowego.
2. Identyfikacja białek na podstawie spektrometrii mas
- Elektroforeza żelowa
UWAGA: Dostępne są różne systemy żelowe, a każde laboratorium używa własnej konfiguracji. Dostosuj warunki do systemu żelowego. Noś rękawice i fartuch laboratoryjny przez cały czas trwania protokołu, ponieważ keratyny są jednymi z najczęstszych zanieczyszczeń w analizie spektrometrii mas.- Na 20 μl próbki próbki nanieść 7,5 μl 4x bufor i 3 μl 10x środek redukujący (stężenie końcowe 50 mM ditiotreitol (DTT)) na 20 μl próbki białka. Użyj 10 μM CPS lub 2,5 μM RvB1/B2. Wirować przez 1 min w temperaturze 16 200 × g i podgrzewać przez 10 min w temperaturze 70 °C.
UWAGA: W przypadku korzystania z innego systemu żelowego dostosuj wymagane objętości i temperaturę ogrzewania. - Przygotuj żel o gradinie 4 - 12% do elektroforezy. Rozcieńczyć działający bufor 20 razy wodą i napełnić komorę elektroforezy. Stosować bufor kwasu 2-(N-morfolino)etanosulfonowego (MES) dla białek o mniejszej masie cząsteczkowej (2 - 200 kDa) i bufor kwasu 3-(N-morfolino)propanosulfonowego (MOPS) dla większych białek (14 - 200 kDa). Dodaj 0,5 ml przeciwutleniacza do komory wewnętrznej.
UWAGA: W przypadku stosowania innego systemu żelowego należy przygotować bufor do pracy i żel zgodnie z protokołami producenta. - Załaduj odpowiedni marker białkowy (wstępnie wybarwiony, niebarwiony, o różnych rozmiarach cząsteczek) do pierwszej jamy i załaduj próbki białka do pozostałych jam.
- Oddzielaj białka przez 35 minut (MES) lub 50 minut (MOPS) przy 200 V.
UWAGA: Dostosuj czasy elektroforezy i voltage dla różnych systemów żelowych. - Aby wybarwić pasma białkowe, przenieś żel do pudełka do barwienia żelu i przykryj żel roztworem barwiącym Coomassie na bazie wody. Inkubować przez noc w temperaturze pokojowej na poziomym wytrząsarce do żelu.
- Odplamić żel, zastępując roztwór barwiący wodą. Powtórz ten krok kilka razy (około 3-5 razy), aż tło żelu stanie się czyste.
- Na 20 μl próbki próbki nanieść 7,5 μl 4x bufor i 3 μl 10x środek redukujący (stężenie końcowe 50 mM ditiotreitol (DTT)) na 20 μl próbki białka. Użyj 10 μM CPS lub 2,5 μM RvB1/B2. Wirować przez 1 min w temperaturze 16 200 × g i podgrzewać przez 10 min w temperaturze 70 °C.
- Trawienie w żelu
UWAGA: Aby uniknąć zanieczyszczenia, należy używać rozpuszczalników klasy HPLC w całym protokole mineralizacji i do wszystkich kolejnych etapów (tj. analizy spektrometrii mas). Przygotuj wszystkie roztwory przed użyciem i przefiltruj wodę i wodorowęglan amonu.- Za pomocą skalpela odetnij pasma białkowe, które są uwidocznione przez niebieską plamę Coomassie z żelu. Ostrożnie pokrój pasma białkowe na małe kawałki o wymiarach około 1 mm × 1 mm. Opłucz skalpel wodą między różnymi pasmami białkowymi. Umyj opaski żelowe wodą i acetonitrylem (ACN).
- Zmniejsz wiązania dwusiarczkowe za pomocą DTT, reszty alkilowo-cysteinowe za pomocą jodoacetamidu i traw białka za pomocą trypsyny, jak opisano wcześniej38; zwykle stosuje się stosunek enzymu do białka od 1:20 do 1:100. Użyj 100 mM wodorowęglanu amonu podczas protokołu trawienia.
- Ekstrakcja peptydów w dwóch etapach.
- Najpierw inkubuj kawałki żelu z wodorowęglanem amonu i ACN, a następnie zbierz supernatant zawierający peptydy. Po drugie, inkubuj kawałki żelu z 5% (v/v) kwasem mrówkowym i ACN. Inkubować przez 15 minut na każdym etapie. Połączyć oba supernatanty. Wysuszyć wyekstrahowane peptydy, odparowując rozpuszczalniki w wirówce próżniowej.
UWAGA: Suszone peptydy można przechowywać w temperaturze -20 °C przez kilka miesięcy.
- Najpierw inkubuj kawałki żelu z wodorowęglanem amonu i ACN, a następnie zbierz supernatant zawierający peptydy. Po drugie, inkubuj kawałki żelu z 5% (v/v) kwasem mrówkowym i ACN. Inkubować przez 15 minut na każdym etapie. Połączyć oba supernatanty. Wysuszyć wyekstrahowane peptydy, odparowując rozpuszczalniki w wirówce próżniowej.
- Spektrometria mas sprzężona z chromatografią cieczową
- Wysuszone peptydy rozpuścić w 2% ACN/0,1% kwasie mrówkowym. Rozpuść peptydy w kąpieli sonizacyjnej przez 2-3 minuty i odwiruj w wirówce przy 16 200 x g przez 30 minut. Przenieść próbki do fiolek automatycznego podajnika próbek.
UWAGA: Dostosuj objętość w zależności od ilości białka. Do dobrze wybarwionych opasek Coomassie używamy 20 μL. - Wstrzyknąć 5 μl próbki do systemu nano-LC-MS/MS za pomocą automatycznego podajnika próbek. Załaduj mieszaninę peptydów do kolumny wstępnej C18 z odwróconą fazą (C18, średnica wewnętrzna 150 μm, porów 2 cm, 5 μm) w celu odsolenia i skoncentrowania peptydów w trybie online.
- Użyj 0,1% (v/v) kwasu mrówkowego jako ruchomej fazy A i 80% ACN/0,1% (v/v) kwasu mrówkowego jako ruchomej fazy B. Oddziel peptydy w kolumnie analitycznej C18 z odwróconymi fazami (C18, 75 μm ID , 50 cm, 3 μm wielkość porów) stosując gradient 4-80% B (zawierający 0,1% kwasu mrówkowego) przy 300 nL/min przez 65 min.
UWAGA: Źródło jonów w nanosprayu służy do przenoszenia eluowanych peptydów do spektrometru masowego. - Stosować (typowe) warunki MS: napięcie rozpylania 1,6 kV; temperatura kapilary 250 °C; znormalizowana energia zderzenia 30. Eksploatować spektrometr mas w trybie zależnym od danych.
- Uzyskaj widma MS w analizatorze mas (np. orbitrap) (m/z 350−1,600) z rozdzielczością 70 000 i celem automatycznej kontroli wzmocnienia 3 x 10⁶. Wybierz 20 najbardziej intensywnych jonów do fragmentacji HCD przy celu automatycznej kontroli wzmocnienia 1 x 10⁵. Dynamicznie wykluczaj wcześniej wybrane jony przez 30 s. Wyklucz jony naładowane pojedynczo, a także jony o nierozpoznanym stanie ładunku.
UWAGA: Wewnętrzna kalibracja widm masowych została przeprowadzona przy użyciu opcji lock mass39.
- Wysuszone peptydy rozpuścić w 2% ACN/0,1% kwasie mrówkowym. Rozpuść peptydy w kąpieli sonizacyjnej przez 2-3 minuty i odwiruj w wirówce przy 16 200 x g przez 30 minut. Przenieść próbki do fiolek automatycznego podajnika próbek.
- Przeszukiwanie bazy danych
UWAGA: Dostępne jest różne oprogramowanie do przeszukiwania baz danych. MaxQuant40, na przykład, jest dostępny za darmo.- Konwertuj pliki .raw na pliki .mgf za pomocą narzędzia do konwersji pXtract (http://pfind.ict.ac.cn/downloads.html).
- Przeszukaj bazę danych przy użyciu typowych parametrów wyszukiwania: Baza danych, swissprot; tolerancja masy peptydu, 10 ppm; tolerancja masy fragmentu, 0,5 Da; enzym, trypsyna; pominięte miejsca cięcia, 2; zmienne modyfikacje, karbamidometyllacja (cysteina) i utlenianie (metionina).
UWAGA: Zmień parametry wyszukiwania zgodnie z ustawieniami eksperymentalnymi. - Sprawdź wynik wyszukiwania w bazie danych. Oceń wynik białka, liczbę zidentyfikowanych peptydów, wyniki peptydów i dokładność masy; Pokrycie sekwencją zwraca pokrycie zidentyfikowanym białkiem.
UWAGA: Każda wyszukiwarka ma swój indywidualny algorytm scoringowy. Oceń system punktacji peptydów na podstawie jakości obserwowanych widm masowych w tandemie. Główne sygnały dobrego widma powinny pokazywać (pełne) serie jonów, aby zweryfikować zidentyfikowany peptyd. Zwykle wynik peptydu jest oparty na prawdopodobieństwie, tj. wynik peptydu jest miarą prawdopodobieństwa, że zidentyfikowana sekwencja peptydowa pasuje do uzyskanego widma. Wynik białka jest zwykle uzyskiwany na podstawie wyników peptydowych i służy do uszeregowania białka na liście zidentyfikowanych białek.
3. Spektrometria mas nienaruszonych kompleksów białkowych (natywna spektrometria mas)
- Przygotowanie emiterów pokrytych złotem do jonizacji elektrorozpylającej
- Użyj ściągacza do mikropipet, aby przygotować emitery nanoprzepływowe ze szklanych kapilarn, jak opisano wcześniej25,41. Stosować kapilary borokrzemianowe o średnicy wewnętrznej 0,78 mm.
UWAGA: Zmieniając parametry ciągnięcia igły, kształt i rozmiar końcówki można modyfikować i dostosowywać do próbki. Dostępne są kapilary o różnej średnicy wewnętrznej i grubości ścianki. - Szklane kapilary należy pokryć materiałem przewodzącym (np. złotem lub palladem); powszechne jest stosowanie napylarki wytwarzającej złotą plazmę. Postępuj zgodnie z instrukcjami producenta, aby uzyskać dobrej jakości powłokę.
UWAGA: Powłoka powinna być wystarczająca, aby uzyskać stabilny spray podczas stosowania typowych napięć kapilarnych (patrz poniżej).
- Użyj ściągacza do mikropipet, aby przygotować emitery nanoprzepływowe ze szklanych kapilarn, jak opisano wcześniej25,41. Stosować kapilary borokrzemianowe o średnicy wewnętrznej 0,78 mm.
- Przygotowanie próbki do natywnej spektrometrii mas
UWAGA: Sole, detergenty lub duże ilości glicerolu nie są kompatybilne z jonizacją elektronrozpylającą. Dlatego bufor oczyszczający jest wymieniany na lotny, wodny bufor. Powszechnie stosowany jest octan amonu 200 mM. Do wymiany należy używać kolumn wirowych wykluczających rozmiar lub urządzeń ultrafiltracyjnych. W niektórych przypadkach wymiana może mieć wpływ na złożoną stabilność lub aktywność. Oceń dokładnie widma masowe i sprawdź aktywność kompleksu. W razie potrzeby dodać kofaktory lub dodatki do buforu analitycznego.- Użyj kolumn wirowania wykluczającego rozmiar do szybkiej wymiany bufora. Usunąć bufor do przechowywania przez odwirowanie w temperaturze 1 000 x g i w temperaturze 4 °C przez 1 minutę. Odrzuć przepływ. Przemyć trzykrotnie, dodając 500 μl 200 mM octanu amonu, a następnie odwirować. Załadować 20 μl próbki białka na kolumnę i odwirować w temperaturze 1 000 x g i 4 °C przez 4 min.
UWAGA: Stężenie kompleksu białkowego powinno wynosić 1-10 μM. Procedurę można powtórzyć, jeśli składniki nielotne nadal zakłócają analizę. - Aby zagęścić próbkę białka i wymienić bufor w tym samym doświadczeniu, należy użyć filtrów odśrodkowych. Należy użyć membrany filtracyjnej o wielkości porów o 50% mniejszej niż wielkość analizowanych białek.
- Przenieść próbkę białka do urządzenia filtrującego i dodać 200 mM octanu amonu. Odwiruj przy 15 000 x g i odrzuć przepływ. Dodać 200 mM octanu amonu i powtórzyć wirowanie. Powtórz ten krok kilka razy. Postępuj zgodnie z instrukcjami producenta dotyczącymi prędkości wirowania. Przeprowadzić wirowanie w temperaturze 4 °C.
ostrożność: Białka błonowe mają tendencję do wytrącania się na membranie urządzenia filtrującego.
- Przenieść próbkę białka do urządzenia filtrującego i dodać 200 mM octanu amonu. Odwiruj przy 15 000 x g i odrzuć przepływ. Dodać 200 mM octanu amonu i powtórzyć wirowanie. Powtórz ten krok kilka razy. Postępuj zgodnie z instrukcjami producenta dotyczącymi prędkości wirowania. Przeprowadzić wirowanie w temperaturze 4 °C.
- Użyj kolumn wirowania wykluczającego rozmiar do szybkiej wymiany bufora. Usunąć bufor do przechowywania przez odwirowanie w temperaturze 1 000 x g i w temperaturze 4 °C przez 1 minutę. Odrzuć przepływ. Przemyć trzykrotnie, dodając 500 μl 200 mM octanu amonu, a następnie odwirować. Załadować 20 μl próbki białka na kolumnę i odwirować w temperaturze 1 000 x g i 4 °C przez 4 min.
- Analiza spektrometryczna mas nienaruszonych kompleksów białkowych
UWAGA: Istnieją różne typy spektrometrów masowych różnych producentów, które można modyfikować pod kątem natywnej spektrometrii mas, np. kwadrupolowe spektrometry mas czasu przelotu (Q-ToF) lub spektrometry mas orbitrap. Opisany poniżej protokół został wykonany na instrumencie Q-ToF.- Umieścić pokrytą złotem kapilarnę w uchwycie kapilary i wypełnić kapilarnę 1-4 μl próbki białka. Otwórz końcówkę igły pęsetą.
- Połącz uchwyt kapilary ze źródłem nano-elektrorozpylania i wyreguluj położenie kapilary. Umieść końcówkę kapilary w odległości 0,5-1,5 cm od otworu stożka. Użyj gazu nanoflow o natężeniu 80-150 l/h, aby zainicjować natryskiwanie i dostosować przepływ gazu, aby utrzymać stabilny rozpylanie.
- Dostosuj parametry na stronie strojenia instrumentu Q-ToF. Typowe warunki rozruchu to: napięcie kapilarne, 1,50 kV; napięcie stożka, 80 V; Obiektyw RF 1 energia, 80 V; energia zderzenia, 20 V; przysłona 3, 13,6 V. Zmodyfikuj te parametry, aby uzyskać dobre widma masowe. Rozpocznij akwizycję, klikając przycisk "pobierz" i połącz jak najwięcej skanów, aby uzyskać dobre widmo masy.
UWAGA: Zalecamy połączenie co najmniej 100 skanów.
- Tandemowa spektrometria mas nienaruszonych kompleksów białkowych
- Uzyskać widmo mas zgodnie z powyższym opisem (sekcja 3.3 protokołu). Wybierz jon prekursorowy kompleksu białkowego.
- Zmiana z trybu MS na MS/MS w pliku akwizycji. Ustawić wybór MS/MS na masę prekursora.
- Rozpocznij akwizycję przy niskiej energii zderzenia. Połącz kilka skanów (około 20 skanów), aby zweryfikować wybór właściwej masy prekursora. Zwiększaj energię zderzenia, aż kompleks białkowy ulegnie dysocjacji. Aby uzyskać dobre widmo masy, połącz co najmniej 500 skanów.
UWAGA: Kompleksy okrojone mają czasami niską intensywność. Połączenie jak największej liczby skanów może zwiększyć rozdzielczość i stosunek sygnału do szumu.
- Dysocjacja w roztworze nienaruszonych kompleksów białkowych
UWAGA: Aby uzyskać dodatkowy wgląd w interakcje białek w kompleksach białkowych, można przeprowadzić dysocjację w roztworze.- Przygotować próbkę białka w sposób opisany powyżej (sekcja 3.2). Dodaj rozpuszczalniki do próbki białka lub zmień pH, aby zdysocjować nienaruszone kompleksy na podkompleksy. Typowymi rozpuszczalnikami są metanol, izopropanol i ACN; zmienić pH octanu amonu przez dodanie kwasu octowego lub roztworu amoniaku. Uzyskać widma masowe zgodnie z powyższym opisem (sekcje 3.3 i 3.4).
- Zmieniaj ilość rozpuszczalnika lub zakres pH, aby wytworzyć różne podkompleksy. Zazwyczaj ilość rozpuszczalnika wynosi 5-50% (stężenie końcowe), a typowy zakres pH to 4-9. Rozpocząć od niskiego stężenia rozpuszczalnika (5%) lub niewielkich zmian pH i uzyskać spektrum masowe (patrz punkt 3.3).
- Zwiększaj ilość rozpuszczalnika lub zmieniaj pH stopniowo, aż w roztworze wytworzą się podkompleksy. Pozyskiwanie widm masowych w celu analizy podkompleksów.
- Kalibracja danych
UWAGA: Uzyskane widma masowe są kalibrowane zewnętrznie przy użyciu roztworu jodku cezu (CsI).- Rozpuścić 100 mg CsI w 1 ml wody.
- Uzyskaj masowe widmo CsI. Zmieniaj energię zderzenia, aby uzyskać klastry CsI w tym samym zakresie m/z, co kompleks białkowy analizowany powyżej.
UWAGA: CsI szybko wytrąca się na końcówce emitera i zanieczyszcza stożek. Uzyskaj tylko tyle skanów, ile jest wymagane, aby uzyskać wystarczające spektrum. Po zakończeniu usuń emiter ze źródła. - Wykonaj plik kalibracyjny, korzystając z uzyskanego widma masowego i pliku referencyjnego CsI.
- Zastosuj kalibrację do uzyskanych widm masowych.
UWAGA: Kalibracja widm masowych może być trwałą zmianą surowych danych. Jeśli potrzebne są widma nieskalibrowane, należy wykonać kopię zapasową pliku.
- Przetwarzanie i analiza danych
UWAGA: Istnieje wiele ogólnodostępnych narzędzi programowych do analizy danych natywnych widm masowych; na przykład Massign42 lub UniDec43. Poniższy protokół opisuje ręczną analizę danych za pomocą oprogramowania przyrządu, a także wykorzystanie Massign do złożonych próbek. To oprogramowanie doskonale nadaje się do analizy złożonych widm masowych. Postępuj zgodnie z instrukcjami podanymi online, aby korzystać z programu (http://massign.chem.ox.ac.uk/).- W przypadku analizy danych wygładź widma, dostosowując parametry wygładzania. Widma środka ciężkości poprzez dostosowanie parametrów. Oblicz masy zespolone z dwóch sąsiednich pików obwiedni piku kompleksu białkowego za pomocą narzędzi programowych przyrządów.
UWAGA: Zbyt intensywne wygładzanie może spowodować utratę danych (np. utratę związanych ligandów). - W przypadku analizy za pomocą Massign42 wygeneruj listę pików dla widma masowego. Linearyzuj punkty danych widma i wygładzaj. Korzystaj z różnych narzędzi programowych, aby przypisywać kompleksy białkowe, obliczać skład kompleksu lub symulować złożone obwiedni pików.
- W przypadku analizy danych wygładź widma, dostosowując parametry wygładzania. Widma środka ciężkości poprzez dostosowanie parametrów. Oblicz masy zespolone z dwóch sąsiednich pików obwiedni piku kompleksu białkowego za pomocą narzędzi programowych przyrządów.
4. Sieciowanie chemiczne sprzężone ze spektrometrią mas
UWAGA: Dostępnych jest wiele strategii linkowania. W tym miejscu opisujemy zastosowanie suberanu bis(sulfosukcynimidylu) (BS3), aminowo-reaktywnego środka sieciującego, który jest powszechnie stosowany do badania interakcji białko-białko.
- Rozpuścić 1,43 mg BS3 w 100 μl wody, aby przygotować 25 mM roztwór podstawowy.
UWAGA: Inne odczynniki, takie jak suberat disuccinimidylu (DSS), nie są rozpuszczalne w wodzie i zwykle rozpuszczają się w dimetylosulfotlenku (DMSO). Niektóre środki sieciujące są również dostępne w ciężkich formach znakowanych izotopowo. Włączenie ciężkich stabilnych izotopów generuje pary pików usieciowanych di-peptydów w widmach MS, co pomaga podczas oceny danych. W przypadku stosowania sieciowników znakowanych różnicowo, roztwory podstawowe obu wariantów są przygotowywane i mieszane 1:1,
UWAGA: Aby uniknąć dysocjacji kompleksów białkowych przez DMSO, przed reakcją sieciowania przygotowuje się wysoce skoncentrowany roztwór podstawowy i rozcieńcza go wodą lub buforem. - Dodaj BS3 do kompleksu białkowego. Użyj różnych ilości BS3 w zakresie od 0,5 do 5 mM, aby określić optymalne stężenie środka sieciującego. Mieszaniny reakcyjne inkubować w temperaturze 25 °C przez 1 godzinę w termomikserze. Użyj żeli o gradiacji 4-12% i wykonaj SDS-PAGE, aby ocenić wyniki sieciowania (zobacz Rysunek 2 dla przykładu).
UWAGA: Optymalne stężenie BS3 osiąga się, gdy prążki białkowe o wyższej masie cząsteczkowej, które nie są widoczne w kontroli nieusieciowanej, są uzyskiwane podczas SDS-PAGE, podczas gdy pojedyncze podjednostki są nadal widoczne (Rysunek 2). - Powtórzyć reakcję sieciowania z optymalnym stężeniem BS3. Mieszaniny reakcyjne inkubować w temperaturze 25 °C przez 1 godzinę w termomikserze.
UWAGA: Niektóre kompleksy białkowe nie są stabilne w temperaturze pokojowej. Reakcję sieciowania można również przeprowadzić na lodzie; Należy jednak dostosować czas reakcji. - Ugasić reakcję sieciowania przez dodanie buforu aminowego (np. 50-100 mM buforu Tris, pH 7,5, stężenie końcowe) lub przeprowadzić wytrącanie etanolu w celu usunięcia pozostałości odczynnika sieciującego.
- Dodać wodę lub bufor do mieszaniny reakcyjnej, aby osiągnąć końcową objętość 200 μl. Dodać 600 μl lodowatego etanolu i 20 μl 3 M octanu sodu o pH 5,3. Dokładnie wymieszać i inkubować w temperaturze -20 °C przez 2 godziny lub przez noc.
UWAGA: Alternatywnie białka można wytrącać w temperaturze 80 °C przez 30 minut lub w ciekłym azocie. - Wirować w temperaturze 16 200 x g i temperaturze 4 °C przez 30 minut. Ostrożnie usunąć supernatant.
- Umyj granulki 1 ml lodowatego etanolu o stężeniu 80% (v/v). Wirować w temperaturze 16 200 x g i w temperaturze 4 °C przez 30 minut. Ostrożnie usunąć supernatant. Wysuszyć granulki w wirówce próżniowej.
- Dodać wodę lub bufor do mieszaniny reakcyjnej, aby osiągnąć końcową objętość 200 μl. Dodać 600 μl lodowatego etanolu i 20 μl 3 M octanu sodu o pH 5,3. Dokładnie wymieszać i inkubować w temperaturze -20 °C przez 2 godziny lub przez noc.
- Wykonaj SDS-PAGE usieciowanych białek. Odciąć pasma żelu i strawić białko w żelu, jak opisano powyżej (punkty 2.1 i 2.2).
UWAGA: Można również przeprowadzić trawienie w roztworze, jednak zwykle wymaga to dodatkowych etapów separacji (np. chromatografii wykluczającej wielkość strawionych peptydów). - Przeprowadzić spektrometrię mas sprzężoną z chromatografią cieczową, jak opisano powyżej (sekcja 2.3). Ponieważ usieciowane peptydy są zwykle mało obfite, należy zastosować następujące zmiany do analizy spektrometrii mas, aby zwiększyć głębokość analityczną usieciowanej próbki.
- Podczas rozdzielania metodą chromatografii cieczowej należy stosować dłuższe gradienty (np. 90 minut zamiast 65 minut, patrz wyżej).
- Wyklucz podwójnie naładowane peptydy z fragmentacji HCD.
UWAGA: Podwójnie naładowane peptydy są zwykle peptydami usieciowanymi ("peptydy pętlowe" lub wiązania krzyżowe "typu 1"). - W przypadku stosowania odczynników sieciujących znakowanych różnicowo, podczas analizy należy użyć opcji "wybierania pików", tj. fragmentacja HCD jest wywoływana przez obecność par pików o określonej różnicy mas w widmach masowych.
UWAGA: Opcja "wybieranie pików" może nie być dostępna w każdym spektrometrze masowym.
- Użyj pLink software18 do identyfikacji usieciowanych di-peptydów. Używaj zminimalizowanych baz danych do identyfikacji. Typowe parametry wyszukiwania to: widma instrumentów, HCD; enzym, trypsyna; max. pominięte miejsca dekoltu, 3; zmienne modyfikacje, utlenianie (metionina) i karbamidometylacja (cysteina); sieciownik, BS3; minimalna długość peptydu, 4; Max. długość peptydu, 100; min. masa peptydu, 400 Da; maksymalna masa peptydu, 10 000 Da; FDR, 1%.
UWAGA: W przypadku korzystania z różnie oznaczonych linkerów należy skonfigurować przyrost masy spowodowany przez linkator. Istnieje również inne powszechnie używane oprogramowanie do identyfikacji usieciowania, np. xQuest17, MassMatrix19, lub XlinkX15. - Oceń wyniki wyszukiwania w bazie danych na podstawie jakości widm fragmentacji. Dopuszczalne widma usieciowań krzyżowych powinny pokazywać szeregi jonowe obu peptydów (co najmniej 4 sąsiednie jony) przy rozsądnym stosunku sygnału do szumu.
UWAGA: W przypadku stosowania odczynników sieciujących znakowanych różnicowo, pary pików w widmach MS mogą być używane jako dodatkowa kontrola jakości. - W razie potrzeby zwizualizuj wyniki sieciowania w sieciach interakcji białkowych za pomocą narzędzi programowych (np. XVis, XiNET). Użyj wykresów słupkowych lub kołowych do wizualizacji interakcji białek.
UWAGA: Oba narzędzia programowe są dostępne bezpłatnie na serwerze internetowym. Postępuj zgodnie ze szczegółowymi instrukcjami na odpowiednich stronach internetowych (https://xvis.genzentrum.lmu.de/ i http://crosslinkviewer.org/).
Wyniki
Analiza strukturalna białek oraz tworzonych przez nie kompleksów jest kluczowa dla zrozumienia ich funkcji. Spektrometria mas wnosi znaczący wkład w badania strukturalne, ponieważ może być stosowana do niemal każdego interesującego kompleksu, niezależnie od jego rozmiaru czy heterogeniczności próbki. Prezentujemy protokół na przykładzie dwóch dobrze scharakteryzowanych kompleksów białkowych: po pierwsze, hetero-dodekameru RvB1/B2 z C. thermophilum, a po drugie, hetero-oktamerowego kompleksu CPS z E. coli.
W pierwszej kolejności zidentyfikowano komponenty białkowe obu kompleksów. W tym celu białka rozdzielono za pomocą elektroforezy SDS-PAGE (Rycina 2) i z żelu wycięto prążki. Po trawieniu białek w żelu mieszaninę peptydów przeanalizowano za pomocą chromatografii cieczowej sprzężonej ze spektrometrią mas, a masy peptydów i ich fragmentów poddano przeszukiwaniu w bazach danych. Stosując ten schemat postępowania, z wysokim stopniem pewności zidentyfikowano wszystkie podjednostki białkowe obu kompleksów, t.j.zaobserwowano dużą liczbę peptydów z odpowiednimi wynikami punktowymi dla peptydów, co przełożyło się na wysoki stopień pokrycia sekwencji dla wszystkich podjednostek białkowych (Tabela 1).
Następnie przeanalizowano nienaruszony kompleks RvB1/B2 za pomocą natywnej spektrometrii mas (Rycina 3A). Widmo mas ujawniło dwa gatunki, jeden przy około 8 000 m/z oraz drugi przy około 11 000-12 000 m/z. Obliczone masy tych gatunków odpowiadają heksamerycznemu pierścieniowi (RvB1)3(RvB2)3 (około 310 kDa) oraz dodekamerycznemu podwójnemu pierścieniowi (RvB1)6(RvB2)6 (około 620 kDa). Obie serie piku wykazują dwie populacje; wynikają one z mieszaniny podjednostek RvB2 z tagiem His oraz bez taga w kompleksach. Struktura krystaliczna kompleksu RvB1/B2 została uzyskana wcześniej36 i pokazuje układ podwójnego pierścienia (Rycina 3B). Natywne widmo mas potwierdza zatem stechiometrię nienaruszonego dodekameru i ponadto ujawnia stabilny podkompleks. Dodatkowo zidentyfikowano współistniejące populacje.
Aby zidentyfikować miejsca oddziaływania białek w kompleksie RvB1/B2, przeprowadziliśmy chemiczne sieciowanie oczyszczonego kompleksu za pomocą sieciującego związku BS3. W pierwszej kolejności miareczkowaliśmy ilość BS3 podczas reakcji sieciowania, aby określić optymalne stężenie. BS3 jest specyficzny dla grup aminowych i kowalencyjnie łączy łańcuchy boczne lizyny oraz końce N-terminalne białek. Po reakcji sieciowania przeprowadzono elektroforezę SDS-PAGE (Rycina 2A). Kompleks niesieciowany wykazywał obecność obu podjednostek, RvB1 i RvB2. Dodanie BS3 do mieszaniny reakcyjnej spowodowało kowalencyjne połączenie białek, co zaowocowało pojawieniem się prążków białkowych o wyższej masie cząsteczkowej. Żel SDS pokazuje, że zwiększanie ilości BS3 prowadzi do uzyskania większej ilości produktów sieciowania, przy jednoczesnym zmniejszeniu ilości niesieciowanych podjednostek białkowych. Następnie wycięliśmy prążki białkowe z żelu i postąpiliśmy zgodnie z opisanym powyżej protokołem, aby zidentyfikować miejsca oddziaływania białek. Przykład widma sieciowanego dipeptydu przedstawiono na Rycini 3C. Widmo pokazuje serie jonów y dla obu peptydów, co potwierdza to oddziaływanie białkowe. W sumie zidentyfikowano 14 oddziaływań białkowych, w tym cztery sieciowania między podjednostkami RvB1 i RvB2 oraz dwa sieciowania między dwiema kopiami RvB2 (Tabela 2). Wyniki sieciowania BS3 przedstawiono w formie sieci oddziaływań (Rycina 3D), ukazującej oddziaływania wewnątrzmolekularne oraz oddziaływania między różnymi podjednostkami. Sieciowania wewnątrzmolekularne sugerują, że obie podjednostki, RvB1 i RvB2, fałdują się w taki sposób, że domeny N- i C-terminalne znajdują się w bliskim sąsiedztwie. Należy zauważyć, że w tym przypadku oddziaływań wewnątrzmolekularnych nie można odróżnić od oddziaływań międzycząsteczkowych tej samej podjednostki. Zaobserwowano również sieciowania międzycząsteczkowe pomiędzy dwiema podjednostkami. Z nich dwa sieciowania międzycząsteczkowe między RvB1 i RvB2 można było zwizualizować w strukturze, co potwierdza poprawność metody sieciowania. Pozostałe sieciowania międzycząsteczkowe znajdują się w elastycznych pętlach, które nie są zawarte w strukturze krystalicznej. Zidentyfikowaliśmy również dwa sieciowania w RvB2 zawierające te same sekwencje peptydowe. Sieciowania te można jednoznacznie zaklasyfikować jako międzycząsteczkowe, ponieważ muszą one pochodzić z dwóch kopii tego samego białka (Rycina 3D). Nasze eksperymenty z sieciowaniem ujawniły miejsca oddziaływań białek w obrębie kompleksu, ale także wewnątrz podjednostek białkowych, dostarczając informacji o ich organizacji strukturalnej, co mogło zostać potwierdzone za pomocą istniejącej struktury krystalicznej (Rycina 3B).
Drugim badanym przez nas kompleksem białkowym był CPS. Natywne widmo masowe (Rycina 4A) ujawniło trzy kompleksy białkowe o masie od 6 000 do 12 000 m/zNajwiększy kompleks o masie 640 kDa odpowiada nienaruszonemu hetero-oktamerowi. Mniejsze kompleksy reprezentują dwa podkompleksy: dimer małej i dużej podjednostki CPS (160 kDa) oraz hetero-tetramer zawierający po dwie kopie każdej podjednostki (320 kDa). Podkompleksy te dostarczają pierwszych informacji na temat składania białka; t. j.podjednostki duża i mała pozostają w bezpośrednim kontakcie (co ujawnił heterodimer), a tetramer może być produktem dwóch dimerów. Aby uzyskać więcej informacji na temat organizacji strukturalnej w nienaruszonym kompleksie CPS, przeprowadzono tandemową spektrometrię mas (MS/MS) hetero-oktameru oraz hetero-tetrameru. W obu przypadkach podjednostka mała oddzieliła się od prekursora, co sugeruje, że podjednostka mała znajduje się na peryferiach kompleksu (Rysunek 4B). Rzeczywiście, w dostępnej strukturze krystalicznej podjednostka mała znajduje się na obwodzie (Rycina 4C)44.
Przeprowadzono również sieciowanie chemiczne z użyciem sieciującego czynnika BS3. Zastosowanie zwiększających się ilości tego odczynika wzmocniło kowalencyjne wiązania podjednostek CPS. Po trawieniu białek i analizie peptydów zgodnie z opisaną powyżej procedurą, uzyskano wiele interakcji białkowych w obrębie dużej podjednostki oraz jedno sieciowanie w małej podjednostce (Tabela 2). Ponadto, podobnie jak w przypadku kompleksu RvB1/B2, zidentyfikowano dwa międzycząsteczkowe sieciowania pomiędzy dwiema kopiami dużej podjednostki CPS. Sieciowania te wskazują, że dwie duże podjednostki są zwrócone ku sobie swoimi końcami C-terminalnymi. W poprzednim badaniu, łącząc strukturalną spektrometrię mas z modelowaniem obliczeniowym35, zidentyfikowaliśmy trzy dodatkowe interakcje w dużej podjednostce, które najprawdopodobniej pochodzą z powierzchni styku dwóch kopii dużej podjednostki, co zostało potwierdzone przez strukturę krystaliczną oraz uzyskany model (Rysunek 4C i Tabela 2). Interakcje te umożliwiają ułożenie rdzenia kompleksu CPS składającego się z czterech dużych podjednostek. Nie zaobserwowano jednak żadnych między-podjednostkowych sieciowań pomiędzy podjednostkami małymi a dużymi. Analiza dostępnej struktury krystalicznej (Rysunek 4C) wykazuje, że powierzchnia oddziaływania między tetramerycznym rdzeniem kompleksu, składającym się z dużej podjednostki, a peryferyjnymi podjednostkami małymi jest bardzo mała, co może wyjaśniać brak interakcji między-podjednostkowych. Potwierdza to natywna spektrometria mas, która wykazała, że mała podjednostka łatwo dysocjuje z nienaruszonych kompleksów, najprawdopodobniej ze względu na niewielki obszar wiązania. Niemniej jednak, interakcje białkowe w kompleksie CPS, określone na podstawie sieciowania chemicznego i natywnej spektrometrii mas, pozwalają na wywnioskowanie ich układu strukturalnego (Rysunek 4D).
Podsumowując, połączenie natywnej spektrometrii mas i chemicznego sieciowania wraz z identyfikacją sieciowanych peptydów metodą spektrometrii mas pozwala na rekonstrukcję organizacji strukturalnej obu przykładowych kompleksów. Podczas gdy chemiczne sieciowanie ujawniło rozmieszczenie podjednostek białkowych, na przykład oddziaływania między RvB1 a RvB2 lub w obrębie tetramerycznego rdzenia CPS, natywna spektrometria mas dostarczyła informacji o stechiometrii białek w nienaruszonych kompleksach i dominujących podkompleksach. W przypadku CPS, dla którego nie zaobserwowano oddziaływań międzycząsteczkowych pomiędzy dwiema podjednostkami za pomocą chemicznego sieciowania, natywna spektrometria mas sugeruje, że każda duża podjednostka oddziałuje z jedną małą podjednostką (Ryc. 4D). Tandemowa spektrometria mas wskazała na peryferyjną lokalizację małej podjednostki w kompleksie oraz niewielką powierzchnię styku między obiema podjednostkami.
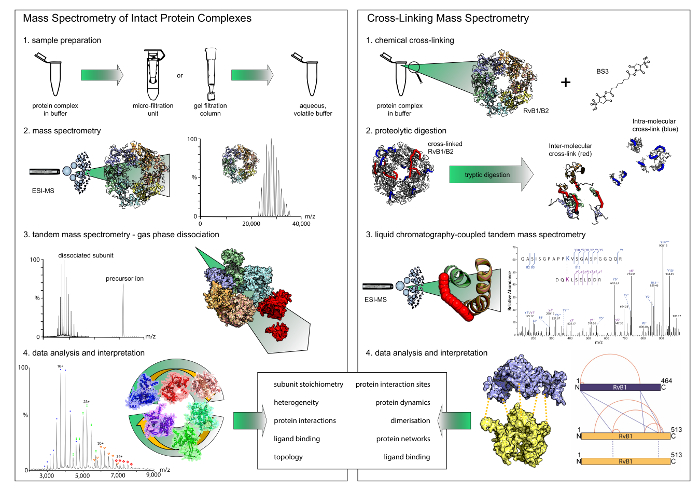
Rycina 1: Schemat natywnej spektrometrii mas i sieciowania. Obie techniki dostarczają uzupełniających się wyników. Podczas gdy natywna spektrometria mas ujawnia stechiometrię i moduły oddziaływań, sieciowanie daje wgląd w miejsca oddziaływań białkowych w obrębie kompleksów. Należy zauważyć, że chemiczne sieciowanie ujawnia jedynie oddziaływania binarne. (A) Pierwszym krokiem w natywnej spektrometrii mas jest wymiana buforu na bufor wodny i lotny przy użyciu jednostek filtrujących lub kolumn do filtracji żelowej. Spektrometria mas nienaruszonych kompleksów białkowych ujawnia następnie ich stechiometrię. W eksperymentach tandemowej spektrometrii mas dochodzi do dysocjacji podjednostek peryferyjnych. (B) W przypadku chemicznego sieciowania kompleks białkowy inkubuje się z odczynnikiem sieciującym. Zsieciowane białka są następnie trawione do peptydów, które są analizowane za pomocą spektrometrii mas sprzężonej z chromatografią cieczową. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 2: SDS-PAGE sieciowanych kompleksów RvB1/B2 (A) i CPS (B). (A) Na każdą ścieżkę żelu nanośono 2.5 µM RvB1/B2. Zmieniano stężenie BS3. Niesieciowane RvB1/B2 wykazuje dwie podjednostki białkowe o masie około 50 kDa. Dodanie BS3 spowodowało kowalencyjne powiązanie podjednostek białkowych, co doprowadziło do powstania pręg białkowych o wyższej masie cząsteczkowej. Ilość form sieciowanych zwiększa się wraz z wyższym stężeniem BS3. Optymalne warunki sieciowania zaznaczono kolorem czerwonym. (B) Na każdą ścieżkę żelu nanośono 10 µM CPS. Uzyskano dużą (90 kDa) i małą (40 kDa) podjednostkę CPS. Dodanie BS3 spowodowało kowalencyjne powiązanie podjednostek białkowych, co doprowadziło do powstania pręg białkowych o wyższej masie cząsteczkowej. Optymalne warunki sieciowania zaznaczono kolorem czerwonym. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 3: Natywna spektrometria mas i chemiczne sieciowanie kompleksu RvB1/B2. (A) Natywne widmo mas wykazuje dwa rodzaje form RvB1/B2; nienaruszony dodekamer (tj. (RvB1)6(RvB2)6) przy około 11 000 do 12 000 m/z oraz pierścień heksameryczny (RvB1)3(RvB2)3 przy około 8 000 m/z. Obie formy wykazują dwie populacje wynikające z obecności RvB2 z tagiem His oraz bez tagu. Widmo zostało zmodyfikowane na podstawie 35. (B) Przedstawiona jest struktura krystaliczna RvB1/B2 (PDB ID 4WVY). Naprzemienne podjednostki RvB1 i RvB2 tworzą dwa pierścienie heksameryczne. (C) Widmo fragmentacji sieciowanego dipeptydu. N-koniec RvB1 został zsieciowany z K23 RvB1. Dla obu peptydów uzyskano serie jonów y (kolor czerwony i cyjan). (D) Oddziaływania wewnątrz- i międzybiałkowe uzyskane w kompleksie RvB1/B2. Sieciowania wewnątrzbiałkowe zaznaczono kolorem czerwonym, a sieciowania międzybiałkowe kolorem niebieskim. Wstawka przedstawia dwa międzycząsteczkowe sieciowania pomiędzy podjednostkami RvB1 i RvB2, które można było zwizualizować w strukturze krystalicznej (kolor zielony, wstawka). Oddziaływania pochodzące z dwóch kopii RvB2 przedstawiono jako niebieskie linie przerywane. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 4: Natywna spektrometria mas i sieciowanie chemiczne CPS. (A) Natywne widmo masowe CPS wykazuje trzy kompleksy. Heterodimer (160 kDa), heterotetramer (320 kDa) oraz heterooktamer (640 kDa). Widmo zostało zmodyfikowane na podstawie opracowania35. (B) Tandemowa spektrometria mas tetramerycznego i oktamerycznego kompleksu CPS ujawniła dysocjację małej podjednostki CPS. (C) Przedstawiono strukturę krystaliczną CPS (PDB ID 1BXR). Duże podjednostki tworzą tetrameryczny rdzeń, a małe podjednostki znajdują się na obwodzie kompleksu. Pokazano międzycząsteczkowe wiązania sieciujące między dwiema kopiami dużej podjednostki (kolor zielony). (D) Oddziaływania dużych i małych podjednostek CPS. Natywna spektrometria mas ujawniła podkompleksy i sugeruje obwodową lokalizację małej podjednostki. Chemiczne wiązania sieciujące wskazują na układ w tetramerycznym rdzeniu CPS. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Tabela 1: Wyniki przeszukiwania bazy danych. Białka zidentyfikowano za pomocą spektrometrii mas sprzężonej z chromatografią cieczową oraz przeszukiwania bazy danych. Podano nazwy białek, numery akcesyjne i opisy, a także masy białek. Wymieniono wyniki punktowe białek, liczbę obserwowanych widm na białko oraz liczbę obserwowanych sekwencji peptydowych. Dla każdej podjednostki białka wymieniono pięć peptydów z najwyższymi wynikami punktowymi w programie Mascot. Kliknij tutaj, aby pobrać ten plik.
Tabela 2: Mostki sieciujące zaobserwowane w RvB1/B2 i CPS. Podano podjednostki kompleksów oraz sieciowane reszty. Typ mostka sieciującego (wewnątrz- lub międzycząsteczkowy) określono na podstawie nakładających się sekwencji peptydowych lub wcześniejszych badań35. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Podano protokoły do analizy strukturalnej opartej na spektrometrii mas wielopodjednostkowych kompleksów białkowych. Obie techniki, opisane w protokole, w większości dostarczają uzupełniających się wyników i są dobrze przystosowane do uzyskania wglądu w układy strukturalne w kompleksach białkowych (-ligandowych), które są trudne do zbadania za pomocą konwencjonalnych technik strukturalnych. Natywna spektrometria mas zapewnia wgląd w stechiometrię białek, a także interakcje białek poprzez analizę podkompleksów i stabilnych modułów interakcji. Z drugiej strony linkowanie krzyżowe daje informacje o miejscach bezpośredniego kontaktu. W zależności od zastosowanego cross-linkera, analiza może lub powinna uwzględniać pewną elastyczność.
Dostarczone protokoły są na ogół łatwe do wykonania i nie są czasochłonne. Cały protokół można wykonać w ciągu tygodnia i można go zastosować do prawie wszystkich kompleksów białkowych, chociaż do pomyślnej analizy wymagana jest pewna ilość kompleksu białkowego. Przygotowanie próbki jest proste i nie wymaga specjalnie oczyszczonych kompleksów białkowych. Jednak jedną z powszechnych pułapek jest zanieczyszczenie próbki podczas przygotowywania próbki do identyfikacji białek na podstawie spektrometrii mas. Zanieczyszczenia te w większości przypadków obejmują keratyny, które pochodzą z kurzu, skóry lub włosów. Dlatego podczas przygotowywania próbki do identyfikacji białek na podstawie spektrometrii mas należy zachować szczególną ostrożność, taką jak noszenie rękawic i fartuchów laboratoryjnych, filtrowanie wodnych i stosowanie rozpuszczalników o wysokiej czystości. Inne białka zanieczyszczające, takie jak białka opiekuńcze, są zwykle wprowadzane podczas oczyszczania białek, np. podczas stosowania znaczników powinowactwa. W takich przypadkach należy usprawnić oczyszczanie białka, na przykład poprzez zwiększenie liczby etapów mycia. W każdym razie zanieczyszczenia białkowe w próbce można łatwo zidentyfikować podczas przeszukiwania bazy danych poprzez pominięcie filtra taksonomii (tj. wyszukiwanie białek ze wszystkich gatunków). Jeśli zaobserwuje się tylko kilka peptydów (tj. można uzyskać niskie pokrycie białkiem), nawet jeśli dostępna jest wystarczająca próbka, może być konieczne użycie innej proteinazy podczas trawienia. Ogólnie rzecz biorąc, trypsyna daje wystarczającą liczbę peptydów; Jednak w niektórych przypadkach, takich jak białka błonowe lub domeny błonowe białek, liczba miejsc rozszczepienia tryptycznego jest zmniejszona, a lepszym wyborem są inne enzymy ukierunkowane na aminokwasy hydrofobowe.
Jeśli chodzi o oprzyrządowanie, wymagany jest specjalnie zmodyfikowany przyrząd do natywnej spektrometrii mas, który utrzymuje oddziaływania niekowalencyjne podczas transferu do fazy gazowej. Wprowadzono kilka typów instrumentów, w tym Q-ToF i instrumenty orbitrapowe. Podczas gdy zmodyfikowane spektrometry mas Q-ToF są dostępne na rynku dla natywnej spektrometrii mas od kilku lat, te ostatnie zostały wprowadzone dopiero niedawno i w większości przypadków wymagają specjalistycznej modyfikacji45. Jednak zastosowanie instrumentów o wysokiej rozdzielczości pozwoliło na zbadanie wiązania wielu ligandów i ich kwantyfikację46,47 i jest obiecujące dla przyszłych zastosowań.
Aby zidentyfikować usieciowane di-peptydy za pomocą spektrometrii mas sprzężonej z chromatografią cieczową, można zastosować standardowe procedury z niewielkimi modyfikacjami. Jednak przeszukiwanie baz danych jest czynnikiem ograniczającym, ponieważ specjalistyczne oprogramowanie rzadko radzi sobie z dużymi bazami danych i wymagane są zredukowane bazy danych zawierające podjednostki białkowe kompleksów. W ostatnich badaniach wykorzystano sieciujące metodą spektrometrii mas ukierunkowane na interakcje białek w lizatach całych komórek48,49. Zastosowanie chemicznych środków sieciujących, które ulegają fragmentacji w eksperymentach tandemowej spektrometrii mas, w większości daje peptydy liniowe (zmodyfikowane przez środek sieciujący), które można zidentyfikować przez dalszą fragmentację i przeszukiwanie bazy danych peptydów liniowych, a to skraca czas wyszukiwania i przestrzeń obliczeniową wyszukiwania. Jednak do przeprowadzenia tych eksperymentów wymagany jest analizator masy z pułapką jonową lub hybrydowy spektrometr masowy z pułapką jonową. Ogólnie rzecz biorąc, ponieważ wyniki fałszywie dodatnie są ważną kwestią, widma masowe usieciowanych peptydów są często weryfikowane ręcznie na podstawie jakości ich widm fragmentów, co znacznie wydłuża czas analizy danych. Opracowanie solidnych systemów punktacji, które można stosować bez dalszych etapów walidacji, jest zatem potencjalnymi przyszłymi zastosowaniami. Jednym ze sposobów na usprawnienie analizy danych i zmniejszenie liczby wyników fałszywie dodatnich było wprowadzenie obliczeń współczynnika fałszywych wykryć i ich zastosowanie do sieciowania zestawów danych50.
Ogólnie rzecz biorąc, opisane tutaj techniki można uzupełnić dalszymi technikami spektrometrii mas (np. znakowaniem kowalencyjnym) w celu zwiększenia wyników analizy. Inne modyfikacje i ulepszenia protokołów można łatwo wdrożyć. W związku z tym porównawcze sieciowanie34 odkrywa zmiany konformacyjne w składaniu białek. Dalszy rozwój natywnej spektrometrii mas pozwala obecnie na analizę białek błonowych51,52 i ich interakcji z lipidami 28,52,53,54. Nowe osiągnięcia spektrometrów masowych o wysokiej rozdzielczości do natywnej spektrometrii mas rozszerzyły zastosowanie, a wiązanie ligandów, np. wiązanie lipidów z białkami błonowymi, może być teraz włączone do analizy45,46. W połączeniu z podejściami do modelowania obliczeniowego, techniki te mogą dostarczyć modele strukturalne o różnej rozdzielczości55. Jeśli nie są dostępne żadne struktury krystaliczne dla nienaruszonego kompleksu lub pojedynczych podjednostek, spektrometria mas może dostarczyć pierwszych informacji na temat interakcji białek i topologii nieznanego kompleksu. W zależności od zastosowanych technik i uzyskanych wyników, można uzyskać modele nieznanego kompleksu o niskiej rozdzielczości 56,57,58. Jeśli dostępne są struktury krystaliczne lub modele homologii, informacje strukturalne otrzymane ze spektrometrii mas mogą dostarczyć nawet modeli zbliżonych donatywnych59.
W porównaniu z innymi technikami strukturalnymi, spektrometria mas ma tę zaletę, że wymaga niewielkich ilości próbek, może radzić sobie z próbkami niejednorodnymi i ma zastosowanie do kompleksów białkowych o nieograniczonej wielkości. Ponadto spektrometria mas pozwala na badanie dynamicznych układów białkowych. Różne populacje białka lub kompleksu białkowego, które istnieją w roztworze, są zwykle analizowane razem, a zatem, w przeciwieństwie do innych technik strukturalnych, które wymagają selekcji określonych populacji, wszystkie konformacje są utrzymywane podczas analizy i można je ocenić w jednym doświadczeniu. Niedawno wprowadzono ilościowe podejścia do sieciowania 34,60,61 i są obiecujące dla przyszłych zastosowań opisujących zmiany konformacyjne w różnych warunkach.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Dziękujemy naszym kolegom za pomocne dyskusje. Dziękujemy również Ilme Schlichting i Karlowi-Peterowi Hopfnerowi za dostarczenie kompleksów białkowych. Potwierdzamy dofinansowanie z Federalnego Ministerstwa Edukacji i Badań Naukowych (BMBF, program ZIK, 03Z22HN22), Europejskiego Funduszu Rozwoju Regionalnego (EFRE, ZS/2016/04/78115) i MLU Halle-Wittenberg dla C.S. oraz finansowanie z Wellcome Trust (109854/658 Z/15/Z) dla A.P.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Chemikalia, odczynniki, materiały eksploatacyjne | |||
| 2-[4-(2-hydroksyetylo)piperazyno-1-ylo]etanosulfonowy kwas (HEPES) | Bufor Sigma Aldrich | H4034 | |
| Kwas octowy | Sigma Aldrich | 695092 | pH |
| Acetonitryl Optima LC/MS | Fisher Chemicals | A955-1 | rozpuszczalnik |
| Amicon Ultra odśrodkowy urządzenia (różne MWCO) | Millipore | tj. | UFC500396 wymiana buforowa, stężenie |
| Roztwór octanu amonu | Sigma Aldrich | A2706 | natywny MS |
| Wodorowęglan amonu | Sigma Aldrich | 9830 | trawienie w żelu |
| Roztwór amonu | Sigma Aldrich | 9859 | pH |
| Bis(Sulfosuccinimidyl)suberate-d0 (BS3-d0) | Thermo Scientific | 21590 | środek sieciujący |
| Bis(Sulfosuccinimidyl)suberate-d4 (BS3-d4) | Thermo Scientific | 21595 | środek sieciujący |
| Jodek cezu | Sigma Aldrich | 203033 | kalibracja |
| Chlorek wapnia | Sigma Aldrich | C5670 | trawienie w żelu |
| Kapilary (1,0 OD i razy; 0,78 ID & razy; 100 L mm) | Aparat Harvarda | 30-0038 | natywny MS |
| Suberat disuccinimidylu (DSS) | Thermo Scientific | 21655 | środek sieciujący |
| DL-Dithiothreitol | Sigma Aldrich | D5545 | trawienie w żelu |
| DMSO (dimetylosulfotlenek) | Rozpuszczalnik Sigma Aldrich | D8418 | |
| Etanol | Fisher Chemicals | BP2818 | |
| rozpuszczalnik Kwas mrówkowy Optima LC/MS | Fisher Chemicals | A117-50 | suplement rozpuszczalnikowy |
| Instant Blue Coomassie roztwór barwiący | expedeon | ISB1L | roztwór barwiący do elektroforezy żelowej |
| Invitrogen NuPAGE 4-12% żele Bis-Tris (1 mm, 10 dołków) | technologie życia | NP0323BOX | elektroforezie żelowej |
| Jodoacetamid | Sigma Aldrich | I1149 | Trawienie w żelu |
| Alkohol izopropylowy, klasa HPLC | Fisher Chemicals | P750717 | rozpuszczalnik |
| Metanol | Fisher Chemicals | A456-212 | rozpuszczalnik |
| Micro BioSpin 6 kolumn | Wymiana buforu | BioRad | 732-6222 |
| Bufor do biegania NuPAGE Antioxidant | invitrogen | NP0005 | , elektroforeza żelowa |
| Bufor do próbek NuPAGE LDS (4 &razy;) | invitrogen | NP0007 | bufor do ładowania próbek (nieredukcyjny) do elektroforezy żelowej |
| NuPAGE MES SDS Technologie żywotności bufora biegowego | NP0001 | elektroforeza żelowa | |
| NuPAGE MOPS SDS Technologie żywotności bufora biegowego | NP0001 | elektroforeza żelowa | |
| NuPAGE Środek redukujący próbki (10 &razy;) | invitrogen | NP0004 | środek redukujący do elektroforezy żelowej |
| PBS - sól fizjologiczna buforowana fosforanami | Bufor Sigma Aldrich | P4417 | |
| SeeBlue Plus2 Prestained Standard Protein Marker | invitrogen | LC5925 | wstępnie barwiony marker białkowy do elektroforezy żelowej |
| Octan sodu | Sigma Aldrich | S2889 | wytrącanie etanolu |
| Tris (hydroksymetyl)aminometan (Tris) | Sigma Aldrich | 252859 bufor | |
| Trypsyna | Sigma Aldrich | TRYPSEQ-RO (11418475001) | trawienie w żelu |
| Urządzenia odśrodkowe Vivaspin (różne MWCO) | Sartorius | tj. VS0101 | wymiana buforowa, stężenie |
| Woda do HPLC | Sigma Aldrich | 270733-2.5L-M | rozpuszczalnik |
| Nazwa | Company< | strong>Numer katalogowy | Komentarze |
| Instrumenty | |||
| Wirówka Heraeus Fresco 21, wirówka stołowa | Thermo Scientific | 75002425 | |
| Płonący / brązowy ściągacz do mikropipet Model P-1000 | Instrumenty Sutter | P-1000 | |
| Komora do elektroforezy żelowej Xcell SureLock MiniCell | Invitrogen | EI0001 | |
| Gold Coater Quorum Q150R S | Quorum Technologies Ltd. | Q150RS | |
| Pozioma wytrząsarka żelowa Rotamax 120 T | Heidolph Instruments | 544-41200-00 | |
| Spektrometr masowy Q-TOF Ultima, ulepszenie wysokiej masy MS Vision | Kolumna | ||
| PepMap (C18, średnica wewnętrzna 75 mm, 50 cm, rozmiar porów 3 mm) | Thermo Scientific | 164570 | |
| kolumna wstępna C18 z odwróconą fazą (C18, średnica wewnętrzna 150 mm, 2 cm, pory 5 mm) | Skalpel Thermo Scientific | 164213 | |
| Fisher Scientifc | 10463989 | ||
| SpeedVac SPD121P wirówka próżniowa | Thermo Scientific | SPD121DP-230 | |
| Thermomixer C | Eppendorf | ||
| AA | Sigma Aldrich | Z680184-1EA | |
| Myjka ultradźwiękowa USC-TH, kąpiel sonikująca | VWR | 142-0084 | |
| System UltiMate Dionex 3000 nano-LC, sprzężony z hybrydowym spektrometrem masowym Q-Exactive plus (źródło nano-ESI) | Thermo Scientific | 0726030+ | |
| Nazwa< | strong>Firma | Numer katalogowy | Komentarze |
| Software, Software Tools, Database search | |||
| Mascot | www.matrixscience.com | ||
| Massign | http://massign.chem.ox.ac.uk | ||
| MassLynx | Micromass | ||
| MassMatrix | Xu, H. J Proteome Res. 9 (2010) | ||
| MaxQuant | Cox, J. Nat. Biotechn. 26 (2008) | ||
| pLink | Yang, B. Nat Methods 9 (2012) | ||
| Narzędzie do konwersji pXtract | http://pfind.ict.ac.cn/downloads.html | ||
| UniDec | Marty, MT Anal. Chem. 87 (2015) | ||
| XCalibur | Thermo Scientific | ||
| XiNET | http://crosslinkviewer.org | ||
| XLinkX | Liu, F. Curr Op Struct Biol 35 (2015) | ||
| xQuest | Rinner, O. Nat Methods 5 (2008) | ||
| Xvis | https://xvis.genzentrum.lmu.de |
Bibliografia
- Campbell, I. D. Timeline: the march of structural biology. Nat Rev Mol Cell Biol. 3 (5), 377-381 (2002).
- Liko, I., Allison, T. M., Hopper, J. T., Robinson, C. V. Mass spectrometry guided structural biology. Curr Opin Struct Biol. 40, 136-144 (2016).
- Robinson, C. V. From molecular chaperones to membrane motors: through the lens of a mass spectrometrist. Biochem Soc Trans. 45 (1), 251-260 (2017).
- Lossl, P., van de Waterbeemd, M., Heck, A. J. The diverse and expanding role of mass spectrometry in structural and molecular biology. EMBO J. 35 (24), 2634-2657 (2016).
- Wang, L., Chance, M. R. Protein Footprinting Comes of Age: Mass Spectrometry for Biophysical Structure Assessment. Mol Cell Proteomics. 16 (5), 706-716 (2017).
- Steen, H., Mann, M. The ABC's (and XYZ's) of peptide sequencing. Nat Rev Mol Cell Biol. 5 (9), 699-711 (2004).
- Olsen, J. V., Mann, M. Status of large-scale analysis of post-translational modifications by mass spectrometry. Mol Cell Proteomics. 12 (12), 3444-3452 (2013).
- Schmidt, C., Robinson, C. V. Dynamic protein ligand interactions--insights from MS. FEBS J. 281 (8), 1950-1964 (2014).
- Marcsisin, S. R., Engen, J. R. Hydrogen exchange mass spectrometry: what is it and what can it tell us? Anal Bioanal Chem. 397 (3), 967-972 (2010).
- Zhang, Z., Smith, D. L. Determination of amide hydrogen exchange by mass spectrometry: a new tool for protein structure elucidation. Protein Sci. 2 (4), 522-531 (1993).
- Leitner, A., Lindner, W. Current chemical tagging strategies for proteome analysis by mass spectrometry. J Chromatogr B Analyt Technol Biomed Life Sci. 813 (1-2), 1-26 (2004).
- Leitner, A., Lindner, W. Chemistry meets proteomics: the use of chemical tagging reactions for MS-based proteomics. Proteomics. 6 (20), 5418-5434 (2006).
- Kiselar, J. G., Chance, M. R. Future directions of structural mass spectrometry using hydroxyl radical footprinting. J Mass Spectrom. 45 (12), 1373-1382 (2010).
- Xu, G., Chance, M. R. Hydroxyl radical-mediated modification of proteins as probes for structural proteomics. Chem Rev. 107 (8), 3514-3543 (2007).
- Liu, F., Heck, A. J. Interrogating the architecture of protein assemblies and protein interaction networks by cross-linking mass spectrometry. Curr Opin Struct Biol. 35, 100-108 (2015).
- Rappsilber, J. The beginning of a beautiful friendship: cross-linking/mass spectrometry and modelling of proteins and multi-protein complexes. J Struct Biol. 173 (3), 530-540 (2011).
- Rinner, O., et al. Identification of cross-linked peptides from large sequence databases. Nat Methods. 5 (4), 315-318 (2008).
- Yang, B., et al. Identification of cross-linked peptides from complex samples. Nat Methods. 9 (9), 904-906 (2012).
- Xu, H., Hsu, P. H., Zhang, L., Tsai, M. D., Freitas, M. A. Database search algorithm for identification of intact cross-links in proteins and peptides using tandem mass spectrometry. J Proteome Res. 9 (7), 3384-3393 (2010).
- Leitner, A., Faini, M., Stengel, F., Aebersold, R. Crosslinking and Mass Spectrometry: An Integrated Technology to Understand the Structure and Function of Molecular Machines. Trends Biochem Sci. 41 (1), 20-32 (2016).
- Heck, A. J. Native mass spectrometry: a bridge between interactomics and structural biology. Nat Methods. 5 (11), 927-933 (2008).
- Sharon, M., Robinson, C. V. The role of mass spectrometry in structure elucidation of dynamic protein complexes. Annu Rev Biochem. 76, 167-193 (2007).
- Goth, M., Pagel, K. Ion mobility-mass spectrometry as a tool to investigate protein-ligand interactions. Anal Bioanal Chem. , (2017).
- Uetrecht, C., Rose, R. J., van Duijn, E., Lorenzen, K., Heck, A. J. Ion mobility mass spectrometry of proteins and protein assemblies. Chem Soc Rev. 39 (5), 1633-1655 (2010).
- Hernandez, H., Robinson, C. V. Determining the stoichiometry and interactions of macromolecular assemblies from mass spectrometry. Nat Protoc. 2 (3), 715-726 (2007).
- Sobott, F., Hernandez, H., McCammon, M. G., Tito, M. A., Robinson, C. V. A tandem mass spectrometer for improved transmission and analysis of large macromolecular assemblies. Anal Chem. 74 (6), 1402-1407 (2002).
- Rostom, A. A., et al. Detection and selective dissociation of intact ribosomes in a mass spectrometer. Proc Natl Acad Sci U S A. 97 (10), 5185-5190 (2000).
- Zhou, M., et al. Mass spectrometry of intact V-type ATPases reveals bound lipids and the effects of nucleotide binding. Science. 334 (6054), 380-385 (2011).
- Uetrecht, C., et al. High-resolution mass spectrometry of viral assemblies: molecular composition and stability of dimorphic hepatitis B virus capsids. Proc Natl Acad Sci U S A. 105 (27), 9216-9220 (2008).
- Morgner, N., et al. Hsp70 forms antiparallel dimers stabilized by post-translational modifications to position clients for transfer to Hsp90. Cell Rep. 11 (5), 759-769 (2015).
- Schmidt, C., Beilsten-Edmands, V., Robinson, C. V. The joining of the Hsp90 and Hsp70 chaperone cycles yields transient interactions and stable intermediates: insights from mass spectrometry. Oncotarget. 6 (21), 18276-18281 (2015).
- Schmidt, C., Beilsten-Edmands, V., Mohammed, S., Robinson, C. V. Acetylation and phosphorylation control both local and global stability of the chloroplast F1 ATP synthase. Sci Rep. 7, 44068(2017).
- Schmidt, C., et al. Comparative cross-linking and mass spectrometry of an intact F-type ATPase suggest a role for phosphorylation. Nat Commun. 4, 1985(2013).
- Schmidt, C., Robinson, C. V. A comparative cross-linking strategy to probe conformational changes in protein complexes. Nat Protoc. 9 (9), 2224-2236 (2014).
- Schmidt, C., et al. Surface Accessibility and Dynamics of Macromolecular Assemblies Probed by Covalent Labeling Mass Spectrometry and Integrative Modeling. Anal Chem. 89 (3), 1459-1468 (2017).
- Lakomek, K., Stoehr, G., Tosi, A., Schmailzl, M., Hopfner, K. P. Structural basis for dodecameric assembly states and conformational plasticity of the full-length AAA+ ATPases Rvb1 · Rvb2. Structure. 23 (3), 483-495 (2015).
- Mareya, S. M., Raushel, F. M. A molecular wedge for triggering the amidotransferase activity of carbamoyl phosphate synthetase. Biochemistry. 33 (10), 2945-2950 (1994).
- Shevchenko, A., Wilm, M., Vorm, O., Mann, M. Mass spectrometric sequencing of proteins silver-stained polyacrylamide gels. Anal Chem. 68 (5), 850-858 (1996).
- Olsen, J. V., et al. Parts per million mass accuracy on an Orbitrap mass spectrometer via lock mass injection into a C-trap. Mol Cell Proteomics. 4 (12), 2010-2021 (2005).
- Cox, J., Mann, M. MaxQuant enables high peptide identification rates, individualized p.p.b.-range mass accuracies and proteome-wide protein quantification. Nat Biotechnol. 26 (12), 1367-1372 (2008).
- Kirshenbaum, N., Michaelevski, I., Sharon, M. Analyzing large protein complexes by structural mass spectrometry. J Vis Exp. (40), (2010).
- Morgner, N., Robinson, C. V. Massign: an assignment strategy for maximizing information from the mass spectra of heterogeneous protein assemblies. Anal Chem. 84 (6), 2939-2948 (2012).
- Marty, M. T., et al. Bayesian deconvolution of mass and ion mobility spectra: from binary interactions to polydisperse ensembles. Anal Chem. 87 (8), 4370-4376 (2015).
- Thoden, J. B., Wesenberg, G., Raushel, F. M., Holden, H. M. Carbamoyl phosphate synthetase: closure of the B-domain as a result of nucleotide binding. Biochemistry. 38 (8), 2347-2357 (1999).
- Rose, R. J., Damoc, E., Denisov, E., Makarov, A., Heck, A. J. High-sensitivity Orbitrap mass analysis of intact macromolecular assemblies. Nat Methods. 9 (11), 1084-1086 (2012).
- Gault, J., et al. High-resolution mass spectrometry of small molecules bound to membrane proteins. Nat Methods. 13 (4), 333-336 (2016).
- Mehmood, S., et al. Mass spectrometry captures off-target drug binding and provides mechanistic insights into the human metalloprotease ZMPSTE24. Nat Chem. 8 (12), 1152-1158 (2016).
- Kaake, R. M., et al. A new in vivo cross-linking mass spectrometry platform to define protein-protein interactions in living cells. Mol Cell Proteomics. 13 (12), 3533-3543 (2014).
- Liu, F., Rijkers, D. T., Post, H., Heck, A. J. Proteome-wide profiling of protein assemblies by cross-linking mass spectrometry. Nat Methods. 12 (12), 1179-1184 (2015).
- Walzthoeni, T., et al. False discovery rate estimation for cross-linked peptides identified by mass spectrometry. Nat Methods. 9 (9), 901-903 (2012).
- Barrera, N. P., Di Bartolo, N., Booth, P. J., Robinson, C. V. Micelles protect membrane complexes from solution to vacuum. Science. 321 (5886), 243-246 (2008).
- Barrera, N. P., et al. Mass spectrometry of membrane transporters reveals subunit stoichiometry and interactions. Nat Methods. 6 (8), 585-587 (2009).
- Laganowsky, A., et al. Membrane proteins bind lipids selectively to modulate their structure and function. Nature. 510 (7503), 172-175 (2014).
- Marcoux, J., et al. Mass spectrometry reveals synergistic effects of nucleotides, lipids, and drugs binding to a multidrug resistance efflux pump. Proc Natl Acad Sci U S A. 110 (24), 9704-9709 (2013).
- Politis, A., Schmidt, C. Structural characterisation of medically relevant protein assemblies by integrating mass spectrometry with computational modelling. J Proteomics. , (2017).
- Hall, Z., Politis, A., Robinson, C. V. Structural modeling of heteromeric protein complexes from disassembly pathways and ion mobility-mass spectrometry. Structure. 20 (9), 1596-1609 (2012).
- Pukala, T. L., et al. Subunit architecture of multiprotein assemblies determined using restraints from gas-phase measurements. Structure. 17 (9), 1235-1243 (2009).
- Politis, A., et al. Topological models of heteromeric protein assemblies from mass spectrometry: application to the yeast eIF3:eIF5 complex. Chem Biol. 22 (1), 117-128 (2015).
- Politis, A., et al. A mass spectrometry-based hybrid method for structural modeling of protein complexes. Nat Methods. 11 (4), 403-406 (2014).
- Fischer, L., Chen, Z. A., Rappsilber, J. Quantitative cross-linking/mass spectrometry using isotope-labelled cross-linkers. J Proteomics. 88, 120-128 (2013).
- Yu, C., et al. Developing a Multiplexed Quantitative Cross-Linking Mass Spectrometry Platform for Comparative Structural Analysis of Protein Complexes. Anal Chem. 88 (20), 10301-10308 (2016).
Przedruki i uprawnienia
