Zaprojektowaliśmy białko kapsydu wirusa zapalenia wątroby typu E jako nanocząstkę teranostyczną (HEVNP). HEVNP samoorganizuje się w stabilną klatkę dwudziestościenną podczas dostarczania błony śluzowej. W tym miejscu opisujemy modyfikację HEVNP do celowania w guz poprzez mutację reszt wystawionych na powierzchni do cystein, które sprzęgają syntetyczne ligandy, które specyficznie wiążą komórki nowotworowe.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Funkcjonalizacja powierzchni nanocząstek wirusa zapalenia wątroby typu E przy użyciu metod koniugacji chemicznej
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Wirusopodobne cząsteczki (VLP) były używane jako nanonośniki do wyświetlania obcych epitopów i/lub dostarczania małych cząsteczek w wykrywaniu i leczeniu różnych chorób. Ta aplikacja opiera się na modyfikacji genetycznej, samoorganizacji i koniugacji cysteiny w celu spełnienia ukierunkowanej na nowotwór aplikacji rekombinowanych VLP. W porównaniu z samą modyfikacją genetyczną, chemiczna koniugacja obcych peptydów z VLP oferuje znaczną przewagę, ponieważ pozwala na sprzężenie różnych jednostek, takich jak syntetyczne peptydy lub oligosacharydy, z powierzchnią VLP w modulowany i elastyczny sposób bez zmiany zespołu VLP.
Tutaj pokazujemy, jak używać nanocząsteczki wirusa zapalenia wątroby typu E (HEVNP), modularyzowanej kapsułki teranostycznej, jako wielofunkcyjnego nośnika dostawczego. Funkcje HEVNP obejmują celowanie w tkanki, obrazowanie i dostarczanie terapeutyczne. Opierając się na ugruntowanych badaniach strukturalnych HEVNP, strukturalnie niezależne i odsłonięte powierzchniowo reszty wybrano do zastąpienia cysteiny jako miejsca koniugacji grup chemicznych związanych z maleimidem za pośrednictwem wiązań tiolowo-selektywnych. Jeden szczególny HEVNP zmodyfikowany cysteiną (zamiennik Cys asparaginy przy 573 aa (HEVNP-573C)) został sprzężony z ligandem specyficznym dla komórek raka piersi, LXY30 i znakowany barwnikiem fluorescencyjnym bliskiej podczerwieni (NIR) (Cy5.5), dzięki czemu HEVNP ukierunkowane na nowotwór stały się skutecznymi kapsułkami diagnostycznymi (LXY30-HEVNP-Cy5.5). Podobne strategie inżynieryjne można zastosować w przypadku innych kompleksów makromolekularnych o dobrze znanych strukturach atomowych w celu zbadania potencjalnych zastosowań w dostarczaniu teranostycznym.
Wprowadzenie
Rozwój nano-rozmiarowych wektorów w dostarczaniu terapeutycznym i diagnostycznym, znanych jako nanotheranostics, przesunął znaczną część dziedziny biomedycyny z leczenia uogólnionego na ukierunkowane dostarczanie1. Ukierunkowane dostarczanie nanotheranostyczne integruje nanowektory (nanocząstki) z cząsteczkami teriologicznymi, aby stabilnie skierować cząsteczki teranostyczne do określonej chorej tkanki lub szlaku biochemicznego2,3,4. Nanomedycyna wysunęła się na czoło w dziedzinie celowanego dostarczania, ponieważ nanocząstki o optymalnej wielkości mają zdolność stabilizowania krążenia cząsteczek teranostycznych i selektywnego celowania w cząsteczki na powierzchni komórek prezentujących się na chorych tkankach. Wiele platform nanoanotycznych nadal cierpi z powodu biernego wychwytu komórek, przedwczesnej degradacji, toksyczności i niewystarczającego związku z cząsteczkami teranostycznymi. VLP pokonują wiele z tych przeszkód w ukierunkowanej dostawie. Zostały one użyte jako nanonośniki do wyświetlania obcych epitopów i/lub dostarczania małych cząsteczek: schemat, który może być stosowany do zwalczania wielu chorób1. Aplikacja ta opiera się głównie na właściwości samoorganizacji, a także na łatwości modyfikacji genetycznych, aby spełnić zaprojektowaną aplikację dla danego VLP. W porównaniu z inżynierią genetyczną, chemiczna koniugacja obcych peptydów do VLP wykazuje znaczną przewagę, ponieważ pozwala na sprzężenie wielu różnych jednostek, takich jak peptydy lub oligosacharydy, z powierzchnią VLP w sposób modulowany i elastyczny bez zmiany składania VLP.
HEVNPs, pochodzące z rekombinowanego białka kapsydu HEV,2 nd open reading frame (ORF2), są niezakaźnymi, samoorganizującymi się kapsydami zdolnymi do wiązania komórek i wnikania. Ponieważ HEV wyewoluował do transmisji przez błonę śluzową, złożone białko kapsydu jest podobnie stabilne w proteolitycznych i kwaśnych warunkach błony śluzowej5. HEVNP tworzą pusty w środku, T = 1 dwudziestościenny kapsyd, złożony z 60 identycznych jednostek6,7 ORF2, dzięki czemu jest wysoce stabilny zarówno podczas przechowywania, jak i w trudnych warunkach fizjologicznych. Ze względu na brak jakichkolwiek elementów genetycznych wirusa, wydajną, wysokowydajną produkcję osiąga się dzięki systemowi ekspresji bakulowirusa w komórkach owadów. Ze względu na ich stabilność proteolityczną, samoorganizujące się HEVNP są ekstrahowane i oczyszczane z supernatantu komórkowego, co znacznie zmniejsza liczbę niezbędnych etapów oczyszczania. Dodatkowo HEVNP posiadają domenę wystającą odsłoniętą powierzchnię (domenę P) połączoną za pomocą elastycznego zawiasu ze stabilną dwudziestościenną podstawą. Domena P tworzy odsłonięte powierzchniowo kolce na szczycie dwudziestościennej podstawy, podczas gdy elastyczny zawias umożliwia znaczną modyfikację domeny P bez naruszania struktury dwudziestościennej podstawy. Dzięki 60 powtarzającym się jednostkom, modyfikacja specyficzna dla pojedynczego miejsca daje w wyniku 60 symetrycznych miejsc do modulacji chemicznej. Niedawno zaproponowaliśmy nanoplatformę wykorzystującą HEVNP, która może chemicznie sprzężać ligandy lub małe cząsteczki do zastosowań teranostycznych. Osiągnięto to poprzez zastąpienie pojedynczego aminokwasu cysteiną w domenie protruzji HEV-VLP jako miejsca reakcji peptydami lub cząsteczkami związanymi z maleimidem. Na podstawie wcześniejszej analizy strukturalnej HEV-VLP i dobrze zbadanych epitopów immunogennych8,9, następujące pięć aminokwasów HEV-VLP zastąpiono cysteiną jako potencjalnych kandydatów: Y485C, T489C, S533C, N573C i T586C (Rysunek 1). Po ekspresji i oczyszczeniu z komórek owadów, ich formacje VLP potwierdzono za pomocą obserwacji transmisyjnej mikroskopii elektronowej (TEM) (ryc. 2), a odsłonięte miejsca cysteiny analizowano za pomocą Western blot po koniugacji biotyny związanej z maleimidem (ryc. 2). Spośród pięciu mutantów, HEVNP-573C wykazywał najsilniejszy sygnał koniugacji maleimid-biotyna (Figura 2) i został wykorzystany do dalszej demonstracji jako nanonośnik do celowania w komórki raka piersi 4 (Figura 3).
Ten protokół przedstawia metody koniugacji chemicznej do łączenia cząsteczek ukierunkowanych na nowotwór z HEVNP poprzez koniugację cysteiny powierzchniowej. Szczegółowo opisujemy koniugację cząsteczek celujących i wykrywających guz w celu dostarczania guza z rekombinowanymi HEVNP zawierającymi cysteinę w N573 (HEVNP-573C). Skupiliśmy się na dwuetapowym procesie koniugacji chemii metodą kliknięcia w celu powiązania peptydu ukierunkowanego na guz piersi, LXY3010 z HEVNP w celu utworzenia LXY30-HEVNP (Figura 4). Następnie N-hydroksysukcymid (NHS)-Cy5.5 sprzężono z oddzielnym miejscem Lys na HEVNP w celu zbudowania LXY30-HEVNP-Cy5.5 do wykrywania fluorescencyjnego zarówno in vitro (Figura 5), jak i in vivo4.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Produkcja HEVNP w komórkach owadziej
UWAGA: Wszystkie poniższe kroki powinny być wykonywane w dygestorium do hodowli komórkowych. Szczegółowe procedury produkcji HEVNP opisano w naszej poprzedniej publikacji11.
- Hodować komórki Sf9 w pożywce do komórek owadziego (patrz Tabela Materiałów) do uzyskania 50 - 75% konfluencji w płytkach 6-dołkowych.
- Używając odczynników do transfekcji komórek owadziego zgodnie z protokołami producenta, przeprowadzić transfekcję Bacmidów zawierających HEVNP-573C ORF2 do komórek Sf9 w celu otrzymania rekombinowanego bakulowirusa. Inkubować transfekowane komórki w temperaturze 27 °C przez 3 - 6 dni, w zależności od żywotności komórek.
- Zebrać supernatant w 3 - 6 dni po infekcji (po lizie transfekowanych komórek w wyniku infekcji bakulowirusem) jako zapas bakulowirusa P0.
- Usunąć pożywkę hodowlaną przed naniesieniem 200 µL zapasu P0 na komórki Sf9 o konfluencji 50 - 75% w kolbie z monowarstwą o powierzchni 25 cm2 . Kołysać kolbą co 15 min, aby zapewnić pełne pokrycie inokulum. Powtórzyć 4 razy, łącznie przez 60 min.
- Dodać 2 mL pożywki do hodowli komórek owadziego do kolby i przechowywać w temperaturze 27 °C przez 3 - 6 dni, w zależności od żywotności komórek, aby namnożyć bakulowirusa do wyższego miana.
- Przeprowadzić testy plackowe w celu oznaczenia miana bakulowirusa12.
- Hodować zawiesinę komórek owadziego Tn5 (Tabela Materiałów) w 100 mL pożywki dla komórek owadziego w kolbie 250 mL i inkubować w temperaturze 27 °C przy 150 rpm do uzyskania miana 0,5 x 10⁵ - 1 x 10⁶ do inokulacji.
- Dodać bakulowirusa z wielokrotnością infekcji (MOI) wynoszącą 5 - 10 do 100 mL komórek Tn5 w kolbie 250 mL. Po inokulacji inkubować w temperaturze 27 °C przy 150 rpm przez 5 - 7 dni.
- Gdy większość komórek wykaże obecność pęcherzyków, a pod mikroskopem optycznym stwierdzona zostanie śmierć 70 - 90% komórek, zebrać komórki Tn5 i przenieść do probówek do ultrawirowania o pojemności 33 mL. Umieścić probówki w rotorach z koszykami wahadłowymi, zrównoważyć i odwirować szczątki komórkowe oraz rekombinowane bakulowirusy przy 10 000 x g przez 90 min w temperaturze 25 °C.
- Przechowywać supernatant zawierający uwolnione HEVNPs w temperaturze 4 °C do dalszej puryfikacji. Do długotrwałego przechowywania supernatantu bakulowirusowego dodać inhibitory proteaz.
2. Oczyszczanie HEVNP
- Wycentryguj i wyizoluj HEVNPs za pomocą rozdziału w gradiencie chlorku cezu (CsCl):
- Przenieś zebrany supernatant (z kroku 1.10) i dodaj do każdej probówki 20% NP-40, aby uzyskać stężenie końcowe 0,5% NP-40 w celu rozpuszczenia pozostałych błon komórkowych. Delikatnie wymieszaj pipetą i inkubuj przez co najmniej 30 min w 25 °C.
- Poddaj HEVNPs ultrawirowaniu przy 112 400 x g w rotorach z koszykami odchylanymi przez 2 h w 4 °C, aby uciąć HEVNPs z supernatantu. Po wirowaniu odlej supernatant i delikatnie resuspenduj surowy osad w 200 µL buforu MES 10 mM o pH 6,2 w każdej probówce przez noc (O/N) w 4 °C. Przeprowadź elektroforezę SDS-PAGE (krok 3.1), aby potwierdzić obecność białka HEVNP ORF2 w surowym osadzie w postaci prążka o masie 52 kDa.
- Przygotuj gradient 38,5% (w/v) CsCl, mieszając 1,96 g CsCl, resuspendowany surowy osad oraz ~4 mL 0,01 M MES pH 6,2 w probówce do ultrawirowania o pojemności 5 mL. Zrównoważ probówki i umieść je w rotorze z koszykami odchylanymi. Wirowaj w ultrawirowarce przy 147 000 x g przez 16 h w 4 °C.
- Zbierz frakcje po gradiencie CsCl:
- Odlej górną frakcję o objętości 500 µL, która składa się głównie z lekkich fragmentów błon komórkowych. Zbieraj frakcje po 500 µL, zaczynając od góry probówki, wymieniając końcówki między każdą frakcją. Umieść każdą frakcję w ponumerowanych/oznaczonych probówkach 1,5 mL.
UWAGA: Obecności HEVNP ORF2 we frakcjach rozdzielonych w gradiencie CsCl nie można wykryć za pomocą żeli SDS-PAGE ze względu na wysokie stężenie CsCl. CsCl w każdej frakcji można usunąć lub rozcieńczyć, stosując procedurę oczyszczania z CsCl. Alternatywnie, gradient CsCl można zastąpić gradientem sacharozy 10–40%13, aby uniknąć pozostałości CsCl. - Przenieś każdą frakcję do probówki do ultrawirowania o pojemności 5 mL i rozcieńcz CsCl w 4,5 mL 10 mM MES, pH 6,2. Zrównoważ probówki i umieść je w rotorze z koszykami odchylanymi. Wirowaj w ultrawirowarce przy 147 000 x g przez 2 h w 4 °C, aby uciąć HEVNPs.
- Odlej supernatant i delikatnie resuspenduj HEVNPs w 100 µL 10 mM MES pH 6,2 w każdej probówce. Przykryj probówki, aby zapobiec parowaniu, i inkubuj O/N w 4 °C.
- Zapisz odczyt A280 oraz stosunek A260/A280 nm za pomocą spektrofotometru. Wyznacz przybliżone stężenie ORF2 zgodnie z wzorem:
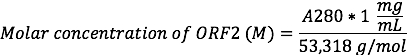
Każda cząsteczka ORF2 będzie zawierać 1 miejsce Cys i 1 miejsce Lys do koniugacji chemicznej.
UWAGA: Molarny współczynnik ekstynkcji HEVNP ORF2 wynosi 60 280, co odpowiada 1,019 mg/mL × A280. Jest to wartość tak bliska stosunkowi 1:1, że stężenie HEVNPs (w mg/mL) można przybliżyć za pomocą A280, a tym samym stężenie ORF2 za pomocą powyższego równania. Na przykład, HEVNP z odczytem A280 równym 1 będzie miało stężenie 1 mg/mL, co odpowiada 18,8 µM ORF2. - Przygotuj analizę SDS-PAGE. Użyj próbki 6 µL z każdej frakcji, aby wyznaczyć frakcje zawierające białko HEVNP ORF2 o masie 53,3 kDa (krok 3.1). HEVNPs powinny znajdować się w frakcjach 3–5, przy gęstości ~1,25 g/mL.
- Potwierdź obecność i czystość HEVNPs za pomocą obserwacji TEM. Przygotuj lub rozcieńcz próbki HEVNP do stężenia 0,5–2,0 mg/mL dla TEM. HEVNPs w TEM wyglądają jak puste białka ikosaedryczne o średnicy ~27 nm (Rysunek 2). Niektóre zanieczyszczenia białkowe mogą pozostać we frakcjach i będą widoczne pod TEM (krok 3.2).
- Odlej górną frakcję o objętości 500 µL, która składa się głównie z lekkich fragmentów błon komórkowych. Zbieraj frakcje po 500 µL, zaczynając od góry probówki, wymieniając końcówki między każdą frakcją. Umieść każdą frakcję w ponumerowanych/oznaczonych probówkach 1,5 mL.
- W przypadku obecności zanieczyszczeń w obrazach TEM, powtórz kroki 2.1.3–2.2.6 w celu uzyskania lepszej czystości HEVNPs.
UWAGA: Dodatkowe oczyszczanie w gradiencie CsCl może spowodować utratę wydajności HEVNPs. Alternatywnie, oczyszczanie w gradiencie CsCl można zastąpić gradientem sacharozy 10–40%, aby uniknąć pozostałości CsCl13.
3. Charakterystyka HEVNP
- Przygotować żele białkowe SDS-PAGE 4-12% Bis-Tris, 1,0 mm, 17-dołkowe (patrz Tabela materiałów) zgodnie z instrukcją obsługi14:
- Do 6 µL próbki białka dodać 2 µL 4x buforu do nakładania. Inkubować mieszaninę w bloku grzewczym przez 10 min w temperaturze 100 °C w celu denaturacji białka. Nałożyć próbki białek na żel.
- Przeprowadzić elektroforezę SDS-PAGE, ustawiając zasilacz DC na 100 V przez 10 min, a następnie na 150 V przez 45 min, aż próbki przesuną się na odległość około 1 cm powyżej dolnej krawędzi żelu.
- Barwić żel SDS-PAGE Coomassie blue (0,25% (w/v) Coomassie Brilliant Blue R250, 30% (v/v) metanol, 10% (v/v) kwas octowy) przez 1 h.
- Po zakończeniu barwienia usunąć barwnik Coomassie blue i nałożyć bufor odbarwiający (30% (v/v) metanol, 10% (v/v) kwas octowy) na żel białkowy na >12 h w temperaturze pokojowej.
- Udokumentować żel w świetle białym, aby potwierdzić obecność HEVNP ORF2 na wysokości pasma 52 kDa.
- Obserwować HEVNPs przy użyciu TEM.
- Przygotować lub rozcieńczyć próbki HEVNP do stężenia 0,5 - 2 mg/mL w 10 mM MES pH 6.2 do obrazowania TEM.
- Zjonizować siatki powlekane węglem za pomocą wyładowań żarowych (glow discharge) prądem 40 mA przez 30 s, aby uzyskać hydrofilową powierzchnię węglową. Urządzenie do generowania wyładowań żarowych opisano w Tabeli materiałów.
UWAGA: Hydrofilowa powierzchnia węglowa siatek zachowuje swoje właściwości jedynie przez 30 min po obróbce wyładowaniami żarowymi. - Trzymając siatkę pęsetą, nanieść 2 µL próbki HEVNP na siatkę, odczekać 15 - 30 s, a następnie osuszyć papierem filtracyjnym.
- Niezwłocznie przemyć siatkę wodą ddH20 i osuszyć papierem filtracyjnym.
- Niezwłocznie nanieść 2 µL 2% octanu uranylu na siatkę, odczekać 15 s, a następnie osuszyć papierem filtracyjnym. Osuszyć siatki z próbkami, umieszczając je w elektronicznej szafie osuszającej przez noc (O/N).
- Przenieść siatkę do TEM i obrazować przy powiększeniu 10-80k. HEVNPs w TEM pojawiają się jako puste białka ikosaedryczne o średnicy ~27 nm, co wynika z braku wirusowego RNA.
4. Chemiczne sprzęganie HEVNPs z biotyną, ligandem celującym w nowotwór oraz fluoroforami
- Przeprowadzenie jednowypadkowej koniugacji HEVNP z biotyną sprzężoną z maleimidem.
- Wymiana buforu: Umieścić HEVNP w mini jednostkach dializacyjnych i dializować przeciwko 0,01 M PBS pH 7,4 w temperaturze pokojowej przez 1 h zgodnie z protokołem producenta (Tabela materiałów). Przenieść HEVNP do probówek 1,5 mL i zmierzyć stężenie białka przy 280 nm za pomocą spektrofotometru.
- Zmieszać HEVNP o stężeniu 1 mg/mL, co odpowiada 18,8 µM miejsc reakcyjnych Cys (szczegóły w kroku 2.2.4), z równą ilością maleimidu-biotyny (100 µM) w 0,01 M PBS, pH 7,4, aby uzyskać stosunek molowy 1:5; inkubować przez noc (O/N) w 4 °C. Usunąć niezwiązaną biotynę-maleimid za pomocą kolumny do odsalania Spin Desalting 40 K MWCO zgodnie z protokołem producenta (Tabela materiałów).
- Przeanalizować próbki za pomocą standardowego redukującego SDS-PAGE (krok 3.1).
- Zgodnie ze standardowymi procedurami przygotować chemiluminescencyjny Western Blot z użyciem streptawidyny sprzężonej z HRP. Rejestrować sygnał chemiluminescencyjny na filmie rentgenowskim (Rysunek 2).
- Przeprowadzenie dwuetapowej koniugacji LXY30 z cysteiną wyeksponowaną na powierzchni HEV NP (Rysunek 5).
- Wymiana buforu: Umieścić HEVNP w mini jednostkach dializacyjnych i dializować przeciwko 0,01 M PBS pH 7,4 w temperaturze pokojowej przez 1 h. Przenieść HEVNP do probótek 1,5 mL i zmierzyć stężenie białka przy 280 nm za pomocą spektrofotometru.
- Dodać 650 µM maleimidu-azydku oraz 650 µM alkini-LXY3010 w 0,01 M PBS pH 7,4 z 200 µM CuSO4 i 1 mM kwasem askorbinowym, aby utworzyć LXY30 sprzężony z maleimidem (Mal-LXY30) o stężeniu 650 µM. Inkubować mieszaninę w 4 °C przez noc (O/N).
- Zmieszać HEVNP o stężeniu 1 mg/mL, co odpowiada 18,8 µM miejsc reakcyjnych Cys (szczegóły w kroku 2.2.4), z około 10% objętości Mal-LXY30 (650 µM) w 0,01 M PBS pH 7,4, aby uzyskać stosunek molowy 1:3; inkubować przez noc (O/N) w 4 °C.
UWAGA: Ze względu na stosunkowo wysokie stężenie Mal-LXY30, końcowe stężenia reagentów, takich jak CuSO4, zostają zmniejszone około 10-krotnie po zmieszaniu, aby uniknąć uszkodzenia HEVNP. Inną opcją jest metoda koniugacji bez użycia miedzi (Cu-free)15. - Usunąć niezwiązany maleimid-click-LXY30 za pomocą kolumny do odsalania Spin Desalting 40 K MWCO zgodnie z protokołem producenta (patrz. Tabela materiałów). Przechowywać HEVNP sprzężone z LXY30 (LXY30-HEVNP) w 4 °C.
- Przeprowadzenie jednowypadkowej koniugacji LXY30-HEVNP z estrem NHS Cy5.5 (NHS-Cy5.5)
- Zmieszać HEVNP sprzężone z LXY30 (LXY30-HEVNP) o stężeniu 1 mg/mL, co odpowiada 18,8 µM miejsc reakcyjnych Cys (szczegóły w kroku 2.2.4), z równą objętością NHS-Cy5.5 (100 µM) w 0,01 M PBS pH 7,4, aby uzyskać stosunek molowy 1:5; inkubować przez noc (O/N) w 4 °C.
- Usunąć niezwiązany Cy5.5-NHS za pomocą kolumny do odsalania Spin Desalting 40K MWCO zgodnie z protokołem producenta (patrz. Tabela materiałów). Przechowywać HEVNP sprzężone z LXY30 i Cy5.5 (LXY30-HEVNP-Cy5.5) w 4 °C.
5. Wiązanie i internalizacja HEVNP w komórkach raka piersi MDA-MB231
- Wysiać komórki raka piersi MDA-MB231 do szalek z szklanym dnem o średnicy 35 mm (5 x 10⁴ na szalkę) i inkubować przez noc (O/N) w inkubatorze do hodowli komórek ssaków.
- W celu przeprowadzenia eksperymentu wiązania komórkowego przygotować LXY30-HEVNP-Cy5.5 zgodnie z krokami 4.2 – 4.3. Rozcieńczyć LXY30-HEVNP-Cy5.5 do stężenia 0,01 mg/mL, co odpowiada 0,188 µM HEVNP ORF2 (patrz krok 2.2.4), w 250 µL DMEM z 0–1% FBS.
- Przygotować próbkę kontrolną ujemną o stężeniu 0,01 mg/mL HEVNP-Cy5.5 zgodnie z krokiem 4.3, stosując jednak wyłącznie koniugację z barwnikiem NHS-Cy5.5 (HEV-Cy5.5). Rozcieńczyć HEVNP-Cy5.5 do stężenia 0,01 mg/mL, co odpowiada 0,188 µM HEVNP ORF2 (patrz krok 2.2.4), w 250 µL DMEM uzupełnionego o 10% FBS.
- Przemyć komórki raz, aplikując 250 µL buforu PBS 1 M o pH 7,4. Po przemyciu usunąć bufor PBS, pozostawiając niewielką jego ilość w szalce hodowlanej.
- Do hodowlanych komórek raka piersi MDA-MB231 dodać 250 µL LXY30-HEVNP-Cy5.5 w DMEM z 10% FBS lub 250 µL HEVNP-Cy5.5 w DMEM z 10% FBS. Osłonić szalki z hodowlą komórek przed światłem za pomocą folii aluminiowej.
- Inkubować szalki z hodowlą w inkubatorze do hodowli komórek w temperaturze 37 °C przez 1 h w celu internalizacji.
- Przemyć hodowlane komórki w lodzie 3 razy, przez 5 min na każde mycie, używając 250 µL PBS 1 M o pH 7,4.
- Utrwalić komórki w 4% PFA w PBS 1 M o pH 7,4 przez 20 min, a następnie przemyć raz 250 µL PBS 1 M o pH 7,4.
UWAGA: Komórki są teraz gotowe do obrazowania za pomocą mikroskopu konfokalnego. Reprezentatywne dane przedstawiono na Rysunku 5.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Podobnie jak w przypadku HEV-VLP, wszystkie zmodyfikowane Cys HEVNP tworzyły rozpuszczalne kapsydy ikosaedryczne i nie agregowały w roztworze podczas produkcji ani oczyszczania. Przed i po jednotapowym sprzęganiu maleimidem z biotyną, każde z zmodyfikowanych Cys HEVNP było nieodróżnialne od HEV-VLP w badaniu EM z barwieniem negatywowym (Rysunek 2). Efektywność sprzęgania maleimidem z biotyną w zmodyfikowanych Cys HEVNP została najpierw przetestowana za pomocą...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
W przeciwieństwie do czasochłonnej procedury inżynierii genetycznej, która zwykle trwa tygodnie, tutaj demonstrujemy proste dwuetapowe i jednoetapowe procedury koniugacji chemicznej, które można zakończyć w ciągu 3 dni, polegające na dodaniu liganda celującego w raka i/lub barwnika do wykrywania fluorescencji do miejsc Cys/Lys HEVNP. Technika ta może być wykorzystana do badań przesiewowych w poszukiwaniu najlepszego celu liganda z puli kandydatów, a tym samym wykorzystuje dostępne usługi syntezy peptydów/małych cząstecze...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy oświadczają, że nie mają sprzecznych interesów.
Podziękowania
Autorzy potwierdzają sponsorowanie finansowania RHC przez granty NIH #: AI095382, EB021230, CA198880, National Institute of Food and Agriculture, a także program Finland Distinguished Professor.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| MINI jednostki dializacyjne, 10K MWCO | Thermo Fisher Scientific | 69572 | mini stacja dializy |
| High Five Cells | Thermo Fisher Scientific | B85502 | Tn5 |
| Cells Komórki SF9 | Thermo Fisher Scientific | 11496015 | Sf9 Cells |
| Bac-to-Bac Baculovirus Expression System | Thermo Fisher Scientific | A11101, A11100 | System ekspresji bakulowirusa |
| Bac-to-Bac System ekspresji bakulowirusa Life | Technologies | 10359-016, 10360-014, 10584-027, 10712-024 | Bacmid |
| ESF921 Insect Cell Media | Expression Systems LLC | 96-001-01 | owad pożywka komórkowa |
| Cy5.5 NHS ester, 5 mg | Lumiprobe Corp | 27020 | Cy5.5 NHS ester |
| Zeba Spin Kolumny odsalające, 40K MWCO, 0.5 mL | Thermo Scientific | 87766 | wirowa kolumna odsalająca |
| Hydrat MES | Sigma-Aldrich Chemical Co | M8250-250G | MES |
| Ultra-przezroczysta wirówka Cienkościenne ultra-wirówki | Beckman Coulter, Inc | Zależy od wirnika | probówka ultrawirówkowa |
| NuPage 4-12% Bis-Tris Żele białkowe | Thermo Fisher Scientific | NPO321BOX | Żel białkowy SDS |
| Odczynnik do celulektyny II Odczynnik | transfekcji | Thermo Fisher Scientific | 10362100 |
| EMS Glow Discharge | Mikroskopia elektronowa Science | wyładowanie jarzeniowe |
Bibliografia
- Ludwig, C., Wagner, R. Virus-like particles-universal molecular toolboxes. Curr Opin Biotechnol. 18 (6), 537-545 (2007).
- Galaway, F. A., Stockley, P. G. MS2 viruslike particles: a robust, semisynthetic targeted drug delivery platform. Mol Pharm. 10 (1), 59-68 (2013).
- Ma, Y., Nolte, R. J., Cornelissen, J. J. Virus-based nanocarriers for drug delivery. Adv Drug Deliv Rev. 64 (9), 811-825 (2012).
- Chen, C. C., et al. Chemically activatable viral capsid functionalized for cancer targeting. Nanomedicine (Lond). 11 (4), 377-390 (2016).
- Jariyapong, P., et al. Chimeric hepatitis E virus-like particle as a carrier for oral-delivery. Vaccine. 31 (2), 417-424 (2013).
- Xing, L., et al. Recombinant hepatitis E capsid protein self-assembles into a dual-domain T = 1 particle presenting native virus epitopes. Virology. 265 (1), 35-45 (1999).
- Li, T. C., et al. Essential elements of the capsid protein for self-assembly into empty virus-like particles of hepatitis E virus. J Virol. 79 (20), 12999-13006 (2005).
- Xing, L., et al. Structure of hepatitis E virion-sized particle reveals an RNA-dependent viral assembly pathway. J Biol Chem. 285 (43), 33175-33183 (2010).
- Xing, L., et al. Spatial configuration of hepatitis E virus antigenic domain. J Virol. 85 (2), 1117-1124 (2011).
- Xiao, W., et al. Discovery and characterization of a high-affinity and high-specificity peptide ligand LXY30 for in vivo targeting of α3 integrin-expressing human tumors. EJNMMI research. 6 (1), (2016).
- Li, T. C., et al. Expression and self-assembly of empty virus-like particles of hepatitis E virus. J Virol. 71 (10), 7207-7213 (1997).
- Technologies, I. bL. Bac-to-Bac Baculovirus Expression System: User Manual. , Available from: http://tools.thermofisher.com/content/sfs/manuals/bactobac_man.pdf (2015).
- Peyret, H. A protocol for the gentle purification of virus-like particles produced in plants. J Virol Methods. 225, 59-63 (2015).
- Technologies, N. bL. Vol. MAN0007891 1-2. , Life Technologies. (2013).
- Baskin, J. M., et al. Copper-free click chemistry for dynamic in vivo imaging. Proc Natl Acad Sci U S A. 104 (43), 16793-16797 (2007).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
