Tutaj opisujemy protokół uzyskiwania wskaźnika kropelek lipidów (indeksu LD) w celu zbadania dynamiki triacylogliceroli w komórkach hodowanych w eksperymentach wysokoprzepustowych. Test wskaźnika LD jest łatwą i niezawodną metodą, która wykorzystuje BODIPY 493/503. Ten test nie wymaga jednorazowej ekstrakcji lipidów ani analizy mikroskopowej.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Oznaczanie indeksu lipidowego metodą odzyskiwania ciekłej fluorescencji w patogenie grzybowym Ustilago maydis
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Artykuł pokazuje, jak zaimplementować test indeksu LD, który jest czułym testem mikropłytki do określania akumulacji triacylogliceroli (TAGs) w kropelkach lipidów (LDs). Wskaźnik LD uzyskuje się bez ekstrakcji lipidów. Umożliwia pomiar zawartości LD w wysokoprzepustowych eksperymentach w różnych warunkach, takich jak wzrost w pożywkach bogatych lub zubożonych w azot. Chociaż metoda została opisana po raz pierwszy w celu zbadania metabolizmu kropelek lipidów u Saccharomyces cerevisiae, z powodzeniem zastosowano ją do podstawczaka Ustilago maydis. Co ciekawe, a także dlatego, że LD są organellami filogenetycznie zachowanymi w komórkach eukariotycznych, metoda ta może być stosowana do wielu różnych komórek, od drożdży po komórki ssaków. Wskaźnik LD opiera się na teście odzysku ciekłej fluorescencji (LFR) BODIPY 493/503 w warunkach hartowania, przez dodanie komórek związanych formaldehydem. Jod potasu jest stosowany jako środek gaszący fluorescencję. Stosunek między fluorescencją a nachyleniem gęstości optycznej nazywa się indeksem LD. Nachylenia oblicza się na podstawie linii prostych uzyskanych, gdy fluorescencja BODIPY i gęstość optyczna przy 600 nm (OD600) są wykreślane na tle dodania próbki. Optymalna jakość danych znajduje odzwierciedlenie we współczynnikach korelacji równych lub większych niż 0,9 (r ≥ 0,9). Wiele próbek może być odczytywanych jednocześnie, ponieważ można je wprowadzić do mikropłytki. Ponieważ BODIPY 493/503 jest lipofilowym barwnikiem fluorescencyjnym, który rozdziela się na kropelki lipidów, może być stosowany w wielu typach komórek, które gromadzą LD.
Wprowadzenie
Kropelki lipidów (LDs) to wszechobecne wewnątrzkomórkowe ciała tłuszczowe składające się z rdzenia z neutralnych lipidów, głównie TAGów i estrów steroli (SE). Rdzeń jest otoczony monowarstwą fosfolipidów, która oddziałuje z białkami, takimi jak perylipina i enzymami biorącymi udział w syntezie obojętnych lipidów, takimi jak acylotransferaza diacyloglicerolu, karboksylaza acetylo-CoA i syntaza acylo-CoA1. Ze względu na swoje dynamiczne zachowanie, monowarstwa fosfolipidowa zawiera również lipazy triacyloglicerolu, które hydrolizują TAGs i SE2. W zależności od typu komórki i organizmu, zmagazynowane obojętne lipidy mogą być wykorzystywane do wytwarzania energii lub syntezy fosfolipidów i cząsteczek sygnałowych. U drożdży i innych grzybów zawartość LD zmienia się w odpowiedzi na zmiany stosunku azotu do węgla w pożywce hodowlanej, co wskazuje, że zmniejszona dostępność azotu może być kluczem do zwiększenia neutralnej produkcji lipidów3,4,5. Produkcja dużych ilości TAG w drożdżach ma potencjalne zastosowanie w biotechnologii jako źródło biopaliw oraz w przemyśle spożywczym. Niektóre przechowywane lipidy zawierają duże ilości wielonienasyconych kwasów tłuszczowych, takich jak omega 3 i omega 6, o znaczeniu odżywczym i dietetycznym 6,7,8,9,10,11. LD komórek ssaków, w tym komórek ludzkich, zawierają również TAG i estry cholesterolu. Monowarstwa fosfolipidowa oddziałuje z homologią ssaków białek opisanych w LD drożdży oraz z dodatkowym białkiem, perylipidą, którego nie ma w S. cerevisiae12. Jedną z proponowanych ról monowarstwy fosfolipidowej i powiązanych z nią białek jest stabilizacja struktury LD i umożliwienie interakcji LD z organellami, takimi jak mitochondria, retikulum endoplazmatyczne, peroksysomy i wakuole, głównie do wymiany lipidów 13,14. Co ciekawe, u ludzi LD wydają się być zaangażowane w patologie, takie jak cukrzyca typu 2, miażdżyca, stłuszczeniowe zapalenie wątroby i choroba niedokrwienna serca, w których następuje wzrost ich liczby 15,16,17. Niektóre typy wirusów wykorzystują LD jako platformy do składania wirionów 2,18,19.
Ze względu na implikacje LD w ludzkich patologiach i ich potencjalne zastosowanie biotechnologiczne, dokładne eksperymentalne określenie powstawania LDs jest ważnym zadaniem. W artykule opisano wiarygodny test oparty na odzysku fluorescencji (LFR) BODIPY 493/503 (4, 4-difluoro-1, 3, 5, 7, 8-pentametylo-4-bora-3a, 4a-diaza-s-indacen), w celu uzyskania względnej wartości zawartości obojętnych lipidów w komórkach. Dzięki temu testowi możliwe jest śledzenie dynamiki akumulacji obojętnych lipidów w grzybach takich jak U. maydis i S. cerevisiae, a także w komórkach ssaków, bez konieczności ekstrakcji lipidów 20. Metoda ta została po raz pierwszy zastosowana u S. cerevisiae w celu identyfikacji fosfataz białkowych i kinaz biorących udział w regulacji metabolizmu lipidów. Było to możliwe bez ekstrakcji lipidów lub oczyszczania białek21,22. LFR został również wykorzystany do ustalenia dynamiki powstawania LD w makrofagach otrzewnowych23. Stosowanie BODIPY 493/503 ma pewne zalety w porównaniu z innymi neutralnymi barwnikami lipidowymi, takimi jak czerwień nilowa. BODIPY 493/503 jest wysoce specyficzny dla obojętnych lipidów i ma wąskie spektrum emisyjne, co ułatwia jednoczesne wykrywanie sygnałów z barwników, takich jak czerwone białko fluorescencyjne lub Mito-tracker, gdy próbki są analizowane za pomocą mikroskopii konfokalnej. Niestety, BODIPY 493/503 jest wrażliwy na fotowybielanie, ale tego procesu można uniknąć, używając odczynnika do wygaszania podczas ekspozycji na światło24.
Aby przeprowadzić test LFR na komórkach drożdży, są one hodowane w pożądanych warunkach żywieniowych, a porcje są pobierane w różnych momentach. Następnie komórki są utrwalane formaldehydem, który zachowuje integralność LD przez wiele miesięcy, gdy komórki są przechowywane w temperaturze 4 °C. Należy unikać innych technik utrwalania, zwłaszcza tych z użyciem metanolu lub zimnego acetonu, ponieważ prowadzą one do degradacji LD w komórkach24. Aby zmierzyć wskaźnik LD, komórki utrwalone formaldehydem zawiesza się w wodzie w celu uzyskania określonego stężenia. Następnie dodaje się je do roztworu zawierającego fluorofor BODIPY 493/503 wygaszany przez KI, a gdy fluorofor dostanie się do komórki i połączy się z LD, następuje odzyskanie jego fluorescencji. Równolegle z pomiarem fluorescencji (485 nm/510 nm) stężenie komórek określa się ilościowo poprzez pomiar gęstości optycznej przy 600 nm. Każdą próbkę odczytuje się czterokrotnie, dodając kolejne 5 μl podwielokrotności zawiesiny komórkowej utrwalonej formaldehydem do tego samego dołka. Ślepe próby fluorescencji i absorbancji uzyskuje się przed dodaniem komórek. Jakość danych dotyczących fluorescencji i absorbancji ocenia się poprzez określenie liniowości pomiarów: jeśli r <0,9, dane są odrzucane. Wartość r jest ważna, ponieważ zasadniczo intensywność fluorescencji powinna wywoływać liniową odpowiedź na rosnące stężenia komórek. Jeśli stężenie komórek jest zbyt wysokie, liniowość zostaje utracona. Test LFR zapewnia szybką, prostą i ekonomiczną metodę wyboru pożądanego fenotypu LD w eksperymentach o wysokiej przepustowości. Po wybraniu pożądanych warunków, zawartość LD w poszczególnych komórkach można badać za pomocą mikroskopii konfokalnej, przy użyciu tych samych komórek utrwalonych formaldehydem wybarwionych BODIPY, zapewniając obraz LD w komórce. Ich zawartość TAG i SE może być teraz dalej analizowana za pomocą chromatografii cienkowarstwowej.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Przygotowanie buforów i roztworów
- Aby przygotować 1 L solistrowanego buforu fosforanowego (PBS, pH 7), rozpuścić 8 g NaCl, 0,2 g KCl, 1,44 g Na2HPO4 oraz 0,24 g KH2PO4 w 800 mL wody destylowanej. Dostosować pH do 7,0 za pomocą HCl, a następnie dodać wodę do uzyskania końcowej objętości 1 L. PBS można przygotować jako 10-krotny roztwór zapasowy i przechowywać w temperaturze pokojowej.
- Aby przygotować 10 mL roztworu utrwalającego, dodać 1 mL 37% formaldehydu do 9 mL PBS, aby uzyskać końcowe stężenie 3,7%. Roztwór ten należy przygotować bezpośrednio przed użyciem.
Uwaga: Podczas pracy z roztworem formaldehydu należy używać rękawiczek. - Aby przygotować roztwór wygaszający (500 mM), rozpuścić 8,3 g KI w 100 mL wody destylowanej. Roztwór ten należy przygotować przed użyciem i przechowywać w temperaturze pokojowej.
- Aby przygotować 10 mM roztwór zapasowy BODIPY, rozpuścić 10 mg BODIPY 493/503 w 3,8 mL dimetylosulfotlenku (DMSO). Alikwoty o objętości 100 µL przechowywać w ciemności w temperaturze -70 °C.
- Aby przygotować 5 µM roztwór BODIPY z wygaszaczem, dodać 1 µL 10 mM BODIPY 493/503 do 2 mL 500 mM roztworu wygaszającego. Do testu LFR wymagane jest końcowe stężenie 5 µM BODIPY.
- Aby przygotować roztwór minerałów, dodać 0,06 g H3BO3, 0,14 g MnCl2-4H2O, 0,4 g ZnCl2, 0,04 g Na2MoO4-2H2O, 0,1 g FeCl3-6H2O oraz 0,4 g CuSO4-5H2O do 1 L wody destylowanej.
- Aby przygotować roztwór soli, dodać 16 g KH2PO4, 4 g Na2SO4, 8 g KCl, 2 g MgSO4, 1 g CaCl2 oraz 8 mL roztworu minerałów do 1 L wody destylowanej.
- Aby przygotować minimalne podłoże bez źródła azotu dla U. maydis FB2 (a2b2), dodać 10 g glukozy i 62,5 mL roztworu soli do 1 L wody destylowanej, zgodnie z metodą Holliday, et al.31. Dostosować pH do 7,0, a następnie rozlać po 100 mL pożywki do kolb o pojemności 250 mL i wysterylizować. Sterylizować w autoklawie przez 20 min przy ciśnieniu 15 psi (1,05 kg/cm2) w cyklu dla cieczy lub wysterylizować przez filtrację.
- Aby przygotować podłoże drożdżowe z peptone i dekstrozą (YPD), dodać 5 g ekstraktu drożdżowego, 2,5 g peptonu oraz 5 g glukozy do 1 L wody destylowanej. Rozlać po 100 mL roztworu do kolb o pojemności 250 mL i wysterylizować. Sterylizować w autoklawie przez 20 min przy ciśnieniu 15 psi (1,05 kg/cm2) w cyklu dla cieczy lub wysterylizować przez filtrację.
2. Warunki hodowli i fiksacja komórek
UWAGA: Aby zachować strukturę LD, należy jak najszybciej utrwalić komórki. Utrwalanie można przeprowadzić w probówkach do mikrocentryfugi. Utrwalone komórki można przechowywać w temperaturze 4 °C do jednego miesiąca, pod warunkiem uniknięcia odwodnienia poprzez pozostawienie cienkiej warstwy wody.
- Hodować komórki U. maydis w warunkach hodowli odpowiednich dla badania. Rozpocząć hodowlę z początkową wartością OD600 wynoszącą 0,05 (1,15 × 10⁶ komórek/mL). Inkubować komórki w temperaturze 28 °C przy 180 rpm przez 24 h. Wartość OD600 równa 1 odpowiada 2,3 × 10⁷ komórkom/mL.
- W wybranych odstępach czasu pobrać aliquotę komórek. W przypadku U. maydis pobierać 5 mL co 2 h przez pierwsze 8 h. Po 8 h wzrostu wystarczające są aliquoty o objętości 2 mL.
- Zmierzyć gęstość optyczną każdej aliquoty przy 600 nm.
- Wirować zawiesinę komórkową przy 14 000 x g przez 1 min w temperaturze 4 °C, korzystając z wirówki stołowej. Odrzucić nadsącz.
- Resuspender osad komórkowy w 1 mL buforu PBS-formaldehyd 3,7%. Inkubować komórki przez 15 min w temperaturze pokojowej.
- Po inkubacji wirować zawiesinę komórkową przy 14 000 x g przez 1 min w temperaturze 4 °C. Odrzucić nadsącz.
- Przemyć osad komórkowy dwukrotnie podobną objętością wody destylowanej (1 mL). Wirować zawiesinę komórkową przy 14 000 x g przez 1 min w temperaturze 4 °C. Odrzucać nadsącz po każdym etapie przemywania.
- Dostosować stężenie osadu komórkowego do wartości 5 OD600 (1,15 x 10⁸ komórek/mL) za pomocą wody destylowanej (Równanie 1).
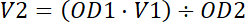 Równanie 1.
- Przechowywać próbkę w temperaturze 4 °C do momentu użycia.
3. Test odzyskiwania fluorescencji w cieczy (LFR)
- Włącz spektrofotometr i otwórz oprogramowanie Skanlt. Kliknij w NOWA SESJAi wybierz W tej procedurze przedstawiono izolację RNA z tkanek roślinnych za pomocą metody ekstrakcji w fazie stałej (SPE), wykorzystującej kolumny krzemionkowe. Metoda ta zapewnia szybkie i skuteczne oczyszczanie RNA, minimalizując ryzyko degradacji materiału genetycznego poprzez eliminację konieczności stosowania czasochłonnych etapów precypitacji. Kluczowym elementem procesu jest homogenizacja tkanki w obecności buforu litycznego, który dezaktywuje nukleazy i rozbija ściany komórkowe roślin. Następnie, po usunięciu zanieczyszczeń białkowych i lipidowych, RNA wiąże się z membraną krzemionkową kolumny w obecności soli chaotropowych. Po serii etapów płukania, mających na celu usunięcie pozostałych zanieczyszczeń, oczyszczone RNA jest eluowane wodą nukleazowo-wolną lub odpowiednim buforem. Metoda ta jest szczególnie użyteczna w badaniach transkryptomicznych, gdzie wymagana jest wysoka czystość i integralność RNA do dalszych analiz, takich jak RT-qPCR lub sekwencjonowanie RNA (RNA-seq). Słowa kluczowe: izolacja RNA, ekstrakcja w fazie stałej, tkanki roślinne, kolumny krzemionkowe, oczyszczanie kwasów nukleinowych a następnie Varioskan LuxWybierz PROTOKÓŁ w drzewie sesji wprowadź ustawienia długości fal fluorescencji (wzbudzenie 485 nm/emisja 510 nm; gęstość optyczna 600 nm) i wybierz automatyczne wzmocnienie fotopowielacza. Dla szerokości pasma wzbudzenia wybierz 12 nm. W sekcji optyki wybierz opcję top (wzbudzenie próbki odbywa się od góry dołka).
- Włączyć delikatne i ciągłe mieszanie (300 obr./min). Wybrać NAŁOŻENIE PRÓBEK NA PŁYTKĘ, i CZEKAJ DO MOMENTU PODJĘCIA DZIAŁANIA PRZEZ UŻYTKOWNIKA (czas potrzebny na dodanie próbki do dołków). Powtórzyć protokół pięciokrotnie. Kliknij ZAPISZ or nadaj nazwę sesji na POLE NAZWY SESJIProtokół jest teraz gotowy do analizy próbek.
- Dodaj 200 µL BODIPY 5 µM- do każdego dołka czarnej płytki 96-dołkowej z przezroczystym dnem dodać schłodzony roztwór.
- Umieść płytkę w komorze spektrofotometru i inkubuj przez 5 min w temperaturze 30 °COd tego momentu należy w jak największym stopniu chronić płytkę przed światłem.
- Kliknij w Tytuł: Izolacja i ocena żywotności komórek macierzystych pochodzących z tkanki tłuszczowej (ADSC) Abstrakt: W niniejszym filmie zaprezentowano procedurę izolacji komórek macierzystych pochodzących z tkanki tłuszczowej (ADSC) z tkanki tłuszczowej pobranej od ludzi oraz metodę oceny ich żywotności. Tkanka tłuszczowa jest bogatym źródłem mezenchymalnych komórek macierzystych, które wykazują zdolność do różnicowania się w różne linie komórkowe, w tym osteoblasty, chondrocyty i adipocyty. Proces izolacji opiera się na trawieniu enzymatycznym tkanki tłuszczowej za pomocą kolagenazy, co pozwala na uwolnienie frakcji naczyniowej tkanki tłuszczowej (SVF), zawierającej ADSC. Po izolacji komórki są hodowane in vitro, a ich żywotność jest oceniana przy użyciu testu wykluczenia barwnika trypanu. Metoda ta jest kluczowa w badaniach nad medycyną regeneracyjną i inżynierią tkankową. Słowa kluczowe: komórki macierzyste pochodzące z tkanki tłuszczowej, ADSC, frakcja naczyniowa tkanki tłuszczowej, SVF, izolacja komórek, trawienie kolagenazą, żywotność komórek, test trypanu, medycyna regeneracyjna Materiały i odczynniki: 1. Tkanka tłuszczowa pobrana od ludzi 2. Kolagenaza typu I 3. Bufor PBS (fosforan sodowo-potasowy) 4. Poziomka hodowlana DMEM/F12 5. Płodowa surowica bydlęca (FBS) 6. Penicylina-streptomycyna 7. Roztwór trypanu błękitnego (0,4%) 8. Centryfuga 9. Inkubator CO2 (37°C, 5% CO2) 10. Sterylne probówki i pipety 11. Mikroskop odwrócony 12. Liczniki komórek (komora Bürghera lub automat) Procedura: Krok 1: Przygotowanie tkanki Tkankę tłuszczową należy dokładnie wypłukać w sterylnym buforze PBS, aby usunąć krew i zanieczyszczenia. Następnie tkankę należy drobno posiekać za pomocą sterylnych nożyczek w środowisku PBS. Krok 2: Trawienie enzymatyczne Do posiekanej tkanki dodaje się roztwór kolagenazy typu I. Całość należy inkubować w temperaturze 37°C przez 30–60 minut, delikatnie mieszając lub wytrząsając próbkę w celu zapewnienia równomiernego kontaktu enzymu z tkanką. Krok 3: Izolacja frakcji naczyniowej tkanki tłuszczowej (SVF) Po inkubacji próbkę należy zneutralizować, dodając pożywkę hodowlaną z FBS. Następnie odwiruje się mieszaninę w centryfudze (np. 400–600 g przez 10 minut). Warstwa tłuszczu wypłynie na górę, natomiast frakcja naczyniowa tkanki tłuszczowej (pellet) osiądzie na dnie. Warstwę tłuszczową należy usunąć, a pellet zawiesić w pożywce DMEM/F12. Krok 4: Hodowla i ekspansja komórek Zawiesinę komórkową należy przefiltrować przez sitko komórkowe (np. 70 µm), aby usunąć nieprzetrawione fragmenty tkanki. Komórki wysiewa się do probówek hodowlanych i inkubuje w inkubatorze CO2. Po 24–48 godzinach usuwa się pożywkę zawierającą komórki nieprzylegające, pozostawiając przylegające ADSC. Krok 5: Ocena żywotności komórek W celu oceny żywotności komórek, po osiągnięciu odpowiedniej konfluencji, należy zebrać komórki z powierzchni naczynia za pomocą trypsyny. Do zawiesiny komórkowej dodaje się roztwór trypanu błękitnego w stosunku 1:1. Po inkubacji przez 2–5 minut komórki analizuje się pod mikroskopem. Komórki martwe, ze względu na uszkodzenie błony komórkowej, wchłoną barwnik i będą miały niebieski kolor, podczas gdy komórki żywe pozostaną bezbarwne. Żywotność oblicza się jako stosunek liczby komórek żywych do całkowitej liczby komórek wyrażony w procentach. przycisk i odczytać fluorescencję (pobudzenie 485/emisja 510) oraz OD600 odpowiadające pustym polom.
- Dodaj 5 µL zawiesinę komórek utrwalonych formaldehydem do dołków podczas czasu przerwy. Próbki należy ostrożnie wymieszać za pomocą pipety. Płytkę należy umieścić w spektrofotometrze i kliknąć KONTYNUUJNastępnie próbki zostaną przetworzone zgodnie z powyżej opracowanym protokołem.
- Powtórzyć trzy kolejne dodania 5 µL zawiesiny komórkowej. Należy dopilnować, aby komórki nie osiadły. (Rycina 1).
4. Obliczenia wskaźnika LD
- Dla każdej próbki w mikropłytce narysuj wykres fluorescencji i absorbancji w funkcji objętości każdego kolejnego dodatku (5 punktów, wliczając próbę ślepą). W niniejszym badaniu do obliczeń wykorzystano oprogramowanie Microsoft Excel. Aby narysować wykres, wprowadź dane dotyczące objętości, fluorescencji i absorbancji odpowiednio do pierwszej, drugiej i trzeciej kolumny arkusza danych. Następnie zaznacz wszystkie dane kursorem, kliknij WSTAW i wybierz WYKRES PUNKTOWY (XY).
- Zaznacz punkty dla każdej linii na wykresie i wstaw odpowiednią LINIĘ TRENDU z zaznaczonym polem WYŚWIETL RÓWNANIE. Zapisz wartości nachyleń dwóch linii prostych zgodnie z równaniem 2:
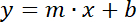 Równanie 2
Gdzie y= fluorescencja lub gęstość optyczna, x = objętość próbki (0, 5, 10, 15, 20 µL), m = nachylenie linii fluorescencji lub gęstości optycznej, a b = punkt przecięcia z osią y. - Podziel nachylenie linii fluorescencji przez nachylenie linii gęstości optycznej, aby otrzymać indeks LD, równanie 3.
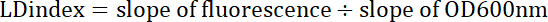 Równanie 3
Indeks LD odpowiada ilorazowi nachyleń fluorescencji i gęstości optycznej.
5. Analiza jakości danych
- Oblicz współczynnik korelacji dla każdej linii prostej: kliknij KREATOR FUNKCJI (fx) i wybierz CORREL. Jeśli r <0,9, odrzuć dane i powtórz pomiary. Jeśli r ≥ 0,9, pomiary są wiarygodne.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
LFR z zastosowaniem BODIPY 493/503 jako sondy fluorescencyjnej jest niezawodną i prostą metodą badania dynamicznej akumulacji LD w U. maydis, niezależnie od warunków wzrostu. Gdy komórki hodowano w pożywce YPD, obserwowano wzrost indeksu LD podczas fazy wykładniczej, a następnie jego spadek w fazie stacjonarnej (Rycina 2A). W przeciwieństwie do tego, w komórkach hodowanych w warunkach głodzenia azotowego odnotowano stały wzrost indeksu LD zarówno w f...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
LFR to nowatorska metoda, która po raz pierwszy została zastosowana do badania metabolizmu lipidów u S. cerevisiae, a następnie została z powodzeniem wdrożona w U. maydis20,21. Chociaż indeks LD nie daje wartości bezwzględnej TAGów zgromadzonych w komórkach, daje szybkie wyobrażenie o zawartości lipidów w komórkach, a interpretacja danych jest prosta, gdy porównuje się indeks LD z dwóch lub więcej warunków eksperymentalnych. BODIPY 493/503 jest ...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia
Podziękowania
Ta praca była wspierana przez granty Instituto Politécnico Nacional-Secretaria de Investigación y Posgrado (IPN-SIP-20170864), Programa de Apoyo a Proyectos de Investigación e Innovación Tecnológica (PAPIIT IN222117)- Universidad Nacional Autónoma de México (UNAM), oraz Consejo Nacional de Ciencia y Tecnología (CONACyT 254904-JPP i 256520-GGS). Fundação de Amparo a Pesquisa do Rio de Janeiro (FAPERJ-Cientistas do Nosso Estado: E 26/103.353/2011). Dzięki QFB. Oscar Iván Luqueño Bocardo za schematyczny przegląd. Dziękujemy dr Miguelowi Tapia Rodríguezowi za cenną pomoc w mikroskopii konfokalnej LD. Pragniemy podziękować dr Bruno Bozaquel Morais za jego pionierską pracę nad opracowaniem techniki u S. cerevisiae, którą zaadaptowaliśmy dla U. maydis.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Spektrofotometr | Varioskan Lux wielomodowy odczyt mikropłytki | D5879 | Filtr 493/503 lub detektor monochromatorowy |
| Płyta costar | Corning Inc. | 3615 | 96-dołkowa czarnościenna/przezroczysta |
| płyta dolna costar | Corning Inc | 3598 | 96-dołkowa płytka do hodowli komórkowej costar |
| BODIPY 493/503 | Invitrogen/ Thermofisher | D3922 | 4,4-difluoro-1,3,5,7,8-pentametylo-4-bora-3a,4a-diaza-s-indacen |
| Roztwór formaldehydu | Sigma Aldrich | 252549 | odczynnik ACS, 37% wag. w H2O, zawiera 10-15% metanolu, aby zapobiec polimeryzacji |
| Jodek potasu | Sigma Aldrich | 60399 | BioUltra, ≥ 99,5% (AT) |
| FB2 Ustilago maydis | ATCC | 201384 | Drożdże Basidiomycete-Chlorek |
| sodu | Odczynnik Sigma Aldrich | 746398 | ACS, sól nieorganiczna |
| Fosforan potasu jednozasadowy | Sigma Aldrich | P0662 | Odczynnik ACS |
| Select Ekstrakt drożdżowy | Sigma Aldrich | Y100 | Mieszanina kwasów amini, peptydów, rozpuszczalnych w wodzie, witamin i węglowodanów do pożywek hodowlanych |
| Przypadek N-Z plus | Sigma aldrich | N4642 | Hydrolizat enzymatyczny kazeiny z mleka krowiego |
| Glukoza | Sigma Aldrich | G-8270 | D (+) glukoza |
| Kolba Skaker | Pirex | CLS4450250-6EA | ze szkła borokrzemianowego |
| SEV Mé xico | INO650V-7 | Wytrząsarka orbitalna | |
| Stół wirówkowy | Eppendorf | 5415C | Wirówka |
| Mikroprobówki | Sigma Aldrich | Z606340 | Eppendorf |
| Końcówki do pipet | Axygen scientific | T-200-Y | Uniwersalne końcówki do pipet ze ściętą końcówką, 200 mikrolitrów, niesterylne |
| pipety mLine | Biohit | 725130 | 8 kanałów, zakres objętości 5-100 uL |
Bibliografia
- Guo, Y., Cordes, K. R., Farese, R. V., Walther, T. C. Lipid droplets at a glance. Journal of Cell Science. 122 (6), 749-752 (2009).
- Welte, M. A. Expanding roles for lipid droplets. Current Biology. 25 (11), R470-R481 (2015).
- Sestric, R., Munch, G., Cicek, N., Sparling, R., Levin, D. B. Growth and neutral lipid synthesis by Yarrowia lipolytica on various carbon substrates under nutrient-sufficient and nutrient-limited conditions. Bioresource Technology. 164, 41-46 (2014).
- Raimondi, S., et al. Getting lipids from glycerol: new perspectives on biotechnological exploitation of Candida freyschussii. Microbial Cell Factories. 13, 83(2014).
- Cescut, J., Fillaudeau, L., Molina-Jouve, C., Uribelarrea, J. L. Carbon accumulation in Rhodotorula glutinis induced by nitrogen limitation. Biotechnology for Biofuels. 7, 164(2014).
- Galafassi, S., et al. Lipid production for second generation biodiesel by the oleaginous yeast Rhodotorula graminis. Bioresource Technology. 111, 398-403 (2012).
- Kot, A. M., Blazejak, S., Kurcz, A., Gientka, I., Kieliszek, M. Rhodotorula glutinis-potential source of lipids, carotenoids, and enzymes for use in industries. Applied Microbiology and Biotechnology. 100 (14), 6103-6117 (2016).
- Rakicka, M., Lazar, Z., Dulermo, T., Fickers, P., Nicaud, J. M. Lipid production by the oleaginous yeast Yarrowia lipolytica using industrial by-products under different culture conditions. Biotechnology for Biofuels. 8, (2015).
- Zhu, Z. W., et al. Dynamics of the Lipid Droplet Proteome of the Oleaginous Yeast Rhodosporidium toruloides. Eukaryotic Cell. 14 (3), 252-264 (2015).
- Kolouchova, I., Mat'atkova, O., Sigler, K., Masak, J., Rezanka, T. Production of Palmitoleic and Linoleic Acid in Oleaginous and Nonoleaginous Yeast Biomass. International Journal of Analytical Chemistry. , (2016).
- Radulovic, M., et al. The emergence of lipid droplets in yeast: current status and experimental approaches. Current Genetics. 59 (4), 231-242 (2013).
- Takahashi, Y., et al. Perilipin-Mediated Lipid Droplet Formation in Adipocytes Promotes Sterol Regulatory Element-Binding Protein-1 Processing and Triacylglyceride Accumulation. Plos One. 8 (5), e64605(2013).
- Thiam, A. R., Farese Jr, R. V., Walther, T. C. The biophysics and cell biology of lipid droplets. Nature Reviews Molecular Cell Biology. 14 (12), 775-786 (2013).
- Penno, A., Hackenbroich, G., Thiele, C. Phospholipids and lipid droplets. Biochimica et Biophysica Acta. 1831 (3), 589-594 (2013).
- Ageitos, J. M., Vallejo, J. A., Veiga-Crespo, P., Villa, T. G. Oily yeasts as oleaginous cell factories. Applied Microbiology and Biotechnology. 90 (4), 1219-1227 (2011).
- Athenstaedt, K., Daum, G. The life cycle of neutral lipids: synthesis, storage and degradation. Cellular and Molecular Life Sciences. 63 (12), 1355-1369 (2006).
- Marshall, L. L., Stimpson, S. E., Hyland, R., Coorssen, J. R., Myers, S. J. Increased lipid droplet accumulation associated with a peripheral sensory neuropathy. Journal of Biological Chemistry. 7 (2), 67-76 (2014).
- Filipe, A., McLauchlan, J. Hepatitis C virus and lipid droplets: finding a niche. Trends in Molecular Medicine. 21 (1), 34-42 (2015).
- Greenberg, A. S., et al. The role of lipid droplets in metabolic disease in rodents and humans. Journal of Clinical Investigation. 121 (6), 2102-2110 (2011).
- Aguilar, L. R., et al. Lipid droplets accumulation and other biochemical changes induced in the fungal pathogen Ustilago maydis under nitrogen-starvation. Archives of Microbiology. , (2017).
- Bozaquel-Morais, B. L., Madeira, J. B., Maya-Monteiro, C. M., Masuda, C. A., Montero-Lomeli, M. A new fluorescence-based method identifies protein phosphatases regulating lipid droplet metabolism. PLoS One. 5 (10), e13692(2010).
- Madeira, J. B., et al. TORC1 Inhibition Induces Lipid Droplet Replenishment in Yeast. Molecular and Cellular Biology. 35 (4), 737-746 (2015).
- Maya-Monteiro, C. M., et al. Leptin induces macrophage lipid body formation by a phosphatidylinositol 3-kinase- and mammalian target of rapamycin-dependent mechanism. Journal of Biological Chemistry. 283 (4), 2203-2210 (2008).
- Listenberger, L. L., Brown, D. A. Current Protocols in Cell Biology. , John Wiley & Sons, Inc. (2001).
- Jump, D. B., Torres-Gonzalez, M., Olson, L. K. Soraphen A, an inhibitor of acetyl CoA carboxylase activity, interferes with fatty acid elongation. Biochemical Pharmacology. 81 (5), 649-660 (2011).
- Hobro, A. J., Smith, N. I. An evaluation of fixation methods: Spatial and compositional cellular changes observed by Raman imaging. Vibrational Spectroscopy. 91, 31-45 (2017).
- Chen, Y. T., Wan, L., Zhang, D. P., Bian, Y. Z., Jiang, J. Z. Modulation of the spectroscopic property of Bodipy derivates through tuning the molecular configuration. Photochemical & Photobiological Sciences. 10 (6), 1030-1038 (2011).
- Pagac, M., et al. SEIPIN Regulates Lipid Droplet Expansion and Adipocyte Development by Modulating the Activity of Glycerol-3-phosphate Acyltransferase. Cell Reports. 17 (6), 1546-1559 (2016).
- Qiu, B., Simon, M. C. BODIPY 493/503 Staining of Neutral Lipid Droplets for Microscopy and Quantification by Flow Cytometry. Bio-protocol. 6 (17), (2016).
- Rumin, J., et al. The use of fluorescent Nile red and BODIPY for lipid measurement in microalgae. Biotechnology for Biofuels. 8, 42(2015).
- Holliday, R. Ustilago maydis. Handbook of genetics. King, R. , Plenum. New York. 575-595 (1974).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
