Tutaj prezentujemy jednorodny FRET (HTRF) jako skuteczną metodę szybkiego wykrywania insuliny wydzielanej przez komórki.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Jednorodny, rozdzielczy w czasie test rezonansowy oparty na transferze energii Förstera do wykrywania wydzielania insuliny
W tym artykule
Podsumowanie
Streszczenie
Wykrywanie wydzielania insuliny jest kluczowe dla wyjaśnienia mechanizmów regulowanego wydzielania, jak również w badaniach nad metabolizmem. Chociaż od dziesięcioleci istnieje wiele testów insulinowych, niedawne pojawienie się technologii jednorodnego transferu energii rezonansowej Förstera (HTRF) z rozdzielczością czasową znacznie uprościło te pomiary. Jest to szybki, opłacalny, powtarzalny i solidny test optyczny, oparty na przeciwciałach sprzężonych z jasnymi fluoroforami o długotrwałej emisji, co ułatwia czasowo-rozdzielczy transfer energii rezonansu Förstera. Co więcej, wykrywanie insuliny HTRF jest podatne na opracowanie wysokoprzepustowych testów przesiewowych. Tutaj używamy HTRF do wykrywania wydzielania insuliny w komórkach INS-1E, linii komórkowej pochodzącej z insulinoma szczurów. Pozwala to na oszacowanie podstawowych poziomów insuliny i ich zmian w odpowiedzi na stymulację glukozy. Ponadto używamy tego systemu wykrywania insuliny, aby potwierdzić rolę dopaminy jako negatywnego regulatora wydzielania insuliny stymulowanej glukozą (GSIS). W podobny sposób inni agoniści receptora dopaminopodobnegoD2, chinpirol i bromokryptyna, zmniejszają GSIS w sposób zależny od stężenia. Nasze wyniki podkreślają użyteczność formatu testu insulinowego HTRF w określaniu roli wielu leków w GSIS i ich profilach farmakologicznych.
Wprowadzenie
Regulacja metabolizmu energetycznego jest precyzyjnie dostrajana przez główny hormon anaboliczny – insulinę. Insulina jest syntetyzowana i uwalniana przez beta-komórki trzustki w odpowiedzi na wzrost poziomu glukozy zewnątrzkomórkowej. Uwolniona insulina pobudza pobieranie glukozy przez tkanki wrażliwe na insulinę1,2. Fizjologicznie proces ten jest powiązany ze wzrostem stężenia glukozy po posiłku, po którym następuje wydzielanie insuliny w celu regulacji poboru glukozy. Zaburzenia homeostazy glukozy prowadzą do upośledzeń metabolicznych, które kulminują w insulinooporności, a w konsekwencji w wystąpieniu cukrzycy typu 22,3,4.
Mimo że sekrecja insuliny była szeroko badana, mechanizmy jej regulacji pozostają słabo poznane. Krytycznym obszarem badań jest identyfikacja nowych modulatorów sekrecji insuliny przez komórki beta5,6,7,8. Badania te wymagają lepszego zrozumienia zależności sprzężenia między stymulacją glukozą a sekrecją insuliny. Dlatego kluczowa stała się możliwość dokładnego monitorowania i ilościowego oznaczania poziomów sekrecji insuliny stymulowanej glukozą (GSIS). Do tej pory dostępna była jednak tylko ograniczona liczba metod umożliwiających kwantyfikację GSIS z użyciem linii komórek wydzielających insulinę i/lub wysepek trzustkowych. Jedną z nich jest radioimmunologiczna metoda analizy (RIA), która wykorzystuje insulinę znakowaną izotopem promieniotwórczym oraz przeciwciała. Głównymi ograniczeniami tego podejścia są kwestie bezpieczeństwa związane z obchodzeniem się z materiałami radioaktywnymi i ich utylizacją. Ponadto metoda ta jest pracochłonna, obejmując wiele długotrwałych etapów przemywania i inkubacji. Test immunoenzymatyczny (ELISA) to kolejne kosztowne i pracochłonne podejście wykorzystujące przeciwciała do detekcji insuliny. Zmienność powinowactwa przeciwciał oraz efektywności rozpoznawania insuliny są czynnikami ograniczającymi tę metodę i mogą wpływać na powtarzalność wyników. Ani ELISA, ani RIA nie zostały zaprojektowane do eksperymentów wysokoprzepustowych. AlphaScreen to homogeniczny test stosowany do wykrywania i pomiaru poziomów sekrecji insuliny. Technologia AlphaScreen opiera się na konwersji tlenu z otoczenia w wzbudzony stan singletowy, który może reagować z gatunkami chemiluminescencyjnymi, co prowadzi do generowania chemiluminescencji. Ponieważ test jest homogeniczny, wiele etapów przemywania związanych z RIA i ELISA zostaje wyeliminowanych. Jednak niestabilność sygnału wynikająca z natury reakcji jest czynnikiem ograniczającym, który może wpływać na odczyt testu. (TR-PINCER, opracowany przez Heyduka i współpracowników9, to kolejne homogeniczne podejście do pomiaru insuliny, oparte na wiązaniu dwóch oddzielnych przeciwciał do różnych epitopów cząsteczki insuliny. Przeciwciała są chemicznie połączone z dwuniciowym DNA z krótkimi, komplementarnymi jednoniciowymi nadwiszącymi końcami DNA. Wiązanie przeciwciał z insuliną zbliża je do siebie, co prowadzi do powstania dupleksu dwuniciowego DNA. Każde przeciwciało jest również powiązane z odpowiednim fluoroforem donorem lub akceptorem, a powstanie dupleksu DNA zbliża te fluorofory, generując transfer energii rezonansowej Förstera (FRET). Potencjalnym ograniczeniem TR-PINCER jest jednak sam mechanizm FRET. Brak możliwości szybkiego rozproszenia fluorescencji tła podczas reakcji FRET może prowadzić do stosunkowo wysokich poziomów fluorescencji tła i niskiego stosunku sygnału do szumu w teście. W związku z tym nadal istnieje potrzeba opracowania niezawodnego, odpornego i kosztowo efektywnego testu do wysokoprzepustowego ilościowego oznaczania GSIS.
Ostatnie postępy w biofizyce doprowadziły do opracowania homogenicznego testu opartego na czasowo rozdzielonym transferze energii rezonansowej fluorescencji (HTRF). Ściślej mówiąc, choć transfer energii w tym teście można opisać jako oparty na FRET, dokładniej HTRF opiera się na rezonansowym transferze energii luminescencyjnej (LRET)10, który polega na nieradiacyjnym transferze energii między donorem a akceptorem11,12,13. Rozróżnienie to jest istotne, ponieważ czas interakcji FRET opartej na fluorescencji lub gaszeniu jest znacznie inny niż w przypadku LRET, mimo że dla obu mechanizmów można stosować te same rodzaje bramkowania. Co więcej, zastosowanie związków kryptatów lantanowców ziem rzadkich, takich jak kryptaty europu lub terbnego w HTRF, pozwala uzyskać długie czasy połowicznego rozpadu fluorescencji12,14. Daje to unikalną zaletę w postaci wprowadzenia opóźnienia czasowego (µsec) między wzbudzeniem donora a pomiarem emisji akceptora (t.j. test czasowo rozdzielony). Opóźnienie to zapewnia wystarczający czas na wygaśnięcie fluorescencji tła przed pomiarem fluorescencji emisyjnej akceptora. W rezultacie odczyt jest wolny od nieswoistej fluorescencji, co pozwala uzyskać wysoki stosunek sygnału do szumu (Rycina 1). Ponadto homogeniczny charakter HTRF eliminuje konieczność etapów płukania w celu usunięcia niezwiązanych cząsteczek, co sprawia, że test ten jest znacznie szybszy niż metody oparte na ELISA lub RIA.
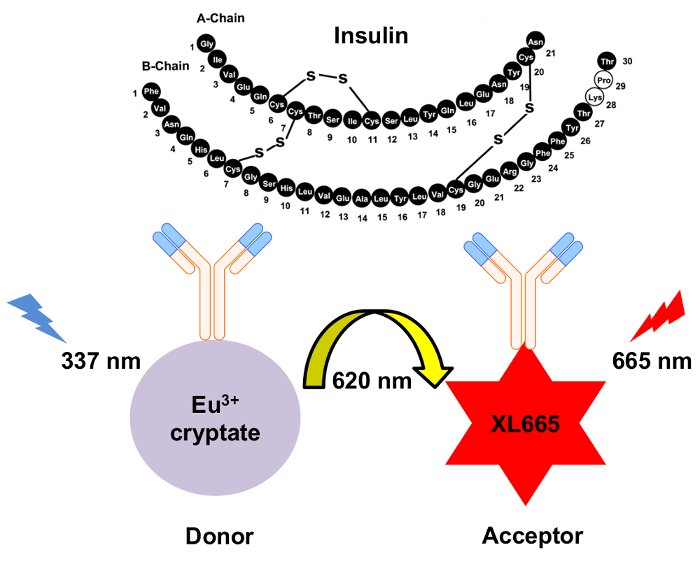
Rycina 1: Schemat mechanizmu detekcji insuliny metodą HTRF.Dwa niezależnie wytworzone przeciwciała monoklonalne specyficznie rozpoznają i wiążą insulinę w osobnych miejscach. Przeciwciała te są sprzężone albo z donorem w postaci kryptatu europu, albo z akceptorem XL665. Wzbudzenie donora przy 337 nm skutkuje emisją przy 620 nm. Wynikający z tego transfer energii powoduje emisję XL665 przy dłuższej fali, wynoszącej 665 nm. Proszę kliknąć tutaj, aby zobaczyć powiększoną wersję tej ryciny.
W niniejszej pracy przedstawiamy szczegółowy protokół wykorzystania metody opartej na technologii HTRF w celu oznaczenia poziomów GSIS z komórek INS-1E, dobrze udokumentowanej linii komórkowej insulinoma szczura, pochodzącej z wydzielających insulinę komórek beta15. Ponadto test ten może być wykorzystany do identyfikacji profilu farmakologicznego molekularnych regulatorów wydzielania insuliny. Stosujemy ten test insuliny oparty na HTRF, aby zbadać regulację GSIS przez receptory dopaminergiczne typu D2. Coraz więcej badań wskazuje, że neuroprzekaźnik dopamina jest istotnym regulatorem GSIS8,16,17,18,19,20,21,22. Dopamina wpływa na GSIS w negatywny sposób autokrynny/parakrynny poprzez działanie na receptory dopaminergiczne typu D2 (receptory D2, D3, D4) wykazujące ekspresję na powierzchni komórek beta trzustki8,16,19. Wykorzystując ten test, potwierdzamy rolę dopaminy jako negatywnego regulatora GSIS i wykazujemy, że agoniści receptorów dopaminergicznych typu D2 — bromokryptyna i kwinpirol — również redukują GSIS.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Komórki INS-1E: utrzymanie i wysiew
- Hodować komórki INS-1E w inkubatorze z nawilżaniem w temperaturze 37 ˚C i 5% CO2, w pożywce RPMI 1640 uzupełnionej o 5% (v/v) inaktywowaną ciepłem płodową surowicą bydlęcą, 2 mM L-glutaminy, 10 mM HEPES, 1 mM pirogronianu sodu, 100 U/mL roztworu penicyliny/streptomycyny oraz 50 µM β-merkaptoetanolu. Hodować komórki w 10 mL kompletnej pożywki RPMI 1640 (na płytkę) do momentu osiągnięcia 80 - 90% konfluencji, po czym można je poddać trypsynizacji i pasażowaniu lub wykorzystać do testu wydzielania insuliny.
- Dzień 1: Odessać pożywkę i jednorazowo wypłukać komórki 5 mL podgrzanego wcześniej PBS. Dodać 0,5 mL trypsyny (0,025%) rozcieńczonej w stosunku 1:1 w 0,5 mL PBS w celu trypsynizacji komórek i inkubować przez 3 - 4 min w temperaturze 37 ˚C. Zneutralizować trypsynę, dodając 9 mL kompletnej pożywki, a następnie przenieść komórki do probówki wirówkowej 15 mL za pomocą pipety.
- Osadzić komórki przez wirowanie i resuspender osad komórkowy w około 5 mL świeżej pożywki.
- Pobrać 10 µL resuspenderowanych komórek i wymieszać z 10 µL barwnika żywotności Trypan Blue w celu sprawdzenia żywotności komórek. Policzyć żywe i martwe komórki w 10 µL tej mieszaniny przy użyciu hemocytometru. Poziom żywotności powinien przekraczać 90%. Rozcieńczyć resuspenderowane komórki w świeżej pożywce do stężenia 1 milion komórek na mL.
- Zasiać 0,5 mL komórek INS-1E na studzienkę w 24-dołkowej płytce uprzednio powleczonej poli-L-lizyną, przy gęstości 500 000 komórek/studzienkę.
- Dzień 2: Usunąć pożywkę 18 - 24 h po wysianiu i dodać 500 µL/studzienkę świeżej pożywki RPMI 1640. Inkubować komórki przez kolejne 24 h, aby umożliwić im pełną regenerację po poprzednim etapie pasażowania. Ten dodatkowy czas pozwala komórkom na rozprzestrzenienie się na płytce do hodowli tkankowych.
2. Analiza sekrecji insuliny (Dzień 3)
- Przygotować bufor KRB: 132,2 mM NaCl, 3,6 mM KCl, 5 mM NaHCO3, 0,5 mM NaH2PO4, 0,5 mM MgCl2, 1,5 mM CaCl2 oraz 0,001 g/mL albuminy surowicy bydlęcej (BSA), pH 7,4.
- Odssać pożywkę z komórek i przemyć je dwukrotnie uprzednio ogrzanym PBS.
- W celu przeprowadzenia etapu głodzenia glukozowego dodać 450 µL/studzienkę buforu KRB (zawierającego BSA) bez glukozy i inkubować przez 1 h w temperaturze 37 ˚C/5% CO2.
- Podczas etapu głodzenia glukozowego przygotować rozcieńczenia szeregowe leku(ów) w buforze KRB zawierającym 200 mM glukozy (stężenie 10x).
- Przygotować lek w stężeniu 10x stężenia końcowego w buforze KRB uzupełnionym o 200 mM glukozy (co stanowi również 10x końcowe stężenie glukozy w analizie). Jeśli roztwór zapasowy leku (wraz z dodaną glukozą 10x) znajduje się w DMSO, należy upewnić się, że procentowa zawartość DMSO jest stała w całej analizie (idealnie końcowe stężenie DMSO poniżej 0,1%).
- W przypadku traktowania dopaminą i kwinpirolami zastosować końcowy zakres stężeń leku w analizie od 100 µM do 100 pM (od najwyższego do najniższego stężenia), przy czym ostatni punkt krzywej zależności od dawki nie powinien zawierać leku. Dla bromokryptyny zastosować końcowy zakres stężeń w analizie od 10 µM do 10 pM, gdzie ostatnim punktem krzywej zależności od dawki jest kontrola bez leku.
- Po etapie głodzenia glukozowego dodać rozcieńczenia szeregowe leku do analizy w celu uzyskania krzywej zależności od dawki.
- Dodać 50 µL/studzienkę każdego rozcieńczenia szeregowego do odpowiednich studzienek (całkowita objętość analizy 500 µL).
- W etapie stymulacji glukozowej inkubować komórki z odpowiednimi rozcieńczeniami szeregowymi leków (w obecności 20 mM glukozy) przez 90 min w temperaturze 37 ˚C/5% CO2. Należy uwzględnić zestaw studzienek kontrolnych: (1) stymulacja samą glukozą 20 mM w obecności braku dodatkowego leku oraz (2) komórki, które nie były stymulowane ani lekiem, ani glukozą (co pozwala określić podstawowe tempo sekrecji).
- Po etapie stymulacji ostrożnie usunąć nadsączniki (użyć bezpośrednio lub przechowywać w 4 ˚C).
UWAGA: Na tym etapie można wprowadzić dodatkowy krok delikatnego wirowania przez 5 min (600 x g, 1 min), aby usunąć pozostałe komórki z nadsączników analitycznych.
3. HTRF do pomiaru wydzielania insuliny
- Rozcieńczyć nadnadkliny z testu w stosunku 1:10 w buforze KRB (bez BSA), najlepiej w przezroczystych płytkach 96-dołkowych.
- Przygotować krzywą wzorców insuliny do testu HTRF z insuliną (Tabela 1).
| Standardowy roztwór zapasowy 500 ng/ml | Rozcieńczenia seryjne | Robieże stężenie [insuliny] ng/ml |
| STD 7 | 30 µl Stock + 140 µl KRB | 150 |
| STD 6 | 30 µl STD 7 + 45 µl KRB | 60 |
| STD 5 | 30 µl STD 6 + 45 µl KRB | 24 |
| STD 4 | 30 µl STD 5 + 45 µl KRB | 9.6 |
| STD 3 | 30 µl STD 4 + 45 µl KRB | 3.84 |
| STD 2 | 30 µl STD 3 + 45 µl KRB | 1.54 |
| STD 1 | 30 µl STD 2 + 45 µl KRB | 0.61 |
| STD 0 | 45 µl KRB | 0 |
| Uwaga: Roztwór zapasowy STD ma stężenie 500 ng/ml | ||
Tabela 1. Rozcieńczenia seryjne do przygotowania krzywej standardowej dla insuliny.
- Nanieść próbki do krzywej wzorcowej oraz rozcieńczone nadnadkrywa z analizy na płytkę HTRF. Pomiar wydzielanej insuliny metodą HTRF można przeprowadzić w formacie płytki 96-dołkowej lub 384-dołkowej, pamiętając o konieczności ponownego dostosowania objętości analizy. Należy użyć 10 µL/well próbki w białych płytkach 96-dołkowych o zredukowanej powierzchni (half-area) lub 5 µL/well w białych płytkach 384-dołkowych o niskiej objętości i okrągłym dnie (patrz Tabela materiałów).
- Przygotować mieszaninę przeciwciał w buforze detekcyjnym (patrz Tabela materiałów) w stosunku 1:2 donor (kryptat)/akceptor (XL-665).
UWAGA: Dalsze szczegółowe informacje na temat analizy HTRF są dostępne u producenta. - Dodać mieszaninę przeciwciał do analizy w ilości 30 µL/well (dla formatu płytki 96-dołkowej) lub 15 µL/well (dla formatu płytki 384-dołkowej).
- Uszczelnić płytkę i inkubować w temperaturze pokojowej.
- Odczytać płytkę po 2 h, 4 h i/lub inkubacji całonocnej z przeciwciałami, korzystając z czytnika płytek i odpowiedniego modułu optycznego HTRF (337 665 620 nm) (patrz Tabela materiałów oraz instrukcje producenta). Ustawić start integracji na 60 µs oraz czas integracji na 400 µs. Użyć 200 błysków na dołek.
UWAGA: Parametry te oparto na użyciu naszego konkretnego czytnika. Odczyt przy 620 nm i 665 nm może się różnić w zależności od urządzenia. Jest to jeden z powodów, dla których sugerujemy stosowanie stosunku 665/620. Przy obliczaniu tego stosunku wszelkie potencjalne różnice między czytnikami zostaną znormalizowane, co zapewni spójne wartości niezależnie od instrumentu użytego do pomiaru HTRF.
4. Analiza i normalizacja danych
- Oblicz stężenia insuliny w dołkach testowych poprzez ekstrapolację ratiometrycznych odczytów fluorescencji (665 nm/620 nm) do krzywej wielomianowej drugiego stopnia (Ryc. 2).

Rycina 2: Krzywa wzorcowa insuliny. Do wygenerowania krzywej wzorcowej insuliny wykorzystano roztwór stokowy ludzkiej insuliny o znanych stężeniach. Uzyskane stosunki HTRF (665 nm/ 620 nm) naniesiono na wykres w funkcji stężeń insuliny. Dane najlepiej dopasowano do krzywej wielomianowej drugiego stopnia (R2 = 0.99996). Jest to reprezentatywna krzywa wzorcowa. Słupki błędu = SEM. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
- Przyjmując wyekstrapolowane dane jako ng/mL wydzielonej insuliny, znormalizuj (insulinę wydzieloną w odpowiedzi na rosnące stężenia ligandu) do średniej wartości z dołków testowych dla % maksymalnego wydzielania insuliny (warunek z samą glukozą 20 mM).
- Wykorzystaj dopasowanie krzywej (R2) z pojedynczego eksperymentu do obliczenia zmienności wewnątrz płytki. W ramach eksperymentu wyznacz indywidualne wartości R2 z duplikatów wewnątrz eksperymentalnych, co pozwoli na obliczenie błędu standardowego średniej dla dopasowania krzywej.
- W celu określenia zmienności między płytkami, wykorzystaj dane z co najmniej trzech oddzielnych eksperymentów, aby obliczyć błąd standardowy średniej dla wartości R2 zbiorczej krzywej.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Zwalidowaliśmy nasz test HTRF dla insuliny poprzez wygenerowanie krzywej standardowej insuliny z wykorzystaniem oczyszczonych standardów ludzkiej insuliny o zdefiniowanych stężeniach (Ryc. 2). Wygenerowanie krzywej standardowej pozwoliło nam na ekstrapolację ratiometrycznych odczytów fluorescencji, a tym samym na oznaczenie poziomów wydzielanej insuliny w odpowiedzi na działanie leków (Ryc. 2). Zmienność wewnątrz płyt dla dopasow...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Opisany tutaj test insuliny HTRF oferuje szybki i wydajny system do pomiaru wydzielania insuliny z systemu opartego na hodowanych komórkach. Jedną z najważniejszych zalet tego testu jest niski sygnał tła ze względu na wysoki stosunek sygnału do szumu. Dodatkowo potwierdziliśmy, że sygnał HTRF jest stabilny przez dłuższy czas (>24 h)7. Niemniej jednak, ponieważ przeciwciała monoklonalne wiążące insulinę szybko osiągają wysycenie wiązania po dodaniu do testu, na kinetykę wiązania przeciwciał może mi...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Dziękujemy Nicolasowi Pierre'owi (Cisbio Bioassays) za pomocne porady i dr Pierre'owi Maechlerowi (Uniwersytet Genewski) za hojne dostarczenie komórek INS-1E. Praca ta była wspierana przez fundusze z Departamentu Obrony (grant PR141292 dla Z.F.) oraz John F. and Nancy A. Emmerling Fund of The Pittsburgh Foundation (dla Z.F.).
Podziękowania
Autorzy nie mają nic do ujawnienia.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 96-dołkowa biała półpłytka | Greiner Bio-One | 82050-042 | |
| 384-dołkowa biała płytka o małej objętości i okrągłym dnie | Corning | 15100157 | |
| Insulina High Range Kit | Cisbio Bioassays | 62IN1PEH | 10 000 testowy zestaw do oznaczania insuliny na bazie HTRF |
| Czytnik płytek PHERAstar FSX | BMG Labtech | FSX | Czytnik płytek przystosowany do odczytów testów opartych na HTRF |
| Uszczelniacze do płytek | Fisher Scientific | DY992 | Do uszczelniania płytki podczas inkubacji przeciwciał |
| Hemocytometr | Hausser Scientific | 3100 | |
| RPMI Medium 1640 (1x) | Gibco | 11875-093 | [+] L-glutamina |
| Trypsyna 0.05% | Corning | 25-052-CI | 0,53 mM EDTA, (-) wodorowęglan sodu |
| DPBS (sól fizjologiczna buforowana fosforanem Dulbecco) | Corning | 21-031-CV | Bez wapnia i magnezu |
| Surowica bydlęca płodu | Corning | 35-010-CV | |
| HEPES | Gibco | 156-30-080 | |
| Pirogronian sodu | Gibco | ||
| Roztwór penicyliny/streptomycyny 100x | Corning | 30-002 CT | |
| 2-merkaptoetanol | Sigma | M1348 | |
| Trypan Blue Stain (0,4%) | Gibco | 15250-061 | |
| Chlorowodorek dopaminy | Sigma | 8502 | |
| Mesylan bromokryptyny | Tocris | 427 | |
| (-)-chlorowodorek chinpirolu | Tocris | 1061 | |
| Albumina surowicy bydlęcej | Calbiochem | 12659 | |
| Poli-L-lizyna | Sigma | P4832 | |
| Glukoza | Sigma | G7021 | |
| DMSO (sulcotlenek dimetylu) | Sigma | 276855 |
Bibliografia
- Taniguchi, C. M., Emanuelli, B., Kahn, C. R. Critical nodes in signalling pathways: Insights into insulin action. Nat Rev Mol Cell Biol. 7 (2), 85-96 (2006).
- Vetere, A., Choudhary, A., Burns, S. M., Wagner, B. K. Targeting the pancreatic beta-cell to treat diabetes. Nat Rev Drug Discov. 13 (4), 278-289 (2014).
- Despres, J. P., Lemieux, I. Abdominal obesity and metabolic syndrome. Nature. 444 (7121), 881-887 (2006).
- Kahn, S. E., Hull, R. L., Utzschneider, K. M. Mechanisms linking obesity to insulin resistance and type 2 diabetes. Nature. 444 (7121), 840-846 (2006).
- Barg, S. Mechanisms of exocytosis in insulin-secreting B-cells and glucagon-secreting A-cells. Pharmacol Toxicol. 92 (1), 3-13 (2003).
- Braun, M., Ramracheya, R., Rorsman, P. Autocrine regulation of insulin secretion. Diabetes Obes Metab. 14 Suppl 3, 143-151 (2012).
- Farino, Z. J., et al. Development of a rapid insulin assay by homogenous time-resolved fluorescence. PLoS One. 11 (2), e0148684(2016).
- Simpson, N., et al. Dopamine-mediated autocrine inhibitory circuit regulating human insulin secretion in vitro. Mol Endocrinol. 26 (10), 1757-1772 (2012).
- Heyduk, E., Moxley, M. M., Salvatori, A., Corbett, J. A., Heyduk, T. Homogeneous insulin and C-Peptide sensors for rapid assessment of insulin and C-peptide secretion by the islets. Diabetes. 59 (10), 2360-2365 (2010).
- Heyduk, T. Measuring protein conformational changes by FRET/LRET. Curr Opin Biotechnol. 13 (4), 292-296 (2002).
- Degorce, F. HTRF((R)): Pioneering technology for high-throughput screening. Expert Opin Drug Discov. 1 (7), 753-764 (2006).
- Degorce, F., et al. HTRF: A technology tailored for drug discovery - a review of theoretical aspects and recent applications. Curr Chem Genomics. 3, 22-32 (2009).
- Mathis, G. HTRF(R) Technology. J Biomol Screen. 4 (6), 309-314 (1999).
- Daijo, J. E., Sportsman, J. R. A time-resolved fluorescence immunoassay for insulin in rodent plasma. J Pharm Biomed Anal. 19 (3-4), 335-342 (1999).
- Merglen, A., et al. Glucose sensitivity and metabolism-secretion coupling studied during two-year continuous culture in INS-1E insulinoma cells. Endocrinology. 145 (2), 667-678 (2004).
- Ustione, A., Piston, D. W. Dopamine synthesis and D3 receptor activation in pancreatic beta-cells regulates insulin secretion and intracellular [Ca(2+)] oscillations. Mol Endocrinol. 26 (11), 1928-1940 (2012).
- Ustione, A., Piston, D. W. A simple introduction to multiphoton microscopy. J Microsc. 243 (3), 221-226 (2011).
- Ustione, A., Piston, D. W., Harris, P. E. Minireview: Dopaminergic regulation of insulin secretion from the pancreatic islet. Mol Endocrinol. 27 (8), 1198-1207 (2013).
- Rubi, B., et al. Dopamine D2-like receptors are expressed in pancreatic beta cells and mediate inhibition of insulin secretion. J Biol Chem. 280 (44), 36824-36832 (2005).
- Garcia-Tornadu, I., et al. Disruption of the dopamine d2 receptor impairs insulin secretion and causes glucose intolerance. Endocrinology. 151 (4), 1441-1450 (2010).
- Garcia-Tornadu, I., et al. New insights into the endocrine and metabolic roles of dopamine D2 receptors gained from the Drd2 mouse. Neuroendocrinology. 92 (4), 207-214 (2010).
- Lopez Vicchi, F., et al. Dopaminergic drugs in type 2 diabetes and glucose homeostasis. Pharmacol Res. 109, 74-80 (2016).
- Kalra, S., Kalra, B., Agrawal, N., Kumar, S. Dopamine: The forgotten felon in type 2 diabetes. Recent Pat Endocr Metab Immune Drug Discov. 5 (1), 61-65 (2011).
- Mahajan, R. Bromocriptine mesylate: FDA-approved novel treatment for type-2 diabetes. Indian J Pharmacol. 41 (4), 197-198 (2009).
- Caicedo, A. Paracrine and autocrine interactions in the human islet: more than meets the eye. Semin Cell Dev Biol. 24 (1), 11-21 (2013).
- Ballon, J. S., Pajvani, U., Freyberg, Z., Leibel, R. L., Lieberman, J. A. Molecular pathophysiology of metabolic effects of antipsychotic medications. Trends Endocrinol Metab. , (2014).
- Freyberg, Z., Aslanoglou, D., Shah, R., Ballon, J. S. Intrinsic and antipsychotic drug-induced metabolic dysfunction in schizophrenia. Front Neurosci. 11, 432(2017).
- de Leeuw van Weenen, E. J., et al. The dopamine receptor D2 agonist bromocriptine inhibits glucose-stimulated insulin secretion by direct activation of the alpha2-adrenergic receptors in beta cells. Biochem Pharmacol. 79 (12), 1827-1836 (2010).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
