Tutaj prezentujemy protokół pomiaru różnicy potencjału nosowego u myszy. Test określa ilościowo funkcję transbłonowych transporterów jonów, takich jak mukowiscydoza, transbłonowy regulator przewodnictwa i nabłonkowy kanał sodowy. Cenna jest ocena skuteczności nowych terapii mukowiscydozy.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Różnica potencjału nosowego w celu ilościowego określenia transnabłonkowego transportu jonów u myszy
W tym artykule
Podsumowanie
Streszczenie
Test różnicy potencjału nosa jest używany od prawie trzech dekad do pomocy w diagnozowaniu mukowiscydozy (CF). Okazał się pomocny w przypadkach osłabionych, oligo- lub jednoobjawowych postaci mukowiscydozy, zwykle diagnozowanych w późniejszym okresie życia, oraz zaburzeń związanych z mukowiscydozą, takich jak wrodzony obustronny brak nasieniowodów, idiopatyczne przewlekłe zapalenie trzustki, alergiczna aspergiloza oskrzelowo-płucna i rozstrzenie oskrzeli. Zarówno w warunkach klinicznych, jak i przedklinicznych test został wykorzystany jako biomarker do ilościowego określenia odpowiedzi na ukierunkowane strategie terapeutyczne w mukowiscydozie. Dostosowanie testu do myszy jest trudne i może wiązać się ze śmiertelnością. W artykule opisano odpowiednią głębokość znieczulenia wymaganą do utrzymania cewnika do nosa in situ w celu ciągłej perfuzji. Wymieniono w nim środki mające na celu uniknięcie aspiracji oskrzeli roztworów perfundowanych w nosie. Opisano w nim również opiekę nad zwierzętami na końcu testu, w tym podanie kombinacji antidotum leków znieczulających, prowadzące do szybkiego odwrócenia znieczulenia i pełnego wyzdrowienia zwierząt. Reprezentatywne dane uzyskane od myszy z mukowiscydozą i myszą typu dzikiego pokazują, że test rozróżnia mukowiscydozę i niemukowiscydozę. Ogólnie rzecz biorąc, opisany tutaj protokół pozwala na wiarygodne pomiary stanu funkcjonalnego transnabłonkowych transporterów chlorków i sodu u spontanicznie oddychających myszy, a także wielokrotne testy na tym samym zwierzęciu, przy jednoczesnym zmniejszeniu śmiertelności związanej z testem.
Wprowadzenie
Przez prawie trzy dekady, pomiary różnicy potencjału elektrycznego (PD) były używane do oceny stanu funkcjonalnego transbłonowych transporterów jonów wyrażonych na błonie śluzowej nosa, jako reprezentatywnych dla dystalnych dróg oddechowych1. Jako wieloetapowy test dynamiczny2,3, PD nosa umożliwia funkcjonalną dyssekcję transbłonowego regulatora przewodnictwa mukowiscydozy (CFTR) i aktywności nabłonkowego kanału sodowego (ENaC), które są zlokalizowane na błonach wierzchołkowych komórek nabłonka i odgrywają kluczową rolę w nawodnieniu powierzchni dróg oddechowych. Głównym zastosowaniem klinicznym nosowego testu PD jest pomoc w diagnozowaniu mukowiscydozy, najczęstszej śmiertelnej choroby genetycznej w populacjach rasy kaukaskiej, której średnia częstość występowania wynosi 1 na 2500 żywych urodzeń w krajach europejskich. Test od dawna okazuje się pomocny w diagnostyce osłabionych, oligo- lub monoobjawowych postaci mukowiscydozy, zwykle diagnozowanych w późniejszym okresie życia, oraz zaburzeń związanych z mukowiscydozą, takich jak wrodzony obustronny brak nasieniowodów, idiopatyczne przewlekłe zapalenie trzustki, alergiczna aspergiloza oskrzelowo-płucna i rozstrzenie oskrzeli4. Ostatnio klinometryczna ocena modulacji terapeutycznej podstawowej wady CFTR 5,6,7,8,9,10,11,12,13,14, 15,16 wykorzystał PD nosa w badaniach klinicznych nowych terapii mukowiscydozy. W warunkach przedklinicznych test został dostosowany do mouse17, aby umożliwić badanie bioaktywności nowych terapii ukierunkowanych na mukowiscydozę18,19,20,21. U myszy technika ta jest delikatna, opiera się na związanych z gatunkami różnicach anatomicznych w wielkości okolicy nosowej między gryzoniami a ludźmi, a głównie na istotnej roli bodźców sensorycznych z okolicy nosotwarznej u gryzoni. Wymaga przeszkolonych i wykwalifikowanych operatorów, dedykowanego sprzętu i materiałów.
mukowiscydoza jest wieloukładowym zaburzeniem gruczołów zewnątrzwydzielniczych, w którym przewlekła choroba układu oddechowego dominuje w obrazie klinicznym. Choroba jest spowodowana mutacjami w genie kodującym cykliczny kanał chlorkowy CFTR regulowany przez cykliczny monofosforan adenozyny (cAMP)22. Do tej pory zidentyfikowano ponad 2 000 mutacji CFTR 23. Najczęstsza mutacja24,25, występująca w prawie 90% alleli mukowiscydozy, odpowiada delecji fenyloalaniny w pozycji 508 łańcucha polipeptydowego białka (F508del-CFTR). Białko CFTR jest czysto omowym kanałem chlorkowym o małej przewodności. Istnieje również wiele dowodów na to, że CFTR reguluje inne mechanizmy transportu, w szczególności ENaC26,27. Wadliwy transport elektrolitu, w tym zmniejszona przewodność chlorków zależna od CFTR i zwiększona przewodność sodu zależna od ENaC, jest cechą charakterystyczną nabłonka mukowiscydozy. Ten pierwszy defekt znajduje odzwierciedlenie w zmniejszonej lub zniesionej repolaryzacji w odpowiedzi zarówno na gradient elektrochemiczny sprzyjający wypływowi chlorków, jak i dodanie izoprenaliny (agonisty β-adrenergicznego, który zwiększa wewnątrzkomórkowy cAMP) lub forskoliny (agonista cyklazy adenylanowej, niezatwierdzony do użytku klinicznego). Ta ostatnia wada znajduje odzwierciedlenie w podstawowej hiperpolaryzacji błony śluzowej nosa (bardziej ujemne PD) i zwiększonej odpowiedzi na amiloryd, lek moczopędny, który blokuje ENaC28.
modele myszy mukowiscydozy były często wykorzystywane w badaniach nad mukowiscydozą i były nieocenione w analizie patologii mukowiscydozy. Obecnie opisano co najmniej piętnaście modeli29, z których trzy są homozygotyczne pod względem najbardziej klinicznie istotnej mutacji F508del30,31,32. Jeden z tych trzech szczepów30, opracowany na Uniwersytecie Erazma w Rotterdamie, jest używany od prawie 20 lat w laboratorium Université catholique de Louvain (UCL). Model Cftrtm1Eur30 okazał się bardzo przydatny do badania wielonarządowej patofizjologii choroby mukowiscydozy i testowania skuteczności nowych strategii terapeutycznych18,19,20,21. Liczne problemy mogą wystąpić podczas lub wcześnie po (<24 h) nosowym teście PD u myszy. W niniejszej pracy opisano odpowiednią głębokość znieczulenia wymaganą do utrzymania cewnika donosowego in situ w celu ciągłej perfuzji oraz środki zapobiegające aspiracji oskrzeli roztworów perfundowanych w nosie. Opisano również opiekę nad zwierzętami na końcu badania, w tym podawanie kombinacji antidotum leków znieczulających, prowadzące do szybkiego odwrócenia znieczulenia i całkowitego wyzdrowienia zwierząt. W sumie procedury te pozwalają na wiarygodne pomiary u myszy oddychających spontanicznie, zmniejszenie śmiertelności związanej z testem i powtórzenie testu na tym samym zwierzęciu. Przedstawiono i omówiono reprezentatywne dane uzyskane z nosowego testu PD u myszy z mukowiscydozą i myszy typu dzikiego.
Protokół testu PD u myszy jest raportowany w trzech sesjach: ocena i postępowanie przed, w trakcie i po teście. W ocenie i postępowaniu przed badaniem szczegółowo opisano protokół przygotowania dwukanałowego cewnika do nosa oraz roztworów stosowanych do ciągłej perfuzji nosa. Podczas części testu poświęconej ocenie i zarządzaniu, konfiguracja eksperymentalna i obchodzenie się z myszą są szczegółowo analizowane. Na koniec opisano postępowanie ze zwierzęciem na koniec badania w celu poprawy pełnego powrotu do zdrowia zwierzęcia.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Badania i procedury zostały zatwierdzone przez komitet ds. etyki badań na zwierzętach UCL (2017/UCL/MD/015) oraz są zgodne z przepisami Wspólnoty Europejskiej dotyczącymi stosowania zwierząt w badaniach naukowych (CEE nr° 86/609). Badacze posiadają kwalifikacje do przeprowadzania eksperymentów na zwierzętach zgodnie z dyrektywą 2010/63/EU Parlamentu Europejskiego i Rady z dnia 22 września 2010 r. dotyczące ochrony zwierząt wykorzystywanych do celów naukowych.
1. Ocena i zarządzanie przed badaniem
- Przygotuj dwukanałową sondę nosową.
UWAGA: Sonda nosowa wykonana jest z dwukanałowej rurki kapilarnej, z których jeden kanał służy do ciągłego dopływu roztworów, a drugi jako kanał pomiarowy.- Podgrzej środkową część odcinka polietylenowej rurki o długości około 20 cm (średnica wewnętrzna 2,0 mm; średnica zewnętrzna 3,0 mm; Rysunek 1a) w płomieniu palnika gazowego, aż stanie się wystarczająco miękka, aby można ją było rozciągnąć (10–15 s).
- Rozciągnij oba końce, aby uzyskać bardzo cienką rurkę kapilarną odpowiedniej długości (~15 cm) i średnicy zewnętrznej (~0,1 mm) na potrzeby sondy nosowej (Rysunek 1b).
- Wyczyść i odżyrzyj dwie takie kapilary za pomocą czystego etanolu, połącz je taśmą (Rysunek 1c) i sklej klejem cyjanoakrylowym.
- Odtnij nadmiar długości sond za pomocą brzytwy lub skalpela, aby uzyskać optymalną długość dwukanałowej sondy wynoszącą około 8 cm (Rysunek 1d).
- Wstrzyknij wodę przez oba kanały, aby upewnić się, że są przepuszczalne.
- Zaznacz linię w odległości 5 mm od końca sondy.
UWAGA: Sondę wstawia się aż do zaznaczonej linii do nozdrza, tak aby wszystkie pomiary wykonywane były w tym samym miejscu w jamie nosowej. - Przechowuj dwukanałową sondę nosową w suchym pojemniku.
UWAGA: Można jej używać 6–10 razy, pod warunkiem odpowiedniego oczyszczenia bezpośrednio po zakończeniu badania.
- Przygotuj mieszaninę kremu.
- Delikatnie wymieszaj krem elektrolitowy i nasycony roztwór 3 M KCl w stosunku 1:1 (objętość do objętości), unikając powstawania drobnych pęcherzyków powietrza.
UWAGA: Mieszaninę kremu stosuje się do tworzenia mostków elektrodowych dla pomiarowej i odniesieniowej elektrody Ag/AgCl, jak pokazano na Rysunek 1.
- Delikatnie wymieszaj krem elektrolitowy i nasycony roztwór 3 M KCl w stosunku 1:1 (objętość do objętości), unikając powstawania drobnych pęcherzyków powietrza.
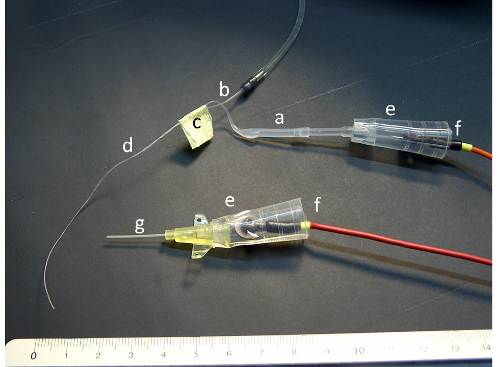
Rycina 1: Sondy z elektrodami i mostkami. Na rycinie pokazano polietylenową rurkę przed (a) i po podgrzaniu oraz rozciągnięciu (b), taśmę łączącą dwie części kapilarne (c) dwukanałowego cewnika (d), łączniki z rurki silikonowej (e) oraz elektrody (f). Dla jasności obrazu łączniki nie zostały wypełnione masą pastową. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Etykieta roztworu | Opis roztworu |
| A | Podstawowy roztwór soli buforowany |
| B | Buforowany roztwór soli pozbawiony chlorków |
| C | Stokowy roztwór amiloridu o stężeniu 10-2 M |
| D | Stokowy roztwór forskoliny o stężeniu 10-3 M |
Tabela 1: Roztwór macierzysty do testu PD w nosie u myszy.
| Sól | mM | Masa cząsteczkowa | g/L |
| Chlorek sodu (NaCl) | 135 | 58,44 | 7,889 |
| Chlorek wapnia dwuwodny (CaCl2.2H2O) | 2,25 | 147 | 0,331 |
| Chlorek magnezu sześciowodny (MgCl2.6H2O) | 1,2 | 203,3 | 0,244 |
| Fosforan potasu dwusiarczany (K2HPO4) | 2,4 | 174,2 | 0,418 |
| Fosforan potasu jednosodny (KH2PO4) | 0,4 | 136,1 | 0,054 |
Tabela 2: Skład podstawowego roztworu soli buforowanego (roztwór magazynowy A).
- Przygotuj roztwory.
- Przygotuj cztery roztwory magazynowe wymagane do protokołu eksperymentalnego (Tabela 1).
- Przygotuj podstawowy roztwór buforowy (roztwór magazynowy A; Tabela 2) oraz roztwór buforowy pozbawiony chlorków (roztwór magazynowy B; Tabela 3), mieszając sole w wodzie oczyszczonej w temperaturze pokojowej. Dostosuj pH do wartości 7,4 (zakres 7,0–7,6), używając 1 N NaOH do podniesienia pH lub 1 N HCl do obniżenia pH. Sprawdź osmolarność roztworu (275 mOsm/L).
- Przechowuj w oznakowanych butelkach szklanych w temperaturze 4 °C do 3 miesięcy lub zamrożone w butelkach plastikowych do 6 miesięcy.
- Przygotuj roztwór amiloridu o stężeniu 10-2 M (roztwór magazynowy C), dodając 26,6 mg chlorku amiloridu do 10 mL wody oczyszczonej. Podgrzewaj mieszaninę przez 5–10 minut w temperaturze 70 °C. Ponieważ amilorid jest wrażliwy na światło, przechowuj roztwór C w pojemniku przeciwsłonecznym. Oznakuj pojemnik i przechowuj w temperaturze 4 °C do 3 miesięcy.
- Przygotuj roztwór forskoliny o stężeniu 10-3 M (roztwór magazynowy D), dodając 10 mg forskoliny do 24,36 mL wody oczyszczonej. Rozdziel roztwór magazynowy forskoliny na porcje po 0,1 mL, oznakuj i przechowuj w temperaturze -20 °C do 6 miesięcy.
- Przygotuj cztery roztwory magazynowe wymagane do protokołu eksperymentalnego (Tabela 1).
- Przygotuj świeże roztwory A1, B1 i B2 (Tabela 4).
- Przygotuj świeży roztwór A1 (podstawowy roztwór soli buforowej z dodatkiem amiloridu o stężeniu 10-4 M), pobierając 10 mL roztworu soli podstawowych (roztwór magazynowy A) i dodając 0,1 mL roztworu amiloridu o stężeniu 10-2 M (roztwór magazynowy C). Oznakuj pojemnik i użyj w ciągu 24 godzin od przygotowania.
- Przygotuj świeży roztwór B1 (roztwór soli buforowej z chlorkami z dodatkiem amiloridu o stężeniu 10-4 M), pobierając 10 mL roztworu soli buforowej pozbawionego chlorków (roztwór magazynowy B) i dodając 0,1 mL roztworu amiloridu o stężeniu 10-2 M (roztwór magazynowy C). Oznakuj pojemnik i użyj w ciągu 24 godzin od przygotowania.
- Przygotuj świeży roztwór B2 (roztwór soli buforowej pozbawiony chlorków z dodatkiem amiloridu o stężeniu 10-4 M i forskoliny o stężeniu 10-5 M), pobierając 10 mL roztworu soli buforowej pozbawionego chlorków (roztwór magazynowy B) i dodając 0,1 mL roztworu amiloridu o stężeniu 10-2 M (roztwór magazynowy C) oraz 0,1 mL roztworu forskoliny o stężeniu 10-3 M (roztwór magazynowy D). Oznakuj pojemnik i użyj w ciągu 2 godzin od przygotowania.
| Sól | mM | Masa cząsteczkowa | g/L |
| Gluconian sodu (sól monosodowa) | 135 | 218,1 | 29,444 |
| Gluconian wapnia (proszek bezwodny) | 2,2 | 430,4 | 0,947 |
| Siedmiowodny siarczan magnezu (MgCl2.6H2O) | 1,2 | 246,5 | 0,296 |
| Fosforan dwupotasowy (K2HPO4) | 2,4 | 174,2 | 0,418 |
| Fosforan jednopotasowy (KH2PO4) | 0,4 | 136,1 | 0,054 |
Tabela 3: Skład buforowanego roztworu bez chlorków (roztwór magazynowy B).

Rycina 2: Położenie myszy podczas przepływu przez błonę śluzową nosa. Na rycinie pokazano podgrzewane podłoże (a), woltomierz (b), elektrodę odniesienia umieszczoną w przestrzeni podskórnej jednej z tylnych kończyn (c), górny (d) i dolny (e) przewód wylotowy pompy perystaltycznej, poduszkę (f) oraz prześcieradło (g). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
2. Ocena i zarządzanie podczas testu
- Przygotuj stanowisko doświadczenia.
- Aby zapobiec hipotermii podczas i po przeprowadzeniu testu, użyj dwóch podgrzewanych mata, utrzymywanych w temperaturze fizjologicznej: jednej dla stanowiska pomiarowego (18,8 x 37,5 cm; Rycina 2a), a drugiej (15,5 x 15,5 cm) dla pojemnika, w którym zwierzę zostanie umieszczone w celu regeneracji na końcu testu.
- Włącz komputer wyposażony w oprogramowanie do rejestracji danych podłączone do miernika napięcia o wysokim oporze wejściowym pamięci danych (>1012Ω) i wysokiej rozdzielczości (0,1 mV) (Rycina 2b).
- Podłącz elektrody do woltomierza. Podłącz dodatnią elektrodę pomiarową do kaniuli nosowej, a ujemną elektrodę odniesienia do kaniuli umieszczonej w przestrzeni podskórnej w jednej z tylnych kończyn, jak pokazano na Rycina 2c.
- Zanurz końcówki elektrod razem w masie kremowej. Sprawdź początkową wartość offsetu elektrody. Odrzuć elektrody, jeśli wartość przekracza (±) 2 mV (idealnie 0 mV).
- Włącz pompę perystaltyczną i umieść rurkę pompy we właściwym położeniu, jak pokazano na Rycina 2.
- Podłącz bliższe ujście rurki pompy do fiolki zawierającej wybrany roztwór do perfuzji nosowej (Rycina 2d). Podłącz dalsze ujście rurki pompy do światła perfuzyjnego kaniuli nosowej (Rycina 2e).
- Wypełnij jedno ze światł kaniuli nosowej masą kremową za pomocą końcówki pipety 10 µL. Dopasuj kaniulę do łącznika z silikonowej rurki (Rycina 1e), wypełnij łącznik masą kremową i umieść dodatnią elektrodę w łączniku (Rycina 1f). Sprawdź wartość offsetu mostka elektrody pomiarowej. Odrzuć mostki, jeśli wartość przekracza (±) 2 mV (idealnie 0 mV).
- Wypełnij drugie światło kaniuli nosowej świeżym roztworem A1. Zanurz końcówkę kaniuli nosowej w fiolce zawierającej roztwór A. Odwróć kierunek pompy perystaltycznej, aby wypełnić odcinek kaniuli nosowej odpowiadający 10 s perfuzji.
UWAGA: Pozwala to na rejestrowanie wartości PD w stanie podstawowym przez 10 s przed zastosowaniem amiloridu. Zanurz końcówkę kaniuli nosowej w masie kremowej wewnątrz łącznika elektrody odniesienia (Rycina 1).
- Rozpocznij pracę z myszą.
- Zanotuj masę ciała myszy, aby obliczyć dokładną dawkę środków znieczulających do wstrzyknięcia drogą dootrzewnową (ip)17.
- Używając igły 26G (0,45 x 10 mm), wstrzyknij wstępnie lek do znieczulenia drogą dootrzewnową w celu ułatwienia indukcji znieczulenia: stałą dawkę 50 µL midazolamu o stężeniu 5 mg/mL. Poczekaj 5 minut.
- Przygotuj mieszaninę znieczulającą (fentanil, medetomidyna, droperydol w końcowych stężeniach odpowiednio 0,05, 0,40 i 20 mg/kg masy ciała oraz klonidyna w stałej dawce 0,375 µg), zapewniającą optymalną i stabilną głębokość znieczulenia (etap III, płaszczyzna 2)17. Wstrzyknij objętość mieszaniny znieczulającej drogą dootrzewnową, a następnie wstrzyknij objętość klonidyny.
UWAGA: Po 15 minutach mysz powinna spać, a znieczulenie może trwać co najmniej 30 minut. - Złóż arkusz chłonnego materiału, tworząc „poduszkę” o szerokości 3 cm (Rycina 2f), która pokryje górną część podgrzewanej maty (Rycina 2a) i będzie służyć jako podpora dla głowy myszy.
- Pokryj matę podgrzewającą arkuszem chłonnego materiału („prześcieradło”; Rycina 2g). Ułóż mysz na plecach na podgrzewanej macie. Przyklej kończyny i ogon taśmą (Rycina 2).
- Wprowadź podskórną kaniulę dożylną (Rycina 1g) do przestrzeni podskórnej jednej z tylnych kończyn. Usuń igłę i dopasuj łącznik z silikonowej rurki (Rycina 1e, 2c).
- Wypełnij kaniulę i łącznik masą kremową i umieść ujemną elektrodę w łączniku (Rycina 1f).
- W razie potrzeby zamocuj kaniulę i elektrodę taśmą, aby zapobiec ich przemieszczeniu. Po umieszczeniu elektrody odniesienia i mostków ponownie sprawdź wartość offsetu mostka elektrody pomiarowej, zanurzając końcówkę kaniuli nosowej w masie kremowej wewnątrz łącznika kaniuli dożylnej. Zanotuj stabilną końcową wartość offsetu (idealnie mniejszą niż (±) 2 mV).
- Przyklej uszy myszy „delikatną” taśmą do podgrzewanej maty w wolnej przestrzeni między dwoma kawałkami materiału chłonnego („poduszka” (Rycina 2f) i „prześcieradło”; (Rycina 2g)). Zamocuj wibryssy (sztywne włosy rosnące w pobliżu nozdrzy), nie dotykając oczu.
- Aby wchłonąć płyn z jamy ustnej, przesuń język na bok (Rycina 3a) i umieść w jamie ustnej ostry knot z bibuły filtracyjnej („rurkę”; Rycina 3b) na głębokość około 1 cm. Aby wchłonąć płyn wyciekający z perfundowanego nozdrza, umieść drugi kawałek bibuły filtracyjnej („chusteczkę”; Rycina 3c) przy czubku nosa.
- Sprawdź wartość kontrolną dodatnią potencjału nabłonkowego, umieszczając końcówkę kaniuli nosowej w kontakcie z wnętrzem jamy ustnej.
UWAGA: Odczyt powinien być stabilny i zawierać się w przedziale od -10 mV do -20 mV. - Trzymając ją delikatnie szczypcami i w dobrym, bezpośrednim oświetleniu, wprowadź ostrożnie kaniulę nosową do jednego z nozdrzy na głębokość 4–6 mm od końca nosa.
UWAGA: Kaniula do pomiaru PD nosowego znajduje się w środkowej koszce nosowej w pozycji, która zapewnia maksymalną stabilną wartość PD w stanie podstawowym17,20. - 5 minut po wstrzyknięciu leków znieczulających delikatnie przechyl podgrzewaną matę o około 30°, tak aby głowa zwierzęcia była skierowana w dół. Monitoruj maksymalną wartość PD w stanie podstawowym.
- Gdy wartość ta będzie stabilna przez okres około 30 s, rozpocznij perfuzję błony śluzowej nosa w stałym tempie 10 µL/min, używając kolejno 4 roztworów buforowych (A, A1, B1, B2). Perfuzuj pierwszy roztwór (krok 1.3.1.1) przez 10 s, a każdy kolejny roztwór (krok 1.4) przez 5 min lub do momentu osiągnięcia stabilnej wartości. Zakończ perfuzję forskoliną (B2), gdy przejściowa odpowiedź na forskolinę zacznie maleć.
- Wybierz 1-sekundowy przedział do rejestracji danych. Rozpocznij rejestrowanie danych w chwili rozpoczęcia perfuzji. Wyświetlaj dane jako funkcję czasu na ekranie komputera.
- Zakończ rejestrowanie danych na końcu perfuzji roztworem B2. Zapisz dane jako plik arkusza kalkulacyjnego.
- Skoryguj dane, odejmując końcową wartość offsetu.

Rycina 3: Położenie myszy na podkładce grzewczej z założoną kanulą nosową i umieszczonymi bibułami filtracyjnymi. Na rycinie pokazano język odchylony na bok (a), rurkę (b) oraz chusteczkę (c). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
3. Ocena i zarządzanie po teście
- Wyjąć mysz z podgrzewanego mata.
- Wyczyścić nos myszy „prześcieradłem” (Rycina 2g).
- Podaj antagonistę znieczulenia do jamy otrzewnowej w postaci mieszaniny o stałej dawce (4 µg) naloksonu, konkurencyjnego antagonisty morfiny, oraz atypamezolu, specyficznego przeciwdziałającego medetomidynie (2 mg/kg masy ciała).
- Umieścić mysz na mniejszym podgrzewanym macie w pojemniku do regeneracji aż do pełnej regeneracji, która zazwyczaj następuje po 1–2 godzinach.
UWAGA: W laboratorium UCL obserwuje się śmiertelność na poziomie około 10%, przede wszystkim związaną z aspiracją oskrzelową roztworów podawanych do jamy nosowej podczas testu, niezależnie od płci czy genotypu.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Aby zilustrować charakterystyczne nieprawidłowości w transporcie jonów występujące w CF, pomiary PD w jamie nosowej wykonano zgodnie z powyższym protokołem u myszy F508del-CF oraz u kontrolnej myszy typu dzikiego o tle genetycznym FVB/129 z kolonii brukselskiej myszy Cftrtm1Eur30. Ten istotny klinicznie model, posiadający najczęstszą i jedną z najcięższych mutację F508del-CFTR23,24,
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Celem niniejszej pracy jest opisanie odpowiedniego protokołu pomiaru PD w nosie pod ciągłą perfuzją roztworów u spontanicznie oddychających myszy przez czas wymagany do zbadania integralności transporterów jonów, głównie CFTR i ENaC. Wszystkie etapy protokołu zostały starannie zoptymalizowane, aby zapewnić pełne odtworzenie zwierząt oraz dobrą jakość i powtarzalność danych. W szczególności krytycznymi etapami są ocena i postępowanie ze znieczuleniem oraz odpowiednia pozycja i opieka nad zwierzęciem w trakcie i po badaniu...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Autorzy dziękują prof. J. Lebacqowi za krytyczną redakcję manuskryptu. Myszy Cftrtm1Eur (homozygotyczne F508del-CFTR (FVB/129) zostały opracowane przez Erasmus MC w Rotterdamie w Holandii przy wsparciu Europejskiej Wspólnoty Gospodarczej Europejskiej Akcji Koordynacyjnej ds. Badań nad Mukowiscydozą EU FP6 LHHM-CT-2005-018932.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Tuba polietylenowa Portex | Smiths Medical, Hythe, Kent, Anglia CT21 6JL | Portex 800/100/500; 2,0 mm ID, 3,0 mmOD | do przygotowania kapilarnych rurek do sondy nosowej |
| Krem do elektrod | Parker, Fairfield, NJ, USA | Krem Redux | do budowy mostów elektrodowych |
| Elektrody Ag/AgCl | Biomedical, Clinton Township, MI, USA, JNS | BNT131-1,0 | Elektrody pomiarowe i referencyjne |
| Chlorowodorek amilorydu | Sigma, St Louis, MI, USA | A7410 | do przygotowania roztworów perfuzyjnych |
| forskolin | Sigma, St Louis, MI, USA | F6886 | do przygotowania roztworów perfuzyjnych |
| Woltomierz Knick Portamess | Elektronisch Meβ gerä te, Berlin, Niemcy | Portavo 904 pH | do pomiaru różnicy potencjałów |
| Paraly SW 112 Oprogramowanie | Elektronisch Meβ gerä te, Berlin, Niemcy | Oprogramowanie Paraly SW112 | do przechwytywania danych o różnicach potencjałów |
| midazolam | Mylan, Hoeilaart, Belgia | Dormicum 15 mg/3 ml | do stosowania jako premedykacja anestezjologiczna |
| fentanyl | Janssen Cilag, Berchem, Belgia | Fentanyl-Janssen 0,05 mg/ml | do stosowania jako lek znieczulający |
| medetomidyna | Orion Pharma, Espoo, Finlandia | Domitor 1 mg / ml | do stosowania jako lek znieczulający |
| droperidol | Janssen Cilag, Berchem, Belgia | Dehydrobenzperidol 2,5 mg/ml | do stosowania jako lek znieczulający |
| klonidyna | Boehringer Ingelheim Pharma KG, Ingelheim am Rhein, Niemcy | Catapressan 0,15 mg/ml, | do stosowania jako lek znieczulający |
| Cewnik dożylny | Becton Dickinson, Sandy, UT, USA | 24 GA x 0,75 IN, BD Insyte-W | do budowy mostków elektrodowych |
| kleszczy | Fine science Tools, Heidelberg, Niemcy | Dumont #5, Fine science Narzędzia | do zakładania cewnika do nosa |
| naloksonu | Braun Medical, Bruksela, Belgia | Narcan, 0,4 mg/ml | do stosowania jako antagonista środka znieczulającego |
| atipamezol | Zoetis, Bloomberg, Belgia | Antisedan, 5 mg/ml | jako antidotum specyficzne dla medetozyny |
| Poduszki grzewcze | Aparatura Harvarda, Holliston, MA, USA | 18,8x37,5 cm; 15,5x15,5 cm, | aby uniknąć hipotermii w trakcie i po teście |
| Pompa perystaltyczna P1 | GE Life Sciences, Uppsala, Szwecja | 18111091 | do perfuzji roztworów w nosie myszy |
| klej cyjanoakrylowy | Loctite, Henkel, Dü sseldorf, Niemcy | super klej 3 | do sklejenia ze sobą dwóch rurek kapilarnych do sondy nosowej |
| NaCl | Sigma, St Louis, MI, USA | RES0926S-A7 | Pharma-Grade, USP |
| CaCl2.2H2O | Sigma, St Louis, MI, USA | M7304 | Pharma-Grade, USP |
| MgCl2.6H2O | Sigma, St Louis, MI, USA | 1551128 | Pharma-Grade, USP |
| K2HPO4 | Sigma, St Louis, MI, USA | 1551139 | Klasa farmaceutyczna, USP |
| Na glukonian | Sigma, St Louis, MI, USA | S2054 | Klasa farmaceutyczna, USP |
| Ca glukonian | Sigma, St Louis, MI, USA | C8231 | Farmaceutyczny, USP |
| MgSO4.7H2O | Sigma, St Louis, MI, USA | RES0089M-A7 | Pharma-Grade, igła USP |
| BD | Becton Dickinson, Franklin Lakes, Stany Zjednoczone | BD 26G (0,45x10 mm) | wstrzyknięcie dootrzewnowe |
Bibliografia
- Knowles, M., Gatzy, J., Boucher, R. Increased bioelectric potential difference across respiratory epithelia in cystic fibrosis. New England Journal of Medicine. 305 (25), 1489-1495 (1981).
- Middleton, P. G., Geddes, D. M., Alton, E. F. W. Protocols for in vivo measurement of the ion transport defects in cystic fibrosis nasal epithelium. European Respiratory Journal. 7 (11), 2050-2056 (1994).
- Knowles, M. R., Paradiso, A. M., Boucher, R. C. In vivo nasal potential difference: techniques and protocols for assessing efficacy of gene transfer in cystic fibrosis. Human Gene Therapy. 6 (4), 445-455 (1995).
- Paranjape, S. M., Zeitlin, P. L. Atypical cystic fibrosis and CFTR-related disorders. Clinical Reviews in Allergy & Immunology. 35 (3), 116-123 (2008).
- Wilschanski, M., et al. A pilot study of the effect of gentamicin on nasal potential difference measurements in CF patients carrying stop mutations. American Journal of Respiratory and Critical Care Medicine. 161 (3), Pt 1 860-865 (2000).
- Clancy, J. P., et al. Evidence that systemic gentamicin suppresses premature stop mutations in patients with CF. American Journal of Respiratory and Critical Care Medicine. 163 (7), 1683-1692 (2001).
- Wilschanski, M., et al. Gentamicin-induced correction of CFTR function in patients with CF and CFTR stop mutations. New England Journal of Medicine. 349 (15), 1433-1441 (2003).
- Sermet-Gaudelus, I., et al. In vitro prediction of stop-codon suppression by intravenous gentamicin in patients with CF: a pilot study. BMC Medicine. 5, 5(2007).
- Clancy, J. P., et al. No detectable improvements in CF transmembrane conductance regulator by nasal aminoglycosides in patients with CF with stop mutations. American Journal of Respiratory and Cell Molecular Biology. 37 (1), 57-66 (2007).
- Kerem, E., et al. Effectiveness of PTC124 treatment of CF caused by nonsensemutations: a prospective phase II trial. Lancet. 372 (9640), 719-727 (2008).
- Sermet-Gaudelus, I., et al. Ataluren (PTC124) induces CF transmembrane conductance regulator protein expression and activity in children with nonsense mutation CF. American Journal of Respiratory and Critical Care Medicine. 182 (10), 1262-1272 (2010).
- Wilschanski, M., et al. Chronic ataluren (PTC124) treatment of nonsense mutation cystic fibrosis. European Respiratory Journal. 38 (1), 59-69 (2011).
- Accurso, F. J., et al. Effect of VX-770 in persons with CF and the G551D-CFTR mutation. New England Journal of Medicine. 363 (21), 1991-2003 (2010).
- Clancy, J. P., et al. Results of a phase IIa study of VX-809, an investigational CFTR corrector compound, in subjects with cystic fibrosis homozygous for the F508del-CFTR mutation. Thorax. 67 (1), 12-18 (2012).
- Leonard, A., Lebecque, P., Dingemanse, J., Leal, T. A randomized placebo-controlled trial of miglustat in cystic fibrosis based on nasal potential difference. Journal of Cystic Fibrosis. 11 (3), 231-236 (2012).
- De Boeck, K., et al. CFTR biomarkers: time for promotion to surrogate end-point. European Respiratory Journal. 41, 203-216 (2013).
- Leal, T., et al. Successful protocol of anaesthesia for measuring transepithelial nasal potential difference in spontaneously breathing mice. Laboratory Animals. 40 (1), 43-52 (2006).
- Lubamba, B., et al. Preclinical evidence that sildenafil and vardenafil activate chloride transport in cystic fibrosis. American Journal of Respiratory and Critical Care Medicine. 177 (5), 506-515 (2008).
- Lubamba, B., et al. Airway delivery of low-dose miglustat normalizes nasal potential difference in F508del cystic fibrosis mice. American Journal of Respiratory and Critical Care Medicine. 179 (11), 1022-1028 (2009).
- Lubamba, B., et al. Inhaled PDE5 inhibitors restore chloride transport in cystic fibrosis mice. European Respiratory Journal. 37 (1), 72-78 (2011).
- Vidovic, D., et al. rAAV-CFTRΔR Rescues the Cystic Fibrosis Phenotype in Human Intestinal Organoids and Cystic Fibrosis Mice. American Journal of Respiratory and Critical Care Medicine. 193 (3), 288-298 (2016).
- Stutts, M. J., et al. CFTR as a cAMP-dependent regulator of sodium channels. Science. 269 (5225), 847-850 (1995).
- Lubamba, B., Dhooghe, B., Noel, S., Leal, T. Cystic fibrosis: insight into CFTR pathophysiology and pharmacotherapy. Clinical Biochemistry. 45 (15), 1132-1144 (2012).
- Kerem, B., et al. Identification of the cystic fibrosis gene: genetic analysis. Science. 245 (4922), 1073-1080 (1989).
- Riordan, J. R., et al. Identification of the cystic fibrosis gene: cloning and characterization of complementary DNA. Science. 245 (4925), 1066-1073 (1989).
- Stutts, M. J., Rossier, B. C., Boucher, R. C. Cystic fibrosis transmembrane conductance regulator inverts protein kinase A-mediated regulation of epithelial sodium channel single channel kinetics. Journal of Biological Chemistry. 272 (22), 14037-14040 (1997).
- Ismailov, I. I., et al. Regulation of epithelial sodium channels by the cystic fibrosis transmembrane conductance regulator. Biological Chemistry. 271 (9), 4725-4732 (1996).
- Althaus, M. ENaC inhibitors and airway re-hydration in cystic fibrosis: state of the art. Current Molecular Pharmacology. 6 (1), 3-12 (2013).
- Wilke, M., et al. Mouse models of cystic fibrosis: phenotypic analysis and research applications. Journal of Cystic Fibrosis. 10, Suppl 2 152-171 (2011).
- Van Doorninck, J. H., et al. A mouse model for the cystic fibrosis delta F508 mutation. The EMBO Journal. 14 (18), 4403-4411 (1995).
- Colledge, W. H., et al. Generation and characterization of a delta F508 cystic fibrosis mouse model. Nature Genetics. 10 (4), 445-452 (1995).
- Zeiher, B. G., et al. A mouse model for the delta F508 allele of cystic fibrosis. Journal of Clinical Investigation. 96 (4), 2051-2064 (1995).
- Ghosal, S., Taylor, C. J., McGray, J. Modification of the nasal membrane potential difference with inhaled amiloride and loperamide in the cystic fibrosis (CF) mouse. Thorax. 51 (12), 1229-1232 (1996).
- Ghosal, S., Taylor, C. J., Colledge, W. H., Ratcliff, R., Evans, M. J. Sodium channel blockers and uridine triphosphate: effects on nasal potential difference in cystic fibrosis mice. European Respiratory Journal. 15 (1), 146-150 (2000).
- Leonard, A., et al. Comparative Variability of Nasal Potential Difference Measurements in Human and Mice. Open Journal of Respiratory Disease. 2, 43-56 (2012).
- Tannenbaum, J., Bennett, B. T. Russell and Burch's 3Rs then and now: the need for clarity in definition and purpose. Journal of the American Association for Laboratory Animal Science. 54 (2), 120-132 (2015).
- Pritchett-Corning, K. R., et al. AALAS/FELASA Working Group on Health Monitoring of rodents for animal transfer. Journal of the American Association for Laboratory Animal Science. 53 (6), 633-640 (2014).
- Salinas, D. B., et al. CFTR involvement in nasal potential differences in mice and pigs studied using a thiazolidinone CFTR inhibitor. American Journal of Physiology. Lung Cell Molecular Physiology. 287 (5), 936-943 (2004).
- Fisher, J. T., et al. Comparative processing and function of human and ferret cystic fibrosis transmembrane conductance regulator. Journal of Biological Chemistry. 287 (26), 21673-21685 (2012).
- Kaza, N., et al. Use of ferrets for electrophysiologic monitoring of ion transport. PLoS One. 12 (10), 0186984(2017).
- Leal, T., Beka, M., Panin, N., Mall, M. A., Noel, S. Nasal potential difference in βENaC-overexpressing mouse reveals pH-sensitive channel hyperactivity and shift of subunits stoichiometry. Journal of Cystic Fibrosis. 16 (S1), 72(2017).
- Mall, M., Grubb, B. R., Harkema, J. R., O'Neal, W. K., Boucher, R. C. Increased airway epithelial Na+ absorption produces cystic fibrosis-like lung disease in mice. Nature Medicine. 10 (5), 487-493 (2004).
- Shah, V. S., et al. Airway acidification initiates host defense abnormalities in cystic fibrosis mice. Science. 351 (6272), 503-507 (2016).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
