Ten protokół opisuje półautomatyczne podejście do produkcji komórek podobnych do hepatocytów z ludzkich pluripotencjalnych komórek macierzystych w formacie płytki 96-dołkowej. Proces ten jest szybki i opłacalny, co pozwala na produkcję partii komórek podobnych do hepatocytów o gwarantowanej jakości do podstawowych i stosowanych badań na ludziach.
Artykuł metodologiczny
Półautomatyczna produkcja komórek podobnych do hepatocytów z pluripotencjalnych komórek macierzystych
W tym artykule
Podsumowanie
Streszczenie
Ludzkie pluripotencjalne komórki macierzyste stanowią odnawialne źródło ludzkiej tkanki. Nasze badania koncentrują się na generowaniu ludzkiej tkanki wątroby z ludzkich embrionalnych komórek macierzystych (hESC) i indukowanych pluripotencjalnych komórek macierzystych (iPSC). Obecne procedury różnicowania generują ludzkie komórki podobne do hepatocytów (HLC) wykazujące mieszankę cech płodu i dorosłego osobnika. Aby poprawić fenotyp komórki, w pełni zdefiniowaliśmy naszą procedurę różnicowania i niszę komórkową, co spowodowało wygenerowanie populacji komórek, które wykazują lepszą ekspresję i funkcję genów. Chociaż badania te wskazują na postęp, zdolność do generowania dużych ilości płytek wielodołkowych do badań przesiewowych była ograniczona przez pracochłonne procedury i zmienność między partiami. Aby rozwiązać ten problem, opracowaliśmy półautomatyczną platformę do różnicowania pluripotencjalnych komórek macierzystych w HLC. Wysiew i różnicowanie komórek macierzystych przeprowadzono przy użyciu systemów obsługi płynów i automatycznego pipetowania w formacie płytki 96-dołkowej. Po różnicowaniu fenotyp komórki analizowano za pomocą mikroskopii automatycznej i luminometru wielodołkowego.
Wprowadzenie
Pierwotne ludzkie hepatocyty (PHH) reprezentują obecny standard badań biomedycznych wątroby. Pomimo swoich zalet, PHH stanowią ograniczone źródło dojrzałych hepatocytów o niestabilnym fenotypie1. Ludzkie embrionalne komórki macierzyste (ESC) i ludzkie indukowane pluripotencjalne komórki macierzyste (iPSC) zostały zaproponowane jako potężne źródło dla badań biomedycznych, obiecując odnawialne źródło tkanek ludzkich, w tym wątroby2,3,4. Obecne procedury różnicowania hepatocytów generują komórki, które wyrażają markery, geny i funkcje hepatocytów podobne do PHHs3,4,5,6,7,8,9,10,11. Ostatnio zastosowanie zdefiniowanych materiałów i matryc, takich jak rekombinowane lamininy, poprawiło fenotyp komórki i odtwarzalność eksperymentalną5,12,13,14.
Tradycyjne techniki hodowli komórkowych polegają głównie na ręcznym pipetowaniu, które jest zarówno czasochłonne, jak i podatne na błędy. Ogranicza to przepustowość testu i format płytki, z którym można pracować. Do tej pory większość badań opisujących generowanie HLC ma charakter pracochłonny, a zatem ma mały rozmiar15,16,17.
Obecny postęp w systemach obsługi cieczy i pipetowania, w połączeniu z automatyczną mikroskopią i analizatorami laboratoryjnymi, umożliwił opracowanie procedur, które minimalizują konieczność interwencji człowieka. Wykorzystaliśmy te technologie i opracowaliśmy półautomatyczny system różnicowania, za pomocą którego można generować duże ilości ludzkiej tkanki wątroby do podstawowych i stosowanych badań biomedycznych. Podejście to można przeprowadzić zarówno z ludzkimi liniami ESC, jak i iPSC z niewielkimi niezbędnymi korektami, w zależności od linii komórkowej. Łącząc ten system z analizą o wysokiej zawartości pokazujemy, że fenotypowanie HLC może być mniej czasochłonne i wykonywane na dużą skalę18,19,20,21.
Podsumowując, automatyzacja technik hodowli komórkowych opisanych tutaj doprowadziła do poprawy niezawodności, zarządzania czasem eksperymentów i przepustowości testów.
Protokół
1. Umieszczanie ludzkich pluripotencjalnych komórek macierzystych (hPSC) w 96-dołkowych płytkach w celu różnicowania hepatocytów
UWAGA: Odczynniki i sprzęt używany w tym protokole zostały wymienione w Tabeli 1. Pożywki użyte w tym eksperymencie muszą być sterylne i mieć temperaturę pokojową dla hodowli komórkowej. Wszystkie objętości odczynników/roztworów opisane w niniejszej części protokołu są oparte na pojedynczym dołku na 96-dołkowej płytce, chyba że określono inaczej.
- Przygotuj 96-dołkowe płytki pokryte lamininą.
- Rozmrażać fiolkę z rekombinowaną lamininą 521 (100 μg/ml) (LN-521) przez 2 godziny do nocy w temperaturze 4 °C.
- Przygotować roztwór o stężeniu 5 μg/ml, rozcieńczając LN-521 w lodowato zimnym 1x soli fizjologicznej buforowanej fosforanami Dulbecco (DPBS) (z Ca2+/Mg2+).
- Użyj automatycznego dozownika do obsługi cieczy ze standardową kasetą dozującą probówkę, aby dodać 50 μl roztworu LN-521 na dołek płytki 96-dołkowej.
UWAGA: Wszystkie dozowanie objętości odbywa się za pomocą automatycznego dozownika do obsługi płynów ze standardową kasetą dozującą rurkę, chyba że określono inaczej. Zalej roztwór, aż dotrze do końca dozującego kasety, a następnie przystąp do dozowania. W tym samym eksperymencie można przygotować wiele płytek 96-dołkowych, powtarzając procedurę tyle razy, ile potrzeba. - Inkubować płytki pokryte LN521 w temperaturze 37 °C/5% CO2 przez 2 do 4 godzin
UWAGA: Płytki z powłoką LN521 można przechowywać do dwóch tygodni w temperaturze 4 °C. Płytki należy przechowywać szczelnie na płaskiej powierzchni, aby uniknąć parowania i zanieczyszczenia.
- Rozgrzej wymaganą liczbę wstępnie pokrytych płytek w temperaturze 37 °C przez 30 minut do 1 godziny.
- Odessać pozostały roztwór LN-521 z powlekanej powierzchni za pomocą 8-kanałowego adaptera do zasysania.
UWAGA: Bardzo ważne jest, aby unikać kontaktu z powlekaną powierzchnią, aby uniknąć degradacji powłoki. - Natychmiast dodać 50 μl do studzienki pożywki mTeSR1 uzupełnionej 10 μM inhibitorem kinazy związanej z Rho (ROCK) Y27632 i przechowywać płytkę w inkubatorze do momentu wysiewu komórek w temperaturze 37 °C/5% CO2,
UWAGA: Nie dopuścić do wyschnięcia studzienek pokrytych lamininą. - Przygotować zawiesinę komórkową 3 x 10⁵ komórek/ml w pożywce mTeSR1 uzupełnionej inhibitorem 10 μM ROCK Y27632.
UWAGA: Gęstość wysiewu dla każdej linii komórkowej będzie wymagała optymalizacji.- Odessać pożywkę z szalki Petriego z niezróżnicowaną kulturą hPSC o zbiegu około 75% do 85%, hodowaną na LN-521, jak opisano wcześniej12.
UWAGA: hPSC są hodowane na LN-521 w mTSER1 z pożywką zmienianą co 24 godziny i regularnie pasażowane, gdy komórki osiągną 80% konfluencji, jak opisano wcześniej12. - Przemyć komórki 5 ml roztworu o temperaturze pokojowej 1x DPBS (bez Ca2+/Mg2+) i odessać bufor.
- Dodać 5 ml 1x Delikatny odczynnik do dysocjacji komórek do komórek i inkubować w temperaturze 37 °C przez 6 do 8 minut w celu dysocjacji komórek.
UWAGA: Aby zatrzymać reakcję, zbadaj oderwanie komórek od matrycy pod mikroskopem. Komórki powinny być częściowo oderwane od płytki. Jeśli nie, przedłuż inkubację o dodatkowe 1 do 2 minut. - Zakończ reakcję przez zasysanie odczynnika do delikatnej dysocjacji komórek i dodaj do komórek 5 ml świeżej pożywki mTeSR1 uzupełnionej 10 μM inhibitorem ROCK Y27632. Użyj skrobaka do komórek, aby podnieść komórki z matrycy i kilkakrotnie pipetować w górę iw dół, używając końcówki P1000, aby wymieszać.
- Policz żywe komórki za pomocą hemocytometru opartego na metodzie wykluczania barwienia błękitem trypanowym i przygotuj zawiesinę komórek o wymaganych stężeniach.
- Odpipetować żądaną liczbę komórek do sterylnej probówki wirówkowej o pojemności 15 ml lub 50 ml i odwirować komórki, odwirowując je przy 115 x g przez 5 minut w temperaturze pokojowej.
UWAGA: Na jedną płytkę 96-dołkową wymagane jest 5 ml pożywki mTeSR1 zawierającej 3 x 10⁵ komórek/ml dla linii komórkowej H9. - Odessać supernatant i delikatnie zawiesić osad komórkowy do uzyskania jednorodnego roztworu w temperaturze 37 °C w pożywce mTeSR1 uzupełnionej 10 μM inhibitorem ROCK Y27632.
UWAGA: Zaleca się stosowanie inhibitora ROCK, ponieważ poprawia on przeżywalność komórek po ponownym posiewaniu.
- Odessać pożywkę z szalki Petriego z niezróżnicowaną kulturą hPSC o zbiegu około 75% do 85%, hodowaną na LN-521, jak opisano wcześniej12.
- Dodać 50 μl zawiesiny komórkowej na 96-dołkową płytkę zawierającą 50 μl mTeSR1 z 10 μM inhibitorem ROCK Y27632.
- Po wysianiu należy umieścić płytki z powrotem w inkubatorze komórkowym w temperaturze 37 °C/5% CO2 przez 24 godziny, aby umożliwić przyczepienie się komórek.
- Zbadaj komórki następnego dnia i odstaw inhibitor ROCK po nawiązaniu kontaktu komórka-komórka. Przy 40% konfluencji przełącz się na podłoże różnicujące (Rysunek 1B).
UWAGA: Jeśli konfluencja komórek jest wyższa niż 40%, płytki nie nadają się do różnicowania HLC z linią komórkową H9.
2. Różnicowanie hPSC do komórek hepatocytów na rekombinowanych laminami na płytkach 96-dołkowych
- Przygotuj pożywkę różnicującą i czynniki wzrostu.
- Przygotować ludzki roztwór podstawowy Activiny A (100 μg/ml), rozpuszczając ludzką aktywinę A w proszku w sterylnej 0,2% albuminie surowicy bydlęcej (BSA) w PBS. Porcjować bulion i przechowywać w temperaturze -20 °C. Stosować w stosunku 1:1 000.
- Przygotować mysi roztwór podstawowy Wnt3a (10 μg/ml), rozpuszczając mysi proszek Wnt3a w sterylnym 0,2% BSA. Porcjować bulion i przechowywać w temperaturze -20 °C. Stosować w temperaturze 1:200.
- Przygotować roztwór podstawowy ludzkiego czynnika wzrostu hepatocytów (HGF) (10 μg/ml), rozpuszczając ludzki proszek HGF w sterylnym 0,2% BSA. Porcjować bulion i przechowywać w temperaturze -20 °C. Stosować w temperaturze 1:1000.
- Przygotować roztwór podstawowy onkostatyny M (OSM) (20 μg/ml), rozpuszczając proszek w sterylnym 0,2% BSA. Porcjować bulion i przechowywać w temperaturze -20 °C. Stosować w stosunku 1:1 000.
- Ostateczna endoderma: Przygotuj pożywkę różnicującą endodermę, składającą się z 2% suplementu B27 (50x, bez insuliny), 1% penicyliny/streptomycyny (końcowe stężenia: odpowiednio 100 IU/ml i 100 μg/ml) dodanego do podłoża podstawowego Roswell Park Memorial Institute 1640 (RPMI 1640). Przechowywać w temperaturze 4 °C i zużyć w ciągu dwóch tygodni. Przy każdej zmianie pożywki uzupełnij wymaganą objętość aktywiną A i Wnt3a w końcowym stężeniu odpowiednio 100 ng/ml i 50 ng/ml.
- Różnicowanie hepatoblastów: Przygotować pożywkę do różnicowania hepatoblastów, składającą się z 20% zamiennika surowicy nokautującej (KSR), 0,5% alternatywnego suplementu dla L-glutaminy, 1% aminokwasów endogennych (NEAA), 0,1 mM beta-merkaptoetanolu, 1% DMSO i 1% penicyliny/streptomycyny (końcowe stężenia odpowiednio 100 IU/ml i 100 μg/ml) dodanych do knockout DMEM (KO-DMEM). Przefiltrować w próżni i przechowywać w temperaturze 4 °C. Zużyć w ciągu dwóch tygodni.
- Różnicowanie hepatocytów: Przygotować pożywkę do różnicowania hepatocytów, składającą się z 1% alternatywnego suplementu dla L-glutaminy, 10 μM soli sodowej 21-hemibursztynianu hydrokortyzonu (HCC), 1% penicyliny/streptomycyny (końcowe stężenia odpowiednio 100 IU/ml i 100 μg/ml) dodanych do podłoża HepatoZYME. Przechowywać wywar w temperaturze 4 °C i zużyć w ciągu dwóch tygodni. Dla każdej zmiany pożywki należy uzupełnić wymaganą objętość HGF i OSM (stężenia końcowe odpowiednio 10 ng/ml i 20 ng/ml).
- 24 godziny po wysiewie ostrożnie usunąć pożywkę za pomocą automatycznego, ręcznego elektronicznego systemu pipet kanałowych i dodać 100 μl świeżej pożywki gruntującej endodermę uzupełnionej 100 ng/ml aktywiny A i 50 ng/ml Wnt3a.
UWAGA: Proces różnicowania rozpoczyna się po dodaniu ostatecznej pożywki endodermy. Po zoptymalizowaniu wysiewu komórek różnicowanie komórkowe jest zwykle inicjowane w ciągu 24 godzin. Wszystkie zmiany pożywki są wykonywane poprzez usunięcie pożywki za pomocą automatycznego ręcznego elektronicznego systemu pipet kanałowych i dozowanie 100 μl świeżej pożywki za pomocą automatycznego dozownika do obsługi cieczy ze standardową kasetą dozującą rurkę, chyba że określono inaczej. Zastosowano automatyczny, ręczny system pipet kanałowych z elektroniczną głowicą 96-dołkową, wykorzystujący końcówki o pojemności 300 μl. Krótko mówiąc, 90 μl odessano ze studni, unikając kontaktu z komórkami, i ważne jest, aby nie suszyć komórek podczas zmiany pożywki, aby zmniejszyć stres komórkowy. - W przypadku ludzkich embrionalnych komórek macierzystych (hESC) należy zmieniać pożywkę różnicującą endodermę codziennie przez trzy dni. Jeśli różnicowanie przeprowadza się dla ludzkich indukowanych pluripotencjalnych komórek macierzystych (hiPSC), należy przedłużyć ostateczny etap endodermy o dodatkowe 2 dni, stosując tylko aktywinę A.
- Po ostatecznej indukcji endodermy, zmień pożywkę na KSR/DMSO w celu specyfikacji hepatoblastów i zmieniaj pożywkę co 2 dni przez 5 dni.
UWAGA: Jeśli w studzience znajduje się wiele nieprzyłączonych komórek, użyj nieuzupełnionego KO-DMEM, aby umyć komórki raz przed następną zmianą pożywki. Ze względu na czas trwania drugiego etapu protokołu (5 dni) nastąpią 3 zmiany podłoża, z których ostatnia będzie miała miejsce w ostatnim dniu specyfikacji hepatoblastu. - Po różnicowaniu hepatoblastów należy zmienić pożywkę na HepatoZYME w celu dojrzewania hepatocytów. Umyj komórki raz HepatoZYME bez suplementu po usunięciu pożywki KSR/DMSO i dodaj 100 μl pożywki do dojrzewania HepatoZYME uzupełnionej 10 ng/ml HGF i 20 ng/ml OSM.
- Zmieniaj podłoże co 48 godzin przez 7 do 10 dni. W 18 dniu różnicowania należy scharakteryzować HLC, analizując ekspresję genu i aktywność metaboliczną CYP P450.
3. Charakterystyka komórek podobnych do hepatocytów zróżnicowanych na rekombinowanych lamininach
- Wykrywanie ekspresji markerów specyficznych dla hepatocytów i markerów polaryzacji za pomocą barwienia immunologicznego.
- Przetestuj funkcję metaboliczną hepatocytów za pomocą testów CYP P450, jak opisano wcześniej12.
- Określ odmianę płytki, zliczając całkowitą liczbę komórek w dołku na płytkę.
4. Wysokoprzepustowa immunocytochemia i akwizycja obrazów
- W 18 dniu różnicowania umyj studzienki trzykrotnie 1x DPBS, utrwal HLC, dozując 50 μl 4% paraformaldehydu (PFA) i inkubuj w temperaturze pokojowej przez 15 do 30 minut. Po utrwaleniu przemyć trzykrotnie PBST (0,1% tween) (bez Ca2+/Mg2+) za pomocą automatycznej myjki do płytek.
UWAGA: Wszystkie mycia w tej sekcji są wykonywane przy użyciu automatycznej myjki do płyt, chyba że określono inaczej. Wszystkie prania odbywają się zgodnie z tym samym protokołem. - Przepuszczalność błony należy przeprowadzić dozując 100 μl PBST (bez Ca2+/Mg2+) i inkubować przez 20 minut w temperaturze pokojowej. Następnie należy przeprowadzić blokowanie białka, dozując 100 μl 10% BSA w PBST i inkubować przez 1 godzinę w delikatnym wstrząsaniu za pomocą wytrząsarki płytkowej. Po zablokowaniu białka dodać 50 μl 1% BSA do PBST zawierającego przeciwciała pierwszorzędowe, inkubować w temperaturze 4 °C przez noc, delikatnie wstrząsając za pomocą wytrząsarki do płytek.
UWAGA: Nie myć między blokiem białkowym a dodatkiem przeciwciał. - Po 24 godzinach przemyć trzykrotnie 1x DPBS (bez Ca2+ / Mg2 +) i dodać przeciwciało drugorzędowe, dozując 50 μL 1% BSA w PBST. Inkubować 1 godzinę w temperaturze pokojowej w ciemności.
- Po wtórnej inkubacji przeciwciał przemyć 3 razy 1x DPBS. Dodać 50 μl DPBS z DAPI (10 μg/ml) i inkubować przez 5–10 minut w temperaturze pokojowej w ciemności.
- Na koniec przemyj 3 razy DPBS i pozostaw 100 μl 1x DPBS w studzience. Płyty są gotowe do obrazowania.
UWAGA: Płytki należy przechowywać w temperaturze 4 °C w ciemności do czasu obrazowania. - Zobrazuj płytkę za pomocą systemu obrazowania o wysokiej zawartości i uzyskaj kilka pól w poprzek studni, aby uzyskać dobre odwzorowanie studni. Określ ilościowo ekspresję różnych markerów w HLC za pomocą oprogramowania Columbus (oprogramowanie systemu analizy obrazowania o wysokiej zawartości).
UWAGA: Columbus to oprogramowanie do analizy o wysokiej zawartości, które oferuje analizę segmentacji komórek w celu fenotypowania komórek. Podobne wyniki można osiągnąć za pomocą CellProfiler, oprogramowania typu open source do ilościowej analizy obrazów biologicznych22.
Wyniki
Różnicowanie komórek przeprowadzono z wykorzystaniem linii embrionalnych komórek macierzystych (H9). Do różnicowania i charakterystyki komórek wykorzystano platformę półautomatyczną (Rysunek 1A). Do nanoszenia macierzy i wysiewu pojedynczych komórek użyto automatycznego dozownika cieczy. Różnicowanie komórkowe rozpoczęto w momencie, gdy komórki osiągnęły 40% konfluencji (Dzień 0). Wymiany pożywki przeprowadzano przy użyciu automatycznego ręcznego elektronicznego systemu pipet wielokanałowych do usuwania medium oraz dozownika cieczy do dodawania pożywki (Rysunek 1A). Fixację i barwienie komórek wykonano za pomocą automatycznego dozownika cieczy w połączeniu z automatyczną myjką do płytek. Obrazowanie i kwantyfikację przeprowadzono przy użyciu systemu obrazowania wysokotreściowego (high-content imaging system) oraz oprogramowania Columbus. Aktywność cytochromu P450 zmierzono przy użyciu ustalonego testu. Po inkubacji z substratem pobrano nadsącz komórkowy, a bioluminescencję zarejestrowano za pomocą wielomodalnego czytnika mikropłytek (Rysunek 1A). Dodatkowo zastosowano konwencjonalną mikroskopię fazowo-kontrastową w celu pomiaru zmian w morfologii komórek podczas różnicowania hepatocytów (Rysunek 1B).
W 18. dniu badano zmienność liczby komórek między dołkami po barwieniu DAPI (Rycina 2A). W każdym dołku zarejestrowano siedem pól widzenia i określono liczbę jąder (Rycina 2A). Nie stwierdzono istotnych statystycznie różnic między dołkami, przy średniej liczbie 41 662 ±3 366 komórek na dołek (Rycina 2B).
W 18. dniu HLC zostały utrwalone i zabarwione pod kątem typowych markerów hepatocytów (Rycina 3A-G), a następnie przetestowano ich aktywność CYP P450. HLC wykazywały ekspresję markerów hepatocytów, takich jak HNF4α (89,2% ±2 komórek dodatnich), ALB (92,8% ±6 komórek dodatnich) oraz AFP (61,8% ±2 komórek dodatnich). HLC wykazywały również ekspresję białek CYP P450, CYP2D6 oraz CYP3A4, a także posiadały charakterystyczny wieloboczny wygląd, co potwierdziła ekspresja białka E-Cadherin. Aktywność CYP P450 w HLC zmierzono w 18. dniu. HLC wykazały aktywność CYP1A2 na poziomie 295 906 ±45 828 RLU/mL/mg białka oraz CYP3A na poziomie 1 066 112 ±177 416 RLU/mL/mg białka (Rycina 3H).
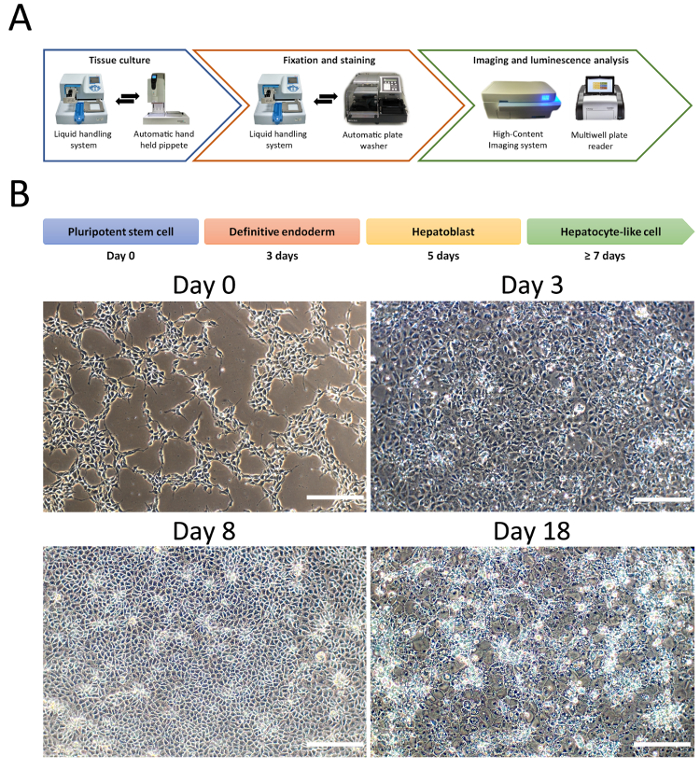
Rycina 1: Różnicowanie hepatocytów z PSC w formacie 96-dołkowym. (A). Schemat aparatury wykorzystywanej do półautomatycznego różnicowania komórkowego, fiksacji, barwienia, obrazowania i analizy aktywności funkcjonalnej. (B). Reprezentatywne zmiany w morfologii komórek podczas różnicowania do HLC. W skrócie: PSC są kierowane w stronę ostatecznej endodermy, po czym następuje specyfikacja hepatoblastów, charakteryzująca się komórkami o morfologii przypominającej brukowaną uliczkę, a następnie dojrzewanie hepatocytów, w którym komórki przyjmują kształt wieloboczny. Pasek skali = 100 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
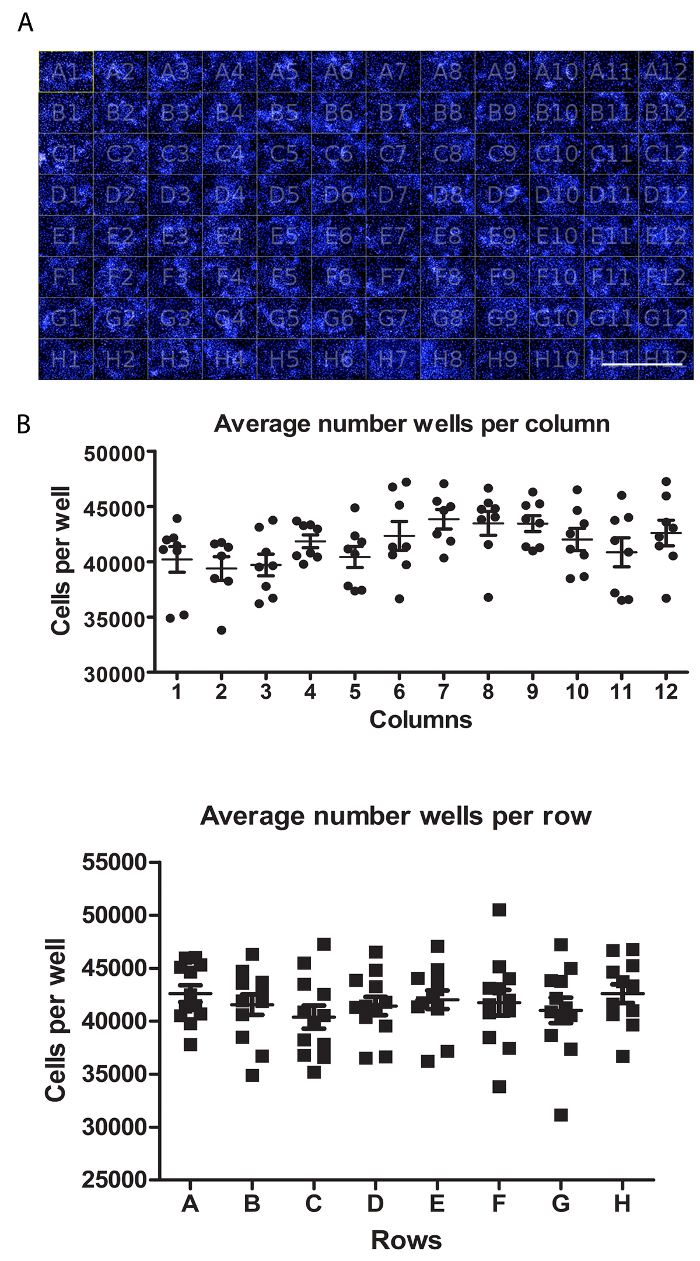
Rycina 2: Ocena zmienności między dołkami HLCs. (A) Widok płytki 96-dołkowej z HLCs barwionymi DAPI. Pasek skali = 1 mm. (B) Ilościowe oznaczenie liczby komórek na dołek. Średnia liczba komórek w dołkach w kolumnach (góra) i rzędach (dół), obliczona na podstawie siedmiu pól widzenia na dołek i skwantyfikowana przy użyciu oprogramowania Columbus. Średnia liczba komórek na całej płytce wynosi 41 662 ± 3 366 SEM komórek na dołek. Nie zaobserwowano statystycznie istotnych różnic między dołkami. Zastosowano jednoczynnikową analizę wariancji (One-way ANOVA) z testami post-hoc Tukeya. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
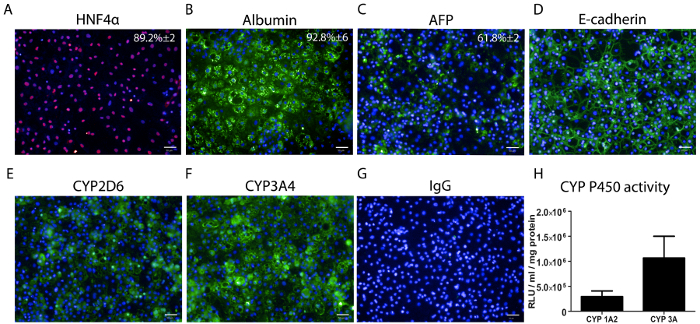
Rycina 3: Ekspresja markerów hepatocytów i pomiar aktywności CYP P450 w HLC w 18. dniu. (A) Procentowa ekspresja czynnika jądrowego hepatocytów 4 alfa (HNF4α) ± SEM została obliczona na podstawie trzydziestu studzienek przy dziesięciu polach widzenia na studzienkę. (B) Procentowa ekspresja albuminy (ALB) +/- SEM została obliczona na podstawie 3 oddzielnych studzienek przy dziesięciu polach widzenia na studzienkę. (C) Procentowa ekspresja alfa-fetoproteiny (AFP) +/- SEM została obliczona na podstawie 3 oddzielnych studzienek przy dziesięciu polach widzenia na studzienkę. (D) Barwienie na E-kadherynę. (E) Barwienie na CYP2D6. (F) Barwienie na CYP3A4. (G). Kontrola barwienia przeciwciałami IgG (immunoglobulina G). Pasek skali = 50 µm. (H) Aktywność metaboliczna CYP P450 1A2 i 3A w HLC w 18. dniu. Dane reprezentują sześć powtórzeń biologicznych +/- SEM. Aktywność podano jako względne jednostki światła (RLUs)/mL na 1 mg białka. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Nasza półautomatyczna procedura jest wydajna, niezawodna i ekonomiczna, co pozwala na produkcję HLC na dużą skalę (ilustracja 1). Nie było żadnej znaczącej różnicy pod względem liczby komórek między dołkami w płytce, co czyni tę platformę odpowiednim podejściem do badań przesiewowych opartych na komórkach (ryc. 2). Ponadto półautomatyczny przepływ pracy umożliwia użytkownikowi produkcję dużej liczby płyt jednocześnie, co nie było możliwe przed zastosowaniem procesów ręcznych 5,12.
Co ważne, proces automatyzacji nie miał wpływu na wydajność różnicowania, przy czym większość komórek wykazywała ekspresję HNF4α (89,2%±2) i ALB (92,8%±6) (Figura 3). HLC wykazywały również ekspresję enzymów CYP2D6 i CYP3A4 CYP2D6 i CYP3A4 oraz wykazywały aktywność metaboliczną CYP1A2 i CYP3A porównywalną z poprzednimi opisanymi eksperymentami (Figura 3)5. Pomimo standaryzacji protokołu, zbieg komórek przed różnicowaniem ma kluczowe znaczenie dla czystego różnicowania HLC. Dlatego ważną kwestią jest zapewnienie dobrego rozmieszczenia komórek w studzience (ryc. 1). Okazało się, że jest to zależne od linii komórkowej, dlatego przed zwiększeniem skali wymagane jest wysiewanie komórek i optymalizacja gęstości dla każdej linii komórkowej.
W swojej obecnej formie platforma ta nie nadaje się do produkcji dużych ilości HLC do zastosowań klinicznych, a najprawdopodobniej zostanie to osiągnięte dzięki wykorzystaniu fabryk komórek i bioreaktorów. Opracowana metodologia pozwala jednak na szybkie generowanie ludzkich komórek wątroby na potrzeby modelowania choroby, badań przesiewowych leków i/lub badań nad zmianą przeznaczenia leków. Co więcej, test nadaje się do multipleksowania, co pozwala na generowanie wieloparametrycznych zestawów danych do analizy mechanistycznej. Patrząc w przyszłość, wierzymy również, że technologia ta może być zastosowana do bardziej złożonych systemów in vitro , takich jak różnicowanie 3D lub jako platforma do poprawy fenotypu HLC in vitro.
Podsumowując, wierzymy, że nasz prosty i półautomatyczny system zwiększy przepustowość eksperymentów i zmniejszy zmienność eksperymentalną, poprawiając w ten sposób jakość zbiorów danych biologicznych i ich ekstrapolację na fizjologię człowieka.
Oświadczenia
Prof. David C. Hay jest współzałożycielem i dyrektorem Stemnovate Limited.
Prof. David C. Hay jest dyrektorem HigherSteaks Limited.
Podziękowania
Ta praca została wsparta nagrodami z Biura Głównego Naukowca (TCS/16/37) oraz stypendium doktoranckim MRC.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 405 LS Podkładka | Biotek | ||
| B27 suplement | Life Technologies | 12587-010 | |
| beta-merkaptoetanol | Life Technologies | 31350 | |
| Albumina surowicy bydlęcej | Sigma-Aldrich | A2058 | |
| DMSO | Sigma-Aldrich | D5879 | |
| DPBS z wapniem i magnezem | ThermoFisher | ||
| Delikatny odczynnik do dysocjacji komórek | STEMCELL Technologies | 7174 | |
| GlutaMax | Life Technologies | 35050 | |
| GripTips do VIAFLO 96 | Integra | 6434 | |
| HepatoZYME-SFM | Life Technologies | 17705021 | |
| Human Activin A | Peprotech | 120-14E | |
| Ludzki czynnik wzrostu hepatocytów | Peprotech | 100-39 | |
| Ludzka onkostatyna M | Peprotech | 300-10 | |
| Ludzka rekombinowana Laminina 521 | BioLamina | LN521-02 | |
| Hydrokortyzon 21-hemibursztynian sól sodowa | Sigma-Aldrich | H4881 | |
| Nokaut | DMEM Life Technologies | 10829 | |
| Nokaut Serum Replacement | Life Technologies | 10828 | |
| mTeSR1 medium | STEMCELL Technologies | 5850 | |
| Dozownik odczynników MultidropCombi | ThermoFisher | 5840300 | |
| Aminokwasy endogenne | Life Technologies | 11140 | |
| Operetkowy system obrazowania o wysokiej zawartości | PerkinElmer | HH12000000 | |
| Penicylina-Streptomycyna (10 000 U/ml) | Life Technologies | 15140122 | |
| Rekombinowana mysz Wnt3a | R& D Systems | 1324-WN-500/CF | |
| Inhibitor kinazy związanej z rho (ROCK) Y27632 | Sigma-Aldrich | Y0503-1MG | |
| RPMI 1640 | Life Technologies | 21875 | |
| Standardowa kaseta dozująca rurki | ThermoFisher | 24072670 | |
| TWEEN 20 | Sigma-Aldrich | P9416 | |
| VIAFLO 96 Elektroniczna pipeta 96-kanałowa | Integra | 6001 | |
| PBS, bez wapnia, bez magnezu | ThermoFisher | 14190250 | |
| Roztwór formaldehydu 4%, buforowany, pH 6,9 | Sigma-Aldrich | 1,00496 EMD MILLIPORE | |
| P450-Glo CYP3A4 System oznaczania i badań przesiewowych | Promega | V8801 | |
| P450-Glo CYP1A2 System oznaczania i badań przesiewowych | Promega | V8771 | |
| DAPI | Invitrogen | D1306 | |
| Przeciwciała | |||
| Albumina | Sigma-Aldrich | A6684 | 1:200 (mysz) |
| Alfa-fetoproteina | Abcam | ab3980 | 1:500 (mysz) |
| CYP2D6 | Uniwersytet w Dundee | Uniwersytet w Dundee | 1:200 (owce) |
| CYP3A4 | Uniwersytet w Dundee | Uniwersytet w Dundee | 1:200 (owce) |
| HNF-4&alfa; | Santa Cruz | sc-8987 | 1:400 (królik) |
| E-kadheryna | Abcam abcam | ab76055 | 1:200 (mysz) |
| IgG | DAKO | 1:400 | |
| Anti-Mouse 488 (przeciwciało wtórne) | Technologie życiowe | A-11001 | 1:400 |
| Anti-sheep 488 (przeciwciało drugorzędowe) | Technologie życia | A-11015 | 1:400 |
| Anti-rabbit 488 (przeciwciało drugorzędowe) | Technologie życiowe | A-11008 | 1:400 |
Bibliografia
- Forbes, S. J., Gupta, S., Dhawan, A. Cell therapy for liver disease: From liver transplantation to cell factory. J Hepatol. 62 (1, Supplement), S157-S169 (2015).
- Avior, Y., Sagi, I., Benvenisty, N. Pluripotent stem cells in disease modelling and drug discovery. Nat Rev Mol Cell Biol. 17 (3), 170-182 (2016).
- Szkolnicka, D., Lucendo-Villarin, B., Moore, J. K., Simpson, K. J., Forbes, S. J., Hay, D. C. Reducing Hepatocyte Injury and Necrosis in Response to Paracetamol Using Noncoding RNAs. Stem Cells Transl Med. 5 (6), 764-772 (2016).
- Choudhury, Y., et al. Patient-specific hepatocyte-like cells derived from induced pluripotent stem cells model pazopanib-mediated hepatotoxicity. Sci Rep. 7, 41238(2017).
- Cameron, K., et al. Recombinant Laminins Drive the Differentiation and Self-Organization of hESC-Derived Hepatocytes. Stem Cell Rep. 5 (6), 1250-1262 (2015).
- Cayo, M. A., et al. A Drug Screen using Human iPSC-Derived Hepatocyte-like Cells Reveals Cardiac Glycosides as a Potential Treatment for Hypercholesterolemia. Cell Stem Cell. 20 (4), 478-489 (2017).
- Takayama, K., et al. Prediction of interindividual differences in hepatic functions and drug sensitivity by using human iPS-derived hepatocytes. Proc Natl Acad Sci U S A. 111 (47), 16772-16777 (2014).
- Takayama, K., et al. 3D spheroid culture of hESC/hiPSC-derived hepatocyte-like cells for drug toxicity testing. Biomaterials. 34 (7), 1781-1789 (2013).
- Hay, D. C., et al. Efficient differentiation of hepatocytes from human embryonic stem cells exhibiting markers recapitulating liver development in vivo. Stem Cells Dayt Ohio. 26 (4), 894-902 (2008).
- Iii, R. L. G., et al. Maturation of Induced Pluripotent Stem Cell Derived Hepatocytes by 3D-Culture. PLOS ONE. 9 (1), e86372(2014).
- Chen, Y. -F., Tseng, C. -Y., Wang, H. -W., Kuo, H. -C., Yang, V. W., Lee, O. K. Rapid generation of mature hepatocyte-like cells from human induced pluripotent stem cells by an efficient three-step protocol. Hepatol Baltim Md. 55 (4), 1193-1203 (2012).
- Wang, Y., et al. Defined and Scalable Generation of Hepatocyte-like Cells from Human Pluripotent Stem Cells. JoVE J Vis Exp. (121), e55355(2017).
- Takayama, K., et al. Long-Term Self-Renewal of Human ES/iPS-Derived Hepatoblast-like Cells on Human Laminin 111-Coated Dishes. Stem Cell Rep. 1 (4), 322-335 (2013).
- Kanninen, L. K., et al. Laminin-511 and laminin-521-based matrices for efficient hepatic specification of human pluripotent stem cells. Biomaterials. , 86-100 (2016).
- Szkolnicka, D., et al. Accurate prediction of drug-induced liver injury using stem cell-derived populations. Stem Cells Transl Med. 3 (2), 141-148 (2014).
- Kim, D. E., et al. Prediction of drug-induced immune-mediated hepatotoxicity using hepatocyte-like cells derived from human embryonic stem cells. Toxicology. 387 (Supplement C), 1-9 (2017).
- Rashid, S. T., et al. Modeling inherited metabolic disorders of the liver using human induced pluripotent stem cells. J Clin Invest. 120 (9), 3127-3136 (2010).
- Grimm, F. A., Iwata, Y., Sirenko, O., Bittner, M., Rusyn, I. High-Content Assay Multiplexing for Toxicity Screening in Induced Pluripotent Stem Cell-Derived Cardiomyocytes and Hepatocytes. Assay Drug Dev Technol. 13 (9), 529-546 (2015).
- Bray, M. -A., et al. A dataset of images and morphological profiles of 30,000 small-molecule treatments using the Cell Painting assay. GigaScience. , (2017).
- Pradip, A., et al. High Content Analysis of Human Pluripotent Stem Cell Derived Hepatocytes Reveals Drug Induced Steatosis and Phospholipidosis. Stem Cells Int. 2016, 2475631(2016).
- Donato, M. T., Gómez-Lechón, M. J., Tolosa, L. Using high-content screening technology for studying drug-induced hepatotoxicity in preclinical studies. Expert Opin Drug Discov. 12 (2), 201-211 (2017).
- Carpenter, A. E., et al. CellProfiler: image analysis software for identifying and quantifying cell phenotypes. Genome Biol. 7, R100(2006).
Przedruki i uprawnienia
