Oparty na oprogramowaniu system analizy obrazów stanowi alternatywną metodę badania morfologii gatunków rozłogowych i kłączowych. Protokół ten umożliwia pomiar długości i średnicy rozłogów i kłączy i może być stosowany do próbek z dużą ilością biomasy i do wielu różnych gatunków.
Artykuł metodologiczny
Pomiar rozłogów i kłączy traw darniowych za pomocą cyfrowego systemu analizy obrazu
W tym artykule
Podsumowanie
Streszczenie
Długość i średnica rozłogów lub kłączy są zazwyczaj mierzone za pomocą prostych linijek i suwmiarki. Ta procedura jest powolna i pracochłonna, dlatego często stosuje się ją na ograniczonej liczbie rozłogów lub kłączy. Z tego powodu cechy te są ograniczone w ich wykorzystaniu do charakterystyki morfologicznej roślin. Zastosowanie technologii oprogramowania do cyfrowej analizy obrazu może przezwyciężyć błędy pomiarowe wynikające z błędów ludzkich, które zwykle zwiększają się wraz ze wzrostem liczby i wielkości próbek. Protokół może być stosowany do każdego rodzaju upraw, ale szczególnie nadaje się do roślin pastewnych lub traw, gdzie rośliny są małe i liczne. Próbki darni składają się z biomasy nadziemnej i górnej warstwy gleby do głębokości maksymalnego rozwoju kłącza, w zależności od gatunku będącego przedmiotem zainteresowania. W badaniach próbki są myte z gleby, a rozłogi/kłącza są czyszczone ręcznie przed analizą za pomocą oprogramowania do cyfrowej analizy obrazu. Próbki są następnie suszone w laboratoryjnym piecu grzewczym w celu zmierzenia suchej masy; W związku z tym dla każdej próbki danymi wynikowymi są całkowita długość, całkowita sucha masa i średnia średnica. Zeskanowane obrazy można skorygować przed analizą, wykluczając widoczne części zewnętrzne, takie jak pozostałe korzenie lub liście, które nie zostały usunięte w procesie czyszczenia. Rzeczywiście, fragmenty te mają zwykle znacznie mniejsze średnice niż rozłogi lub kłącza, więc można je łatwo wykluczyć z analizy, ustalając minimalną średnicę, poniżej której obiekty nie są brane pod uwagę. Gęstość rozłogów lub kłączy na jednostkę powierzchni można następnie obliczyć na podstawie wielkości próbki. Zaletą tej metody jest szybki i sprawny pomiar długości i średniej średnicy dużej liczby próbek rozłogów lub kłączy.
Wprowadzenie
Badanie morfologii roślin jest szeroko omawiane we wszystkich dyscyplinach nauki o roślinach, w tym w ekologii, agronomii, biologii i fizjologii. System korzeniowy roślin jest szeroko badany pod kątem jego wpływu na tolerancję na stres, stabilność gleby, wzrost roślin i produktywność. Rozłogi i kłącza są również szeroko badane pod kątem ich roli w strategiach rozmnażania roślin, zdolności rekonwalescencji i magazynowaniu węglowodanów. Rozłogi i kłącza to zmodyfikowane łodygi, które rosną poziomo, nad ziemią (rozłogi) lub pod ziemią (kłącza). Rozłogi i kłącza zawierają również regularnie rozmieszczone węzły i międzywęźla, a także węzły merystematyczne, które są w stanie dać początek nowym korzeniom i pędom1. Przeprowadzono wiele badań na różne tematy, badając korzenie, rozłogi i kłącza różnych roślin2,3,4,5,6,7,8. Systemy korzeniowe, rozłogi i kłącza traw darniowych są badane ze względu na ich znaczenie dla jakości murawy9, wiosenne zazielenienie po spoczynku zimowym10, oraz tolerancja zużycia i zdolność rekonwalescencji11. Co więcej, organy te są również badane w innych uprawach, trawach darniowych, takich jak ryż12, soybean4 i kukurydza13, oraz pastwiska, na których boczne łodygi odgrywają kluczową rolę w kontroli erozji gleby5.
Gęstość długości korzenia (długość korzenia na objętość gleby) i średnia średnica są zwykle mierzone za pomocą oprogramowania do skanowania3,4,5,9,14,15,16,17,18. I odwrotnie, długość i średnicę rozłogów lub kłączy są zwykle mierzone za pomocą linijki i suwmiarki3,19,20 i wymagają znacznego czasu i pracy21,22,23,24. W związku z tym są one często mierzone w ograniczonej liczbie rozłogów lub kłączy11,20,25 i często ograniczają się tylko do charakterystyki morfologicznej roślin rozstawionych w odstępach. Badanie cech rozłogów i kłączy w dojrzałym baldachimie polega na pobraniu dużej ilości biomasy, tak że zwykle określa się tylko gęstość suchej masy rozłogów i kłączy (sucha masa na jednostkę powierzchni)7,11,26,27. W rzeczywistości suchą masę rozłogową można łatwiej zmierzyć niż długość i średnicę rozłogów, susząc próbki w piecu. Jednak długość rozłogów jest ważnym gatunkiem i cechą odmianową, która nie jest dobrze związana z suchą masą. Niedawne badania na płożącej życicy trwałej (Lolium perenne) wykazały, że próbki o dużej gęstości rozłogów niekoniecznie miały wysoką gęstość masy rozłogów6.
Systemy analizy obrazu przyspieszają analizę pierwiastków28,29, dokładniejszy i mniej podatny na błędy ludzkie30,21 niż tradycyjne, ręczne metody31,32,33. Co więcej, systemy te zapewniają wysoką elastyczność i łatwe w użyciu narzędzia, w tym światło, konfigurację optyczną i rozdzielczość, które są często kalibrowane dla każdego zeskanowanego obrazu34. Pornaro i wsp.24 wykazał, że system WinRHIZO, system analizy obrazu specjalnie zaprojektowany do pomiaru umytych korzeni, może stanowić alternatywną metodę do dokładniejszej analizy cech rozłogów i kłączy niż obecne metody, pokonując błędy pomiarowe spowodowane błędami ludzkimi. W celu uzyskania opisu morfologicznego i informacji ilościowych na temat wzrostu rozłogów i kłączy, systemy analizy obrazowej mogą być wykorzystywane do szybkiej analizy dużej liczby próbek, nawet przy dużej ilości biomasy, co pozwala na zwiększenie precyzji statystycznej. Dlatego pakiety oprogramowania do analizy korzeni zapewniają alternatywną, niezawodną i szybką metodę badania wzrostu i morfologii rozłogów i kłączy różnych gatunków roślin24.
Prezentujemy eksperyment przeprowadzony w północno-wschodnich Włoszech w celu zbadania rozwoju rozłogów i kłączy czterech odmian trawy bermudzkiej (Cynodon spp.). Badania miały na celu poszerzenie wiedzy na temat rozwoju rozłogów i kłączy w siewnych ("LaPaloma" i "Yukon") i wegetatywnych ("Patriot" i "Tifway") odmianach trawy bermudzkiej. Eksperyment rozpoczęto w maju 2013 r., a próbki darni pobierano w trzech terminach w roku, od jesieni 2013 r. do lata 2015 r. [marzec (przed zazielenieniem), lipiec (pełny sezon wegetacyjny) i październik (przed spoczynkiem zimowym)]. Do opisu i wyjaśnienia tej metody wykorzystano próbki pobrane latem drugiego sezonu wegetacyjnego (lipiec 2014 r.), ponieważ duża biomasa próbek w tym czasie uzasadniała potrzebę szybkiej analizy. WinRHIZO, cyfrowe narzędzie do analizy obrazu zaprojektowane specjalnie do pomiarów płukanych korzeni, zostało wykorzystane do określenia gęstości długości rozłogów i średniej średnicy.
Protokół
1. Pobieranie próbek biomasy
- Pobrać próbki, w tym biomasę nadziemną i warstwę gleby o odpowiedniej głębokości w zależności od gatunku (w przypadku gatunków darniowych głębokość 15 cm jest zazwyczaj wystarczająca), aby zapewnić zbieranie zarówno rozłogów, jak i kłączy.
Uwaga: Przed rozpoczęciem badania należy wziąć pod uwagę całkowitą wielkość powierzchni, ponieważ zostaną pobrane próbki niszczące. Ogólnie rzecz biorąc, im dłużej przeprowadzany jest eksperyment, tym większa wymagana jest wielkość działki. - Przed pobraniem próbki należy sprawdzić warunki glebowe: jeśli gleba jest zbyt sucha, zwłaszcza na glebach ciężkich, pobranie próbek może być trudne. W takim przypadku należy nawodnić poletka przed pobraniem, aby zmiękczyć warstwy próbki.
- Próbki należy pobrać za pomocą próbnika rdzeniowego gleby (≥ średnicy 8 cm) lub określić powierzchnię do pobrania za pomocą ramy (≥ 10 x 10 cm) i pobrać próbki łopatą. Oznacz każdą próbkę taśmą laboratoryjną.
- Zbierz kilka losowych próbek na poletko, aby były reprezentatywne dla populacji roślin.
- Użyj tego samego próbnika do całego eksperymentu i zapisz obszar, który reprezentuje każda próbka, aby obliczyć gęstość rozłogów i kłączy.
Uwaga: W tym miejscu można wstrzymać działanie protokołu, a próbki można przechowywać w plastikowych torebkach i konserwować w temperaturze poniżej -18 °C.
2. Czyszczenie próbek biomasy
- Umieść próbkę na dużym sicie z otworami 0,5-1,5 mm w zależności od wielkości rozłogów lub kłączy. Otwory powinny być wystarczająco małe, aby zatrzymać wszystkie rozłogi i kłącza, ale wystarczająco duże, aby umożliwić usunięcie cząstek gleby. W przypadku gleb piaszczystych dwa sita z różnymi otworami, umieszczone jedno na drugim, mogą pozwolić na lepszą precyzję i wydajność.
- Oczyść próbki strumieniem wody o mocy wystarczającej do usunięcia cząstek gleby bez uszkadzania roślin.
- Pobrać oczyszczone próbki i umieścić je na tacy z ręcznikami papierowymi, zwracając uwagę na odpowiednie oznakowanie tac.
Uwaga: W tym miejscu można wstrzymać działanie protokołu, a próbki można przechowywać w plastikowych torebkach i konserwować w temperaturze poniżej -18 °C. - Następnie oczyść próbki, usuwając korzenie i liście nożyczkami. Podczas tego procesu w razie potrzeby oddziel rozłogi i kłącza oraz zapisz dodatkowe informacje, takie jak liczba roślin, krzewów i rozłogów na roślinę.
Uwaga: Usunięcie całej tkanki korzeni i liści z rozłogów i kłączy poprawi precyzję. Drobne korzenie są trudne do usunięcia; Jednak dzięki cyfrowej analizie obrazu możliwe jest pominięcie ich w analizie za pomocą aplikacji, która wyklucza narządy o średnicy mniejszej niż wybrana wartość (patrz krok 5.1), która jest dość dokładnie definiowana na podstawie obserwacji obrazów odtwarzanych na ekranie. - Umieść rozłogi i kłącza w papierowych torebkach z etykietami.
Uwaga: W tym miejscu można wstrzymać działanie protokołu, a próbki można przechowywać w plastikowych torebkach i konserwować w temperaturze poniżej -18 °C.
3. Skanowanie i analiza obrazu próbek
- Umieść próbkę na przezroczystej plastikowej tacy standardowego sprzętu skanującego WinRHIZO. Ręcznie umieść rozłogi i kłącza za pomocą kleszczy laboratoryjnych, aby zminimalizować nakładanie się. Duże próbki mogą wymagać podzielenia na podpróbki.
- Nie dolewaj wody do tacki (zgodnie z zaleceniami dla korzeni), ponieważ rozłogi i kłącza mają wystarczającą sztywność, aby uniknąć nadmiernej bliskości narządów, co może powodować błędy odczytu, co zwykle zdarza się w przypadku drobnych korzeni.
- Umieść tacę na powierzchni skanera.
- Włącz skaner i rozpocznij uruchamianie programu.
- Sprawdź rozdzielczość obrazu w menu Obraz, polecenie Parametr akwizycji obrazu, aby uzyskać możliwą dalszą kontrolę nad zapisanym obrazem.
- Sprawdź próg w Analizie, poleceniu Root & Background Distinction, aby uzyskać dobrą klasyfikację pikseli należących do skanowanych narządów.
- Sprawdź, czy cała powierzchnia zasobnika zostanie zeskanowana w menu Obraz, poleceniu Parametr pozyskiwania obrazu.
- Sprawdź klasę średnicy wyświetlaną dla rozkładu narządów według średnicy, w obszarze graficznym nad zeskanowanym obrazem. Wybierz 20 klas o równej szerokości z odstępami 0,1 mm, klikając na oś poziomą wykresu. Funkcja ta pozwala na wykluczenie danych należących do korzeni lub małych narządów, gdy rozłogi lub kłącza nie zostały idealnie oczyszczone. W literaturze podaje, że większość korzeni gatunków darni ma średnicę mniejszą niż 0,2 mm.
Uwaga: Szerokość i liczbę klas można modyfikować z uwzględnieniem średniej średnicy rozłogów i kłączy dla analizowanych próbek oraz zmienności wokół tej średniej. W przypadku niektórych próbek należy przeprowadzić kontrolę w celu określenia minimalnej średnicy, która ma zostać wyłączona. - Uruchom pierwsze skanowanie próbki i sprawdź, czy edycja pozwala na dobrą analizę.
- Postępuj zgodnie z instrukcjami oprogramowania, aby zapisać obraz i przetworzoną analizę. Oznacz obraz i analizę etykietą próbki.
- Kontynuuj skanowanie wszystkich próbek.
Uwaga: W tym miejscu można wstrzymać działanie protokołu, a próbki można przechowywać w plastikowych torebkach i konserwować w temperaturze poniżej -18 °C.
4. Pomiar suchej masy
- Za pomocą precyzyjnej wagi elektronicznej umieść zeskanowane próbki w tarowanej aluminiowej tacy.
- Powtórz krok 4.1 dla wszystkich zeskanowanych próbek.
- Włóż wszystkie próbki do piekarnika ustawionego na 105 °C i susz je przez 24 godziny.
- Usuń próbki i poczekaj, aż masa tkanki się ustabilizuje.
- Zważyć wszystkie próbki wraz z ich tarą.
- Odjąć tarę od zarejestrowanej masy, aby uzyskać masę netto każdej próbki.
5. Korekta danych i obliczanie gęstości długości i masy
- Korekta długości i uśrednionej średnicy
- Przekonwertuj plik .txt wynikający z analizy za pomocą WinRHIZO na plik .csv.
- Użyj wyników pogrupowanych według klas średnic, aby wykluczyć dane dotyczące narządów mniejszych niż 0,2 mm (korzenie, część liści lub zadrapania na tacy).
- Dla każdego odczytu WinRHIZO (wierszy pliku .txt) zsumuj wszystkie długości zarejestrowane dla klas średnic większych niż 0,2 mm. Długość obliczona za pomocą tej poprawki jest długością efektywną, która ma być wykorzystana do dalszego przetwarzania danych.
- Dla każdego odczytu WinRHIZO zsumuj obszary rzutowania zarejestrowane dla klas średnic większych niż 0,2 mm. Proporcja między długością a powierzchnią projekcji daje średnią średnicę skorygowaną o wykluczenie narządów o średnicy mniejszej niż 0,2 mm.
- Jeżeli próbka została podzielona na podpróby, należy obliczyć końcową długość jako sumę wszystkich długości podprób i obliczyć końcową średnią średnicę jako proporcję między sumą wszystkich długości podpróbek a sumą wszystkich obszarów rzutowania podpróby.
- W razie potrzeby należy obliczyć długość i gęstość masy na jednostkę powierzchni na podstawie wielkości próby.
- Wykorzystaj uzyskane dane do analizy statystycznej.
Wyniki
Jesienią 2013 roku przeprowadzono eksperyment polowy w celu porównania rozwoju rozłogów i kłączy czterech odmian trawy bermudzkiej, w tym dwóch typów wysiewnych („LaPaloma” i „Yukon”) oraz dwóch sterylnych hybryd wegetatywnych („Patriot” i „Tifway”). Zastosowano układ bloków randomizowanych z trzema powtórzeniami, co łącznie dało 12 poletek (2 x 2 m).
Z każdej odmiany typu trawnikowego oraz z dzikiej bermudagrass randomly zebrano czternaście rozłogów i czternaście kłączy z poletek, a także z roślin dzikiej bermudagrass rosnących w pobliżu poletek, co dało łącznie 70 rozłogów i 70 kłączy. Wszystkie rozłogi i kłącza zostały oczyszczone zgodnie z opisem w protokole (krok 2) przed dalszymi pomiarami. Średnicę i długość międzywęźli zmierzono odpowiednio za pomocą suwmiarki i linijki, a dla każdego rozłogu lub kłącza policzono liczbę węzłów. Zapisano również czas niezbędny do oczyszczenia i pomiaru próbek rozłogów i kłączy za pomocą linijki i suwmiarki. Średnice rozłogów i kłączy obliczono jako średnią wszystkich zmierzonych średnic międzywęźli. Całkowite długości rozłogów i kłączy obliczono jako sumę wszystkich długości międzywęźli. Ponadto, za pomocą systemu cyfrowej analizy obrazu, zgodnie z opisem w krokach 3 i 5, zmierzono całkowite długości skanowane oraz średnice skanowane każdego rozłogu i kłącza. Zapisano czas niezbędny do pomiaru cech rozłogów i kłączy za pomocą systemu cyfrowej analizy. Następnie każdy rozłóg i kłącze przecięto nożyczkami, aby oddzielić międzywęźla od węzłów, a międzywęźla wykorzystano do oszacowania skanowanej średnicy międzywęźla, zgodnie z opisem w krokach 3 i 5. Współczynniki korelacji Pearsona obliczono dla rozłogów i kłączy (n = 70 rozłogów, n = 70 kłączy) pomiędzy długością mierzoną a skanowaną, średnicą mierzoną a skanowaną, liczbą węzłów a wartością bezwzględną różnicy między średnicą mierzoną a skanowaną oraz średnicami mierzonymi a skanowanymi średnicami międzywęźli. Długości zmierzone linijką posłużyły do kalibracji długości oszacowanych za pomocą systemu cyfrowej analizy obrazu.
Analiza regresji wykazała wysoką korelację między skanowaną a zmierzoną długością rozłogów (Rycina 1a), ze współczynnikiem nachylenia 1,03 i punktem przecięcia -4,22, a także między skanowaną a zmierzoną długością kłączy (Rycina 1b), ze współczynnikiem nachylenia 1,03 i punktem przecięcia 4,22. Ręczne oczyszczanie 14 rozłogów i 14 kłączy zajęło średnio odpowiednio 21 min i 24 s oraz 11 min i 12 s. Średni czas pomiaru długości i średnicy za pomocą linijki i suwmiarki wyniósł 14 min i 6 s dla rozłogów oraz 13 min i 35 s dla kłączy. Skanowanie i analiza programowa próbek przy użyciu WinRHIZO zajęły średnio 11 min dla rozłogów i 12 min i 4 s dla kłączy.
Zmierzone i zeskanowane średnice były również istotnie skorelowane zarówno w przypadku rozłogów, jak i kłączy. Zależności między średnicą zmierzoną a zeskanowaną były bliskie stosunku 1:1, co wskazuje na dobre dopasowanie danych (Rycina 2a i 2b). Jednak wartość punktu przecięcia sugerowała, że system analizy obrazu cyfrowego zawyżał zmierzoną średnicę, szczególnie przy niższych wartościach, natomiast wyższe wartości średnicy kłączy były niedoszacowane. To zawyżenie może wynikać z obecności węzłów rozłogów, które są skanowane przez oprogramowanie, wpływając na całkowitą powierzchnię rzutu wykorzystywaną do obliczania średnicy (stosunek całkowitej powierzchni rzutu do całkowitej długości), podczas gdy są one pomijane podczas pomiarów suwmiarką. Korelacja między liczbą węzłów a różnicą między wartościami średnicy uzyskanymi obiema metodami (pomiarową i skanowaną) była istotna tylko w przypadku rozłogów (Rycina 3a); ponadto zmienność liczby węzłów wyjaśniała jedynie niewielką część zmienności tej różnicy (R2 = 14%). Istotna korelacja stwierdzona między zeskanowaną średnicą międzywęźla a średnicą zmierzoną (nachylenia wynoszące odpowiednio 1,01 dla rozłogów i 0,98 dla kłączy; punkty przecięcia bliskie zeru) (Rycina 4a i 4b) wykazuje, że średnicę międzywęźla można dokładnie oszacować za pomocą systemu analizy obrazu cyfrowego, pod warunkiem usunięcia węzłów. W związku z tym całkowitą długość rozłogów oraz średnią średnicę próbek składających się z licznych rozłogów lub kłączy można w łatwy i dokładny sposób określić ilościowo za pomocą systemu analizy obrazu cyfrowego.
W ramach trwającego eksperymentu w każdej polecenie sezonowo pobierano jedną próbkę darni (20 x 20 x 15 cm głębokości) od jesieni 2013 r. do lata 2015 r., a następnie postępowano z nią zgodnie z opisem w protokole. Długość rozłogów i kłączy na jednostkę powierzchni (gęstość długości) oraz ich masa na jednostkę powierzchni (gęstość masy) dla próbek pobranych w lipcu 2014 r. są przedstawione na Rysunku 5. Różnice w gęstości długości rozłogów zaobserwowano pomiędzy odmianami rozmnażanymi wegetatywnie („Patriot” i „Tifway”) a tymi rozmnażanymi z nasion („La Paloma” i „Yukon”). Odmiana „Patriot” wykazała najwyższą gęstość długości kłączy, a następnie „Tifway” oraz odmiany rozsiewne. Gęstość masy rozłogów różniła się dla wszystkich odmian, przy czym najwyższą wartość odnotowano dla „Patriot”, a następnie dla „Tifway”, „La Paloma” i „Yukon”. Odmiany rozmnażane wegetatywnie wykazały również wyższe gęstości masy kłączy niż odmiany rozsiewne. Zmiany gęstości długości i gęstości masy rozłogów oraz kłączy odmiany Patriot w całym okresie badania przedstawiono na Rysunku 6. Gęstość długości rozłogów wzrosła od marca 2014 r. do lipca 2014 r., a następnie nie zmieniała się od lipca 2014 r. do lipca 2015 r. W próbkach pobranych w październiku 2013 r. i marcu 2014 r. znaleziono jedynie kilka kłączy. Gęstość długości kłączy wzrosła w lipcu 2104 r., osiągając najwyższe wartości, lecz ponownie spadła w październiku 2014 r. Gęstość masy rozłogów nieznacznie wzrosła od marca do lipca 2014 r.; jednak szybszy wzrost zaobserwowano od lipca do października 2014 r., z późniejszym spadkiem w marcu 2015 r. Gęstość masy kłączy wykazywała trend podobny do gęstości długości kłączy, osiągając najwyższą wartość w lipcu 2014 r.
Oprogramowanie uwzględnia w analizie wszystkie obiekty znajdujące się na zeskanowanym obrazie. Przedstawiono przykład układu analizy obrazu cyfrowego z oprogramowania WinRHIZO (Rycina 7), w którym linie o różnych kolorach nakładają się na obiekty (stolony) o różnych średnicach w celu obliczenia całkowitej długości dla poszczególnych klas średnic. Można zauważyć, że analiza bierze pod uwagę fragmenty korzeni lub liści. Jak opisano w kroku 3.9, istnieje możliwość ograniczenia szerokości i liczby analizowanych klas średnic. Histogram przedstawia rozkład długości w wybranych klasach średnic (Rycina 7). Histogram ten może być wykorzystany do oceny minimalnych klas średnic, które należy wykluczyć. Wizualna obserwacja tego wykresu w górnej części obrazu ekranu wskazuje, że długość ma rozkład normalny wokół średniej klasy średnicy, z wyjątkiem dwóch pierwszych klas, które wykazują wartości wyższe niż te pasujące do rozkładu normalnego. Nawet jeśli próbki zostały starannie oczyszczone, uwzględnienie tych mniejszych klas w analizie danych może wpłynąć na wyniki, prowadząc do zawyżenia gęstości długości i zaniżenia średniej średnicy. Nasze wyniki pokazują, że długość mniejszych klas (średnica < 0.2 mm) stanowiła 13-32% całkowitych wartości długości kłącza wynikających z analizy programowej (Tabela 1). Ponadto, średnia średnica została zaniżona o 2-17% (Tabela 1).
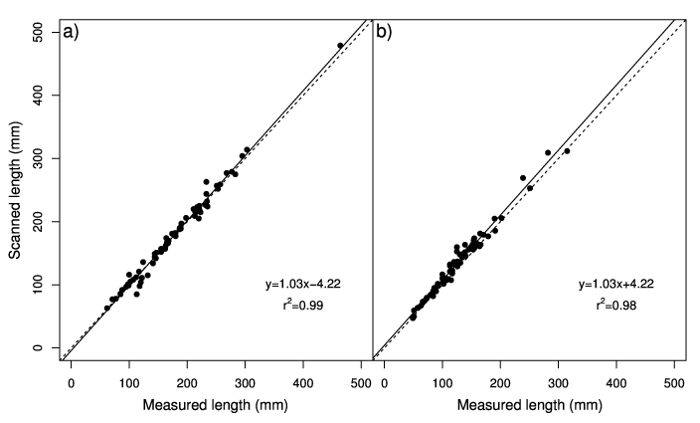
Rysunek 1: Analiza regresji wartości długości zmierzonych linijką w stosunku do wartości oszacowanych za pomocą cyfrowego systemu analizy obrazu dla stolonów24 (a) oraz kłączy (b) trawy bermuda. Linia przerywana reprezentuje stosunek 1:1. Panel A został zmodyfikowany na podstawie pracy Pornaro et al.24. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.

Rysunek 2: Analiza regresji wartości średnic zmierzonych suwmiarką w stosunku do wartości oszacowanych za pomocą systemu cyfrowej analizy obrazu dla stolonów trawy bermudzkiej24 (a) oraz kłączy (b). Linia przerywana reprezentuje stosunek 1:1. Panel A został zmodyfikowany na podstawie pracy Pornaro et al.24. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rycina 3: Analiza regresji liczby węzłów rozłogów trawy bermudzkiej24 (a) i kłączy (b) w stosunku do wartości bezwzględnych różnicy między średnicą oszacowaną za pomocą systemu cyfrowej analizy obrazu a zmierzoną suwmiarką. Linia przerywana reprezentuje stosunek 1:1. Panel A został zmodyfikowany na podstawie pracy Pornaro et al.24. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
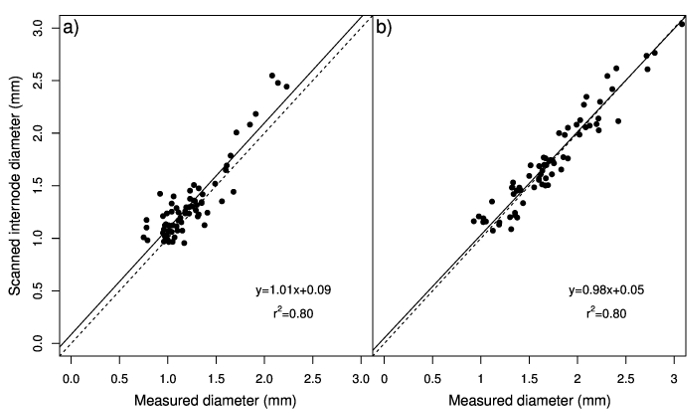
Rycina 4: Analiza regresji wartości średnicy zmierzonych za pomocą suwmiarki w stosunku do wartości oszacowanych za pomocą cyfrowego systemu analizy obrazu dla stolonów trawy bermudzkiej24 (a) i kłączy (b) wyłącznie dla stawek. Linia przerywana reprezentuje stosunek 1:1. Panel A został zmodyfikowany na podstawie pracy Pornaro et al.24. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rysunek 5: Przykładowe wyniki gęstości długości i masy rozłogów oraz kłączy z badania polowego porównującego cztery odmiany trawy bermudzkiej (Patriot, Tifway, La Paloma, Yukon). Gęstość długości rozłogów (a), gęstość długości kłączy (b), gęstość masy rozłogów (c) oraz gęstość masy kłączy (d). Pionowe słupki reprezentują błędy standardowe dla sześciu powtórzeń. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
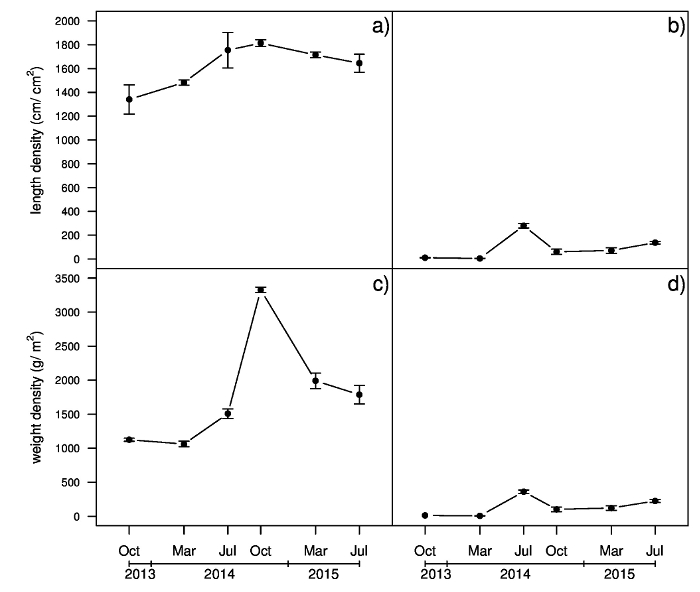
Rysunek 6: Przykładowe wyniki gęstości długości i masy rozłogów oraz kłączy z badania polowego, przedstawiające rozwój rozłogów i kłączy odmiany trawy bermudzkiej Patriot. Gęstość długości rozłogów (a), gęstość długości kłączy (b), gęstość masy rozłogów (c) oraz gęstość masy kłączy (d). Słupki pionowe reprezentują błędy standardowe dla sześciu powtórzeń. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
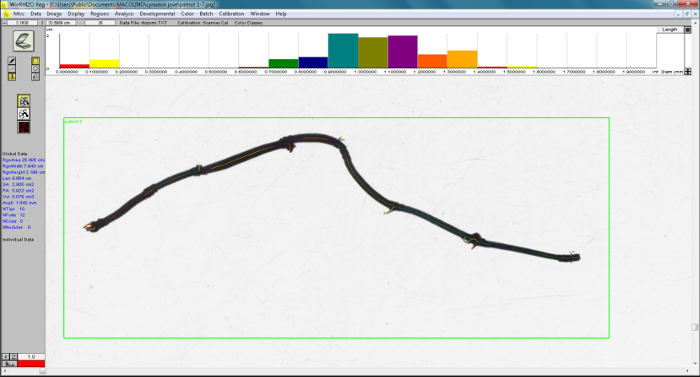
Rysunek 7: Przykładowy układ analizy obrazu cyfrowego z oprogramowania WinRHIZO. Zeskanowany obraz na pierwszym planie oraz wykresy słupkowe w górnej części obrazu ekranu przedstawiają rozkład długości w wybranych klasach średnic. Kolorowe linie wskazują analizę obrazu, a każdy kolor odpowiada kolorom klas średnic przedstawionych na wykresach słupkowych. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Odmiana uprawna | Blokada | Długość kłącza (cm/dm)2) | Średnia średnica (mm) | ||||
| < 0,2 mm | całkowity | stosuneka | < 0,2 mm | łącznie | stosunekb | ||
| Patriota | 1 | 231 | 278 | 16.9 | 1.637846 | 1.5994 | 97.7 |
| Patriota | 2 | 304 | 349 | 12.8 | 1.620667 | 1.588371 | 98.0 |
| Patriota | 3 | 304 | 366 | 16.8 | 1.649918 | 1.621367 | 98.3 |
| Tifway | 1 | 184 | 231 | 20.6 | 2.149745 | 1.9951 | 92.8 |
| Tifway | 2 | 155 | 193 | 19.9 | 1.866253 | 1.76605 | 94.6 |
| Tifway | 3 | 119 | 150 | 20.9 | 1.877386 | 1.75865 | 93.7 |
| La Paloma | 1 | 17 | 23 | 24.4 | 2.139019 | 1.8904 | 88.4 |
| La Paloma | 2 | 26 | 38 | 31.6 | 2.101385 | 1.7455 | 83.1 |
| La Paloma | 3 | 34 | 47 | 27.5 | 2.033729 | 1.7354 | 85.3 |
| Yukon | 1 | 32 | 44 | 28.0 | 1.700155 | 1.4945 | 87.9 |
| Yukon | 2 | 17 | 25 | 33.2 | 1.68339 | 1.4284 | 84.9 |
| Yukon | 3 | 67 | 87 | 23.6 | 1.844721 | 1.6774 | 90.9 |
| a Długość klas ≤0,2 mm/długość całkowita | |||||||
| b Całkowita średnica/średnica klas ≤0,2 mm | |||||||
Tabela 1: Gęstość długości kłączy oraz średnia średnica kłączy z uwzględnieniem i bez uwzględnienia klas o mniejszej średnicy. Gęstość długości z uwzględnieniem i bez uwzględnienia klas średnicy mniejszych niż 0,2 mm oraz ich stosunki (długość klas ≤ 0,2 mm/długość całkowita); oraz średnia średnica z uwzględnieniem i bez uwzględnienia klas średnicy mniejszych niż 0,2 mm oraz ich stosunki (średnica z uwzględnieniem klas < 0,2/średnica bez uwzględnienia klas < 0,2 mm).
Dyskusja
Opisany tutaj protokół został opracowany i oceniony na potrzeby badania traw darniowych. Może być jednak stosowany w odniesieniu do wielu gatunków rozłogowych lub kłączowych z niezbędnymi dostosowaniami w zależności od ich cech morfologicznych, warunków środowiskowych i precyzji czyszczenia próbek.
Średnia średnica oszacowana za pomocą tego protokołu nie może być porównywana ze średnicą międzywęźla mierzoną suwmiarką. Cyfrowa analiza obrazu uwzględnia węzły i międzywęźla w obliczeniach średniej średnicy, czyli stosunku całkowitej powierzchni rzutu do całkowitej długości. Jak omówili Pornaro i wsp.24, średnia średnica uzyskana dla rozłogów trawy bermudzkiej z systemem WinRHIZO zawyżyła średnie wartości średnicy mierzone suwmiarką na międzywęźlu. Średnica rozłogów jest zwykle używana do opisania średnicy międzywęźli rozłogowych i jest powszechnym parametrem używanym do opisu botanicznego18,25. Z tego powodu Pornaro i wsp.24 zwróciło uwagę, że średnia średnica oszacowana za pomocą systemu WinRHIZO i ręcznie zmierzona średnica międzywęźla opisują dwa różne aspekty morfologii.
Czas wymagany do wykonania tego protokołu pozostaje czynnikiem ograniczającym rutynową analizę. Najbardziej czasochłonnym etapem jest czyszczenie próbek (krok 2.4). Z naszego doświadczenia wynika, że oczyszczenie jednej próbki darni dużą ilością biomasy (tj . 20 x 20 cm) wymaga około trzech osób pracujących przez 2 do 4 godzin. Jak opisano w protokole, proces czyszczenia jest konieczny zarówno w przypadku systemu analizy cyfrowej, jak i podczas korzystania z suwmiarki i linijki. W przypadku gdy próbki składają się z ograniczonej liczby rozłogów/kłączy, czas niezbędny do zebrania danych za pomocą tych dwóch metod jest podobny. Jednak wraz ze wzrostem wielkości próby, metoda oparta na oprogramowaniu nie ma późniejszego wydłużania czasu, ponieważ jedynym czynnikiem ograniczającym jest powierzchnia skanera. Wręcz przeciwnie, czas potrzebny na zmierzenie narządów za pomocą linijki i suwmiarki zwiększa się wraz z liczbą rozłogów lub kłączy składających się na próbkę.
Badanie cech rozłogów i kłączy u dojrzałych traw darniowych zawsze opierało się na pomiarze długości i średnicy międzywęźla oraz masy suchej masy 7,11,26,27. Ze względu na długi czas potrzebny na przetworzenie próbek i spadek dokładności wraz ze wzrostem wielkości próbki, pomiary ręczne powinny być ograniczone do niewielkiej liczby rozłogów lub kłączy 11,20,25. W związku z tym mogą nadawać się tylko do eksperymentów na jednej roślinie. Przewagą systemu analizy obrazu nad tradycyjnymi metodami jest to, że może on mierzyć długość dużych próbek rozłogów lub kłączy i obliczać zarówno długość, gęstość, jak i ciężar właściwy (stosunek masy do długości).
Protokół ten pozwala na pomiar długości rozłogów i kłączy oraz obliczenie gęstości długości w próbkach o dużej biomasie (dla których masa rozłogów lub kłącza jest obecnie jedynym parametrem stosowanym do opisu morfologii). Długość rozłogów i/lub kłącza może być ważnym parametrem w wielu badaniach, którego nie można oszacować przy użyciu obecnych technik. Ostatnie badania na różnych gatunkach murawy6 wykazały, że gęstość masy i długości rozłogów nie zawsze jest ze sobą skorelowana, co wskazuje, że pożądane może być zmierzenie wielu parametrów w celu odpowiedniej oceny systemu rozłogów i kłączy. Metoda ta powinna być szczególnie przydatna do porównywania praktyk zarządzania odmianami lub kulturami.
Kilka kroków w ramach protokołu ma kluczowe znaczenie dla pomyślnego oszacowania długości i średniej średnicy rozłogów i kłączy. Ze względu na dużą zmienność morfologii roślin w różnych warunkach środowiskowych, liczba próbek (wielkość próby) i wymiary powierzchni gruntu, które powinny być próbkowane (wymiar próby) powinny być starannie ocenione i powinny być jak najbardziej reprezentatywne dla populacji w celu zmniejszenia zmienności danych. Co więcej, oczyszczenie korzeni i liści z rozłogów przed analizą jest skrupulatną pracą wymagającą szczególnej uwagi, aby uniknąć przeszacowania. Wreszcie, przed przetworzeniem obrazów, zaleca się staranne wybranie szerokości klas średnic i minimalnej średnicy za pomocą opcji oprogramowania, aby wykluczyć z analizy wszystko, co nie jest rozłogami lub kłączami. Każdy eksperyment wymaga wyboru minimalnej średnicy, ponieważ średnica zmienia się w zależności od gatunku i warunków środowiskowych, w tym praktyk kulturowych.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| taśma laboratoryjna | Dowolne | znaczniki NA | mogą być używane do oznaczania próbek |
| torby plastikowe | Dowolna | NA Każda plastikowa torba może być używana do przechowywania próbek do momentu ich sklepania | |
| toreb papierowych | Dowolna | NIE NA | Każda torba papierowa może być używana do przechowywania oczyszczonych próbek, aby uniknąć tworzenia się pleśni |
| ręczniki papierowe | Dowolna | NA | Po umyciu próbek wodą, a przed ich oczyszczeniem nożyczkami, pomocne jest położenie ich na ręczniku papierowym, aby wchłonąć wodę |
| Nożyczki | Dowolna | BRAK DANYCH | Dowolne nożyczki z cienkimi końcówkami |
| Pudełko aluminiowe | Dowolna | brak danych | Dowolne aluminiowe pudełko wystarczająco duże, aby pomieścić tacki na próbki |
| Dowolna | brak danych | Pomocne jest używanie plastikowej tacki do przechowywania próbek podczas procesu czyszczenia | |
| sito z otworami 0,5-1,5 mm | Dowolna | BRAK DANYCH | Dowolna |
| próbnik rdzeniowy | Dowolna | BRAK DANYCH | Do pobierania gleby o średnicy co najmniej 8 cm używamy próbnika rdzeniowego |
| Dowolny | brak danych | Do pobierania dużych próbek używamy kwadratowej ramy (10 x 10 cm lub 15 x 15 cm lub 20 x 20 cm) | |
| Dowolna | BRAK Używamy | łopaty do wyciągania próbek ograniczonych kwadratową ramką | |
| precyzyjna waga elektroniczna | Dowolna | danych | Dowolna precyzyjna waga elektroniczna |
| piec laboratoryjny | Dowolny | brak danych | Dowolna maszyna laboratoryjna |
| Zamrażarka | Dowolna zamrażarka | ||
| Oprogramowanie WinRHIZO | Regent Instruments Inc., Quebec | NA | Wyłączone z wersji "podstawowej" |
| Skaner WinRHIZO | Regent Instruments Inc., Quebec | NA | System WinRHIZO zawiera skaner skalibrowany dla oprogramowania Akcesoria |
| do skanera WinRHIZO | Regent Instruments Inc., Quebec | NA | System WinRHIZO zawiera akcesoria, takie jak plastikowa taca i pozycjoner, do użytku ze skanerem |
Bibliografia
- Beard, J. B. Beard's turfgrass encyclopedia for golf courses, grounds, lawns, sports fields. , Michigan State University Press. (2004).
- Anderson, J. A., Taliaferro, C. M., Wu, Y. Q. Freeze tolerance of seed- and vegetatively propagated bermudagrasses compared with standard cultivars. Applied Turfgrass Science. , (2007).
- Gennaro, P., Piazzi, L. The indirect role of nutrients in enhancing the invasion of Caulerpa racemosa var cylindracea. Biological Invasions. 16 (8), 1709-1717 (2014).
- Ortiz-Ribbing, L. M., Eastburn, D. M. Evaluation of digital image acquisition methods for determining soybean root characteristics. Crop Management. , (2003).
- Pornaro, C., Schneider, M. K., Leinauer, B., Macolino, S. Above-and belowground patterns in a subalpine grassland-shrub mosaic. Plant Biosystems. 151 (3), 493-503 (2017).
- Pornaro, C., Menegon, A., Macolino, S. Stolon development in four turf-type perennial ryegrass cultivars. Agronomy Journal. , In press (2018).
- Rimi, F., Macolino, S., Richardson, M. D., Karcher, D. E., Leinauer, B. Influence of three nitrogen fertilization schedules on bermudagrass and seashore paspalum: II. Carbohydrates and crude protein in stolons. Crop Science. 53, 1168-1178 (2013).
- Schiavon, M., Macolino, S., Leinauer, B., Ziliotto, U. Seasonal changes in carbohydrate and protein content of seeded bermudagrasses and their effect on spring green-up. Journal of Agronomy and Crop Science. 202 (2), 151-160 (2016).
- Macolino, S., Ziliotto, U. Comparison of Turf Performance and Root Systems of Bermudagrass Cultivars and Companion Zoysiagrass. Acta Horticulturae. 938, 185-190 (2012).
- Giolo, M., Macolino, S., Barolo, E., Rimi, F. Stolons reserves and spring green-up of seeded bermudagrass cultivars in a transition zone environment. HortScience. 48 (6), 780-784 (2013).
- Lulli, F., et al. Physiological and morphological factors influencing wear resistance and recovery in C3 and C4 turfgrass species. Functional Plant Biology. 39, 214-221 (2012).
- Ramalingam, P., Kamoshita, A., Deshmukh, V., Yaginuma, S., Uga, Y. Association between root growth angle and root length density of a near-isogenic line of IR64 rice with DEEPER ROOTING 1 under different levels of soil compaction. Plant Production Science. 20 (2), 162-175 (2017).
- Qin, R., Noulas, C., Herrera, J. M. Morphology and Distribution of Wheat and Maize Roots as Affected by Tillage Systems and Soil Physical Parameters in Temperate Climates: An Overview. Archives of Agronomy and Soil Science. , 1-16 (2017).
- Barnes, B. D., Kopecký, D., Lukaszewski, A. J., Baird, J. H. Evaluation of turf-type interspecific hybrids of meadow fescue with perennial ryegrass for improved stress tolerance. Crop Science. 54, 355-365 (2014).
- Biernacki, M., Bruton, B. D. Quantitative response of Cucumis melo inoculated with root rot pathogens. Plant Disease. 85, 65-70 (2001).
- Bouma, T. J., Nielsen, K. L., Koutstaal, B. Sample preparation and scanning protocol for computersied analysis of root length and diameter. Plant and Soil. 218, 185-196 (2001).
- Kraft, J. M., Boge, W. Root characteristics of pea in relation to compaction and Fusarium root rot. Plant Disease. 85, 936-940 (2000).
- Rimi, F. Performance of warm season turfgrasses as affected by various management practices in a transition zone environment. , University of Padova. Italy. Doctorate thesis (2012).
- Burgess, P., Huang, B. Growth and physiological responses of creeping bentgrass (Agrostis stolonifera) to elevated carbon dioxide concentrations. Horticulture Research. 1, 14021(2014).
- Volterrani, M., et al. The Effect of Increasing Application Rates of Nine Plant Growth Regulators on the Turf and Stolon Characteristics of Pot-grown 'Patriot' Hybrid Bermudagrass. HortTechnology. 25 (3), 397-404 (2015).
- Böhm, W. Methods of studying root systems. Ecological studies: Analysis and synthesis. , Springer-Verlag. New York. 64-71 (1979).
- Box, J. E. Modern methods for root investigations. Plant Roots: The Hidden Half. , Marcel Dekker. New York. 193-237 (1996).
- Dowdy, R. H., Nater, E. A., Dolan, M. S. Quantification of the length and diameter of root segments with public domain software. Communications in Soil Science and Plant Analysis. 26, 459-468 (1995).
- Pornaro, C., Macolino, S., Menegon, A., Richardson, M. WinRHIZO Technology for Measuring Morphological Traits of Bermudagrass Stolons. Agronomy Journal. 109 (6), 3007-3010 (2017).
- Patriot turf bermudagrass. United States Plant Patent. , US PP16,801 P2 (2006).
- Munshaw, G. C., Williams, D. W., Cornelius, P. L. Management strategies during the establishment year enhance production and fitness of seeded bermudagrass stolons. Crop Science. 41, 1558-1564 (2001).
- Rimi, F., Macolino, S., Richardson, M. D., Karcher, D. E., Leinauer, B. Influence of three nitrogen fertilization schedules on bermudagrass and seashore paspalum: I. Spring green-up and fall color retention. Crop Science. 53, 1161-1167 (2013).
- Murphy, S. L., Smucker, A. J. M. Evaluation of video image analysis and line-intercept methods for measuring root systems of alfalfa and ryegrass. Agronomy Journal. 87, 865-868 (1995).
- Wright, S. R., Jennette, M. W., Coble, H. D., Rufty, T. W. Root morphology of young Glycine max, Senna obtusifolia, and Amaranthus palmeri. Weed Science. 47, 706-711 (1999).
- Nilsson, H. E. Remote sensing and image analysis in plant pathology. Annual Review of Phytopathology. 15, 489-527 (1995).
- Ottman, M. J., Timm, H. Measurement of viable plant roots with the image analyzing computer. Agronomy Journal. 76, 1018-1020 (1984).
- Newman, E. I. A method of estimating the total length of roots in a sample. Journal of Applied Ecology. 3, 139-145 (1966).
- Tennant, D. A test of a modified line intersect method of estimating root length. Journal of Ecology. 63, 995-1001 (1975).
- Arsenault, J. L., Pouleur, S., Messier, C., Guay, R. WinRHIZO™, a root-measuring system with a unique overlap correction method. HortScience. 30, 906(1995).
Przedruki i uprawnienia
