Tutaj opisujemy test hybrydyzacji in situ, który umożliwia czułe i specyficzne wykrywanie sekwencji tak krótkich jak 50 nukleotydów z rozdzielczością pojedynczego nukleotydu na poziomie pojedynczej komórki. Test, który może być wykonywany ręcznie lub automatycznie, może umożliwić wizualizację wariantów splicingu, krótkich sekwencji i mutacji w kontekście tkanki.
Artykuł metodologiczny
Wizualizacja wariantów genetycznych, krótkich celów i mutacji punktowych w kontekście morfologicznym tkanki za pomocą testu hybrydyzacji RNA in situ
W tym artykule
Podsumowanie
Streszczenie
Ponieważ medycyna precyzyjna jest wysoce zależna od dokładnego wykrywania biomarkerów, istnieje rosnące zapotrzebowanie na standardowe i solidne technologie, które mierzą biomarkery RNA in situ w próbkach klinicznych. Podczas gdy testy mielenia i wiązania, takie jak RNAseq i ilościowy RT-PCR, umożliwiają bardzo czułe pomiary ekspresji genów, wymagają one również ekstrakcji RNA, a tym samym uniemożliwiają cenną analizę ekspresji w kontekście tkanki morfologicznej. Opisany tutaj test hybrydyzacji in situ (ISH) może wykryć docelowe sekwencje RNA tak krótkie, jak 50 nukleotydów w rozdzielczości pojedynczego nukleotydu i na poziomie pojedynczej komórki. Test ten jest komplementarny z wcześniej opracowanym testem komercyjnym i umożliwia czułe i specyficzne wykrywanie in situ wariantów splicingu, krótkich celów i mutacji punktowych w tkance. W tym protokole sondy zostały zaprojektowane tak, aby celować w unikalne połączenia eksonowe dla dwóch klinicznie ważnych wariantów splicingu, EGFRvIII i METΔ14. Wykrywanie krótkich sekwencji docelowych wykazano poprzez swoistą detekcję sekwencji CDR3 receptorów limfocytów T α i β w linii limfocytów T Jurkat. Pokazano również przydatność tego testu ISH do rozróżniania docelowych sekwencji RNA w rozdzielczości pojedynczego nukleotydu (mutacje punktowe) poprzez wizualizację wariacji pojedynczego nukleotydu EGFR L858R i KRAS G12A w liniach komórkowych przy użyciu zautomatyzowanych platform barwienia. Podsumowując, protokół przedstawia specjalistyczny test RNA ISH, który umożliwia wykrywanie wariantów splicingu, krótkich sekwencji i mutacji in situ w celu wykonania ręcznego i na automatycznych barwiarkach.
Wprowadzenie
Technologie transkryptomiczne o wysokiej przepustowości, takie jak mikromacierze i sekwencjonowanie RNA nowej generacji (RNAseq), znacznie przyczyniły się do odkrycia biomarkerów RNA o wartości diagnostycznej, prognostycznej i predykcyjnej klinicznej dla różnych chorób, w tym raka1,2. Aby przyspieszyć wykorzystanie tych biomarkerów w medycynie precyzyjnej, istnieje duże zapotrzebowanie na ustandaryzowane i solidne technologie, które mogą mierzyć biomarkery RNA w kontekście tkanek próbek klinicznych. Podczas gdy szeroko stosowane testy mielenia i wiązania, takie jak RNAseq i ilościowy RT-PCR, umożliwiają bardzo czułe pomiary ekspresji genów, wymagana homogenizacja tkanek i izolacja RNA oznaczają utratę swoistości in vivo dla typu komórki i informacji morfologicznej3. Konwencjonalne metodologie wykrywania RNA in situ nie mają czułości i swoistości wymaganych do wiarygodnego pomiaru rzadkich lub nisko eksprymowanych biomarkerów RNA w kontekście tkankowym4.
Komercyjna próba hybrydyzacji in situ (ISH) (np. test RNAscope) jest jedną z technologii, która poradziła sobie z tymi wyzwaniami, a także umożliwia bardzo czułą i specyficzną wizualizację pojedynczych cząsteczek RNA większych niż 300 nukleotydów w kontekście morfologicznym tkanki. Ten typ testu wykorzystuje unikalną konstrukcję sondy oligonukleotydowej składającą się z około 6–20 par sond typu double-Z w połączeniu z zaawansowanym wzmocnieniem sygnału opartym na hybrydyzacji5.
To badanie opisuje specjalistyczny test RNA ISH, BaseScope, uzupełniający poprzednio zaprojektowaną komercyjną technologię, która może wykrywać sekwencje docelowe RNA tak krótkie, jak 50 nukleotydów w rozdzielczości pojedynczego nukleotydu. Test ten odnosi się do skomplikowanych złożoności transkryptomu i ma zastosowanie do dokładnego wykrywania połączeń eksonowych, krótkich sekwencji docelowych i mutacji punktowych w kontekście tkankowym (Tabela 1) przy użyciu zaledwie jednej pary sond typu double-Z. Raport ten przedstawia pełny protokół testowy i jego zastosowanie w wykrywaniu wariantów splicingu, sekwencji CDR3 dla klonów receptorów komórek T oraz mutacji pojedynczych nukleotydów w liniach komórkowych FFPE i tkankach nowotworowych.
Protokół
Próbki ludzkiego guza użyte w tym badaniu zostały pozbawione elementów identyfikujących i pozyskane ze źródeł komercyjnych zgodnie z lokalnymi wytycznymi etycznymi dotyczącymi badań na ludziach.
1. Próbka, sprzęt i przygotowanie odczynnika
- Przygotowanie próbki FFPE
- Tkanek
- Bezpośrednio po rozbiorzeniu należy utrwalić tkankę (pociętą na bloki o grubości 3–4 mm) w 10% neutralnie buforowanej formalinie (NBF) przez 16–32 godzin w temperaturze pokojowej (RT).
UWAGA: Czas fiksacji będzie się różnić w zależności od rodzaju i rozmiaru tkanki. - Przemyć próbkę 1x solą fizjologiczną buforowaną fosforanem (PBS) i odwodnić za pomocą standardowej serii etanolu (EtOH) (70% EtOH przez 30–60 min, 80% EtOH przez 30–60 min, 90% EtOH przez 30–60 min, 95% EtOH przez 30–60 min, 3x 100% dla EtOH 30–60 min), a następnie ksylen.
- Zanurz próbkę w parafinie, korzystając ze standardowych procedur6 i przytnij bloki parafiny zgodnie z potrzebami, aby usunąć nadmiar parafiny.
UWAGA: Rozmiar bloku będzie się różnić w zależności od wielkości próbki tkanki, ale typowy rozmiar to 0,75 x 0,75 cala2 lub mniejszy.
- Bezpośrednio po rozbiorzeniu należy utrwalić tkankę (pociętą na bloki o grubości 3–4 mm) w 10% neutralnie buforowanej formalinie (NBF) przez 16–32 godzin w temperaturze pokojowej (RT).
- Linie komórkowe
- Zbieraj i osadzaj komórki zgodnie z metodami zalecanymi dla określonej linii komórkowej.
- Utrwal komórki w 10% formaldehydzie w temperaturze pokojowej przez 24 godziny na rotatorze.
- Przygotuj komórki w postaci granulek we wstępnie podgrzanym żelu do obróbki (np. Histogel). Poczekaj, aż osad zastygnie, umieszczając osad z ogniwami żelowymi na kawałku parafilmu na lodzie i pozostaw go na 2-3 minuty. Zanurz osad z ogniwami żelowymi w 1x PBS.
- Odwodnić i zanurzyć osady komórkowe zgodnie z opisem w kroku 1.1.1.
- Przygotowanie sekcji
- Pokrój osadzoną tkankę/komórki na odcinki o wielkości 5 ± 1 μm za pomocą mikrotomu, zamontuj skrawki na elektrostatycznie przyczepnych szkiełkach szklanych i wysusz je na powietrzu przez noc w temperaturze RT.
UWAGA: Szkiełka można przechowywać w temperaturze pokojowej w stanie wysuszenia do 3 miesięcy. - Umieść szkiełka w stojaku na szkiełka i piecz zamontowane szkiełka tkankowe w piecu z obiegiem powietrza w temperaturze 60 °C przez 1 godzinę przed wykonaniem testu.
UWAGA: Szkiełka należy zużyć natychmiast lub przechowywać je w temperaturze pokojowej z osuszaczem przez okres do 1 tygodnia. Długotrwałe przechowywanie może spowodować degradację RNA.
- Pokrój osadzoną tkankę/komórki na odcinki o wielkości 5 ± 1 μm za pomocą mikrotomu, zamontuj skrawki na elektrostatycznie przyczepnych szkiełkach szklanych i wysusz je na powietrzu przez noc w temperaturze RT.
- Tkanek
- Przygotowanie sprzętu
- Ustaw piec do hybrydyzacji na 40 °C. Dokładnie zwilż papier nawilżający i usuń wszelkie resztki dH2O. Włóż papier do tacki kontroli wilgotności i włóż tacę do pieca do hybrydyzacji, aby się rozgrzać przez co najmniej 30 minut przed użyciem.
- Przygotowanie odczynnika
- Napełnij dwie naczynia środka czyszczącego 200 ml ksylenu i napełnij dwie naczynia barwiące 200 ml 100% EtOH, który zostanie użyty do odparafinowania skrawków.
- Przygotuj 200 ml dostępnego w handlu 1x odczynnika do odzyskiwania celu, dodając 180 ml dH2O do 20 ml 10 x odczynnika do odzyskiwania celu. Umieść dwa uchwyty na szkiełka w naczyniu do gotowania na parze. Napełnij jeden uchwyt szkiełka 200 ml 1x odczynnika do odzyskiwania celu, a drugi uchwyt szkiełka napełnij 200 ml dH2O. Podgrzej oba roztwory do wrzenia za pomocą parowaru.
- Ciepły 50x bufor do płukania do 40 °C przez 10–20 min. Przygotować 3 l 1x buforu do płukania, rozcieńczając 60 ml podgrzanego 50x buforu do płukania z 2,94 l dH2O.
- W dygestorium przygotuj 50% roztwór przeciwbarwiący hematoksylinę Gilla, dodając 100 ml hematoksyliny Gilla do 100 ml dH2O. W dygestorium przygotuj odczynnik do niebieszczenia (0,02% (w/v) wody amoniakalnej), dodając 1,43 ml 28–30% wodorotlenku amonu do 250 ml dH2O.
- Rozgrzej sondy docelowe w temperaturze 40 °C przez 10 minut przed hybrydyzacją sondy i przynieś odczynniki wzmacniające (AMP 0–6) do RT.
2. Test hybrydyzacji RNA in situ
- Deparafinowanie i odwodnienie
- Po upieczeniu zgodnie z opisem w kroku 1.1.3.2 (opcjonalnie punkt zatrzymania 1), należy odparafinować sekcje w ksylenie przez 5 minut z mieszaniem. Ponownie odparafinować w świeżym ksylenie przez 5 minut. Odwodnić w 100% EtOH przez 2 minuty z mieszaniem i powtórzyć ponownie w świeżym 100% EtOH przez 2 minuty.
- Szkiełka należy suszyć na powietrzu przez 5 minut w temperaturze 60 °C w piecu z obiegiem powietrza lub w temperaturze pokojowej do całkowitego wyschnięcia (opcjonalnie punkt zatrzymania 2).
- Przykładowe zabiegi wstępne
- Inkubować skrawki z ~4 kroplami gotowego do użycia nadtlenku wodoru przez 10 minut w temperaturze pokojowej, aby wygasić endogenną aktywność peroksydazy. Zdekantować roztwór ze szkiełek i przepłukać je dwukrotniedH2O.
- Inkubować skrawki z 200 ml odczynnika do odzyskiwania celu przez 15–30 minut w temperaturze 100 °C w urządzeniu do gotowania na parze.
UWAGA: Czas inkubacji może się różnić w zależności od typu tkanki. W tym protokole pobieranie celu prowadzono przez 15 minut zarówno dla próbek guza, jak i osadów komórkowych. - Zdekantować roztwór ze szkiełek, spłukać dwukrotniedH2O, zanurzyć w 100% EtOH na 3 minuty i wysuszyć szkiełka w temperaturze 60 °C w suszarce z cyrkulacyjnym powietrzem lub w temperaturze pokojowej aż do całkowitego wyschnięcia.
- Narysuj barierę hydrofobową wokół sekcji za pomocą hydrofobowego pisaka, około 0,75 x 0,75 cala2,
UWAGA: Nie zaleca się rysowania mniejszej bariery. W przypadku większych odcinków konieczne będzie narysowanie większej bariery. - Pozostaw barierę do całkowitego wyschnięcia na 1 minutę lub pozostaw na noc w temperaturze pokojowej (opcjonalnie punkt zatrzymania 3).
- Umieść szkiełka w uchwycie na szkiełka i umieść uchwyt szkiełka w tacce do kontroli wilgotności. Dodaj ~4 krople proteazy III do każdego szkiełka i inkubuj je przez 15–30 minut w temperaturze 40 °C w piecu do hybrydyzacji w celu trawienia białek.
Uwaga: Czas inkubacji może się różnić w zależności od typu tkanki. W tym protokole trawienie proteazy prowadzono przez 30 minut w przypadku próbek guza i 15 minut w przypadku osadów komórkowych. - Zdekantować roztwór ze szkiełek i przepłukać je dwukrotniedH2O.
- Hybrydyzacja sondy
- Dodaj ~4 krople odpowiedniego, gotowego do użycia roztworu sondy, aby pokryć całą sekcję. Jeśli używasz większych sekcji, dodaj ~5–6 kropli.
- Hybrydyzować sondy przez 2 godziny w temperaturze 40 °C w piecu do hybrydyzacji. Zdekantować roztwór ze szkiełek i umyć szkiełka w 200 ml 1x buforu do płukania przez 2 minuty w temperaturze pokojowej z okazjonalnym mieszaniem. Powtórz procedurę prania na tym etapie.
- Wzmocnienie sygnału
- Inkubować skrawki z ~4 kroplami AMP 0 na szkiełko w temperaturze 40 °C w piecu do hybrydyzacji przez 30 minut. Zdekantować roztwór i przemyć szkiełka w 200 ml 1x buforu do przemywania przez 2 minuty w temperaturze pokojowej z okazjonalnym mieszaniem. Powtórz procedurę prania na tym etapie.
- Inkubować skrawki z ~4 kroplami AMP 1 na szkiełko w temperaturze 40 °C w piecu hybrydyzacyjnym przez 15 minut. Zdekantować roztwór i przemyć szkiełka w 200 ml 1x buforu do przemywania przez 2 minuty w temperaturze pokojowej z okazjonalnym mieszaniem. Powtórz procedurę prania.
- Inkubować skrawki z ~ 4 kroplami AMP 2 na szkiełko w temperaturze 40 °C w piecu do hybrydyzacji przez 30 minut. Zdekantować roztwór i przemyć szkiełka w 200 ml 1x buforu do przemywania przez 2 minuty w temperaturze pokojowej z okazjonalnym mieszaniem. Powtórz procedurę prania.
- Inkubować skrawki z ~4 kroplami AMP 3 na szkiełko w temperaturze 40 °C w piecu hybrydyzacyjnym przez 30 minut. Zdekantować roztwór i przemyć szkiełka w 200 ml 1x buforu do przemywania przez 2 minuty w temperaturze pokojowej z okazjonalnym mieszaniem. Powtórz procedurę prania.
- Inkubować skrawki z ~4 kroplami AMP 4 na szkiełko w temperaturze 40 °C w piecu do hybrydyzacji przez 15 minut. Zdekantować roztwór i przemyć szkiełka w 200 ml 1x buforu do przemywania przez 2 minuty w temperaturze pokojowej z okazjonalnym mieszaniem. Powtórz procedurę prania.
- Inkubować skrawki z ~ 4 kroplami AMP 5 na szkiełko w temperaturze pokojowej przez 30 minut. Zdekantować roztwór i przemyć szkiełka w 200 ml 1x buforu do przemywania przez 2 minuty w temperaturze pokojowej z okazjonalnym mieszaniem. Powtórz procedurę prania.
- Inkubować skrawki z ~4 kroplami AMP 6 na szkiełko w temperaturze pokojowej przez 15 minut. Zdekantować roztwór i przemyć szkiełka w 200 ml 1x buforu do przemywania przez 2 minuty w temperaturze pokojowej z okazjonalnym mieszaniem. Powtórz procedurę prania.
- Detekcja sygnału
- Przygotuj roztwór roboczy barwnika Fast Red. W przypadku jednego szkiełka z barierą 0,75 x 0,75 cala2 dodaj 2 μl barwnika Fast Red-B do 120 μl Fast Red-A do probówki i dobrze wymieszaj.
UWAGA: W zależności od wielkości bariery hydrofobowej i liczby szkiełek, objętości roztworu roboczego Fast Red będą się różnić. - Zdekantować nadmiar płynu ze szkiełek i dodać do szkiełek roztwór roboczy barwnika Fast Red. Inkubuj szkiełka przez 10 minut w temperaturze pokojowej na tacy z pokrywą, aby uniknąć ekspozycji na światło.
UWAGA: Użyj roztworu roboczego Fast Red w ciągu 5 minut od przygotowania i nie wystawiaj go na bezpośrednie działanie promieni słonecznych lub UV. - Zdekantować roztwór Fast Red i dwukrotnie spłukać szkiełka wodą z kranu. Umieść szkiełka z powrotem w stojaku na slajdy.
- Przygotuj roztwór roboczy barwnika Fast Red. W przypadku jednego szkiełka z barierą 0,75 x 0,75 cala2 dodaj 2 μl barwnika Fast Red-B do 120 μl Fast Red-A do probówki i dobrze wymieszaj.
- Przeciwbarwienie
- Przeciwbarwić skrawki tkanek 50% roztworem hematoksyliny Gilla przez 2 minuty w temperaturze pokojowej. Umyj szkiełka wodą z kranu i powtórz to kilka razy, aż szkiełka będą czyste, podczas gdy skrawki pozostaną fioletowe. Zanurz szkiełka w 0,02% wodzie amoniakalnej w celu niebieszczenia (zanurz 2-3 razy). Zastąp wodę amoniakalną wodą z kranu i umyj szkiełka 3–5 razy.
- Montaż na suwaku
- Szkiełka należy suszyć w piecu z obiegiem powietrza w temperaturze 60 °C przez 15 minut lub w temperaturze pokojowej aż do całkowitego wyschnięcia. Umieść 1-2 krople odczynnika montażowego na każdym szkiełku podstawowym i umieść szkiełka nakrywkowe na każdej sekcji. Unikaj zatrzymywania pęcherzyków powietrza. Suszyć szkiełka na powietrzu przez co najmniej 5 minut.
UWAGA: Podłoże Fast Red jest wrażliwe na alkohol. Nie suszyć szkiełka w alkoholu.
- Szkiełka należy suszyć w piecu z obiegiem powietrza w temperaturze 60 °C przez 15 minut lub w temperaturze pokojowej aż do całkowitego wyschnięcia. Umieść 1-2 krople odczynnika montażowego na każdym szkiełku podstawowym i umieść szkiełka nakrywkowe na każdej sekcji. Unikaj zatrzymywania pęcherzyków powietrza. Suszyć szkiełka na powietrzu przez co najmniej 5 minut.
- wizualizacja
- Obserwuj szkiełka pod standardowym mikroskopem jasnego pola.
Wyniki
Schemat badania hybrydyzacji in situ:
Schemat przedstawiono na Rysunku 1; składa się on z czterech etapów: permeabilizacji komórek lub tkanek przy użyciu roztworów do odzyskiwania celu i proteaz, hybrydyzacji sond z docelowym RNA, amplifikacji sygnału oraz wizualizacji sygnału. Sygnał można również ilościowo określić za pomocą cyfrowych systemów obrazowania lub w sposób półilościowy na podstawie liczby kropel na komórkę. Procedura manualna opisana na Rysunku 2 została również w pełni zautomatyzowana w komercyjnych systemach do automatycznego barwienia.
Reprezentatywne barwienie dla detekcji złączy eksonowych (wariant splicingowy EGFRvIII): EGFRvIII jest wariantem receptora epidermalnego czynnika wzrostu, który powstaje w wyniku delecji genomowej eksonów od 2 do 7 w ramce odczytu, co prowadzi do konstytutywnie aktywnego sygnałowania onkogennego7. Test został wykorzystany do określenia statusu EGFRvIII w próbkach guza glejaka wielopostaciowego (GBM) utrwalonych w FFPE. Zaprojektowano pojedyncze sondy typu double-Z obejmujące złącza eksonowe w celu detekcji transkrypty dzikiego typu (WT), mutantu lub obu tych form (Rycyna 3A). Sondy WT EGFR obejmują złącza eksonów 1 i 2 (E1/E2) lub eksonów 7 i 8 (E7/E8), podczas gdy sondy specyficzne dla EGFRvIII obejmują złącze eksonów 1 i 8 (E1/E8). Do detekcji całkowitego poziomu EGFR (zarówno transkrypty WT, jak i EGFRvIII) wykorzystano również wspólną sondę obejmującą złącze eksonów 8 i 9 (E8/E9). Wszystkie sondy zostały następnie użyte do określenia statusu EGFR w próbkach GBM FFPE. Dwa reprezentatywne przykłady przedstawione na Rycynie 3B pochodzą z szerszego badania. Status EGFR potwierdzono niezależną metodą, RT-PCR. Obie sondy WT wykryły sygnał w obu próbkach, co wskazuje, że obie próbki wykazują ekspresję WT EGFR (Rycyna 3B). Jednakże sonda mutant wykazała detekcję sygnału tylko w próbce EGFRvIII+, potwierdzając, że próbka ta jest rzeczywiście pozytywna pod kątem wariantu EGFRvIII (Rycyna 3B, panele lewe). I odwrotnie, sonda mutant nie wykryła sygnału w próbce EGFRvIII- (Rycyna 3B, panele prawe). Podsumowując, wyniki te wykazują, że test złączy eksonowych może identyfikować status EGFRvIII w próbkach guza GBM FFPE.
Reprezentatywne barwienie dla krótkich celów:
CDR3, czyli region komplementarny determinujący 3, jest wysoce zmienną domeną w receptorach limfocytów T. Typowo sekwencje CDR3 są dość krótkie; na przykład sekwencje CDR3 α i β z linii komórkowej limfocytów T Jurkat mają odpowiednio 51 i 48 nukleotydów długości (Rycina 4A). Aby zidentyfikować specyficzne sekwencje CDR ekspresjonowane w komórkach Jurkat, wygenerowano sondy antysensowne dla CDR3 α i β ekspresjonowanych w linii komórkowej limfocytów T Jurkat, a także sondy sensowne dla CDR3 α i β, które służyły jako sondy kontrolne negatywne. Następnie wszystkie sondy przetestowano w komórkach Jurkat przygotowanych metodą FFPE za pomocą opisanego testu. W komórkach Jurkat zaobserwowano silne barwienie z zastosowaniem sond antysensownych zarówno dla CDR3 α, jak i β, podczas gdy sondy sensowne wykryły znikomy lub żaden sygnał (Rycina 4B). Wyniki te demonstrują zdolność testu dla krótkich celów do rozróżniania wysoce zmiennych, lecz krótkich sekwencji CDR dla klonów receptorów limfocytów T.
Reprezentatywne barwienie dla punktowej mutacji EGFR L858R:
Sondy do wykrywania mutacji punktowych opracowano w celu identyfikacji jednonukleotydowych wariacji oraz niewielkich insercji lub delecji (INDELs) w kontekście guza. Rycina 5A obrazuje możliwość detekcji in situ mutacji punktowej EGFR L858R (2573T>G). Zaprojektowano dwie sondy: jedną do wykrywania zmutowanej sekwencji EGFR L858R oraz drugą do wykrywania sekwencji EGFR L858 WT. Obie sondy przetestowano w dwóch liniach komórkowych przygotowanych metodą FFPE: H2229, która wykazuje ekspresję wyłącznie EGFR L858 WT, oraz H1975, która jest heterozygotyczna pod kątem mutacji EGFR L858R. Sonda dla mutacji L858R wykazała sygnał tylko w linii komórkowej H1975, natomiast nie w linii H2229. Z kolei sonda WT wykazała sygnał w obu liniach komórkowych. Podobnie, Rycina 5B wizualizuje detekcję in situ mutacji punktowej KRAS G12A (35 G>C). Zaprojektowano dwie sondy do wykrywania sekwencji KRAS G12A MT oraz KRAS G12 WT, a następnie przetestowano je na linii komórkowej HuT78 (która wykazuje ekspresję wyłącznie KRAS G12 WT) oraz linii komórkowej SW116 (która jest heterozygotyczna pod kątem mutacji KRAS G12A). Podczas gdy sonda KRAS G12 WT wykazała sygnał w obu liniach komórkowych, sonda KRAS G12A wykazała sygnał wyłącznie w linii komórkowej SW116. Wspólnie dane te demonstrują techniczną możliwość zastosowania testu na mutacje punktowe w wykrywaniu polimorfizmów pojedynczego nukleotydu w kontekście komórkowym i tkankowym.
Reprezentatywne barwienie dla zautomatyzowanego testu in situ:
Zautomatyzowane testy pozwalają na bardziej niezawodne analizowanie większej liczby próbek, minimalizując zmienność między użytkownikami oraz czas pracy manualnej, a także generując spójne i powtarzalne wyniki. W związku z tym opracowano zautomatyzowaną wersję testu. Aby zademonstrować zautomatyzowane barwienie w tym teście, zbadano detekcję wariantu splicingowego METΔ14. Wariant ten jest wynikiem pominięcia eksonu 14 w genie MET podczas splicingu pre-mRNA, co prowadzi do konstytutywnej aktywacji i transformacji onkogennej receptora MET8,9. W celu specyficznej detekcji wariantu METΔ14 zaprojektowano dwie sondy do złączy eksonów: jedną obejmującą złącze eksonów 13 i 15 (E13/E15) do detekcji transkryptu wariantu METΔ14 oraz drugą obejmującą złącze eksonów 14 i 15 (E14/E15) do detekcji transkryptu WT MET (Rysunek 6A). Obie sondy przetestowano następnie w 2 liniach komórkowych przygotowanych metodą FFPE: H596, która wykazuje ekspresję wariantu METΔ14, oraz A549, która wykazuje ekspresję genu WT MET. Obie sondy wykazały wzajemnie wykluczające się wzorce ekspresji, przy czym sonda E13/E15 wykryła sygnał wyłącznie w komórkach H596, a sonda E14/E15 wykryła sygnał wyłącznie w komórkach A549 (Rysunki 6B i 6C). Na koniec sonda dla dapB nie wykazała sygnału, co wskazuje na brak sygnału tła (Rysunki 6B i 6C). Podsumowując, dane te demonstrują specyficzną detekcję wariantu MET METΔ14 in situ z wykorzystaniem zautomatyzowanego testu BaseScope.
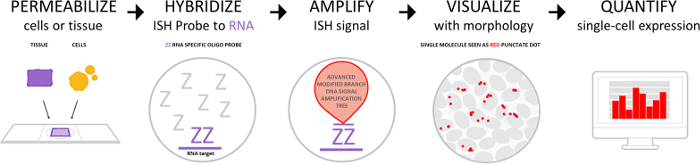
Rysunek 1: Schemat analizy. Schemat składa się z 4 głównych etapów: obróbki wstępnej w celu permeabilizacji komórek lub tkanek, hybrydyzacji sondy z docelowym RNA, amplifikacji sygnału oraz detekcji sygnału poprzez wizualizację pod mikroskopem w świetle przechodzącym lub fluorescencyjnym. Poszczególne kropki można poddać kwantyfikacji przy użyciu platformy do cyfrowej analizy obrazu. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
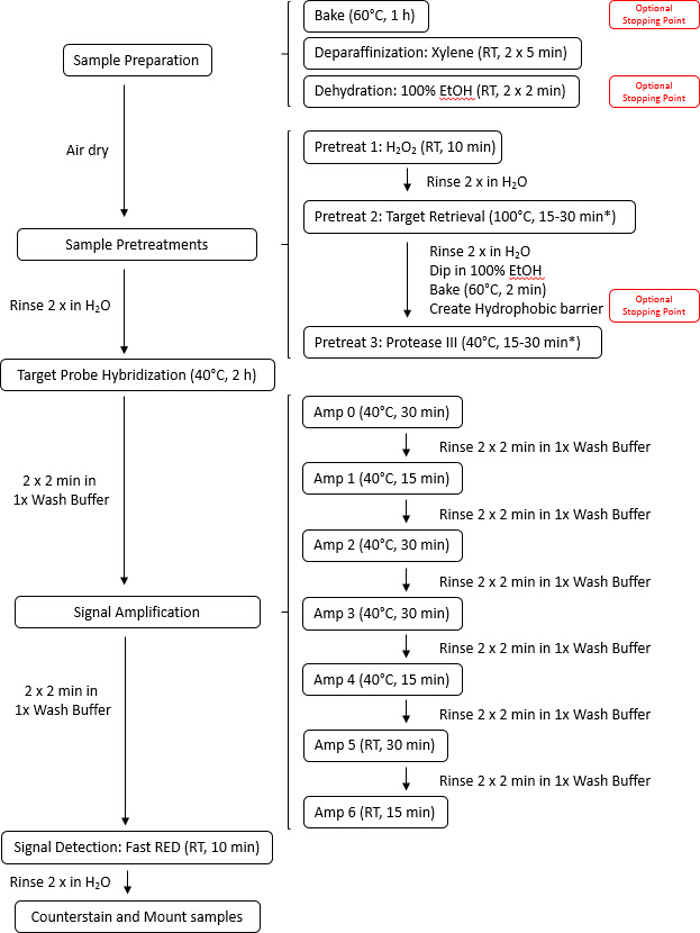
Rysunek 2: Ilustracja ręcznego protokołu analizy. Cały proces analizy można ukończyć w ciągu 9 h. Czas wstępnej obróbki może się różnić w zależności od rodzaju tkanki, dlatego zaleca się zapoznać z załącznikiem A w instrukcji obsługi w celu uzyskania zaleceń dotyczących czasu inkubacji podczas wstępnej obróbki tkanki. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
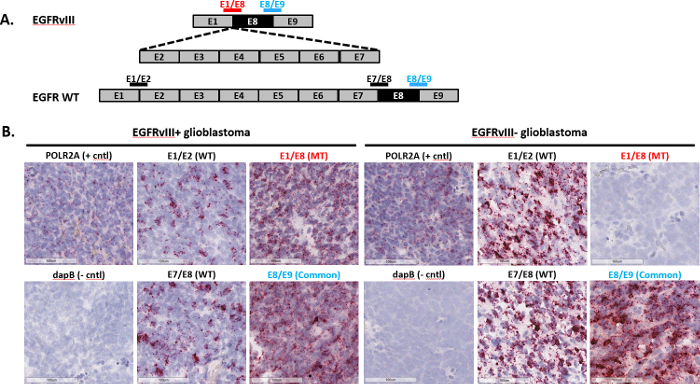
Rycina 3: Reprezentatywne obrazy detekcji złączy eksonowych. (A) Przedstawiono organizację eksonów dla transkryptów EGFR WT oraz EGFRvIII oraz schemat przedstawiający sondy złączy eksonowych double-Z, które obejmują złącze w celu wykrycia EGFR WT lub EGFRvIII. (B) Test złączy eksonowych wykonano na dwóch próbkach glejaka wielopostaciowego utrwalonych w FFPE, używając sond wymienionych w punkcie (A), a także sondy kontrolnej dodatniej POLR2A oraz sondy kontrolnej ujemnej dapB. Prosimy kliknąć tutaj, aby zobaczyć powiększoną wersję tej ryciny.
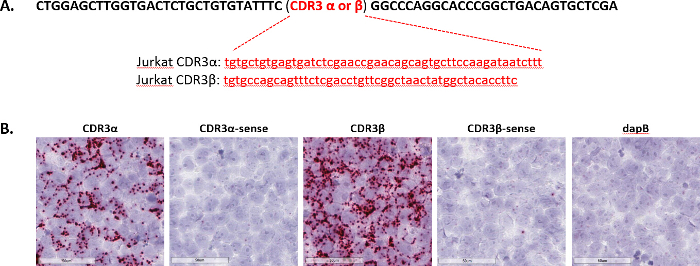
Rycina 4: Reprezentatywne obrazy detekcji krótkich sekwencji docelowych. (A) Przedstawiono tutaj sekwencje CDR3 w komórkach Jurkat. Sekwencja zaznaczona na czarno to wspólna sekwencja flankująca, a sekwencja na czerwono jest unikalna dla CDR3α lub CDR3β. Zaprojektowano pojedyncze sondy z krótką sekwencją docelową double-Z skierowane przeciwko tym sekwencjom. (B) Analizę krótkich sekwencji docelowych przeprowadzono na komórkach Jurkat przygotowanych jako pellet komórkowy FFPE, wykorzystując sondy antysensowne lub sensowne celujące w sekwencje z punktu (A); w charakterze kontroli negatywnej zastosowano dapB. Aby wyświetlić powiększoną wersję tej ryciny, kliknij tutaj.
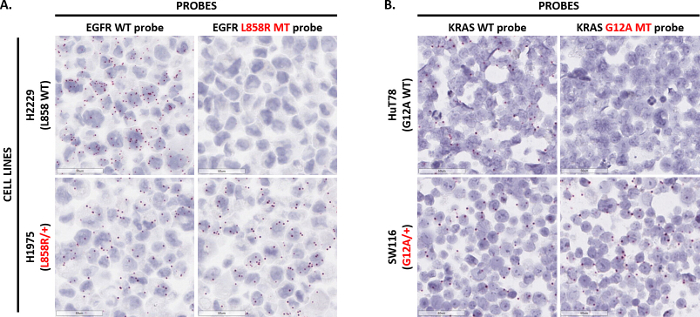
Rycina 5: Reprezentatywne obrazy detekcji mutacji punktowych. (A) Test przeprowadzono na komórkach H2229 (homozygotycznych dla EGFR L858) i komórkach H1975 (heterozygotycznych dla mutacji EGFR L858R) przygotowanych jako osad komórkowy FFPE, z użyciem pojedynczych sond do mutacji punktowych typu double-Z nakierowanych na sekwencję EGFR L858 WT lub zmutowaną sekwencję EGFR L858R. (B) Test mutacji punktowych przeprowadzono na komórkach HuT78 (homozygotycznych dla KRAS G12A) i komórkach SW116 (heterozygotycznych dla mutacji KRAS G12A) przygotowanych jako osad komórkowy FFPE, z użyciem pojedynczych sond do mutacji punktowych typu double-Z nakierowanych na sekwencję KRAS G12 WT lub zmutowaną sekwencję KRAS G12A. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
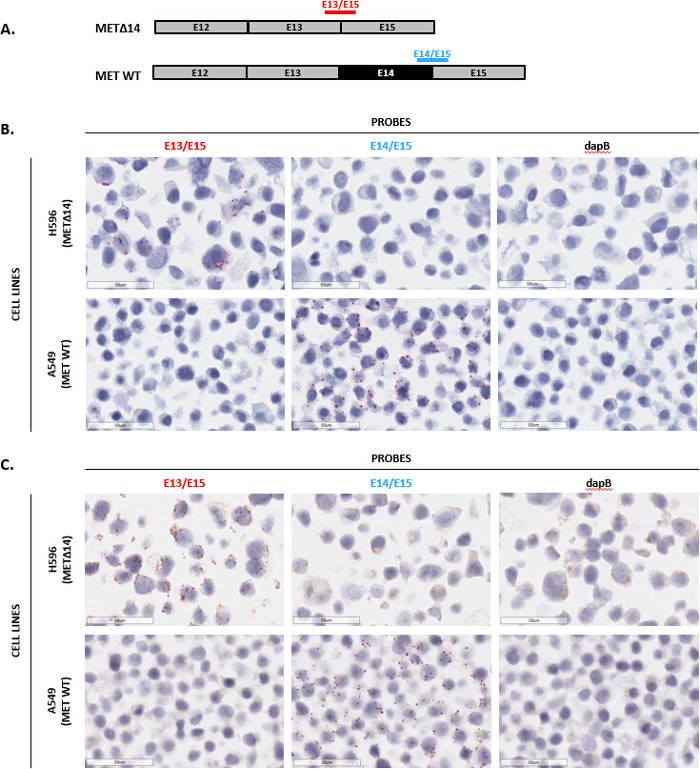
Rysunek 6: Reprezentatywne obrazy automatycznego barwienia z zastosowaniem testu złącza eksonowego. (A) Przedstawiono tutaj organizację eksonów dla transkryptów MET WT i METΔ14 oraz schemat obrazujący pojedyncze sondy złącza eksonowego typu double-Z, które obejmują złącze w celu wykrycia MET WT lub METΔ14. (B) i (C) Automatyczny test złącza eksonowego przeprowadzono na komórkach H596 (wykazujących METΔ14) i komórkach A549 (wykazujących MET WT) przygotowanych jako granule komórkowe FFPE, przy użyciu sond wymienionych w punkcie (A) oraz sondy kontrolnej negatywnej dapB. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
| Złącze eksonowe | Krótka sekwencja | Mutacja punktowa |
| Wariant splicingu/izoforma | Sekwencje o długości od 50 do 300 nt | Mutacja punktowa |
| Koliste RNA (circRNA) | Sekwencje o wysokiej homologii | Krótka insercja lub delecja (indel) |
| Fuzja genów | Sekwencja CDR3 dla klonów TCR | Edycja genów |
| Nokaut genu (KO) | Pre-miRNA | |
| Małe jądrowe RNA (snoRNA) | ||
| Edycja genów |
Tabela 1: Zastosowania in situ analiza Istnieją trzy główne kategorie zastosowań tego testu: złącze eksonowe, krótka sekwencja docelowa oraz mutacja punktowa. W każdej kolumnie wymieniono przykłady konkretnych zastosowań dla każdej z kategorii.
Dyskusja
W niniejszym raporcie szczegółowo omówiono nowy protokół testu ISH i jego zastosowania. Test pozwala na bezpośrednią wizualizację połączeń eksonowych, sekwencji krótkodocelowych i wysoce homologicznych oraz mutacji punktowych w kontekście tkankowym. Test opiera się na technologii RNAscope5 i dlatego jest zdolny do wykrywania pojedynczych cząsteczek. Jednak dzięki zaawansowanemu systemowi wzmacniania, sygnał może być wykryty za pomocą sond zawierających tylko jedną parę podwójnego Z lub z docelową długością matrycy wynoszącą zaledwie 50 nukleotydów. Ponieważ sondy mogą być tak krótkie, jak pojedyncza podwójna Z, pozwala to na wykrycie połączeń eksonowych, krótkich sekwencji docelowych i wysoce homologicznych oraz mutacji punktowych (Tabela 1).
Aby test przebiegł pomyślnie, istnieje kilka zaleceń technicznych. Po pierwsze, tkanki należy utrwalić w świeżej 10% neutralnie buforowanej formalinie (NBF) w temperaturze pokojowej przez 16–32 godziny10. Niedostateczna fiksacja (<16 h) lub overfiksacja (>32 h) pogorszy wydajność testu i może wymagać dodatkowej optymalizacji. Po drugie, aby zapewnić optymalną kontrolę temperatury i wilgotności, które są wymagane do solidnej hybrydyzacji sondy i wzmocnienia sygnału, system przetwarzania szkiełek i piec do hybrydyzacji powinny być używane do kroków protokołu od 2,3 do 5 (wstępna obróbka proteazy, hybrydyzacja sondy, wzmocnienie sygnału i wykrywanie sygnału). Po trzecie, nadmiar resztkowych powinien być odpowiednio zdekantowany przed każdym krokiem w całym protokole (ale nie na tyle, aby skrawki tkanki wyschły). Jeśli szkiełka wyschną, pojawi się znaczący sygnał niespecyficzny. Po czwarte, w zależności od rodzaju tkanki, konieczna może być optymalizacja przed leczeniem. Użycie niewłaściwej proteazy lub działanie przez nieoptymalny czas może spowodować niedostateczne lub nadmierne trawienie i negatywnie wpłynie na sygnał. Wreszcie, ważne jest, aby zawsze przeprowadzać kontrole dodatnie i ujemne za pomocą sond testowych. Sondy kontroli ujemnej zapewniają, że nie ma sygnału tła, a sondy kontroli dodatniej zapewniają, że test został wykonany prawidłowo i że jakość RNA w próbce jest optymalna do interpretacji wyników sondy testowej. Jeśli nie ma sygnału z sondą kontroli dodatniej, oznacza to, że jakość RNA w próbce jest prawdopodobnie nieoptymalna i sygnał może nie być widoczny za pomocą sondy testowej.
Oprócz testu ręcznego wykazano również możliwość przeprowadzenia testu na automatycznych barwiarkach (ryc. 6). Ten zautomatyzowany test ISH daje wysoki stosunek sygnału do szumu i ma zastosowanie do tych samych zastosowań, jak pokazano w tabeli 1; Jednak korzyści płynące z automatycznego testu obejmują standaryzację warunków testu, minimalizację zmienności między użytkownikami i czasu pracy praktycznej, a także możliwość przeprowadzenia wysokoprzepustowych badań przesiewowych próbek tkanek w niezawodny sposób.
Podczas gdy immunohistochemia (IHC) i qRT-PCR pozwalają na wykrycie wariantów splicingu (w szczególności EGFRvIII) w próbkach klinicznych FFPE, techniki te mogą nie mieć niezbędnej swoistości i nie oferują wglądu w rozdzielczość przestrzenną ekspresji wariantu splicingu, odpowiednio11,12. Kluczową zaletą testu w tym protokole jest jego bardzo czuła i specyficzna wizualizacja połączeń splicingowych przy jednoczesnym zachowaniu kontekstu morfologicznego tkanki. W tym miejscu zademonstrowano zdolność testu do precyzyjnego celowania w unikalne połączenia eksonowe dla kilku wariantów splicingu, w tym EGFRvIII i METΔ14 (ryc. 3 i 6). Ponadto wykazano, że test wykrywa wariant splicingu AR-V7 w raku prostaty, wiele izoform ErbB4 w mózgu i potwierdzenie nokautu kolistego RNA Cdr1as w mózgu myszy 3,13,14.
Wykrywanie krótkich sekwencji docelowych za pomocą tego testu ISH pozwala na wizualizację sekwencji RNA o długości zaledwie 50 nukleotydów, jak wykazano przez wykrycie sekwencji CDR3 pochodzących z komórek Jurkat (Figura 3). Test może również wykryć sekwencje genów, które są wysoce homologiczne z innymi członkami rodziny lub gatunkami, jak wykazali Revêchon i wsp., którzy wykorzystali test krótkiego celu do wykrycia ludzkiej progeryny ulegającej ekspresji w podskórnej białej tkance tłuszczowejmyszy 15. Ponadto małe jądrowe RNA (snoRNA), edycja genów za pośrednictwem CRISPR i mikroRNA prekursorowe mogą być wykrywane in situ za pomocą testu na krótki cel. Niedawno Fu i in. połączyli ten test ISH z IHC, aby zidentyfikować precyzyjne komórki w siatkówce eksprymujące pre-miRNA mir125b16.
Profilowanie mutacji w nowotworach ma kluczowe znaczenie dla badania progresji nowotworów i opracowywania terapii celowanych. Podczas gdy profilowanie mutacji można osiągnąć za pomocą sekwencjonowania o wysokiej przepustowości, technologia ta nie może w pełni rozwiązać problemu heterogeniczności wewnątrz guza ani powiązać zmian genetycznych z morfologią komórkową17,18. Wykrywanie mutacji punktowych za pomocą tego testu ISH pozwala na rozróżnienie docelowych sekwencji RNA w rozdzielczości pojedynczej zasady, co zostało potwierdzone przez wykrycie wariacji pojedynczego nukleotydu EGFR L858R i KRAS G12A w liniach komórkowych (Figura 5). Ponadto Baker i in. wykorzystali test mutacji punktowej do celowania w wiele mutacji w onkogenach BRAF, KRAS i PIK3CA w raku jelita grubego18. Udało im się zidentyfikować i zmapować przestrzennie rzadkie zmutowane subklony komórek nowotworowych, ostatecznie pokazując, w jaki sposób przyczyniają się one do niejednorodności wewnątrz guza.
Podsumowując, opracowano specjalistyczny test RNA ISH. Metodologia ta pozwala na wykrywanie wariantów splicingu, krótkich sekwencji i mutacji in situ. Jest czuły, specyficzny, policzalny i można go dostosować do wydajności zarówno metodami ręcznymi, jak i w automatycznych barwiarkach.
Oświadczenia
Wszyscy autorzy są zatrudnieni przez Advanced Cell Diagnostics, Inc.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Piekarnik HybEZ (110 lub 220 VAC) lub Piekarnik HybEZ II (110 lub 220 V) | ACD | 310010 lub 310013 (HybEZ™), 321710 lub 321720 (HybEZ™ II) | |
| Taca kontroli wilgotności HybEZ (z pokrywą) | ACD | 310012 | |
| ACD EZ-Batch Slide Rack (20 prowadnic) 1 stojak 310017 | ACD | 310017 | |
| Papier nawilżający HybEZ | ACD | 310015 | |
| Hydrofobowy długopis barierowy ImmEdge (wymagany) | Laboratorium wektorowe | H-4000 | |
| SuperFrost Plus (wymagane) | Fisher Naukowy | 12-550-15 | |
| 10% formalina buforowana neutralnie (NBF) | Główny dostawca laboratoriów MLS/ | MLS w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. | |
| Wosk parafinowy | MLS | / | MLS Główny dostawca laboratoryjny w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. |
| Microtome | MLS | / | MLS Główny dostawca laboratoryjny w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. |
| Skrzela s Hematoksylina I | Amerykański Master Tech Naukowy/MLS& | nbsp; HXGHE1LT | głównym dostawcą laboratoriów MLS w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. |
| Ksylen | Fisher Scientific/MLS | X3P-1GAL | MLS Główny dostawca laboratoriów w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. |
| Stojak na prowadnice Tissue-Tek Vertical 24 | American Master Tech Scientific/MLS | LWSRA24 | głównym dostawcą laboratoriów MLS w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. |
| Naczynia do barwienia Tissue-Tek | American Master Tech Scientific/MLS | LWT4457EA | głównym dostawcą laboratoriów MLS w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. |
| Naczynia ze środkiem czyszczącym Tissue-Tek, odporne na ksylen | American Master Tech Scientific/MLS | LWT4456EA | głównym dostawcą laboratoriów MLS w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. |
| 100% alkohol (EtOH) | American Master Tech Scientific/MLS | ALREACS | MLS Główny dostawca laboratoryjny w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. |
| VectaMount Stałe podłoże montażowe (wymagane) | Vector Labs | H-5000 | |
| Szkło osłonowe, 24 mm x 50 mm | Fisher Scientific/MLS | 12-545-F | MLS Główny dostawca laboratoryjny w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. |
| Wodorotlenek amonu, 28– 30% | Sigma-Aldrich / MLS | 320145-500 ml | MLS Główny dostawca laboratoryjny w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. |
| Carboy (>3L) | MLS/ | MLS Główny dostawca laboratoryjny w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. | |
| Parowiec Oster model 5712, parowiec Black and Decker HS3000 lub parowiec Braun Multiquick FS 20 | / | / | |
| Termometr cyfrowy | MLS | / | MLS Główny dostawca laboratoryjny w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. |
| Łaźnia wodna lub inkubator, zdolne do utrzymywania temperatury na poziomie 40 +/– 1 ° C | MLS/ | MLS Główny dostawca laboratoriów w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. | |
| Pipety i końcówki, 1– 1,000 μ L | MLS/ | MLS Główny dostawca laboratoryjny w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. | |
| laboratoryjny MLS/ | wody destylowanej | w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. | |
| Probówki (różne rozmiary) | MLS/ | MLS Główny dostawca laboratoryjny w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. | |
| Wyciąg | MLS/ | MLS Główny dostawca laboratoryjny w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. | |
| Cylinder z podziałką | MLS/ | MLS Główny dostawca laboratoryjny w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. | |
| Parafilm | MLS | / | MLS Główny dostawca laboratoryjny w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. |
| Ręcznik papierowy lub papier chłonny | MLS/ | MLS Główny dostawca laboratoryjny w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. | |
| Mikrowirówki | MLS | / | MLS Główny dostawca laboratoryjny w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. |
| Mikroskop i akcesoria | MLS/ | MLS Główny dostawca laboratoryjny w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. | |
| Suszarka, zdolna do utrzymywania temperatury na poziomie 60 +/– 1 ° C | MLS/ | MLS Główny dostawca laboratoriów w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. | |
| Formaldehyd | MLS/ | MLS Główny dostawca laboratoryjny w Ameryce Północnej. W przypadku innych regionów sprawdź numery katalogowe u lokalnego dostawcy laboratorium. | |
| Histogel | Fisher Scientific/MLS | 22-110-678 | |
| Zestaw odczynników BaseScope - RED | Zaawansowana diagnostyka komórek | 322900 | |
| BaseScope Hs-EGFR-E1E2 | Zaawansowana diagnostyka komórek | 701701 | |
| BaseScope Hs-EGFR-E1E8 | Zaawansowana diagnostyka komórek | 701711 | |
| BaseScope Hs-EGFR-E7E8 | Zaawansowana diagnostyka komórek | 701721 | |
| BaseScope Hs-EGFR-E8E9 | Zaawansowana diagnostyka komórek | 701731 | |
| BaseScope Hs-MET-E14E15 | Zaawansowana diagnostyka komórek | 701811 | |
| BaseScope Hs-MET-E13E15 | Zaawansowana diagnostyka komórek | 701801 | |
| BaseScope Hs-KRAS-G12A | Zaawansowana diagnostyka komórek | 705491 | |
| BaseScope Hs-KRAS-G12-nt35WT | Zaawansowana diagnostyka komórek | 705531 | |
| BaseScope Hs-EGFR-L858R | Zaawansowana diagnostyka komórek | 705451 | |
| BaseScope Hs-EGFR-L858WT | Zaawansowana diagnostyka komórek | 705461 | |
| BaseScope Control Probe Pack | Zaawansowana diagnostyka komórek | 322975 |
Bibliografia
- Bolha, L., Ravnik-Glavač, M., Glavač, D. Circular RNAs: Biogenesis, Function, and a Role as Possible Cancer Biomarkers. International Journal of Genomics. 2017, 6218353(2017).
- Yamada, A., Yu, P., Lin, W., Okugawa, Y., Boland, C. R., Goel, A. A RNA-Sequencing approach for the identification of novel long non-coding RNA biomarkers in colorectal cancer. Scientific Reports. 8 (1), 575(2018).
- Erben, L., He, M. X., Laeremans, A., Park, E., Buonanno, A. A Novel Ultrasensitive In Situ Hybridization Approach to Detect Short Sequences and Splice Variants with Cellular Resolution. Molecular Neurobiology. , Epub ahead of print (2017).
- Mahmood, R., Mason, I. In-situ hybridization of radioactive riboprobes to RNA in tissue sections. Methods in Molecular Biology. 461, 675-686 (2008).
- Wang, F., et al. RNAscope: a novel in situ RNA analysis platform for formalin-fixed, paraffin-embedded tissues. Journal of Molecular Diagnostics. 14 (1), 22-29 (2012).
- Paraffin processing of tissue. Protocols Online. , Available from: https://www.protocolsonline.com/histology/sample-preparation/paraffin-processing-of-tissue/ (2016).
- An, Z., Aksoy, O., Zheng, T., Fan, Q. W., Weiss, W. A. Epidermal growth factor receptor and EGFRvIII in glioblastoma: signaling pathways and targeted therapies. Oncogene. , Epub ahead of print (2018).
- Frampton, G. M., et al. Activation of MET via diverse exon 14 splicing alterations occurs in multiple tumor types and confers clinical sensitivity to MET inhibitors. Cancer Discovery. 5 (8), 850-859 (2015).
- Awad, M. M., et al. MET Exon 14 Mutations in Non-Small-Cell Lung Cancer Are Associated With Advanced Age and Stage-Dependent MET Genomic Amplification and c-Met Overexpression. Journal of Clinical Oncology. 34 (7), 721-730 (2016).
- Hammond, M. E., et al. American Society of Clinical Oncology/College of American Pathologists guideline recommendations for immunohistochemical testing of estrogen and progesterone receptors in breast cancer. Archives of Pathology and Laboratory Medicine. 134 (6), 907-922 (2010).
- Gan, H. K., Cvrljevic, A. N., Johns, T. G. The epidermal growth factor receptor variant III (EGFRvIII): where wild things are altered. Federation of European Biochemical Societies Journal. 280 (21), 5350-5370 (2013).
- Wheeler, S. E., Egloff, A. M., Wang, L., James, C. D., Hammerman, P. S., Grandis, J. R. Challenges in EGFRvIII detection in head and neck squamous cell carcinoma. Public Library of Science One. 10 (2), e0117781(2015).
- Zhu, Y., et al. Novel Junction-specific and Quantifiable In Situ Detection of AR-V7 and its Clinical Correlates in Metastatic Castration-resistant Prostate Cancer. European Urology. , Epub ahead of print (2017).
- Piwecka, M., et al. Loss of a mammalian circular RNA locus causes miRNA deregulation and affects brain function. Science. , Epub ahead of print (2017).
- Revêchon, G., et al. Rare progerin-expressing preadipocytes and adipocytes contribute to tissue depletion over time. Scientific Reports. 7 (1), 4405(2017).
- Fu, Y., et al. Functional ectopic neuritogenesis by retinal rod bipolar cells is regulated by miR-125b-5p during retinal remodeling in RCS rats. Scientific Reports. 7 (1), 1011(2017).
- Yates, L. R., et al. Subclonal diversification of primary breast cancer revealed by multiregion sequencing. Nature Medicine. 21 (7), 751-759 (2015).
- Baker, A. M., et al. Robust RNA-based in situ mutation detection delineates colorectal cancer subclonal evolution. Nature Communications. 8 (1), 1998(2017).
Przedruki i uprawnienia
