Prezentujemy protokół klasycznego warunkowania mrówek w okiełznaniu, który pozwala badaczom badać wizualne uczenie się i tworzenie pamięci na poziomie analizy niemożliwym dla swobodnie poruszających się osób.
Artykuł metodologiczny
Wizualne warunkowanie klasyczne u mrówek leśnych
W tym artykule
Informacja o sprostowaniu
Important: There has been an erratum issued for this article. View Erratum Notice
Podsumowanie
Streszczenie
Kilka gatunków owadów stało się modelowymi systemami do badania uczenia się i tworzenia pamięci. Chociaż wiele badań koncentruje się na swobodnie poruszających się zwierzętach, badania wdrażające klasyczne paradygmaty warunkowania z wykorzystaniem zaprzęgniętych owadów były ważne dla zbadania dokładnych wskazówek, których uczą się poszczególne osoby, oraz mechanizmów neuronalnych leżących u podstaw uczenia się i tworzenia pamięci. W tym miejscu przedstawiamy protokół wywoływania wizualnego uczenia się asocjacyjnego u mrówek leśnych poprzez warunkowanie klasyczne. W tym paradygmacie mrówki są zaprzęgnięte i prezentowane za pomocą wizualnej wskazówki (niebieski karton), bodźca warunkowego (CS), w połączeniu z apetytywną nagrodą cukrową, bodźcem bezwarunkowym (US). Mrówki wykonują odruch wyprostu szczękowo-sromowego (MaLER), odpowiedź bezwarunkową (UR), która może być wykorzystana jako odczyt do uczenia się. Trening składa się z 10 prób, oddzielonych 5-minutową interwencją międzytrialową (ITI). Mrówki są również testowane pod kątem zachowania pamięci 10 minut lub 1 godzinę po treningu. Protokół ten może pozwolić naukowcom na analizę, w precyzyjny i kontrolowany sposób, szczegółów tworzenia pamięci wzrokowej oraz neuronalnych podstaw uczenia się i tworzenia pamięci u mrówek leśnych.
Wprowadzenie
Owady były szeroko wykorzystywane jako modele do badania uczenia się i tworzenia pamięci1. Szczególnie udanym nurtem badań jest wykorzystanie klasycznego warunkowania skrępowanych zwierząt, co pozwala na precyzyjną kontrolę nad wyuczonymi sygnałami i pozwala naukowcom badać mechanizmy neuronalne leżące u podstaw uczenia się i pamięci. Większość badań koncentrowała się na klasycznym warunkowaniu apetytywnym robotnic pszczół miodnych, Apis mellifera. Robotnice pszczół miodnych są szkolone w zakresie kojarzenia CS z USA, który przywołuje UR. W tym paradygmacie, pierwotnie opracowanym przez Takeda2 oraz Bitterman et al.3, UR to odruch przedłużenia trąbowca (PER), US to cukier, a CS to zapach. Pszczoły uczą się związku między CS a USA i mogą tworzyć długotrwałą pamięć tego związku.
Oryginalny paradygmat wykorzystujący PER jako UR został wykorzystany do rozwikłania ścieżek neuronowych leżących u podstaw uczenia się węchowego u pszczół4. Został zmodyfikowany na kilka sposobów, aby przetestować uczenie się różnych bodźców sensorycznych, w tym bodźców wizualnych5,6,7, aby włączyć awersyjne uczenie się za pomocą tłumienia PER8 lub Sting Extension Reflex (SER)9 jako UR, oraz aby przetestować uczenie się u innych gatunków, takich jak bumblebees10 i muszki owocowe11. Chociaż tworzenie pamięci za pomocą kilku modalności zostało zbadane za pomocą klasycznego warunkowania, uczenie się wizualne jest nadal trudne do zaobserwowania przy użyciu tego podejścia, nawet u gatunków, które wykazują wysoki stopień zdolności uczenia się wizualnego podczas żerowania, takich jak pszczoły miodne.
Ostatnie badania zastosowały podobne podejście do owadów, które nie mają trąby, takich jak szarańcza, która wykonuje reakcję na otwarcie palp (POR)12, oraz mrówki, które wykonują odruch wydłużenia szczęki-wargi sromowej (MaLER)13. To już ujawniło specyficzne dla danej fazy zdolności uczenia się, które pasują do specyficznych dla fazy strategii żywieniowych dwóch różnych fenotypów szarańczy pustynnej, formy stadnej i solitarnej, wzmacniając ideę, że tworzenie pamięci musi odpowiadać potrzebom ekologicznym14. Co więcej, badania nad uczeniem się węchowym u mrówek wykazały podobieństwa między mrówkami a pszczołami miodnymi w tworzeniu i zapamiętywaniu, przy czym zachowanie pamięci długotrwałej, 72 godziny po treningu, jest zależne od syntezy białek15.
Te adaptacje oryginalnego paradygmatu pozwoliły na badanie uczenia się i tworzenia pamięci za pomocą wielu modalności i w kilku gatunkach modeli. Ma to zasadnicze znaczenie dla identyfikacji mechanizmów tworzenia pamięci wspólnych dla owadów, ale także dla identyfikacji różnic, które odzwierciedlają szczególną ekologię uczenia się i pamięci u różnych gatunków. Głównym celem opisywanego przez nas protokołu jest zapewnienie sposobu na przeprowadzanie klasycznych eksperymentów warunkowych przy użyciu wizualnego bodźca warunkowego z szeroko badanym gatunkiem mrówek, Formica rufa. Pochodzi on z naszego badania nad wizualnym uczeniem się u mrówek leśnych16, który jest również adaptacją klasycznych paradygmatów warunkowania wizualnego.
Protokół
1. Utrzymanie kolonii Formica rufa
Uwaga: Kolonie mrówek leśnych (Formica rufa, L.) użyte do tego badania zostały zebrane z Ashdown Forest, Sussex, UK (N 51 4.680, E 0 1.800). W Wielkiej Brytanii kolonie F. rufa powinny być zbierane między lipcem a sierpniem. Znaczna część gniazda musi zostać usunięta, w tym kilkaset robotnic i czerwiu, aby zapewnić utrzymanie i aktywność kolonii przez dłuższy czas (do jednego roku). Przed usunięciem gniazda należy uzyskać zgodę odpowiednich władz.
- Umieść kolonie mrówek drewnianych w szerokim pudełku (około 135 cm x 70 cm x 35 cm) ze ścianami pokrytymi żywicą politetrafluoroetylenową (PTFE) (np. Fluon), aby zapobiec ucieczce mrówek, w temperaturze 21°C, w 12-godzinnym cyklu światła: 12-godzinnego ciemnego cyklu.
- Podaj mrówkom sacharozę (333 g/l) i wodę za pomocą dozowników wody. Aby dieta mrówek była bogata w białko, karm kolonię mrożonymi świerszczami 2 razy w tygodniu. Codziennie spryskuj gniazdo wodą, aby było wilgotne.
- Aby poprawić warunki sanitarne kolonii, w razie potrzeby dodaj żywicę sosnową; żywica sosnowa zmniejsza pasożytnictwo w koloniach mrówek leśnych17. Umieść mały pojemnik (o średnicy około 15 cm i głębokości 5 cm) wewnątrz gniazda, aby mrówki mogły złożyć w nim martwych członków kolonii.
- Trzymaj mrówki w wyżej wymienionych warunkach przez co najmniej 2 tygodnie po zebraniu przed przystąpieniem do jakichkolwiek eksperymentów. Usuń sacharozę z gniazda, aby zagłodzić mrówki 2 dni przed eksperymentami, poprawiając w ten sposób ich motywację.
2. Wybór i okiełznanie mrówek
Uwaga: Do okiełznania mrówek potrzebny jest specjalnie wykonany uchwyt. Można go zbudować z modeliny i kartonu z wyciętym otworem przymocowanym do niego poziomo. Górna powierzchnia tektury powinna być częściowo pokryta woskiem, co pozwoli na przymocowanie szpilek do owadów podczas mocowania. Ostrożne obchodzenie się z nim jest konieczne na każdym etapie tego protokołu (w tym konserwacji, transportu i eksperymentów), ale w szczególności podczas zaprzęgania mrówek, aby uniknąć narażania ich na wysoki poziom stresu przed treningiem.
- Aby wybrać mrówki, które są zmotywowane do jedzenia, umieść szkiełko z kroplą sacharozy (200 g/l) w małym pudełku (około 14 cm x 8 cm x 5 cm) ze ściankami pokrytymi żywicą PTF, aby zapobiec ucieczce. Nie wybieraj mrówek, które niosą drewno lub martwe mrówki z gniazda. Zamiast tego weź mrówki, które pełzają po ścianach gniazda, ponieważ są one bardziej prawdopodobne, że będą to zbieracze próbujący opuścić gniazdo w poszukiwaniu pożywienia.
- Umieść każdą mrówkę w pudełku i poczekaj, aby zobaczyć, czy żywi się kroplą sacharozy. Jeśli tak się stanie, natychmiast przenieś go do innego pustego pudełka, aby zapobiec nasyceniu.
- Przenieś każdą mrówkę do osobnej probówki. Umieść każdą probówkę w zamrażarce na 1-2 minuty lub w pokruszonym lodzie na maksymalnie 5 minut, aby unieruchomić mrówkę.
- Umieść unieruchomioną mrówkę w uchwycie, przez nacięcie w kartonie, przy stawie między jej głową a klatką piersiową. Upewnij się, że czułki pozostają z boku głowy, używając szpilek do owadów osadzonych w warstwie wosku na wierzchu kartonu.
- Użyj specjalnie wykonanego elementu grzejnego, aby woskować końcówkę szpilki do owada do głowy mrówki, równolegle do kartonu. Podczas tej procedury nie dotykaj anten drutem elementu grzejnego, aby uniknąć ich uszkodzenia.
- Po wyschnięciu wosku usuń szpilki owadów przytrzymujące czułki i ostrożnie wyjmij mrówkę z uchwytu.
- Zamocuj szpilkę do owadów przytrzymującą mrówkę w cylindrze z plasteliny i zamocuj pod nią wykonany na zamówienie plastikowy uchwyt, upewniając się, że mrówka utrzymuje typową postawę stojącą i że całe ciało może się swobodnie poruszać z wyjątkiem głowy.
- Trzymaj zaprzęgnięte mrówki w ciemności przez co najmniej 2 godziny przed treningiem.
3. Szkolenia i testy
- Ustawienie, bodziec warunkowy i bodziec bezwarunkowy
- Przeprowadź eksperymenty w białym akrylowym pudełku (50 x 50 x 50 cm), otwartym z przodu, aby umożliwić dostęp eksperymentatorowi. Nagraj zachowanie mrówki za pomocą kamery.
- Umieść aparat z obiektywem makro bezpośrednio nad mrówką, przez otwór w górnej powierzchni pudełka.
- Aby zredukować wszelkie zewnętrzne wskazówki wizualne, utrzymuj pomieszczenie w ciemności, z wyjątkiem źródła światła skierowanego bezpośrednio na górną część akrylowego pudełka (dwie lampy o mocy 26 W).
- Użyj jako wizualnej wskazówki (CS) jasnoniebieskiego (widmo na rysunku S1) kartonowego prostokąta (60 x 45 mm) przymocowanego w środku do igły, połączonego ze strzykawką (2 ml), za pomocą której US (sacharoza 200 g/L) jest ręcznie dostarczana do mrówki (Rysunek 1A i 1B).
Uwaga: Roztwór sacharozy można przygotować z dowolnym białym cukrem, pod warunkiem, że po rozpuszczeniu w wodzie nie ma koloru i zapachu. - Prowadź dwa rodzaje treningu równolegle, sparowane i niesparowane (patrz wyjaśnienie poniżej), w losowej kolejności.
Uwaga: W tym badaniu nie zwróciliśmy uwagi na naturę wskazówki wizualnej. Pod uwagę brany był tylko związek między wskazówką a nagrodą. Kolor i kształt nie były testowane i jest prawdopodobne, że CS z innymi funkcjami dałby podobne wyniki. Niemniej jednak wybrano kolor niebieski, ponieważ wykazano, że mrówki z tego samego rodzaju są wrażliwe na długości fal pokrywające kolor niebieski18.
- Przeprowadź eksperymenty w białym akrylowym pudełku (50 x 50 x 50 cm), otwartym z przodu, aby umożliwić dostęp eksperymentatorowi. Nagraj zachowanie mrówki za pomocą kamery.
- Trening w parach
Uwaga: W treningu sparowanym CS i US są prezentowane w każdym badaniu, powiązane ze sobą (Rysunek 1C).- Rozpocznij nagrywanie mrówek 10 s przed prezentacją CS, aby upewnić się, że mrówki nie wykonują spontanicznie MaLER przed prezentacją. Jeśli mrówki wykonają MaLER w tym okresie, odłóż próbę na kilka sekund. Jeśli jakaś mrówka wykazuje takie zachowanie w sposób ciągły, wyklucz ją z analizy.
- Przesuwaj strzykawkę + CS przed mrówką przez ~10 s, trzymając końcówkę igły między pyskiem mrówki i maksymalnie 5 mm powyżej i z każdej strony. W tym czasie przesuń końcówkę igły jak najbliżej głowy mrówki, ale nie dotykając czułków (Rysunek 1B).
Uwaga: Ruch został uwzględniony podczas prezentacji CS, ponieważ wykazano, że odgrywa on rolę w wizualnym uczeniu się asocjacyjnym w pszczołach miodnych6. - Zastosuj nacisk, aby wypuścić pojedynczą kroplę sacharozy z końcówki strzykawki i umieść kroplę sacharozy obok czułków i aparatu gębowego, aby mrówka mogła wykryć sacharozy. Pozwól mrówce żerować przez około 5 s.
Uwaga: Ilość mrówek sacharozowych spożywanych w każdym badaniu nie była kontrolowana w tych eksperymentach. Kropla sacharozy, którą żywią się mrówki, powinna być na tyle duża, aby mogły swobodnie żerować przez około 5 sekund. - Powtórz tę procedurę 10 razy, z ITI 5 min.
Uwaga: W tych eksperymentach mrówki były zawsze zwrócone w prawo, z prawym okiem blisko otwartej strony akrylowego pudełka. Dlatego CS zawsze podchodził do mrówek z prawej strony. Chociaż nie unieważnia to uczenia się, eksperymenty te można przeprowadzić, obracając połowę mrówek w lewo, a połowę w prawo, aby uniknąć możliwego efektu lateralizacji.
- Trening bez par<br />
Uwaga: Trening ten polega na przedstawieniu mrówkom osobno CS lub USA, przy czym te dwa bodźce są w ten sposób oddzielane od siebie w czasie (Rysunek 1D).
- Rozpocznij nagrywanie mrówek 10 s przed każdą próbą.
- Przedstaw CS w taki sam sposób, jak podczas treningu w parach, ale nie podawaj sacharozy mrówce.
- Po 2,5 minuty dostarczyć US bezpośrednio do aparatu gębowego (dotykając również czułków) za pomocą strzykawki bez dołączonego CS.
- Rozpocznij od próby CS i powtórz tę procedurę 10 razy dla każdego rodzaju próby, interkalując je z ITI trwającym 2,5 minuty.
- Testowanie
Uwaga: Test powinien być przeprowadzony tylko 1x, 10 minut lub 1 godzinę po ostatniej próbie treningowej; test, w którym mrówce przedstawia się CS, ale nie USA, może spowodować wygaśnięcie utworzonej wcześniej pamięci asocjacyjnej.- Rozpocznij nagrywanie mrówek 10 s przed badaniem.
- Przedstaw CS mrówce przez około 10 sekund.
- Upewnij się, że mrówka jest nadal zmotywowana do żerowania, dostarczając sacharozę po teście.
4. Gromadzenie i analiza danych
- Rejestruj zachowanie mrówki z góry, 10 s przed każdą próbą oraz podczas prezentacji CS i US. Upewnij się, że wszystkie próby i testy są rejestrowane do analizy a posteriori.
- Korzystając z nagrań wykonanych podczas treningu i testów, oceń reakcje mrówek w ciągu 10 sekund prezentacji CS.
- Podziel reakcje mrówek podczas prezentacji CS na trzy typy zachowań, w zależności od wyprostowania i ruchu aparatu gębowego: Pełne wyprostowanie z ruchem (MES) jak podczas karmienia, Pełne wyprostowanie bez ruchu (FE) lub Częściowe wyprostowanie (PE) szczęki-wargi sromowej lub palpów szczękowych (Rysunek 2A - 2D). Na potrzeby analizy pogrupuj wszystkie typy MaLER jako pojedynczą odpowiedź (Rysunek 2E).
- Wyklucz mrówki, które nie żerowały we wszystkich próbach i testach.
Uwaga: Do analizy zaleca się test statystyczny, który bierze pod uwagę poszczególne mrówki, uwzględniając w ten sposób zmienność w obrębie osobników. Przy klasyfikowaniu odpowiedzi mrówek podczas treningu w sposób binarny (1 dla odpowiedzi pozytywnych i 0 dla braku odpowiedzi) zalecana jest regresja logistyczna z efektami mieszanymi16,19. Aby porównać odsetek mrówek odpowiadających w każdej próbie treningowej lub teście, zaleca się test G lub dokładny test Fishera, w zależności od liczby analizowanych mrówek16,20.
Wyniki
W eksperymentach z warunkowaniem klasycznym bodziec warunkowy (CS) nie może wywoływać spontanicznej reakcji u zwierząt. W przeprowadzonych przez nas badaniach tylko 3% - 4% mrówek wykonało MaLER w odpowiedzi na bodziec wzrokowy podczas pierwszej próby, przed treningiem. Mrówki poddawane treningowi parowanemu wykonywały coraz więcej MaLER w odpowiedzi na CS (Rycina 3A; regresja logistyczna, N = 51, stopnie swobody (df) = 507, z = 5,949, p < 0,01). Odsetek mrówek parowanych reagujących na CS ustabilizował się na poziomie około 50% od trzeciej próby wzwyż. Przeciwnie, mrówki nieparowane nie wykazały istotnego wzrostu liczby MaLER podczas treningu (Rycina 3B; regresja logistyczna, N = 29, df = 287, z = 0,758, p = 0,45). Występowanie MaLER w odpowiedzi na bodziec wzrokowy było istotnie wyższe podczas treningu parowanego niż nieparowanego (regresja logistyczna, N = 80, df = 796, z = -5,306, p < 0,01), co było prawdziwe dla każdej próby z wyjątkiem pierwszej (Tabela 1).
W celu zbadania ich pamięci krótkoterminowej i średnioterminowej15, mrówki poddano testom albo 10 min, albo 1 h po ostatniej próbie treningowej. W obu testach odsetek mrówek wykazujących reakcję MaLER w odpowiedzi na CS był istotnie wyższy w przypadku treningu sparowanego niż niesparowanego (Rycina 3C i 3D; Tabela 1).
Podczas treningu poszczególne mrówki wykazywały znaczną zmienność w liczbie i rodzaju prezentowanych reakcji MaLER (Rysunek 4A i 4B). Tylko 14% sparowanych mrówek reagowało w każdej próbie, poczynając od drugiej lub trzeciej, podczas gdy większość mrówek naprzemiennie reagowała w jednych próbach i nie reagowała w innych. W próbach treningowych, w których mrówki reagowały, stopień wysunięcia i poruszania częściami gębowymi był zróżnicowany. Dlatego podzieliliśmy MaLER na trzy różne typy: FEM, FE lub PE. Zazwyczaj mrówki częściej wykonywały FEM lub PE niż FE. Jednak tylko nieliczne mrówki konsekwentnie wykonywały ten sam typ reakcji; w większości przypadków mrówki wykazywały niską spójność w typie wykonywanego MaLER (Rysunek 4).

Rycina 1: Układ eksperymentalny i schemat treningu. (A) Mrówkę przytwierdzono woskiem do szpilki entomologicznej zamocowanej w cylindrze z plasteliny (pomarańczowy), a pod nią umieszczono specjalnie wykonany uchwyt, aby umożliwić naturalną postawę. Mrówkę umieszczono w białym pudełku akrylowym oświetlonym dwoma źródłami światła, bezpośrednio pod kamerą. Jako bodziec warunkowy (CS) zastosowano tekturkę (niebieski kwadrat) przymocowaną do strzykawki, która dostarcza bodziec bezwarunkowy (US) w postaci nagrody z cukru. Wstawka przedstawia powiększony widok mrówki w uchwycie. (B) Końcówkę igły strzykawki przesuwa się jak najbliżej głowy mrówki, ale bez dotykania czułków, zgodnie z przedstawionym schematem. Mrówki trenuje się za pomocą treningu (C) sparowanego lub (D) niesparowanego. Rycina została zmodyfikowana na podstawie pracy Fernandes et al.16. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 2: Odpowiedź w postaci wysunięcia szczęki i wargi u mrówek leśnych. Pojedyncze klatki z nagrań wideo pokazują ruchy aparatów gębowych mrówek podczas treningu. (A) Ten panel pokazuje brak odpowiedzi. (B) Ten panel pokazuje pełne wysunięcie (full extension, FE) szczęki i wargi, kończące się na glossie. (C) Ten panel pokazuje częściowe wysunięcie (partial extension, PE), w którym widoczny jest tylko palpus szczękowy. (D) Ten panel pokazuje częściowe wysunięcie (PE) struktur szczęki i wargi. (E) Mrówki poddane treningowi w parach (N = 51) wykonują pełne wysunięcie z ruchem (FEM; ciemnobrązowy), pełne wysunięcie FE (średniobrązowy) lub częściowe wysunięcie PE (jasnobrązowy). Rycina została zmodyfikowana na podstawie pracy Fernandes et al.16. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.

Rycina 3: Mrówki leśne tworzą pamięć asocjacyjną dla bodźca wzrokowego parowanego z nagrodą w postaci cukru. (A) Odsetek mrówek parowanych (N = 51) wykazujących reakcję MaLER w odpowiedzi na prezentację CS istotnie wzrastał w trakcie treningu. (B) Odsetek mrówek wykazujących reakcję MaLER nie wzrastał istotnie w trakcie treningu nieparowanego (N = 29). Mrówki testowano (C) 10 minut (parowane: N = 15; nieparowane: N = 15) lub (D) 1 godzinę (parowane: N = 15; nieparowane: N = 14) po ostatniej próbie treningowej. Odsetek mrówek reagujących na CS w trakcie i po treningu parowanym lub nieparowanym przedstawiono odpowiednio w kolorze brązowym lub szarym. Trzy rodzaje MaLER przedstawiono w odcieniach ciemnym (FEM), średnim (FE) i jasnym (PE). Rycina została zmodyfikowana na podstawie pracy Fernandes et al.16. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rysunek 4: Indywidualne wyniki mrówek podczas treningu. Panele te przedstawiają indywidualne wyniki (A) mrówek sparowanych oraz (B) mrówek niesparowanych. Trzy typy MaLER są reprezentowane przez ciemnobrązowy/ciemnoszary (FEM), średniobrązowy/średnioszary (FE) oraz jasnobrązowy/jasnoszary (PE) kolor. Rysunek ten został zmodyfikowany na podstawie pracy Fernandes et al.16. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Próba | N | df | G (skorygowane) | P |
| 1 | 80 | na | na | >0.1 |
| 2 | 80 | 1 | 3.86 | <0.05 |
| 3 | 80 | 1 | 8.41 | <0.01 |
| 4 | 80 | 1 | 6.63 | <0.01 |
| 5 | 80 | 1 | 8.41 | <0.01 |
| 6 | 80 | 1 | 7.5 | <0.01 |
| 7 | 80 | 1 | 10.69 | <0.01 |
| 8 | 80 | 1 | 11.76 | <0.01 |
| 9 | 80 | 1 | 17.13 | <0.01 |
| 10 | 80 | 1 | 17.13 | <0.01 |
| 10 min | 59 | 1 | 5.5 | <0.05 |
| 1 h | 59 | 1 | 4.42 | <0.05 |
Tabela 1: Porównanie odpowiedzi MaLER na CS u mrówek poddanych treningowi parowanemu i nieparowanemu, dla każdej próby i testu. liczba mrówek (N), stopnie swobody (df), G-test niezależności (G) oraz pwykazano wartości p. Pierwszą próbę przeanalizowano testem dokładnym Fishera. Tabela została zmodyfikowana na podstawie opracowania Fernandes i wsp.16.
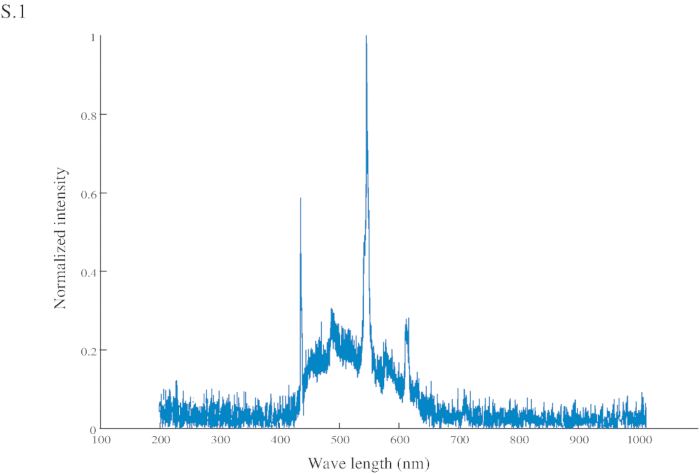
Rycina S1: Znormalizowana intensywność bodźców warunkowych (CS). Bodźce CS wykazują szczytową intensywność przy 545 nm (w zakresie zieleni) oraz kolejny szczyt przy 435 nm (w zakresie błękitu).
Dyskusja
Warunkowanie klasyczne jest jednym z najbardziej ugruntowanych paradygmatów do badania uczenia się i pamięci. Przedstawiony przez nas protokół jest adaptacją paradygmatu zaprojektowanego dla robotnic pszczół miodnych 2,3, a następnie zastosowanego w odniesieniu do kilku innych gatunków, takich jak trzmiele, muszki owocowe, które również używają PER jako odczytu do uczenia się10,11 oraz szarańcza i mrówki, które używają odpowiednio POR i MaLER12,13. Korzystając z tego protokołu, możliwe jest wytrenowanie zaprzęgniętych mrówek leśnych, aby nauczyły się związku między wskazówką wizualną a nagrodą cukrową i przeanalizowały zachowanie tej krótkotrwałej (10 min) i średniotrwałej (1 godzina)pamięci16.
W każdym eksperymencie behawioralnym należy wziąć pod uwagę krytyczne kroki, które mogą zminimalizować zmienność reakcji zwierząt. W przedstawionym tutaj protokole podjęto kilka środków mających na celu zminimalizowanie zmienności przed i w trakcie treningu. Przed rozpoczęciem eksperymentów kolonia musi być głodzona przez co najmniej dwa dni, a mrówki powinny być wybierane na podstawie ich gotowości do jedzenia z kropli cukru w pudełku. Selekcja mrówek w ten sposób ma na celu maksymalizację szansy na wyszkolenie mrówek, które są zmotywowane do żerowania. Ostrożne obchodzenie się z nim jest również ważnym czynnikiem, ponieważ może pomóc w zmniejszeniu poziomu stresu, który zakłóca naukę, jeśli jest zbyt intensywna21. W tym celu mrówki powinny być znieczulone zimnem, aby pozostały w bezruchu podczas zaprzęgnięcia, ponieważ każdy ruch (w celu ucieczki) podczas tej procedury może być źródłem stresu. Ponadto kontakt między mrówką a woskiem powinien być minimalny, unikając kontaktu czułków z gorącym woskiem lub drutem, który mógłby spowodować uszkodzenie. Chociaż obserwacje te nie zostały formalnie przeanalizowane, czułki wydawały się poruszać według określonego wzorca podczas uczenia się.
Podczas eksperymentów ważne jest również staranne dostarczanie cukru, aby utrzymać motywację mrówek. Ponownie, chociaż nie zostało to formalnie przeanalizowane, nagłe dostarczenie pożywienia wydawało się powodować dodatkowy stres u mrówek, co z kolei prowadziło do braku motywacji i uczenia się. Ponadto sacharoza dostarczana podczas treningu powinna mieć obniżone stężenie (200 g/l), aby uniknąć sytości przed zakończeniem treningu i testów. To sprawia, że MaLER może być dobrym kandydatem na bezwarunkową odpowiedź, ponieważ wraz z niską spontaniczną wydajnością tej odpowiedzi na wskazówkę wizualną, nie nasyca się również w trakcie prób. Wreszcie, w przeciwieństwie do większości klasycznych badań warunkowania 2,3,5,6,7,8,9,10,11,12,13, trenowaliśmy jedną mrówkę na raz do końca eksperymentu, pozostawiając ją na miejscu między próbami, zamiast usuwać ją, aby przetestować inną mrówkę. Szkolenie kilku mrówek razem wydawało się dawać bardziej zróżnicowane wyniki, co może być spowodowane wzrostem stresu i/lub konfliktem między informacjami wizualnymi spowodowanym całkowitą zmianą scenerii. Aby skrócić czas trwania każdego eksperymentu, zastosowaliśmy 5-minutowy ITI zamiast 10-minutowego ITI stosowanego w większości klasycznych badań kondycjonowania16. Chociaż wszystkie te względy powinny pomóc w zapewnieniu, że mrówki są zmotywowane do żerowania i uczenia się podczas treningu, nie da się uniknąć pewnej zmienności. Zalecamy wykorzystanie mrówek, które wydają się mieć normalne zachowania społeczne, apetytywne i lokomomocyjne oraz wykluczenie mrówek z analizy w momencie, gdy nie będą się odżywiać podczas próby treningowej lub testu.
Charakter CS nie był badany w tym badaniu. Chociaż użyliśmy niebieskiego bodźca wizualnego, ponieważ mrówki tego samego rodzaju są wrażliwe na te długości fal18, innych kolorów można również nauczyć się w połączeniu z nagrodą. Konieczne byłyby dalsze eksperymenty, aby w pełni scharakteryzować kolory widziane i poznawane w tej konfiguracji. Dotyczy to również różnych kształtów i rozmiarów wskazówki wizualnej. Nie sprawdziliśmy, czy rozdzielczość przestrzenna mrówek byłaby wystarczająca do rozróżnienia prezentowanego tutaj bodźca wzrokowego w odległości od oczu mrówek, w której został zaprezentowany. Chociaż złożone oczy mrówek leśnych zostały opisane pod względem wielkości i liczby fasetek22, to według naszej wiedzy ich rozdzielczość przestrzenna nie została jeszcze w pełni opisana. Zostało to jednak obliczone dla Melophorus magoti23. Podobna charakterystyka oczu mrówek leśnych lub innych badanych owadów przyczyniłaby się do jasnego zbadania cech wizualnej wskazówki, które są obserwowane i wyuczone przez zwierzęta. Co więcej, uwzględniliśmy ruch podczas prezentowania bodźca wizualnego mrówce, ponieważ wykazano, że odgrywa on rolę w kojarzeniowym uczeniu się pszczół miodnych podczas warunkowania klasycznego6. Jednak to również nie zostało przetestowane w tym badaniu, a ze względu na odmienny charakter ruchowy owadów latających w porównaniu z owadami chodzącymi, można było zaobserwować różnice między klasycznym warunkowaniem wizualnym pszczoły miodnej i mrówki.
Na koniec, nie byliśmy w stanie zbadać zachowania pamięci długotrwałej, ponieważ mrówki nie przetrwały zaprzęgnięcia przez tak długi czas po treningu. Jednak w kolejnych zestawach eksperymentów utrzymywaliśmy mrówki przy życiu i motywowaliśmy je do jedzenia i nauki, gdy zostały zaprzęgnięte i pozostawione na noc w ciemnym i wilgotnym środowisku (umieszczając na nich pudełko). Dlatego ten paradygmat może być wykorzystany do rozwikłania zagadki zapamiętywania pamięci długotrwałej mrówek leśnych, oprócz pamięci krótko- i średniotrwałej.
Dzięki tej prostej procedurze zaadaptowanej z ogólnych klasycznych paradygmatów warunkowania, możliwe jest badanie nabywania i zatrzymywania wspomnień wzrokowych u zaprzęgniętych mrówek leśnych, które były szeroko badane w paradygmatach wykorzystujących swobodnie poruszające się zwierzęta. Paradygmat ten ma potencjał, aby zostać wykorzystany do analizy neuronalnych podstaw uczenia się wizualnego w bardzo dobrze ugruntowanym modelu nawigacji owadów.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Autorzy dziękują Tomowi Collettowi i Cornelii Buehlmann za podzielenie się informacjami na temat zbierania i utrzymywania kolonii mrówek leśnych. Autorzy dziękują również Justine Crevel za skomentowanie poprzednich wersji tego artykułu oraz Norze Nevala za zmierzenie intensywności spektrum bodźca wzrokowego. Prace te zostały wsparte grantem BBSRC dla JEN (numer grantu BB/R005036/1). Wszystkie dane dotyczące tego manuskryptu zostały opublikowane w internetowej bazie danych University of Sussex Research Data Repository (10.25377/sussex.5794386).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Fluon | Blades Biological Ltd, Edenbridge, Wielka Brytania | ACS 109; ACS 112; ACS 114 | Do zapobiegania przedostawaniu się owadów |
| Crickets | Blades Biological Ltd, Edenbridge, Wielka Brytania | LZJ 217 | Podawany koloniom mrówek jako źródło białka |
| Naturalna kalafonia sosnowa/żywica | Minerals-water Ltd, Rainham, Wielka Brytania | 500g | Podawane koloniom mrówek w celach sanitarnych |
| Austerlitz Insect Pin | Fine Science Tools GmbH, Heidelberg, Niemcy | 26000-40 | Do zaprzęgania mrówek |
| Kamera szybkoobrotowa | Edmund Optics Inc., Barrington, USA | eo-13122M | Nagrania MaLER podczas treningu i testów |
| Macrolens Cannon, Surrey, Wielka Brytania | EF 100 mm f/2.8 L Macro IS USM | Nagrania MaLER podczas treningu i testowania | |
| Software | IDS Imaging Development Systems GmbH | uEye64 | Nagrania MaLER podczas treningu i testowania |
| Blue Cardboard | john smith's w Union Store, University of Sussex | JACK-PJM41358 | Stanowi bodziec warunkowy |
| Syringe Fisher | Scientific LTD, Loughborough, Wielka Brytania | BD Plastipak 300185walizka; Kod produktu.12369289 | US i CS (w załączeniu) prezentacja |
| Igła (0,5 x 16 mm) | Fisher Scientific LTD, Loughborough, Wielka Brytania | BD Microlance 300600; Kod produktu: 10442204 | Prezentacja w USA i CS (w załączeniu) |
Bibliografia
- Chittka, L., Niven, J. Are bigger brains better? Current Biology. 19 (21), R995-R1008 (2009).
- Takeda, K. Classical conditioned response in the honey bee. Journal of Insect Physiology. 6, 168-179 (1961).
- Bitterman, M. E., Menzel, R., Fietz, A., Schäfer, S. Classical conditioning of proboscis extension in honeybees (Apis mellifera). Journal of Comparative Psychology. 97 (2), 107-119 (1983).
- Menzel, R., Muller, U. Learning and memory in honeybees: from behavior to neural substrates. Annual Review of Neuroscience. 19 (1), 379-404 (1996).
- Hori, S., Takeuchi, H., Kubo, T. Associative learning and discrimination of motion cues in the harnessed honeybee Apis mellifera L. Journal of Comparative Physiology A. 193 (8), 825-833 (2007).
- Balamurali, G. S., Somanathan, H., De Ibarra, N. H. Motion cues improve the performance of harnessed bees in a colour learning task. Journal of Comparative Physiology A. 201 (5), 505-511 (2015).
- Mujagić, S., Würth, S. M., Hellbach, S., Dürr, V. Tactile conditioning and movement analysis of antennal sampling strategies in honey bees (Apis mellifera L). Journal of Visualized Experiments. (70), e50179(2012).
- Wright, G., et al. Parallel reinforcement pathways for conditioned food aversions in the honeybee. Current Biology. 20 (24), 2234-2240 (2010).
- Vergoz, V., Roussel, E., Sandoz, J. C., Giurfa, M. Aversive learning in honeybees revealed by the olfactory conditioning of the sting extension reflex. PloS One. 2 (3), e288(2007).
- Laloi, D., et al. Olfactory conditioning of the proboscis extension in bumble bees. Entomologia Experimentalis et Applicata. 90 (2), 123-129 (1999).
- Chabaud, M. A., Devaud, J. M., Pham-Delègue, M. H., Preat, T., Kaiser, L. Olfactory conditioning of proboscis activity in Drosophila melanogaster. Journal of Comparative Physiology A. 192 (12), 1335-1348 (2006).
- Simões, P., Ott, S. R., Niven, J. E. Associative olfactory learning in the desert locust, Schistocerca gregaria. Journal of Experimental Biology. 214 (15), 2495-2503 (2011).
- Guerrieri, F. J., d'Ettorre, P. Associative learning in ants: conditioning of the maxilla-labium extension response in Camponotus aethiops. Journal of Insect Physiology. 56 (1), 88-92 (2010).
- Simões, P. M., Niven, J. E., Ott, S. R. Phenotypic transformation affects associative learning in the desert locust. Current Biology. 23 (23), 2407-2412 (2013).
- Guerrieri, F. J., d'Ettorre, P., Devaud, J. M., Giurfa, M. Long-term olfactory memories are stabilised via protein synthesis in Camponotus fellah ants. Journal of Experimental Biology. 214 (19), 3300-3304 (2011).
- Fernandes, A. S. D., Buckley, C. L., Niven, J. E. Visual associative learning in wood ants. Journal of Experimental Biology. 221 (3), 173260(2018).
- Christe, P., Oppliger, A., Bancala, F., Castella, G., Chapuisat, M. Evidence for collective medication in ants. Ecology Letters. 6 (1), 19-22 (2003).
- Aksoy, V., Camlitepe, Y. Behavioural analysis of chromatic and achromatic vision in the ant Formica cunicularia (Hymenoptera: Formicidae). Vision research. 67, 28-36 (2012).
- Bates, D. M. lme4: Mixed-Effects Modeling with R. , Springer. New York, NY. (2010).
- Sokal, R. R., Rohlf, F. J. Biometry (3rd edn). , W.H. Freman and Company. New York, NY. (1995).
- Bateson, M., Desire, S., Gartside, S. E., Wright, G. A. Agitated honeybees exhibit pessimistic cognitive biases. Current Biology. 21 (12), 1070-1073 (2011).
- Perl, C. D., Niven, J. E. Differential scaling within an insect compound eye. Biology letters. 12 (3), 20160042(2016).
- Schwarz, S., Narendra, A., Zeil, J. The properties of the visual system in the Australian desert ant Melophorus bagoti. Arthropod Structure & Development. 40 (2), 128-134 (2011).
Przedruki i uprawnienia
Sprostowanie
Formal Correction: Erratum: Visual Classical Conditioning in Wood Ants
Posted by JoVE Editors on 1/01/1970. Citeable Link.
An erratum was issued for: Visual Classical Conditioning in Wood Ants. The Acknowledgments section was updated, and a supplemental figure was added.
The Acknowledgments sections was updated from:
The authors thank Tom Collett and Cornelia Buehlmann for sharing valuable information regarding collection and maintenance of wood ant colonies. The authors also thank Justine Crevel for commenting on previous versions of this article.
to:
The authors thank Tom Collett and Cornelia Buehlmann for sharing information regarding collection and maintenance of wood ant colonies. The authors also thank Justine Crevel for commenting on previous versions of this article, and Nora Nevala for measuring the spectrum intensity of the visual stimulus. This work was supported by a BBSRC grant to JEN (grant number BB/R005036/1). All the data pertaining to this manuscript are published in the University of Sussex Research Data Repository online database (10.25377/sussex.5794386).
The following supplemental figure was added to the end of the Representative Results section:
Figure S1: Normalized intensity of the conditional stimuli (CS). The CS has a peak intensity at 545 nm (in the green range) and another at 435 nm (in the blue range).
