Prezentujemy wizualny przewodnik po zachowaniach obronnych u mrówek tnących liście, z indywidualnymi klipami i towarzyszącymi im definicjami, zilustrowanymi eksperymentalnym scenariuszem infekcji. Naszym głównym celem jest pomoc innym badaczom w rozpoznawaniu kluczowych zachowań obronnych i zapewnienie wspólnego zrozumienia dla przyszłych badań w tej dziedzinie.
Artykuł metodologiczny
Wizualny przewodnik do badania obrony behawioralnej przed atakami patogenów u mrówek tnących liście
W tym artykule
Podsumowanie
Streszczenie
Skomplikowany styl życia, ewolucyjna historia zaawansowanej współpracy i ochrona przed chorobami mrówek tnących liście są dobrze zbadane. Chociaż liczne badania opisywały zachowania związane z obroną przed chorobą i związanym z tym stosowaniem chemikaliów i środków przeciwdrobnoustrojowych, nie dokonano wspólnych odniesień wizualnych. Głównym celem tego badania było nagranie krótkich klipów przedstawiających zachowania związane z obroną przed chorobą, zarówno profilaktycznie, jak i bezpośrednio skierowane do antagonisty kolonii po zakażeniu. W tym celu przeprowadziliśmy eksperyment z infekcją z udziałem podkolonii gatunku mrówek Acromyrmex echinatior i najważniejszego znanego zagrożenia chorobotwórczego dla upraw grzybów mrówek (Leucoagaricus gongylophorus), wyspecjalizowanego grzyba chorobotwórczego z rodzaju Escovopsis. Sfilmowaliśmy i porównaliśmy zakażone i niezakażone kolonie, zarówno we wczesnych, jak i bardziej zaawansowanych stadiach infekcji. Określiliśmy ilościowo kluczowe zachowania obronne w różnych terapiach i wykazaliśmy, że reakcja behawioralna na atak patogenu prawdopodobnie różni się między różnymi kastami mrówek robotnic oraz między wczesnym i późnym wykryciem zagrożenia. Na podstawie tych nagrań stworzyliśmy bibliotekę klipów behawioralnych, którym towarzyszą definicje głównych indywidualnych zachowań obronnych. Przewidujemy, że taki przewodnik może stanowić wspólny punkt odniesienia dla innych badaczy pracujących w tej dziedzinie, aby rozpoznać i zbadać te zachowania, a także zapewnić większy zakres porównywania różnych badań, aby ostatecznie pomóc lepiej zrozumieć rolę, jaką te zachowania odgrywają w obronie przed chorobą.
Wprowadzenie
Mrówki tnące liście to zaawansowane owady społeczne, tworzące jedne z najbardziej złożonych kolonii na Ziemi. Stanowią one wyewoluowaną gałąź mrówek hodujących grzyby (tribus Attini), składającą się z dwóch rodzajów: Acromyrmex oraz Atta1. Hodują one gatunek grzyba uprawnego Leucoagaricus gongylophorus (Basidiomycota: Agaricales), który służy im jako główne źródło pożywienia2,3. Mrówki dostarczają temu grzybowi świeży materiał liściowy niezbędny do wzrostu, a grzyb w zamian produkuje bogate w składniki odżywcze, spuchnięte końcówki strzępek (gongylidia), którymi żywią się mrówki i ich czerwie. Kolonie są budowane pod ziemią, uprawy grzyba utrzymywane są w zewnętrznych ogrodach4,5, a mrówki-rolnicy chronią swoją monokulturę przed potencjalnymi patogenami6,7,8,9,10,1,12. W koloniach występuje podział pracy między robotnicami o różnej wielkości (kasta) i wieku13,14,15, co obejmuje również obronę mrówek i upraw przed patogenami.
Można by oczekiwać, że kolonie mrówek tnących liście powinny być podatne na choroby. Przewiduje się, że życie grupowe ułatwia rozprzestrzenianie się chorób między spokrewnionymi robotnicami ze względu na częste interakcje i tym samym łatwiejszą transmisję16. Mrówki są podatne na entomopatogeniczne grzyby pasożytnicze, takie jak gatunki Metarhizium oraz Beauveria bassiana6. Pasożyty te są generalistami i często występują w glebie w pobliżu gniazd7,8. Uprawa grzyba jako monokultury4,5 sprawia, że jest on prawdopodobnie również podatny na choroby17,18. Może on zostać zainfekowany przez generalistyczne grzyby pasożytnicze (w tym Aspergillus niger i gatunki Trichoderma3); jednak najpoważniejszym zagrożeniem jest specjalistyczny grzyb nekrotroficzny z rodzaju Escovopsis (Ascomycota: Hypocreales)1. Poprzez wydzielanie enzymów mikolitycznych i innych związków, Escovopsis zabija uprawiany grzyb i pobiera z niego substancje odżywcze12, co może mieć fatalne konsekwencje dla kolonii mrówek11,19.
Aby przeciwdziałać zagrożeniom chorobowym, mrówki wykształciły niezwykłe mechanizmy obronne zarówno na poziomie osobniczym, jak i kolonii, łącząc kontrolę biologiczną oraz obronę behawioralną i chemiczną, które działają profilaktycznie, a w razie potrzeby w odpowiedzi na infekcję. Wspólnie mechanizmy te zapobiegają lub ograniczają wpływ infekcji wywoływanych zarówno przez patogeny ogólne, jak i wyspecjalizowane, takie jak Escovopsis. W szerokim ujęciu obejmują one unikanie kontaktu z pasożytami w środowisku20, zapobieganie przedostawaniu się pasożytów do gniazda oraz ograniczanie rozprzestrzeniania się infekcji w obrębie gniazd. Pierwsza linia obrony obejmuje substancje chemiczne z wydzielin gruczołowych3,21,2,23,24,25,26,27 służące do dezynfekcji podłoży roślinnych, które robotnice zlizują przed włączeniem ich do ogrodu grzybowego, a także autogrooming i allogrooming wykonywany przez mrówki. Podczas czyszczenia własnego ciała, szczególnie po wejściu do gniazda, robotnice mogą również nanosić na ciało kwaśne wydzieliny fekalne27. Wykazano, że ta profilaktyczna obrona jest istotna dla uniknięcia infekcji wywołanych przez patogeny6,7,8,9,10,1,12.
Jeśli początkowe mechanizmy obronne zawiodą i patogen taki jak Escovopsis zdoła wniknąć do gniazda i ogrodu grzybowego, a infekcja zostanie wykryta na wczesnym etapie, mrówki stosują pielęgnację grzyba w celu usunięcia zarodników25,28. Mrówki mogą aplikować wydzieliny z gruczołów metapleuralnych lub przenosić zarodniki do kieszonki infrabukkalnej (jamy gębowej), gdzie są one mieszane z koktajlem chemicznym zawierającym wydzieliny gruczołów metapleuralnych i wargowych26. W gruczołach tych zidentyfikowano ponad 20 związków, w tym kwasy γ-ketowe, karboksylowe i indoloctowe3. Są one aktywnie aplikowane25, wykazują właściwości antybiotyczne, fungistatyczne i grzybobójcze29 oraz mogą hamować kiełkowanie zarodników Escovopsis30. Zarodniki zgromadzone w kieszonce infrabukkalnej są później usuwane poza kolonię31,32. Większość procesów pielęgnacyjnych grzyba po wczesnym wykryciu infekcji jest wykonywana przez robotnice mniejsze28,3. Jednakże, jeśli patogen zdoła uniknąć wykrycia i rozprzestrzeni się w ogrodzie grzybowym, zarówno robotnice mniejsze, jak i większe usuwają zainfekowane części grzyba28, a usunięty materiał jest deponowany poza gniazdem31. Dodatkowo gatunki z rodzaju mrówek tnących liście Acromyrmex wykorzystują kontrolę biologiczną w postaci antybiotyków produkowanych przez symbiotyczne Actinobacteria34,35,36— utrzymywane na kutykuli mrówek37, głównie u młodych robotnic większych34,38,39,40— w celu produkcji związków zapobiegających wzrostowi grzybni Escovopsis34,38,41. Produkcja antybiotyków ta może z kolei zostać zaburzona przez związki produkowane przez Escovopsis podczas infekcji19.
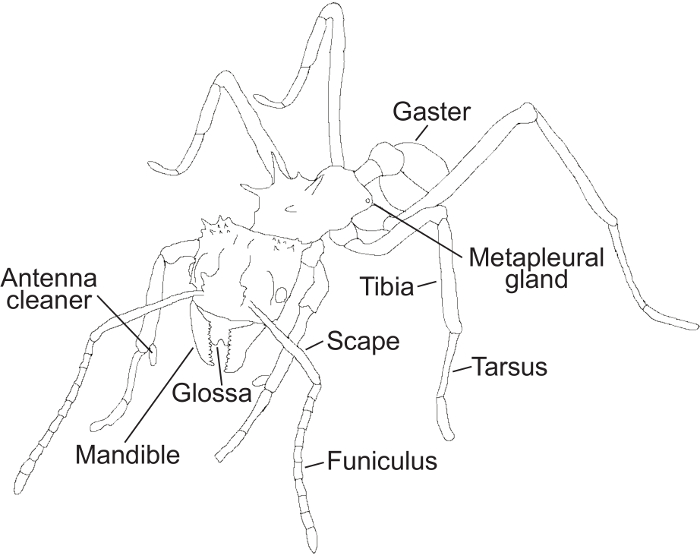
Rycina 1: Cechy morfologiczne mrówek. Schematyczny rysunek mrówki przedstawiający struktury morfologiczne wymienione w protokole. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej figury.
Mechanizmy obronne mrówek tnących liście stanowią zatem zintegrowany zespół mechanizmów behawioralnych i chemicznych, które łącznie zapewniają tym mrówkom bardzo skuteczną ochronę przed chorobami42. Zrozumienie tych mechanizmów obronnych budzi szerokie zainteresowanie i było przedmiotem intensywnych badań16,20,42,43,4. Jednakże, według naszej wiedzy, nie istnieje wizualne zestawienie zachowań obronnych, które pomogłoby w ich jednoznacznej definicji i opisie do systematycznego wykorzystania przez badaczy. Choć terminologia stosowana do opisu zachowań mrówek jest stosunkowo zestandaryzowana, nie ma zatem pewności, że te same akty behawioralne są nazywane spójnie w różnych badaniach. Naszym głównym celem jest zatem rozwiązanie tego problemu poprzez zapewnienie przejrzystości i standaryzacji za pomocą zestawienia nagrań wideo poszczególnych zachowań profilaktycznych i obronnych, którym towarzyszą odpowiednie definicje. Klipy te sfilmowaliśmy podczas eksperymentu behawioralnego, w którym obserwowaliśmy i kwantyfikowaliśmy zachowania w kontekście eksperymentalnych infekcji Escovopsis w subkoloniach Acromyrmex echinatior, których wyniki prezentujemy tutaj jako ilustracyjny przykład tego, jak niniejsze zestawienie może być wykorzystywane w badaniach behawioralnych.
Protokół
1. Izolacja Escovopsis
- Wyizolować szczepy Escovopsis z kolonii laboratoryjnych Acromyrmex echinatior, umieszczając fragmenty ogrodu grzybów, z usuniętymi mrówkami, na szalce Petriego z wilgotną watą na kilka dni, aż Escovopsis wykiełkuje i zarodnikuje. Przenieść zarodniki na płytki agarowe z dekstrozą ziemniaczaną (PDA, 39 g/l) i inkubować w temperaturze ok. 23°C przez około dwa tygodnie.
Uwaga: W obecnym badaniu użyto jednego szczepu. - Użyj sterylnej igły, aby wybrać dojrzałe zarodniki z tych pierwszych płytek. Zbierz wystarczającą ilość zarodników, aby pokryć końcówkę igły.
- Zaszczepić zarodniki na nowych płytkach w sterylnych warunkach i inkubować w temperaturze ~ 23 °C przez około dwa tygodnie.
- Gdy strzępki pokryją całą płytkę i wyrosną na dojrzałe brązowe zarodniki, powtórz krok 1.3, ale tym razem z zarodnikami z nowej płytki PDA.
- Powtarzaj proces, aż do uzyskania czystego zapasu Escovopsis dla każdego szczepu (brak widocznych zanieczyszczeń rosnących na powierzchni płytki lub pod nią).
2. Konfiguracja eksperymentalna
- Użyj trzech kolonii A. echinatior.
Uwaga: Tutaj użyto kolonii Ae160b, Ae322 i Ae263. - Z każdej kolonii stwórz 12 podkolonii. Stwórz sześć podkolonii do obserwacji po 0 godzinach i sześć podkolonii do obserwacji po 72 godzinach. Daje to w sumie 36 podkolonii; oznaczyć połowę podkolonii z każdej rodziny "rodzicielskiej" jako kontrolę, a drugą połowę jako "leczenie Escovopsis".
Uwaga: Podczas gdy w koloniach rodzicielskich obecność królowej wpływa na zachowanie robotnic, spodziewamy się (chociaż nie można tego zagwarantować), że podkolonie bez królowej prawdopodobnie będą zachowywać się jak kolonie z prawem królowej przez krótki okres czasu, który trwa eksperyment. - Dla każdej podkolonii użyj kwadratowego pudełka o długości: ~ 3,15 cala (8 cm), szerokości: ~ 2,17 cala (5,5 cm) i głębokości ~ 1,77 cala (4,5 cm).
Uwaga: Ważne jest, aby zapewnić mrówkom wystarczająco dużo miejsca na zewnątrz fragmentu grzyba, aby mogły żerować i wyrzucać odpady, ale jednocześnie sprawić, aby pudełko było na tyle małe, aby możliwe było filmowanie i rozpoznawanie zachowań. - Do każdej podkolonii dodaj kawałek centralnej części ogrodu grzybów (L. gongylophorus) z pierwotnej kolonii wielkości łyżeczki do herbaty (około 2,2 cm 3 i 1,2 g), kilka liści jeżyny i kawałek waty nasączonej wodą.
Uwaga: Wata zapewnia wilgoć. Nie powinien kapać wodą i nie powinien dotykać ogrodu grzybów. - W przypadku podkolonii traktowanych Escovopsis należy użyć pętli inokulacyjnej i wypełnić otwór tak, aby był pokryty zarodnikami Escovopsis. Zaszczep zarodniki, delikatnie stukając w małą, zlokalizowaną część ogrodu grzybów dziesięć do dwudziestu razy, aby zarodniki nie były zbyt skupione.
- W przypadku podkolonii używanych jako kontrole, naśladuj aplikację Escovopsis w ogrodzie grzybów za pomocą sterylnej pętli inokulacyjnej.
Uwaga: Chociaż nie zostało to zrobione w obecnym eksperymencie, inokulację sterylnego proszku (takiego jak grafit lub talk w proszku) można przeprowadzić na tym etapie, aby odróżnić infekcję patogenem od czynnika obojętnego. - W przypadku obserwacji trwających 72 godziny pozostaw połowę podkolonii (zarówno kontrolnych, jak i zainfekowanych) na 72 godziny po wprowadzeniu Escovopsis przed dodaniem mrówek lub rozpoczęciem nagrywania wideo.
Uwaga: Odczekanie 72 godzin pod nieobecność mrówek zwiększa prawdopodobieństwo wykiełkowania zarodników Escovopsis (niepublikowane dane in vitro); Chociaż zwiększa to również ryzyko innych infekcji (na przykład spowodowanych grzybem już obecnym w ogrodzie grzybów), ten okres jest preferowany, aby to leczenie reprezentowało wczesny etap ustalonej infekcji. - W przypadku obserwacji trwających 0 godzin, bezpośrednio po kroku 2.6 i około 30 minut przed rejestracją, do każdej skrzynki dodać jednocześnie dwa czerwie, cztery małe robotnice i cztery większe robotnice z kolonii rodzicielskiej.
- Użyj dwóch głównych robotnic z ogrodu, którzy są młodzi z jasnym pigmentem, z Actinobacteria pokrywającymi większość naskórka. Weź pozostałe dwa spoza ogrodu, z ciemnym pigmentem i promieniowcami pokrywającymi tylko płytki boczne szyjki macicy.
- W przypadku obserwacji trwających 72 godziny powtórzyć czynności 2,8 i 2,8,1 na 30 minut przed zapisem, tj. 71,5 godziny po inokulacji Escovopsis.
Uwaga: Podkolonie eksperymentalne są znacznie mniejsze niż zadomowione naturalne kolonie Acromyrmex. Jest to konieczne, aby dokładnie rejestrować zachowanie. Chociaż może to wpływać jakościowo na częstotliwość niektórych zachowań, skład podkolonii został wybrany tak, aby odzwierciedlić mieszankę robotnic w naturalnych koloniach, aby z większym prawdopodobieństwem jakościowo odzwierciedlić interakcje behawioralne.
3. Zachowania związane z nagrywaniem i ocenianiem wideo
- Użyj endoskopu USB podłączonego do laptopa (lub jego odpowiednika) i zapewnij wystarczającą ilość światła.
- Dla każdej podkolonii należy nagrywać wideo przez 4 godziny (zaczynając od 0 godziny lub 72 godzin po zakażeniu).
- Po nagraniu 36 podkolonii przejrzyj łącznie 144 godziny materiału filmowego i oceń wszystkie interesujące zachowania dla wszystkich osobników w każdej podkolonii.
Uwaga: W obecnym przykładzie eksperymentalnym musieliśmy wykluczyć dwie podkolonie (kontrolę z kolonii Ae160b i podkolonię traktowaną z kolonii Ae322) z powodu zakażenia grzybami innymi niż Escovopsis, zmniejszając całkowitą liczbę godzin obserwacji do 136. - Za każdym razem, gdy obserwuje się zachowanie, zapisuj je jako 1 wystąpienie.
nuta: Zachowanie może trwać krótko lub długo, ale ocenia je jako > 1 tylko wtedy, gdy zostanie przerwane przez inne zachowanie lub jeśli mrówka jest pasywna przez pewien czas.
4. Zachowania
Uwaga: Definicje zachowań zostały stworzone przy użyciu kombinacji opisów z poprzednich badań23,27,28,31,45 i osobistych obserwacji. Szczegółowa ilustracja przedstawiająca ważne struktury morfologiczne używane w protokole rozpoznawania zachowań znajduje się w Rysunek 1.
- Samodzielna pielęgnacja i czyszczenie anteny (Wideo 1)
- Zwróć uwagę, czy mrówka zatrzymuje ruch nóg, aby zainicjować samodzielną pielęgnację. Sprawdź, czy anteny są przeciągnięte przez czyściki do anten na przednich nogach (Rysunek 1), struktura przypominająca zacisk znajdująca się na stawie piszczelowo-stępowym, składająca się z wycięcia skierowanego w stronę ostrogi z włosiem i grzebieniami o różnych rozmiarach45,46.
- Po wyczyszczeniu anteny obserwuj, że mrówka wyczyści nogi i czyściki do anteny, przeciągając nogi przez aparaty gębowe, usuwając cząstki i potencjalne patogeny za pomocą glossy ( Rysunek 1).
Uwaga: Samodzielna pielęgnacja może polegać na czyszczeniu anteny, a następnie środków do czyszczenia anteny (Rysunek 1), ale także na użyciu aparatów gębowych do czyszczenia nóg. Kiedy mrówka czyści nogi, najczęściej czyści wszystkie sześć nóg po kolei.
- Pielęgnacja grzybów (wideo 2)
- Zwróć uwagę, czy mrówka zatrzymuje ruchy nóg w ustalonym punkcie w ogrodzie grzybów. Zauważ, że czułki są nieruchome i równolegle skierowane w stronę grzyba, tak że kąt między scape a funiculus (Rysunek 1) wynosi około 45°, a końcówki czułków prawie stykają się ze sobą, blisko końcówek żuchwy (Rysunek 1).
- Zauważ, że górny (szczęka) i dolny (warg sromowy) aparat gębowy są otwarte, a glossa (Ryc. 1) wyłania się, aby lizać grzyba.
- Allogrooming (Wideo 3)
- Obserwuj to zachowanie, gdy jedna lub więcej mrówek zbliżyło się do innej mrówki (biorcy) lub odwrotnie. Podczas tego zachowania mrówki zatrzymują ruch i stoją blisko siebie w kontakcie fizycznym. Mrówka (mrówki) pielęgnująca może się nieznacznie poruszać, aby pokryć większy obszar ciała mrówki biorcy.
- Zauważ, że czułki aktora (aktorów) mogą być nieruchome i skierowane w określony punkt mrówki odbiorczej lub poruszać się i lekko stukać w odbiornik. Kąt między krajobrazem a funiculus (Rysunek 1) wynosi około 45°, w zależności od tego, czy są one zamocowane w określonym punkcie, czy stuknięte. Końcówki czułków aktora są zwykle blisko siebie, a końcówki żuchwy (Ryc. 1).
- Zauważ, że górny (szczęka) i dolny (warg sromowy) aparat gębowy są otwarte, a glossa (Ryc. 1) wyłania się, aby polizać mrówkę odbiorczą.
- Pielęgnacja gruczołów śródopłucnowych (wideo 4)
- Obserwuj, kiedy mrówka przestaje się poruszać, aby zainicjować pielęgnację gruczołu śródopłucnowego (Rysunek 1). Zauważ, że mrówka przechyla się na bok, aby dotrzeć do jednej z przednich nóg z tyłu, aby pocierać otwór (przewód) gruczołu śródopłucnowego (na przykład prawą przednią nogę).
Uwaga: Druga przednia noga jest jednocześnie (w tym przykładzie lewa przednia noga) lizana przez glossę (Rysunek 1). - Sprawdź, czy mrówka przechyla się na przeciwną stronę, zamienia nogami i powtarza ten sam ruch z przeciwnymi nogami. Mrówka kontynuuje przesuwanie przednich nóg do gruczołów śródopłucnowych, a następnie do glossy, stale przełączając się między nogami (Rysunek 1).
Uwaga: W tym przykładzie mrówka przekaże teraz lewą przednią nogę do gruczołu śródopłucnowego, a prawą przednią nogę do glossy (Rysunek 1). Po pielęgnacji gruczołu śródopłucnowego (Rysunek 1) mrówka często inicjuje samodzielną pielęgnację (Krok 4.1).
- Obserwuj, kiedy mrówka przestaje się poruszać, aby zainicjować pielęgnację gruczołu śródopłucnowego (Rysunek 1). Zauważ, że mrówka przechyla się na bok, aby dotrzeć do jednej z przednich nóg z tyłu, aby pocierać otwór (przewód) gruczołu śródopłucnowego (na przykład prawą przednią nogę).
- Pielenie zarodników (wideo 5)
- Obserwuj to zachowanie, gdy mrówka zatrzymuje ruchy nóg w ustalonym punkcie w ogrodzie grzybowym. Zauważ, że czułki są nieruchome i równoległe, skierowane w stronę grzyba tak, że kąt między pejzażem a funiculusem wynosi około 45°, a końcówki czułków prawie stykają się ze sobą i końcami żuchw (Ryc. 1).
- Sprawdź, czy mrówka otwiera swoje żuchwy (Rysunek 1), aby złapać widoczne zarodniki Escovopsis i oderwać je od uprawy grzyba, odrywając je. Mrówka wynosi skupisko zarodników z gniazda, podczas gdy czułki delikatnie poruszają się w celu orientacji. Anteny mogą być czyszczone za pomocą czyścików do anten (Rysunek 1; patrz Wideo 1) podczas trzymania skupiska zarodników. Mrówka upuszcza zarodniki na stos odpadów.
Uwaga: Rejestrowanie aktywności wokół hałdy odpadów nie zostało wykonane w obecnym eksperymencie, ale byłoby odpowiednim rozszerzeniem obecnego protokołu.
- Pielenie grzybów (Wideo 6)
- Obserwuj to zachowanie, gdy mrówka zatrzymuje ruchy nóg w ustalonym punkcie grzyba. Czułki są luźno skierowane w stronę części grzyba, którą mrówka próbuje usunąć, jednocześnie lekko stukając w kawałek grzyba.
- Zauważ, że mrówka używa swoich żuchw do przecinania plonu grzyba, aby oderwać określony obszar, lub do chwytania części kawałka grzyba żuchwami (Rysunek 1). Mrówka będzie jednocześnie kołysać się z boku na bok na nogach, jednocześnie odrywając kawałek grzyba.
Uwaga: Pielenie może być wykonywane przez wielu pracowników, zarówno przez nieletnich, jak i głównych. Jeśli tak, niektóre mrówki wykonują cięcie grzyba, inne wykonują ruch kołysania i ciągnięcia. Oderwana część grzyba jest wynoszona na zewnątrz gniazda i wyrzucana na stos odpadów. Rejestrowanie składowania odpadów nie zostało wykonane w obecnym eksperymencie, ale byłoby odpowiednim rozszerzeniem obecnego protokołu.
- Pielęgnacja płynów kałowych (wideo 7)
- Obserwuj to zachowanie, gdy mrówka zatrzymuje ruchy nóg w ustalonym punkcie w ogrodzie grzybowym. Mrówka zgina gaster (Rysunek 1) i kieruje się do siebie, aby nałożyć kroplę płynu kałowego na aparat gębowy.
- Zauważ, że mrówka ciągnie przednie nogi przez żuchwy (Rysunek 1), pojedynczo. Następnie mrówka przesuwa czułki przez czyściki do anten (Rysunek 1) znajdujące się na stawie piszczelowo-stępowym przednich nóg.
- Niedomykalność kropelkowa (Wideo 8)
- Obserwuj to zachowanie, gdy mrówka zatrzymuje ruchy nóg w ustalonym punkcie grzyba. Czułki są nieruchome i równoległe, skierowane w stronę grzyba tak, że kąt między pejzażem a funiculusem wynosi około 45°, a końcówki czułków prawie stykają się ze sobą i końcami żuchw (Ryc. 1).
- Obserwuj, że mrówka zwraca kroplę płynu na grzyba, od przezroczystej do jasnożółtej, a nawet brązowej, z aparatu gębowego.
Wyniki
Głównym celem niniejszego badania było stworzenie krótkich nagrań ilustrujących zachowania związane z obroną przed chorobami u mrówek tnących liście, aby opracować katalog służący jako punkt odniesienia dla przyszłych badań. Dodatkowo w badaniu wykorzystano przykład układu eksperymentalnego, w którym ilościowo określono te zachowania, aby pokazać, w jaki sposób katalog ten może być wykorzystywany w badaniach behawioralnych, których reprezentatywne wyniki podsumowujemy w niniejszym opracowaniu.
Podkolonie przygotowano do obserwacji we wczesnej fazie (0 h) oraz w późnej fazie (72 h) infekcji. Ze względu na silne infekcje grzybami innymi niż Escovopsis po 72 h, wykluczono dwie podkolonie (jedną kontrolną dla kolonii Ae160b i jedną traktowaną dla kolonii Ae32), dlatego w prezentacji wyników skupiamy się na punkcie czasowym 0 h i kładziemy mniejszy nacisk na zachowania zaobserwowane po 72 h. Po sfilmowaniu wszystkich podkolonii i ocenie zachowań obronnych stwierdzono różnice w wzorcach zachowań powiązane z czasem od infekcji oraz kontekstem, w tym różne sposoby, w jakie były one wykorzystywane przez robotnice mniejsze i większe. W przeciwieństwie do tego, autoczyszczenie (self-grooming) występowało przez cały czas zarówno w podkoloniach kontrolnych, jak i zainfekowanych. Było ono również powszechne, gdy mrówki wyszukiwały i próbowały usunąć strzępki lub zarodniki Escovopsis. Ponieważ zachowanie to było obserwowane powszechnie i często we wszystkich sytuacjach, nie dokonano jego ilościowej oceny.
Oceniliśmy wszystkie pozostałe zachowania opisane w protokole i przedstawiamy obliczone częstotliwości całkowite oraz średnie dla robotnic mniejszych i większych w obrębie subkolonii (Tabela 1). Stwierdzzono, że w grupach kontrolnych robotnice mniejsze częściej pielęgnowały uprawę grzyba niż robotnice większe (Rysunek 2a), a anegdotycznie zaobserwowano, że spędzały one więcej czasu w ogrodzie grzybowym. W koloniach zainfekowanych Escovopsis wystąpiła tendencja do zwiększonej ogólnej pielęgnacji grzyba w porównaniu z koloniami kontrolnymi, lecz nie była ona istotna statystycznie (F1,23 = 2.80, p = 0.107; Tabela 2; Rysunek 2a). W przypadku infekcji odnotowano nieistotny wzrost pielęgnacji fekalnej (F1,23 = 0.60, p = 0.45; Tabela 1), jednak nie stwierdzono różnic między robotnicami mniejszymi a większymi (Rysunek 2b). Pielęgnację fekalną obserwowano w momencie, gdy robotnice wchodziły w obręb grzyba, a nie wtedy, gdy znajdowały się na nim lub całkowicie poza nim przez dłuższy czas.
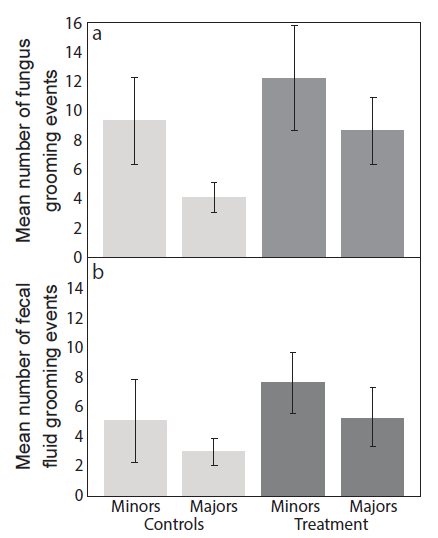
Rycina 2: Częstotliwość zdarzeń pielęgnacyjnych. Średnia liczba (± błąd standardowy (SE); n = 9) dla (a) pielęgnacja grzybni i (b) zdarzenia pielęgnacyjne związane z płynem kałowym w ciągu czterech godzin po inokulacji, z porównaniem robotnic mniejszych i większych w grupach kontrolnych oraz Escovopsis metody leczenia Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Kilka zachowań występowało niezwykle rzadko. Pielęgnację gruczołu metapleuralnego zaobserwowano jedynie czterokrotnie, przy czym wszystkie przypadki miały miejsce po 72 h; raz w grupie kontrolnej i trzykrotnie w koloniach zainfekowanych Escovopsis (Tabela 1). Prawie równie rzadko stwierdzono, że mrówki wyrzucają kropelkę cieczy na ogród grzybowy, a w kilku przypadkach poza obszar grzyba (Tabela 1). W grupach 0 h zdarzyło się to raz w podkolonii kontrolnej i dwukrotnie w koloniach zainfekowanych – we wszystkich trzech przypadkach zachowanie to wykonała robotnica większa (major). W jednym przypadku robotnica mniejsza (minor) wyrzuciła kropelkę w rogu pudełka, a raz robotnica większa zrobiła to samo na liściu jeżyny, oba zdarzenia miały miejsce w grupie traktowanej Escovopsis. W koloniach po 72 h wyrzucania kropelki na grzyba nie zaobserwowano nigdy w koloniach kontrolnych, natomiast zdarzyło się to siedem razy w koloniach zainfekowanych. Sześć z tych przypadków było dziełem robotnic większych, a trzy z nich wykonała jedna osobnicza jednostka, która dodawała kropelki poza ogród grzybowy.
Usuwanie zarodników (Rysunek 3a) oraz usuwanie grzyba (Rysunek 3b) występowały z niską częstotliwością. Choć nie stwierdzono istotnej różnicy w częstotliwości usuwania grzyba pomiędzy koloniami zainfekowanymi a kontrolnymi, zaobserwowano tendencję do wzrostu częstotliwości usuwania wraz z czasem od momentu infekcji (F1,23= 2,91, p = 0,1014; Tabela 2). Nasze obserwacje koncentrowały się na usuwaniu zarodników Escovopsis, którego częstotliwość nie zmieniła się znacząco w czasie, jednak odnotowano tendencję do wyższej częstotliwości w koloniach zainfekowanych Escovopsis niż w niezinfekowanych kontrolach (F1,23= 3,27, P = 0,0838; Tabela 2). Mniejsza liczba subkolonii zainfekowanych Escovopsis wykazywała widoczne pozostałości zarodników po okresie obserwacji w przypadku infekcji we wczesnym stadium (gdy mrówki wprowadzono 0 h po inokulacji zarodnikami), przy czym mrówki usunęły wszystkie zarodniki w prawie połowie subkolonii (4 z 9; Rysunek 3c). W infekcjach w późniejszym stadium (gdzie mrówki wprowadzono 72 h po inokulacji zarodnikami) mrówki nie były w stanie całkowicie usunąć zarodników w żadnej z subkolonii. Sumarycznie obserwacje te sugerują tendencję mrówek do przejścia z usuwania zarodników na usuwanie grzyba w miarę postępu infekcji.
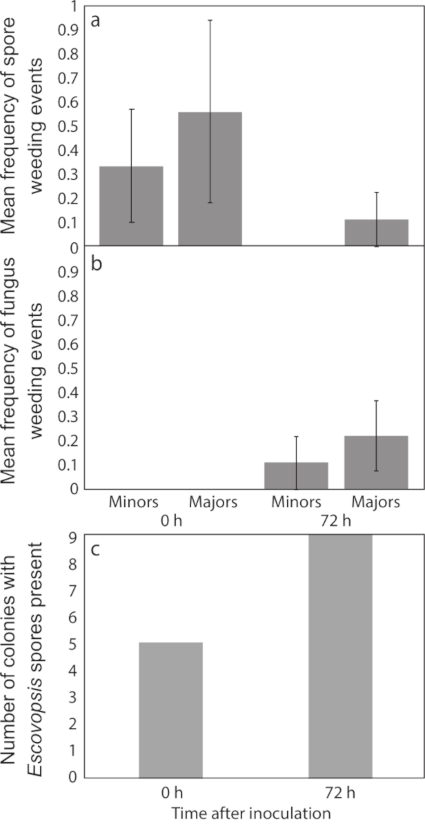
Rysunek 3: Częstotliwość odchwaszczania. Średnia częstość (± błędy standardowe (SE); n = 9) dla (a) odseiewanie zarodników (z Escovopsis zarzeczniki) i (b) usuwanie grzybów (Escovopsis lub inne grzyby) w ciągu 4-godzinnego okresu obserwacji, porównując osobniki mniejsze i większe z grup badawczych oraz (c) liczba subkolonii z widocznymi Escovopsis zarodniki w grupach badawczych pod koniec okresu obserwacji. Kliknij tutaj, aby wyświetlić powiększoną wersję tej figury.
| Robotnice mniejsze – kontrola | Robotnice mniejsze – obróbka | Robotnice większe - kontrola | Robotnice większe – traktowanie | |
| 0 h | ||||
| Pielęgnacja grzyba | 84 (9.333) | 131 (14.56) | 37 (4.111) | 66 (7.333) |
| Allogrooming | 6 (0.6667) | 14 (1.556) | 5 (0.5556) | 6 (0.6667) |
| Usuwanie zarodników | 0 | 3 | 0 | 5 (0.5556) |
| Odchwaszczanie grzybów | 0 | 0 | 0 | 0 |
| Pielęgnacja z użyciem płynu kałowego | 46 (5.111) | 69 (7.667) | 27 (3.000) | 48 (5.333) |
| Aplikacja kropelkowa | 0 | 0 | 1 (0.1111) | 2 (0.2220) |
| Pielęgnacja gruczołu metapleuralnego | 0 | 0 | 0 | 0 |
| 72 h | ||||
| Czyszczenie grzybni | 10 (1.429) | 45 (5.000) | 24 (3.429) | 38 (4.222) |
| Allogrooming | 2 (0.2857) | 10 (1.111) | 1 (0.1110) | 4 (0.4440) |
| Odzarzanie zarodników | 0 | 0 | 0 | 1 (0.1110) |
| Usuwanie grzybów | 0 | 1 (0.1110) | 0 | 2 (0.2220) |
| Pielęgnacja za pomocą płynu kałowego | 19 (2.714) | 38 (4.222) | 30 (4.286) | 30 (3.333) |
| Aplikacja kropelkowa | 0 | 1 (0.1110) | 0 | 6 (0.6667) |
| Pielęgnacja gruczołu metapleuralnego | 0 | 2 (0.2220) | 1 (0.1429) | 1 (0.1110) |
Tabela 1: Liczba zachowań w ciągu czterech godzin obserwacji w 0 i 72 h po inokulacji Escovopsis. Średnia całkowita liczba obserwacji (z średnimi częstotliwościami na osobnika w nawiasach), z porównaniem robotnic mniejszych i większych z subkolonii kontrolnych oraz zainfekowanych Escovopsis, odpowiednio (n = 9).
| Testy typu 3 dla efektów stałych | |||||||||||||||||||||
| Pielęgnacja grzybni | Allogrooming | Pielęgnacja odchodów | Usuwanie zarodników | Usuwanie grzyba | |||||||||||||||||
| Efekty | Liczba stopni swobody (DF) | Den DF | wartość F | Pr > F | Liczba DF | Den DF | wartość F | Pr > F | Liczba stopnia swobody (Num DF) | Den DF | wartość F | Pr > F | Liczba stopni swobody (DF) | Den DF | wartość F | Pr > F | Liczba DF | Den DF | wartość F | Pr > F | |
| Kolonia | 2 | 23 | 0.77 | 0.4733 | 2 | 23 | 0.52 | 0.5989 | 2 | 23 | 0.54 | 0.5903 | 2 | 23 | 0.51 | 0.6052 | 2 | 23 | 1.17 | 0.3272 | |
| Subkolonia (kolonia) | 6 | 23 | 0.93 | 0.4892 | 6 | 23 | 0.51 | 0.7978 | 6 | 23 | 0.63 | 0.7067 | 6 | 23 | 1.67 | 0.1742 | 6 | 23 | 1.53 | 0.2127 | |
| Leczenie | 1 | 23 | 2.8 | 0.1077 | 1 | 23 | 1.85 | 0.1875 | 1 | 23 | 0.6 | 0.4455 | 1 | 23 | 3.27 | 0.0838 | 1 | 23 | 1 | 0.3275 | |
| Czas | 1 | 23 | 6.53 | 0.0177 | 1 | 23 | 0.88 | 0.3574 | 1 | 23 | 0.97 | 0.3361 | 1 | 23 | 0.53 | 0.4742 | 1 | 23 | 2.91 | 0.1014 | |
Tabela 2: Wyniki statystyczne testów mieszanej analizy wariancji (ANOVA) dla poszczególnych zachowań, dla których możliwe było przeprowadzenie analiz statystycznych. Efektami stałymi były: kolonia, subkolonia (zagnieżdżona w kolonii), traktowanie oraz czas. Kliknij tutaj, aby pobrać tę tabelę.
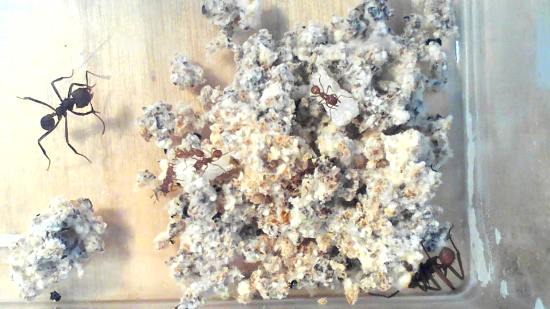
Wideo 1: Samopielęgnacja i czyszczenie czułków. Kliknij tutaj, aby obejrzeć ten film. Kliknij prawym przyciskiem myszy, aby pobrać.
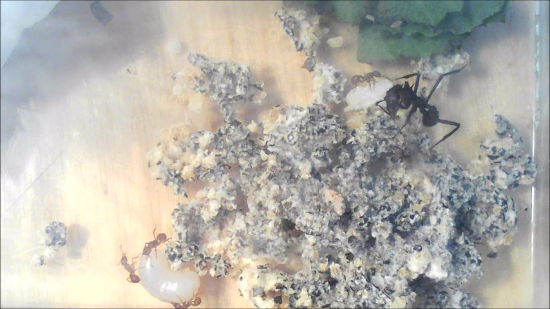
Wideo 2: Pielęgnacja grzyba. Kliknij tutaj, aby obejrzeć ten film. Kliknij prawym przyciskiem myszy, aby pobrać.
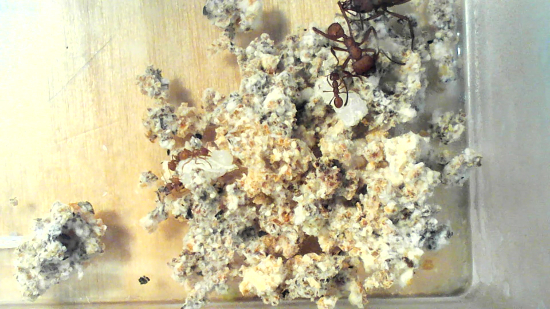
Wideo 3: Allogrooming. Kliknij tutaj, aby obejrzeć ten film. Kliknij prawym przyciskiem myszy, aby pobrać.
Wideo 4: Pielęgnacja gruczołów metapleuralnych. Aby obejrzeć ten film, kliknij tutaj. Aby go pobrać, kliknij prawym przyciskiem myszy.
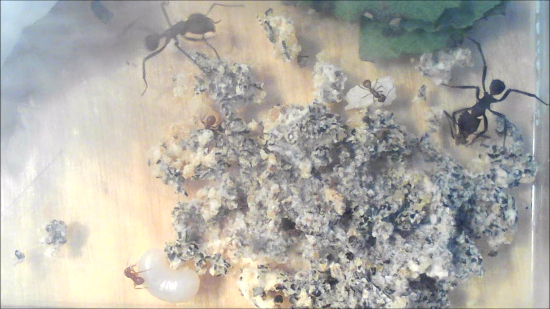
Wideo 5: Odzarniczanie zarodników. Kliknij tutaj, aby obejrzeć ten film. Kliknij prawym przyciskiem myszy, aby pobrać.
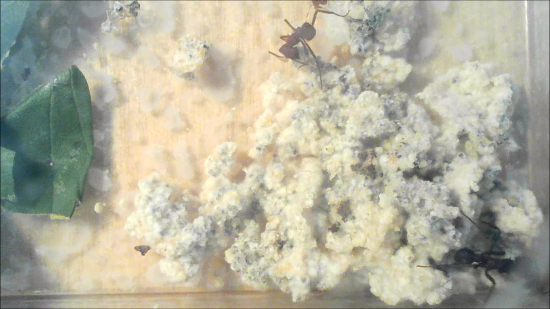
Wideo 6: Usuwanie grzyba. Kliknij tutaj, aby obejrzeć ten film. Kliknij prawym przyciskiem myszy, aby pobrać.
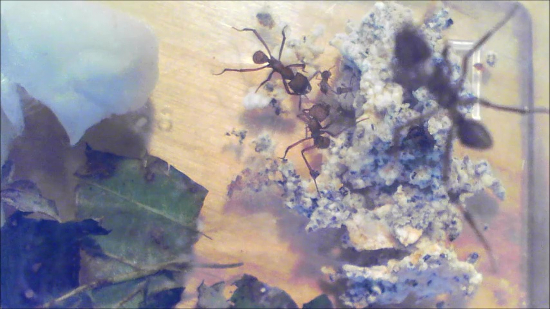
Film 7: Grooming płynu kałowego. Kliknij tutaj, aby obejrzeć ten film. Kliknij prawym przyciskiem myszy, aby pobrać.
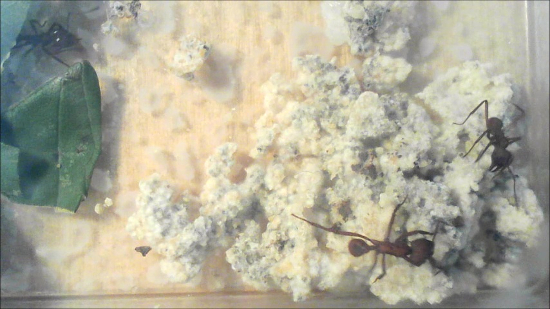
Wideo 8: Regurgitacja kropli. Kliknij tutaj, aby wyświetlić ten film. Kliknij prawym przyciskiem myszy, aby pobrać.
Dyskusja
Głównym celem tego badania było zaobserwowanie i zarejestrowanie charakterystycznych zachowań obronnych mrówek podczas ścinania liści w obecności infekcji grzybiczej Escovopsis, tworząc klipy referencyjne do wykorzystania przez szerszą społeczność naukową. Należy zauważyć, że zachowania te nie są wyłączne dla obrony kolonii przed Escovopsis, ale mogą również odgrywać rolę w obronie przed innymi zanieczyszczeniami i infekcjami 6,7,8,9,10,11,12 oraz w obronie samych mrówek42. Nasz protokół stanowi tło dla szerszych badań nad mechanizmami obronnymi u mrówek hodujących grzyby. Prawdopodobnie będzie to szczególnie przydatne: (i) dla młodych badaczy, którzy nie są zaznajomieni z tymi zachowaniami; (ii) zapewnienie spójnych definicji i obserwacji zachowań; (iii) ułatwienie porównań między badaniami i gatunkami mrówek; (iv) ponieważ pewna liczba tych zachowań może występować tak rzadko, że nawet doświadczeni badacze mogli nigdy ich nie zaobserwować; (iv) ponieważ zrozumienie i rozpoznanie zachowań w kontrolowanych warunkach w laboratorium pomaga w badaniach in situ, gdzie warunki są trudniejsze do kontrolowania.
Wyniki naszego badania behawioralnego są zgodne z wcześniejszymi pracami, które wykazały, że nieletni pracownicy pielęgnują grzyby - co jest kluczowe, jeśli infekcja zostanie wcześnie wykryta - bardziej niż główni pracownicy 25,28,32. W tym przypadku główni pracownicy zwiększyli ilość pielęgnacji grzybów po zakażeniu Escovopsis (ryc. 2a). Sugeruje to, że nieletni robotnicy są dominującymi pielęgnatorami grzybów, ale główni pracownicy mogą pomóc w zapobieganiu rozprzestrzenianiu się bardziej ugruntowanych infekcji. Większe duże robotnice mogą szybciej usuwać zarodniki, podczas gdy mniejsze robotnice mogą być bardziej odpowiednie do usuwania mniej dostępnych zarodników. Odkryliśmy również, że robotnicy z powodzeniem usunęli zarodniki w około połowie zakażonych podkolonii (czterech z dziewięciu), gdy zostały one wprowadzone w momencie infekcji, a zatem mogli wcześnie wykryć patogen (Figura 3c). Ogólnie rzecz biorąc, wskazuje to na szereg reakcji behawioralnych, w których mrówki najpierw próbują zatrzymać infekcję Escovopsis, usuwając zarodniki (i robiąc to, zanim infekcja się rozprzestrzeni), a nie usuwając części ogrodu grzybów (ryc. 3a,b). Zmienia się to z czasem, jeśli infekcja postępuje, kiedy mrówki są bardziej skłonne do usuwania części ogrodu grzybów28. Chociaż nasze próby były zbyt małe, aby były rozstrzygające i nie możemy wykluczyć, że jednoczesne infekcje indukowały zachowania związane z odchwaszczaniem, nasze dane potwierdzają ten trend, przy czym pielenie grzybów jest głównie obecne na późniejszych etapach infekcji (Rysunek 3a). Ogólnie niski poziom odchwaszczania grzybów może sugerować, że mrówki używały innych mechanizmów obronnych (np. chemikaliów), aby zahamować dalszy wzrost Escovopsis, lub że żadna z naszych eksperymentalnych podkolonii nie była zbyt poważnie zainfekowana (co sprawia, że bardziej destrukcyjne obrony są niepotrzebne).
Nasze odkrycia sugerują, że samopielęgnacja płynem kałowym jest charakterystyczna dla mrówek wchodzących do ogrodu grzybów i stosowana jako środek profilaktyczny, a nie wiąże się z infekcją. Podobne obserwacje zaobserwowano u samic założycielek, które pielęgnują się i przenoszą kropelki kału ustami na nogi, podczas wchodzenia do gniazda lub obchodzenia się z plonem27. Infekcja powinna teoretycznie zwiększyć aktywność pracowników na skraju ogrodu grzybowego, jeśli usunięty zainfekowany materiał zostanie wyniesiony i wrzucony na stosy odpadów. W związku z tym pielęgnacja płynów kałowych może również pośrednio wzrosnąć podczas infekcji, aby zminimalizować rozprzestrzenianie się choroby. Spodziewalibyśmy się odwrotnego wzorca w przypadku ciężkich infekcji, ze zmniejszonym ruchem na skraju ogrodu grzybowego, ponieważ pracownicy albo porzucają grzyba, albo stosują bardziej ekstremalne środki, takie jak obrona chemiczna.
Podczas gdy płyny kałowe mogą służyć jako ważna profilaktyczna substancja chemiczna dla danej osoby, allogrooming jest używany przez kolegów z gniazda na innych robotnicach, jeśli wykryją obce cząstki lub drobnoustroje. Istotna różnica, którą zaobserwowaliśmy między częstością (Tabela 1) pielęgnacji płynów kałowych (n = 304) a allogroomingu (n = 48) może wskazywać na różnicę w wykrywaniu patogenów. Mrówki nie są w stanie łatwo wykryć patogenów na sobie za pomocą czułków; Z drugiej strony allogrooming jest wykonywany przez współlokatorów, którzy mogą sprawdzić całe ciało mrówki i zdecydować się na pielęgnację tylko wtedy, gdy jest to konieczne. Ponieważ Escovopsis jest pasożytem ogrodu grzybowego, a nie mrówek, może to również wyjaśniać niską ilość allogroomingu.
Rzadko obserwowaliśmy pielęgnację gruczołów śródopłucnowych i to tylko w późniejszych stadiach infekcji. Gatunki mrówek hodujących grzyby z liczną pokrywą bakteryjną Pseudonocardia pielęgnują gruczoły śródopłucnowe w mniejszym stopniu niż gatunki z mniejszą pokrywą lub bez pokrycia25,47. Ponieważ A. echinatior ma obfitość symbiontu47, może to wyjaśniać niską częstotliwość pielęgnacji gruczołów. Wydzielina gruczołu śródopłucnowego jest również kosztowna do wytworzenia30 i może być przechowywana w kieszeni podpoliczkowej przez dłuższy czas, co oznacza, że potrzeba pielęgnacji gruczołu śródopłucnowego może być rzadka. Podczas pielęgnacji gruczołu śródopłucnowego mrówki jednocześnie zmieniają nogi i liżą nogę, która właśnie oczyściła gruczoł; zarodniki są w ten sposób przenoszone do kieszeni podpoliczkowej, gdzie wydzieliny gruczołowe mają kluczowe znaczenie dla hamowania potencjału Escovopsis do późniejszego kiełkowania25. Mniejsze robotnice są liczniejsze w gnieździe i mają większe gruczoły śródopłucnowe na jednostkę masy ciała30, co sugeruje, że są odpowiedzialne za większość wydzielin gruczołów śródopłucnowych. Może to również wyjaśniać, dlaczego w naszym badaniu najwyższa częstotliwość pielęgnacji grzybów występowała wśród nieletnich pracowników.
Spodziewaliśmy się zaobserwować zachowania wskazujące na aktywne stosowanie antybiotyków z bakteryjnego symbionta Pseudonocardia, powszechnie obserwowanego na naskórku pracowników Acromyrmex i znanego z odgrywania roli w obronie przed Escovopsis 36,39,40. Najbardziej prawdopodobnym wyjaśnieniem braku zaobserwowania takiego zachowania jest to, że stosowanie tych antybiotyków może być włączone do innych zachowań, takich jak samodzielna pielęgnacja, a następnie pielęgnacja grzybów i / lub pielenie, co może utrudnić zaobserwowanie go jako odrębnego zachowania.
Zaobserwowaliśmy niezwykłe zachowanie zwracanych kropelek płynu do ogrodu grzybów. Zwracanie pokarmu dla członków gniazda zostało już wcześniej opisane u mrówek tnących liście22. W naszym eksperymencie kropelki różniły się kolorem od przezroczystego do ciemnobrązowego, co sugeruje, że mogą być źródłem pożywienia dla innych mrówek i/lub dostarczać wodę. Zaobserwowaliśmy tylko dwa przypadki, w których inne mrówki piły z kropelek, więc nie możemy określić, czy kropelki przynoszą korzyści innym mrówkom, czy służą do nawodnienia grzyba, gdy wilgotność jest niska. Większość obserwacji tego zachowania miała miejsce podczas infekcji Escovopsis, które mogą sugerować rolę obronną, taką jak pobudzanie immunologiczne poprzez niedomykalność peptydów przeciwdrobnoustrojowych16,48. Nie możemy wyciągnąć jednoznacznych wniosków na ten temat, ponieważ takie zachowanie było rzadkie, ale byłby to interesujący kierunek do dalszych badań, na przykład poprzez ustalenie, czy kropelki mają właściwości przeciwdrobnoustrojowe.
Biorąc pod uwagę, że badania obserwacyjne złożonych zachowań obronnych mrówek tnących liście, w tym jakiekolwiek porównanie z infekcją grzybiczą w ogrodzie i bez niej, byłyby niezwykle trudne do przeprowadzenia w terenie, dane eksperymentalne mogą dostarczyć cennych informacji na temat tych zachowań w bardziej kontrolowanych warunkach. Chociaż obserwacje wykonane w warunkach laboratoryjnych mogą różnić się od zachowań stwierdzonych w warunkach naturalnych, narzędzia takie jak nasz katalog kluczowych zachowań obronnych muszą zostać opracowane, aby w przyszłości ulepszyć zarówno badania eksperymentalne, jak i terenowe. Podejście eksperymentalne może jednak częściowo wyjaśniać, dlaczego niektóre zachowania były niezwykle rzadkie (np. allogrooming, pielęgnacja gruczołów śródopłucnowych) w naszej demonstracji stosowania tych definicji behawioralnych. Przyszłe badania mogą zatem rozważyć ograniczenia tej eksperymentalnej konfiguracji, aby znaleźć sposoby na dokonywanie bardziej naturalnych obserwacji. Do obecnego protokołu można również włączyć dodatkowe czynniki, takie jak rozróżnienie między pracownikami przenoszącymi promieniowce (młodszymi) a starszymi pracownikami z mniej obfitą osłoną, którzy mogą inaczej reagować na zagrożenie zakażeniem Escovopsis . Istnieją kompromisy między zwiększeniem dokładności obserwacji (na przykład poprzez punktację osobników ogniskowych) lub posiadaniem większego rozmiaru podkolonii (większej liczby robotnic), a ilością czasu lub liczbą podkolonii lub osobników, które można sfilmować w danym momencie. Niemniej jednak, chociaż zestaw można rozszerzyć w przypadku większych badań behawioralnych z naciskiem na odniesienie się do celu behawioralnego, w tym przypadku skupiliśmy się na skutecznym zaprezentowaniu metody rejestrowania i definiowania określonych zachowań obronnych.
Udokumentowaliśmy zachowania, które przyczyniają się do obrony mrówek ścinających liście, a co ważniejsze, systematycznie zidentyfikowaliśmy, opisaliśmy i uchwyciliśmy zachowania obronne na filmie. Nasze reprezentatywne wyniki wzmacniają inne badania w tej dziedzinie, sugerujące, dlaczego patogenowi trudno jest skutecznie zainfekować kolonie mrówek hodujących grzyby, gdy ma do czynienia z obszernym zestawem zachowań obronnych i związanym z nimi stosowaniem związków przeciwdrobnoustrojowych. Naszym głównym celem było dostarczenie nowego narzędzia do przyszłych prac w tej dziedzinie i mamy nadzieję, że katalog behawioralny okaże się cenny dla zapewnienia konsensusu i usprawnionych definicji, obserwacji i interpretacji zachowań, aby służyć jako ważne źródło dla przyszłych badań.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Chcielibyśmy podziękować Line Vej Ugelvig i Kirsten Sheehy za przydatne dyskusje na temat mechanizmów pielęgnacji czyścików anten i ustawień filmowania. Michael Poulsen jest stypendystą Villum Kann Rasmussen Young Investigator Fellowship (VKR10101), a Tabitha Innocent – indywidualnym europejskim stypendium Marie Curie (grant IEF 627949). Chcielibyśmy również podziękować Smithsonian Tropical Research Institute za korzystanie z obiektów i wsparcie logistyczne w Panamie oraz Autoridad Nacional del Ambiente za zgodę na zbieranie i eksport mrówek do Danii.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Pudełka | plastikowe N/A | N/A | Przezroczyste. Długość: 3,15 cala (8 cm), szerokość: 2,17 cala (5,5 cm), głębokość: 1,77 cala (4,5 cm) |
| Szalki | Petriego Sarstedt | 82,1472 | 3,62x0,63 cala (9,2x1,6 cm) |
| Pętle inokulacyjne | Labsolute | 7696431 | jednorazowe 1uL. Długość: 7,67 cala (19,5 cm) |
| Kamery | DBPower | NTC50HD_8,5 mm | Endoskop USB |
| Uchwyty do kamer | N / A | N / A Stary | stojak na zacisk zlewki. |
| Laptop | HP | N/A | Ogólny laptop do zapisywania nagrań. |
| Program używany na laptopie | Windows Movie maker | N/A | |
| Kleszcze | Vermandel | 50.054 | Miękki |
| bulion dekstrozowy | Sigma-Aldrich | P6685-1KG | 24 g/L |
Bibliografia
- Hölldobler, B., Wilson, E. O. The ants. , Belknap Press of Harvard University Press. (1990).
- Weber, N. A. Gardening ants, the attines. , American Philosophical Society. (1972).
- Bot, A. N. M., Ortius-Lechner, D., Finster, K., Maile, R., Boomsma, J. J. Variable sensitivity of fungi and bacteria to compounds produced by the metapleural glands of leaf-cutting ants. Insectes Sociaux. 49 (4), 363-370 (2002).
- Poulsen, M., Boomsma, J. J. Mutualistic fungi control crop diversity in fungus-growing ants. Science. 307 (5710), 741-744 (2005).
- Mueller, U. G., Scott, J. J., Ishak, H. D., Cooper, M., Rodrigues, A. Monoculture of Leafcutter Ant Gardens. Plos One. 5 (9), (2010).
- Hughes, W. O. H., Thomsen, L., Eilenberg, J., Boomsma, J. J. Diversity of entomopathogenic fungi near leaf-cutting ant nests in a neotropical forest, with particular reference to Metarhizium anisopliae var. anisopliae. Journal of Invertebrate Pathology. 85 (1), 46-53 (2004).
- Samson, R. A., Evans, H. C., Latgé, J. -P. Atlas of entomopathogenic fungi. , Springer-Verlag; Wetenschappelijke Uitgeverij Bunge. (1988).
- Shah, P. A., Pell, J. K. Entomopathogenic fungi as biological control agents. Applied Microbiology and Biotechnology. 61 (5-6), 413-423 (2003).
- Hughes, D. P., Evans, H. C., Hywel-Jones, N., Boomsma, J. J., Armitage, S. A. O. Novel fungal disease in complex leaf-cutting ant societies. Ecological Entomology. 34 (2), 214-220 (2009).
- Andersen, S. B., et al. The Life of a Dead Ant: The Expression of an Adaptive Extended Phenotype. American Naturalist. 174 (3), 424-433 (2009).
- Currie, C. R., Mueller, U. G., Malloch, D. The agricultural pathology of ant fungus gardens. Proceedings of the National Academy of Sciences of the United States of America. 96 (14), 7998-8002 (1999).
- Reynolds, H. T., Currie, C. R. Pathogenicity of Escovopsis weberi: The parasite of the attine ant-microbe symbiosis directly consumes the ant-cultivated fungus. Mycologia. 96 (5), 955-959 (2004).
- Camargo, R. S., Forti, L. C., Lopes, J. F. S., Andrade, A. P. P., Ottati, A. L. T. Age polyethism in the leaf-cutting ant Acromyrmex subterraneus brunneus Forel, 1911 (Hym., Formicidae). Journal of Applied Entomology. 131 (2), 139-145 (2007).
- Hughes, W. O. H., Sumner, S., Van Borm, S., Boomsma, J. J. Worker caste polymorphism has a genetic basis in Acromyrmex leaf-cutting ants. Proceedings of the National Academy of Sciences of the United States of America. 100 (16), 9394-9397 (2003).
- Wilson, E. O. Caste and Division of Labor in Leaf-Cutter Ants (Hymenoptera, Formicidae, Atta). 2. The Ergonomic Optimization of Leaf Cutting. Behavioral Ecology and Sociobiology. 7 (2), 157-165 (1980).
- Schmid-Hempel, P. Parasites and Their Social Hosts. Trends in Parasitology. 33 (6), 453-462 (2017).
- Hamilton, W. D., Axelrod, R., Tanese, R. Sexual Reproduction as an Adaptation to Resist Parasites (a Review). Proceedings of the National Academy of Sciences of the United States of America. 87 (9), 3566-3573 (1990).
- Zhu, Y. Y., et al. Genetic diversity and disease control in rice. Nature. 406 (6797), 718-722 (2000).
- Heine, D., et al. Chemical warfare between leafcutter ant symbionts and a co-evolved pathogen. Nature Communications. 9, (2018).
- Cremer, S., Pull, C. D., Furst, M. A. Social Immunity: Emergence and Evolution of Colony-Level Disease Protection. Annual Review of Entomology. 63, 105-123 (2018).
- Quinlan, R. J., Cherrett, J. M. Role of Substrate Preparation in Symbiosis between Leaf-Cutting Ant Acromyrmex octospinosus (Reich) and Its Food Fungus. Ecological Entomology. 2 (2), 161-170 (1977).
- Richard, F. J., Errard, C. Hygienic behavior, liquid-foraging, and trophallaxis in the leaf-cutting ants, Acromyrmex subterraneus and Acromyrmex octospinosus. Journal of Insect Science. 9, (2009).
- Reber, A., Purcell, J., Buechel, S. D., Buri, P., Chapuisat, M. The expression and impact of antifungal grooming in ants. Journal of Evolutionary Biology. 24 (5), 954-964 (2011).
- Poulsen, M., Bot, A. N. M., Boomsma, J. J. The effect of metapleural gland secretion on the growth of a mutualistic bacterium on the cuticle of leaf-cutting ants. Naturwissenschaften. 90 (9), 406-409 (2003).
- Fernandez-Marin, H., Zimmerman, J. K., Rehner, S. A., Wcislo, W. T. Active use of the metapleural glands by ants in controlling fungal infection. Proceedings of the Royal Society B-Biological Sciences. 273 (1594), 1689-1695 (2006).
- Fernandez-Marin, H., et al. Functional role of phenylacetic acid from metapleural gland secretions in controlling fungal pathogens in evolutionarily derived leaf-cutting ants. Proceedings of the Royal Society B-Biological Sciences. 282 (1807), (2015).
- Fernandez-Marin, H., Zimmermann, J. K., Wcislo, W. T. Nest-founding in Acromyrmexoctospinosus (Hymenoptera, Formicidae, Attini): demography and putative prophylactic behaviors. Insectes Sociaux. 50 (4), 304-308 (2003).
- Currie, C. R., Stuart, A. E. Weeding and grooming of pathogens in agriculture by ants. Proceedings of the Royal Society B-Biological Sciences. 268 (1471), 1033-1039 (2001).
- Ortius-Lechner, D., Maile, R., Morgan, E. D., Boomsma, J. J. Metaplural gland secretion of the leaf-cutter ant Acromyrmex octospinosus: New compounds and their functional significance. Journal of Chemical Ecology. 26 (7), 1667-1683 (2000).
- Poulsen, M., Bot, A. N. M., Nielsen, M. G., Boomsma, J. J. Experimental evidence for the costs and hygienic significance of the antibiotic metapleural gland secretion in leaf-cutting ants. Behavioral Ecology and Sociobiology. 52 (2), 151-157 (2002).
- Bot, A. N. M., Currie, C. R., Hart, A. G., Boomsma, J. Waste management in leaf-cutting ants. Ethology Ecology & Evolution. 13 (3), 225-237 (2001).
- Little, A. E. F., Murakami, T., Mueller, U. G., Currie, C. R. Defending against parasites: fungus-growing ants combine specialized behaviours and microbial symbionts to protect their fungus gardens. Biology Letters. 2 (1), 12-16 (2006).
- Abramowski, D., Currie, C. R., Poulsen, M. Caste specialization in behavioral defenses against fungus garden parasites in Acromyrmex octospinosus leaf-cutting ants. Insectes Sociaux. 58 (1), 65-75 (2011).
- Currie, C. R., Scott, J. A., Summerbell, R. C., Malloch, D. Fungus-growing ants use antibiotic-producing bacteria to control garden parasites. Nature. 398 (6729), 701-704 (1999).
- Scheuring, I., Yu, D. W. How to assemble a beneficial microbiome in three easy steps. Ecology Letters. 15 (11), 1300-1307 (2012).
- Worsley, S. F., et al. Symbiotic partnerships and their chemical interactions in the leafcutter ants (Hymenoptera: Formicidae). Myrmecological News. 27, 59-74 (2018).
- Currie, C. R., Poulsen, M., Mendenhall, J., Boomsma, J. J., Billen, J. Coevolved crypts and exocrine glands support mutualistic bacteria in fungus-growing ants. Science. 311 (5757), 81-83 (2006).
- Poulsen, M., et al. Variation in Pseudonocardia antibiotic defence helps govern parasite-induced morbidity in Acromyrmex leaf-cutting ants. Environmental Microbiology Reports. 2 (4), 534-540 (2010).
- Poulsen, M., Cafaro, M., Boomsma, J. J., Currie, C. R. Specificity of the mutualistic association between actinomycete bacteria and two sympatric species of Acromyrmex leaf-cutting ants. Molecular Ecology. 14 (11), 3597-3604 (2005).
- Andersen, S. B., Hansen, L. H., Sapountzis, P., Sorensen, S. J., Boomsma, J. J. Specificity and stability of the Acromyrmex-Pseudonocardia symbiosis. Molecular Ecology. 22 (16), 4307-4321 (2013).
- Currie, C. R., Bot, A. N. M., Boomsma, J. J. Experimental evidence of a tripartite mutualism: bacteria protect ant fungus gardens from specialized parasites. Oikos. 101 (1), 91-102 (2003).
- Cremer, S., Armitage, S. A. O., Schmid-Hempel, P. Social immunity. Current Biology. 17 (16), R693-R702 (2007).
- Schluns, H., Crozier, R. H. Molecular and chemical immune defenses in ants (Hymenoptera: Formicidae). Myrmecological News. 12, 237-249 (2009).
- Masri, L., Cremer, S. Individual and social immunisation in insects. Trends in Immunology. 35 (10), 471-482 (2014).
- Hackmann, A., Delacave, H., Robinson, A., Labonte, D., Federle, W. Functional morphology and efficiency of the antenna cleaner in Camponotus rufifemur ants. Royal Society Open Science. 2 (7), (2015).
- How ants use 'combs' and 'brushes' to keep their antennae clean. , Available from: https://www.youtube.com/watch?time_continue=65&v=AB4HoeloqZw (2015).
- Fernandez-Marin, H., Zimmerman, J. K., Nash, D. R., Boomsma, J. J., Wcislo, W. T. Reduced biological control and enhanced chemical pest management in the evolution of fungus farming in ants. Proceedings of the Royal Society B-Biological Sciences. 276 (1665), 2263-2269 (2009).
- Konrad, M., et al. Social Transfer of Pathogenic Fungus Promotes Active Immunisation in Ant Colonies. Plos Biology. 10 (4), (2012).
Przedruki i uprawnienia
