Celem tego protokołu jest zmierzenie czasu przejścia fluorescencyjnie znakowanego pokarmu przez jelita larw danio pręgowanego w sposób wysokoprzepustowy.
Artykuł metodologiczny
Wysokoprzepustowy pomiar czasu pasażu jelitowego przy użyciu larw danio pręgowanego
W tym artykule
Podsumowanie
Streszczenie
Danio pręgowany są używane jako alternatywne organizmy modelowe do testowania bezpieczeństwa leków. Przewód pokarmowy (GI) danio pręgowanego ma genetyczne, neuronalne i farmakologiczne podobieństwa do ssaków. Nietolerancja przewodu pokarmowego podczas badań klinicznych potencjalnych leków jest powszechna i może stanowić poważne zagrożenie dla zdrowia ludzkiego. Testy toksyczności przewodu pokarmowego w przedklinicznych modelach ssaków mogą być kosztowne pod względem czasu, badanego związku i pracy. Przedstawiona tutaj metoda wysokoprzepustowa może być wykorzystana do przewidywania problemów związanych z bezpieczeństwem przewodu pokarmowego. W porównaniu z modelami ssaków, metoda ta pozwala na bardziej celową ocenę wpływu badanego związku na tranzyt przewodu pokarmowego przy użyciu niewielkich ilości związku. W tej metodzie larwy danio pręgowanego (7 dni po zapłodnieniu) są karmione pokarmem zawierającym fluorescencyjną etykietę. Po karmieniu każdą larwę ryby umieszcza się w studzience z 96-stożkową płytką denną i dozuje się jej badany związek (rozpuszczony w wodzie) lub nośnik. Gdy zachodzi pasaż jelitowy, kał gromadzi się na dnie studzienek, a szybkość, z jaką to się dzieje, jest monitorowana poprzez wielokrotny pomiar fluorescencji z dna studzienki w czasie za pomocą spektrofotometru płytkowego. Fluorescencja larw w danej grupie badanej jest uśredniana, a wartości te są przedstawiane na wykresie wraz z błędem standardowym, dla każdego czasu pomiaru, co daje krzywą reprezentującą średni tranzyt pokarmu w czasie. Wpływ na czas pasażu jelitowego określa się, porównując obszar pod krzywą dla każdej grupy leczonej z obszarem w grupie leczonej nośnikiem. W ramach tej metody wykryto zmiany w czasie pasażu przewodu pokarmowego danio pręgowanego wywołane przez leki o znanym klinicznym działaniu przewodu pokarmowego; może być stosowany do badania dziesiątek metod leczenia skutków przewodu pokarmowego dziennie. W związku z tym bezpieczniejsze związki mogą być szybko traktowane priorytetowo w testach na ssakach, co przyspiesza odkrycia i zapewnia postęp w zakresie 3R.
Wprowadzenie
Danio rerio) są używane do modelowania biologii kręgowców i przewidywania toksyczności i/lub skuteczności leków; nowe zastosowania w tych dziedzinach pojawiają się każdego roku. Zalety danio pręgowanego w porównaniu z modelami ssaków obejmują ich płodność, niewielkie rozmiary i przezroczystość poprzez organogenezę. Danio pręgowany jest używany do przewidywania ostrej toksyczności kandydata na lek, a także do oceny wpływu związku na czynność narządów, np. sercowych, ocznych, żołądkowo-jelitowych (GI)1,2. Rozwój i fizjologia danio pręgowanego są pod wieloma względami podobne do tych u ssaków3 i 80% genów związanych z chorobami człowieka ma homolog danio pręgowanego4.
Przewód pokarmowy zebry ma podobną fizjologię do przewodu pokarmowego ssaków, ale ma prostszą architekturę5. Danio pręgowany nie ma żołądka; Opuszka jelita przedniego działa jak magazyn żywności. Ekspresja genów w jelicie danio pręgowanego ma wiele podobieństw do ekspresji ssaków5. Podobnie jak u ssaków, jelitowy układ nerwowy danio pręgowanego kontroluje ruchliwość jelit, a unerwienie jelit odzwierciedla unerwienie innych kręgowców6,7. Opierając się na tych podobieństwach, badano zaburzenia czynnościowe jelita ludzkiego u danio pręgowanego, przy użyciu metod pochodzących z modeli ssaków8.
Nietolerancja przewodu pokarmowego podczas testów klinicznych kandydatów na leki jest powszechna i może stanowić poważne zagrożenie dla zdrowia ludzkiego. Przegląd programów w dużej firmie farmaceutycznej w latach 2005–2010 wykazał, że bezpieczeństwo przewodu pokarmowego jest główną przyczyną zakończenia 9% badań klinicznych9. Testy toksyczności przewodu pokarmowego w przedklinicznych modelach ssaków mogą być kosztowne pod względem czasu, związku i pracy. Predykcyjny, wysokoprzepustowy test tranzytu przewodu pokarmowego może zapewnić elastyczność w testowaniu toksyczności związków i zapewnić wpływ 3R. Nowatorska metoda oferująca taki test została przedstawiona w opisanym w niniejszym dokumencie protokole. Ten wysokoprzepustowy test może być stosowany na wczesnym etapie opracowywania leków w celu ustalenia priorytetów kandydatów i przyczynienia się do zmniejszenia liczby testów bezpieczeństwa przewodu pokarmowego u większych gatunków.
Protokół
Wszystkie opisane tutaj metody zostały zatwierdzone przez Instytucjonalny Komitet ds. Opieki i Użytkowania Zwierząt (IACUC) AbbVie.Abbvie działa na podstawie Przewodnika Narodowego Instytutu Zdrowia dotyczącego Opieki i Użytkowania Zwierząt Laboratoryjnych w obiekcie akredytowanym przez Stowarzyszenie Oceny i Akredytacji Opieki nad Zwierzętami Laboratoryjnymi (AAALAC). W badaniach tych nie zaobserwowano żadnych obaw związanych ze zdrowiem zwierząt.
1. Hoduj dorosłe danio pręgowane i zbieraj zarodki
- Trzymaj w domu i rozmnażaj dorosłe rybo danio pręgowanego przy użyciu ogólnych praktyk hodowlanych i hodowlanych. Na przykład zobacz Westerfield10.
- Przygotować pożywkę dla zarodków, rozpuszczając odwodnioną sól morską (patrz tabela materiałów) w wodzie dejonizowanej o stężeniu 60 mg/l.
- Zebrać zapłodnione jaja z dorosłej komory hodowlanej, dobrze spłukać pożywką dla zarodków i umieścić zarodki w około 50 ml pożywki dla zarodków na 10-centymetrowych szalkach Petriego (50 zarodków na szalce) w temperaturze 28 ± 1 °C w cyklu 14:10 h światło:ciemność.
- Po 24 godzinach należy usunąć zarodki, które nie przeżyły, i uzupełnić zarodkami, które przeżyły, tak aby każda szalka zawierała 50 zarodków na szalkę.
2. Trenuj larwy, aby żywiły się za pomocą niebarwionego jedzenia
- W 4 dniu po zapłodnieniu (4 dpf) nakarm larwy na każdej szalce Petriego 2 mg sproszkowanego pokarmu dla larw ryb (patrz Tabela Materiałów), posypując pokarm na powierzchni wody.
- Pozwól larwom na karmienie się przez 3–4 godziny, a następnie przenieś je na czystą (bez jedzenia) szalkę Petriego zawierającą około 50 ml świeżej pożywki dla zarodków.
- Aby pomóc w przenoszeniu jak najmniejszej ilości pokarmu, opłucz każdą larwę na szalce Petriego zawierającej około 50 ml świeżej pożywki dla zarodków przed ostatecznym przeniesieniem do nowej szalki.
- Powtórzyć karmienie i płukanie larw na 5 dpf i 6 dpf.
3. Przygotuj fluorescencyjne jedzenie na 6 dpf i nakarm larwy na 7 dpf
- Przygotuj żywność zawierającą etykietę fluorescencyjną (zwaną dalej żywnością fluorescencyjną, zgodnie z metodami Fielda i wsp.3). Krótko wymieszaj 300 μl fluorescencyjnego znacznika (patrz Tabela Materiałów), 100 μL wody dejonizowanej i 200 mg sproszkowanego pokarmu dla larw na 10-centymetrowym szkiełku zegarkowym.
- Rozprowadź powstałą pastę cienką warstwą na szkiełku zegarka. Pozostaw pastę do wyschnięcia w temperaturze pokojowej w ciemności przez >8 godziny.
- Zeskrob wysuszoną mieszaninę ze szkła zegarka, zmiażdż na proszek i przechowuj w temperaturze pokojowej w ciemności. Fluorescencyjny pokarm jest teraz gotowy do podania larwom.
- W przypadku 7 dpf należy karmić larwy fluorescencyjnym pokarmem w taki sam sposób, jak w przypadku poprzednich karmień, tj. zapewnić 2 mg fluorescencyjnego pokarmu na naczynie (patrz kroki 2.1–2.2.1).
UWAGA: Upewnij się, że żywność jest drobno zmielona na proszek. Pocieranie fluorescencyjnej żywności, która jest owinięta w papier do ważenia między kciukiem a palcem wskazującym, jest przydatną metodą zapewnienia drobno zmielonego jedzenia.
4. Przygotuj skoncentrowane roztwory dozujące badanych związków
- Rozpuścić każdy badany związek w pożywce zarodkowej do stężenia 2 razy większego od dawki docelowej. Jeśli pożądane jest zbadanie zakresu dawek, należy przygotować wiele stężonych roztworów dozujących o odpowiednich stężeniach dla pożądanych dawek.
- Przygotować wystarczającą ilość każdego stężonego roztworu dozującego, aby można było leczyć 24 larwy. Każda larwa będzie wymagała dozowania 100 μl roztworu (końcowa objętość na studzienkę wynosi 200 μl), więc dla każdej grupy leczonej potrzebne jest co najmniej 2,4 ml roztworu; 2,5 ml to odpowiednia objętość.
- Jeżeli do wstępnego rozpuszczenia badanego związku użyto rozpuszczalnika (tj. dimetylosulfotlenku dimetylu), należy przygotować odpowiednią dawkę kontrolną nośnika (tj. taką samą ilość rozpuszczalnika jak w przypadku stosowania związku, ale bez tego związku). I, tak jak to zrobiono dla każdej grupy poddanej działaniu związku, należy przygotować wystarczającą ilość roztworu nośnika, aby leczyć 24 larwy.
5. Przenieś larwy na 96-dołkową płytkę i zastosuj zabiegi
- Po tym, jak larwy będą mogły żywić się fluorescencyjnym pokarmem przez 2 godziny, użyj pipety transferowej, aby przenieść je do naczynia do płukania, tak jak miało to miejsce po karmieniu w poprzednich dniach.
- Po wypłukaniu każdej larwy należy ją pobrać wraz ze 100 μl pożywki dla zarodków i przenieść do dołka z 96-dołkową płytką wielodołkową z polistyrenu o stożkowym dnie (patrz Tabela materiałów), dozując pełne 100 μl pożywki dla zarodków do studzienki z larwą.
- Po przeniesieniu wymaganej liczby larw na płytkę 96-dołkową, dodaj 100 μl 2× skoncentrowanych roztworów dozujących do każdej studzienki.
UWAGA: Zastosowanie 12-kanałowej pipety wielokanałowej ułatwia szybkie dozowanie larw (12 na raz). Aby uniknąć przypadkowego dodania niewłaściwego leku, należy uważnie śledzić, które larwy otrzymały dany lek i pamiętać o zmianie końcówek pipet między zabiegami.
6. Zmierz początkową i późniejszą fluorescencję z każdej studni
- Po dodaniu roztworów dozujących, umieścić 96-dołkową płytkę w spektrofotometrze płytkowym zdolnym do wzbudzania i wykrywania emisji z etykiety fluorescencyjnej.
UWAGA: Dla zastosowanej żółto-zielonej etykiety (patrz Tabela materiałów), odpowiednie długości fal światła to wzbudzenie przy 505 nm i wykrywanie przy 515 nm. - Odczytać fluorescencję płytki 96-dołkowej od dołu 5 razy w bezpośrednim odstępie czasu, bez potrząsania płytką. Użyj minimalnej wartości z 5 odczytów z każdej studzienki oraz początkowej fluorescencji z dołka.
UWAGA: Powodem, dla którego za każdym razem, gdy odczytywana jest płytka, wykonuje się 5 odczytów, jest to, że larwy czasami pływają na drodze światła wzbudzenia, a pokarm w ich jelitach emituje bardzo duży sygnał, który jest niereprezentatywny dla uwolnionego kału. Wykonanie minimum z 5 odczytów może pomóc w uniknięciu stosowania sztucznie zawyżonych pomiarów z żywności nieprzetransportowanej. - Odczytywać fluorescencję płytki 96-dołkowej (tak jak to miało miejsce w przypadku początkowego odczytu) co 20 minut przez pierwsze 2 godziny po podaniu, co 30 minut przez godziny 3 i 4 po podaniu, a następnie raz na godzinę przez godziny 5, 6, 7 i 8 po podaniu.
- Należy zachować ostrożność, aby nie zakłócić (poprzez potrząsanie 96-dołkową) osiadłego kału między odczytami i inkubować larwy w temperaturze 28 ± 1 °C między odczytami.
- Inkubować larwy przez noc w temperaturze 28 ± 1 °C i odczytać fluorescencję z płytki 96-dołkowej następnego ranka, mniej więcej w tym samym czasie, w którym larwom podano dawkę dzień wcześniej. Użyj tego pomiaru jako fluorescencji po 24 godzinach po podaniu.
7. Analizuj dane
UWAGA: Tutaj obliczamy akumulację na studnię i średnie grupowe dla każdego punktu czasowego.
- Aby obliczyć akumulację na studzienkę, używając tylko minimalnych wartości z każdego z 5 odczytów, odejmij wartość początkową od wartości każdego punktu czasowego. Wykonaj to obliczenie również dla wartości początkowej (powoduje to początkową akumulację zera dla każdego dołka).
- Jeśli akumulacja w studzience w punkcie czasowym 24 godzin jest mniejsza niż 150 względnych jednostek fluorescencyjnych, należy wykluczyć tę studnię z dalszej analizy; te niskie wartości są najprawdopodobniej spowodowane niskim lub zerowym pobieraniem fluorescencyjnego pokarmu przez larwy podczas żerowania, a zatem larwy te nie są dobrymi obiektami do pomiaru czasu przejścia.
- Dla każdego punktu czasowego należy obliczyć średnią akumulację dla studzienek zawierających larwy poddane współdziałaniu substancji, a także błąd standardowy tych średnich.
- Wykreślić średnią akumulację na osi Y w funkcji czasu na osi X dla każdej grupy poddanej działaniu substancji i porównać obszary pod tymi krzywymi (AUC).
UWAGA: Terapie, które znacznie spowalniają lub przyspieszają czas pasażu, będą miały AUC znacznie mniejsze lub większe, odpowiednio, niż grupa leczona nośnikiem.
Wyniki
Ta metoda, wykorzystująca spektrofotometrię w płytkach do oceny pasażu w przewodzie pokarmowym (GI), może służyć jako wysokoprzepustowa alternatywa dla mikroskopii fluorescencyjnej, która jest metodą o niższej przepustowości służącą do oceny tej samej funkcji (Rysunek 1). Aby uzyskać dane przedstawione na Rysunku 1, u ryb traktowanych w identyczny sposób przeanalizowano pasaż w przewodzie pokarmowym za pomocą mikroskopii fluorescencyjnej (pokazano reprezentatywne obrazy) lub spektrofotometrii w 4 punktach czasowych: 0, 4, 8 i 24 h po podaniu dawki; porównanie danych z tych eksperymentów dało silnie skorelowane wyniki (regresja liniowa danych r2 = 0,95). Regresja liniowa ma ujemny nachylenie, ponieważ mikroskopia mierzy zatrzymany sygnał fluorescencji, a spektrofotometria mierzy sygnał przesunięty.
Wpływ związków o odmiennych mechanizmach działania, o dobrze udokumentowanej aktywności w obrębie przewodu pokarmowego u ludzi, można wykryć u danio pręgowanych za pomocą testu spektrofotometrycznego (Rycina 2). W porównaniu z kontrolą traktowaną nośnikiem, atropina (4.2 µM) i amitryptylina (5 µM) spowolniły pasaż w przewodzie pokarmowym, podczas gdy tegaserod (3.3 µM) i metoklopramid (33 µM) przyspieszyły czas pasażu. Erytromycyna (14 µM), od której oczekiwano przyspieszenia czasu pasażu, nie wywołała żadnego efektu w pomiarach wykonanych tą metodą. Wielkość grup traktowanych wynosiła 24 przed usunięciem danych z larw z brakiem sygnału lub sygnałem bardzo niskim. Wartość AUC dla średniego sygnału w poszczególnych punktach czasowych była porównywana między grupami traktowanymi związkami a grupami traktowanymi nośnikiem przy użyciu testu Tukey's Honestly Significant Difference w celu kontroli błędu typu 1. Efekty uznano za istotne statystycznie tylko wtedy, gdy p ≤ 0.05. Stężenia zastosowane w powyższych badaniach stanowiły maksymalne dawki tolerowane, określone w poprzednim eksperymencie i zdefiniowane jako najwyższa dawka, przy której nie zaobserwowano niepożądanych efektów w badaniu makroskopowym.
Analiza spektrofotometryczna pozwala na pomiar efektów zależnych od dawki związków chemicznych. Rycina 3 przedstawia dane wykazujące, że atropina spowalnia pasaż żołądkowo-jelitowy u larw danio-ostroleśnych w sposób zależny od dawki. Najniższa przetestowana dawka atropiny, 0,042 µM, nie wywarła istotnego wpływu, podczas gdy dwie wyższe stężenia miały każda istotny wpływ, przy czym 0,42 µM oddziaływało słabiej niż 4,2 µM.
Nowy test można ocenić poprzez badanie kontroli pozytywnych i negatywnych, czyli związków znanych odpowiednio jako aktywne i nieaktywne w badanym układzie (w tym przypadku układem docelowym jest pasaż przewodu pokarmowego ssaków). W teście spektrofotometrycznym zbadzono 18 kontroli aktywnych (pozytywnych) i 6 kontroli nieaktywnych (negatywnych). Na podstawie tych eksperymentów wykazano, że test spektrofotometryczny ma wysoką wartość predykcyjną dodatnią (90,9%), ale niską czułość (55,6%) i wartość predykcyjną ujemną (38,5%). Wartości te wynikają z danych przedstawionych w Tabeli 1. W praktyce odzwierciedlają one fakt, że jeśli czas pasażu u rybek zebrafish jest pod wpływem zastosowanej terapii, prawdopodobny jest również wpływ na pasaż u ssaków. Jednak brak wpływu na czas pasażu u rybek zebrafish nie pozwala przewidzieć efektu u ssaków.
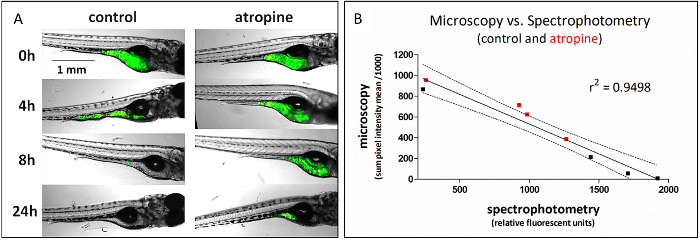
Rysunek 1: Transport fluorescencyjnego pokarmu jest wykrywany jako utrata sygnału w obrazowaniu mikroskopowym oraz odpowiadający jej przyrost sygnału w spektrofotometrii płytek wielodołkowych. (A) Reprezentatywne obrazy mikroskopowe z analizy wpływu atropiny (4.2 µM) na czas pasażu w przewodzie pokarmowym. (B) Średni sygnał wyznaczony z obrazów mikroskopowych wykazuje wysoką (ujemną) korelację z sygnałem z wydalonych odchodów (spektrofotometria) u ryb poddanych identycznemu traktowaniu. Dane z ryb traktowanych atropiną zaznaczono kolorem czerwonym. Rysunek przedrukowano za zgodą Cassar et al.11. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
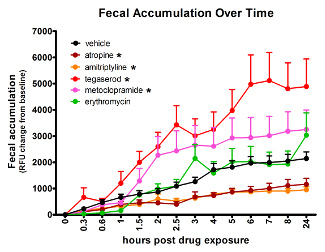
Rycina 2: Analiza akumulacji sygnału fluorescencyjnego w czasie na płytce wielodołkowej pozwala zidentyfikować zabiegi zmieniające tempo pasażu przewodu pokarmowego. Gwiazdka (*) oznacza AUC istotnie różniące się od ryb traktowanych placebo. Słupki błędów reprezentują błąd standardowy średniego sygnału dla larw w grupie badawczej w każdym punkcie czasowym. Rycina ta została ponownie wykorzystana za zgodą Cassar et al.11. Aby zobaczyć powiększoną wersję tej ryciny, kliknij tutaj.
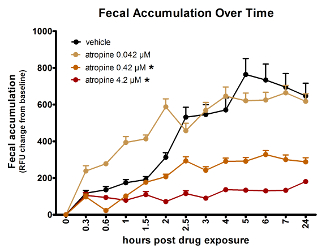
Rysunek 3: Atropina w sposób zależny od dawki spowalnia czas pasażu jelitowego u danio przebraniego, co odzwierciedla fluorescencyjna spektrofotometria akumulacji kałowej w czasie. Gwiazdka (*) oznacza AUC istotnie różną od wartości u ryb traktowanych placebo. Słupki błędów przedstawiają standardowy błąd średniej dla sygnału larw w grupie badawczej w poszczególnych punktach czasowych. Rysunek ten został powielony za zgodą Cassar et al.11. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
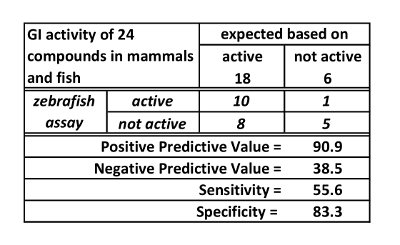
Tabela 1: Aktywność GI 24 związków u ssaków i ryb. Tabela ta została powtórzona za zgodą Cassar et al.11.
Dyskusja
Zaprezentowana tutaj nowatorska metoda spektrofotometrii do pomiaru czasu przejścia przewodu pokarmowego larw danio pręgowanego jest skutecznym testem, który może przewidywać wpływ leczenia na funkcję przewodu pokarmowego ssaków. Chociaż test ma niską czułość, ma wysoką dodatnią predykcję, co jest dopuszczalne w przypadku testów pierwszego poziomu stosowanych w celu zmniejszenia liczby potencjalnych terapii w oparciu o toksyczność12. Ta metoda jest łatwiejsza do wykonania, ma większą przepustowość i wykorzystuje mniej etapów obsługi zwierząt niż mikroskopia fluorescencyjna.
Metoda ta wiąże się z wyzwaniami technicznymi. Łapanie pojedynczych larw po podaniu fluorescencyjnego pokarmu i przeniesieniu ich do poszczególnych studzienek jest na początku trudne. Jednak przy odrobinie wprawy wykwalifikowany technik może napełnić 96-dołkową płytkę w mniej niż 15 minut. Jeśli w danym punkcie czasowym płytka zostanie przypadkowo wstrząśnięta, a kał oderwie się od dna studzienek przed odczytem, nagromadzenie będzie się wydawało zmniejszać. Można tego uniknąć, ostrożnie przesuwając płytkę(a), bez potrząsania. Z naszego doświadczenia wynika, że normalny ruch, w tym zmotoryzowana szuflada spektrofotometru płytkowego, nie zakłócił testu. Czytniki płytek wyposażone w grzałkę (tj. płytka nie musi być wkładana z powrotem do inkubatora między pomiarami) i umieszczone w pobliżu stanowiska laboratorium testowego mogły optymalizować pod kątem mniejszego prawdopodobieństwa zakłóceń, ale z naszego doświadczenia wynika, że nie było to konieczne.
Wczesne próby metody nie obejmowały karmienia w dniach poprzedzających test. Bez tych "praktycznych" żerów mniejsza liczba larw spożywała wystarczającą ilość fluorescencyjnego pokarmu w czasie dozwolonym przed zastosowaniem leku. W tych próbach różnice w obrębie grup leczonych były większe, a więcej danych nie nadawało się do użytku z powodu niskiej akumulacji sygnału lub jej braku w czasie. Nawet przy praktykowanym karmieniu niektóre larwy nie spożywają wystarczających ilości fluorescencyjnego pokarmu, wykluczenie danych z tych larw zmniejsza zmienność w obrębie grup i zwiększa zdolność do identyfikacji efektów leczenia. Rozpoczęcie od większych rozmiarów grup (tj. 24 w porównaniu z 12) pozwala na uzyskanie wystarczającej liczby larw wnoszących użyteczne dane do analizy.
Mikroskopia fluorescencyjna ujawnia, że tranzyt pokarmowy był prawie zakończony przez 24 godziny u larw leczonych atropiną (nie pokazano), jednak dane z mikropłytek z końcowego punktu czasowego odzwierciedlają niższy sygnał końcowy w grupie atropiny w porównaniu z grupą nośnika. I odwrotnie, wyższa końcowa fluorescencja mikropłytek była związana z zabiegami, które przyspieszyły czas przejścia, mimo że larwy leczone nośnikiem najwyraźniej opróżniły swój przewód pokarmowy przed ostatecznym punktem czasowym. Opierając się na losowym przypisaniu do leczenia larw karmionych pokarmem fluorescencyjnym, zakładamy równoważne spożycie pokarmu fluorescencyjnego, średnio, w różnych grupach badanych. Biorąc to pod uwagę i opierając się na wzorcach opisanych powyżej, fluorescencja z kału zmniejsza się wraz z czasem spędzonym w przewodzie pokarmowym larwy lub szybszym tranzytem w jakiś sposób dodaje fluorescencji kałowi. Rzeczywista przyczyna jest nieznana i nie została zbadana, jednak test nadal jest w stanie zmierzyć i porównać czas pasażu między grupami.
Jednym z zastosowań jest zastosowanie tej metody w wykrywaniu toksycznych skutków przewodu pokarmowego ze związków małocząsteczkowych. Inne możliwe zastosowania obejmują modelowanie chorób (np. zespołu jelita drażliwego) i odkrywanie nowych terapii dla takich chorób lub odkrywanie związków prokinetycznych. Ponadto, w połączeniu z modelami transgenicznymi, metoda ta może być wykorzystana do zbadania roli genów w prawidłowym tranzycie przewodu pokarmowego, a także w zaburzeniach tranzytu, w tym niedoborze neuronów jelitowych. Larwa danio pręgowanego oferuje platformę całego organizmu w skali zbliżonej do hodowli komórek, ale ponieważ w danio pręgowanym istnieje wiele tkanek i niezliczonych typów komórek funkcjonujących razem, za pomocą tego modelu można zadawać pytania dotyczące biologii systemowej i odpowiadać na nie.
Wraz z postępem technologicznym i nowymi zastosowaniami, skuteczność przeprowadzania testów toksyczności danio pręgowanego będzie się nadal poprawiać. Metody i testy postępowania z larwami danio pręgowanego są nadal ulepszane pod względem większej przepustowości13,14. Przedstawiona tutaj nowatorska metoda jest jednym z przykładów ulepszeń, które mogą sprawić, że badania nad danio pręgowanym będą bardziej wpływowe.
Oświadczenia
Projekt, przeprowadzenie badania i wsparcie finansowe dla tego badania zostało zapewnione przez firmę AbbVie. Firma AbbVie brała udział w interpretacji danych, recenzji i zatwierdzeniu manuskryptu. S. Cassar, X. Huang i T. Cole są pracownikami firmy AbbVie i nie mają żadnych dodatkowych konfliktów interesów, które mogliby ujawnić.
Podziękowania
Simon Cassar z carpetbones.com zaprojektował i stworzył animowaną figurę używaną do zademonstrowania procedury testu tranzytu przewodu pokarmowego w życiu.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Para hodowlana danio pręgowanego typu dzikiego | Różne źródła - na przykład ZIRC (Międzynarodowe Centrum Zasobów Zebrafish) | ZL-1 | Dorosły danio pręgowany typu dzikiego linii AB |
| 1,7 L Zbiornik hodowlany - Beach Style Design | Tecniplast | 1.7L SLOPED | Zbiornik hodowlany |
| Instant Ocean sól morska | Intant Ocean | SS15-10 | Dehydratyzowana sól |
| morska First Bites pokarm dla ryb larwalnych | Hikari | 20095 | Sproszkowany pokarm dla larw |
| ryb Żółto-zielony (505/515) Fluosfery | Invitrogen | F8827 | Etykieta fluorescencyjna |
| 96-dołkowe mikropłytki polistyrenowe z dnem V | Thermo Fisher Scientific | 249570 | Mikropłytka wielodołkowa z dnem w kształcie litery V w każdym dołku |
| Atropina | Sigma Aldrich | A0132 | |
| Amitryptylina | Sigma Aldrich | A8404 | |
| Tegaserod | Sigma Aldrich | SML1504 | |
| Metoklopramid | Sigma Aldrich | M0763 | |
| Erytromycyna | Sigma Aldrich | E5389 | |
| Czytnik mikropłytek Spectramax M2e | Urządzenia molekularne | Spectramax M2e | Spektrofotometr wielodołkowy zdolny do wzbudzenia fluorescencyjnego i wykrywania emisji. |
| Urządzenia molekularne | SoftMax Pro | Oprogramowanie SoftMax Pro | do akwizycji danych ze spektrofotometru |
Bibliografia
- Berghmans, S., et al. Zebrafish based assays for the assessment of cardiac, visual, and gut function - Potential safety screens for early drug discovery. Journal of Pharmacological and Toxicological Methods. 58 (1), 59-68 (2008).
- Field, H. A., Kelley, K. A., Martell, L., Goldstein, A. M., Serluca, F. C. Analysis of gastrointestinal physiology using a novel intestinal transit assay in zebrafish. Neurogastroenterology and Motility. 21, 304-312 (2009).
- Kanungo, J., Cuevas, E., Ali, S., Paule, M. G. Zebrafish model in drug safety assessment. Current Pharmaceutical Design. 20 (34), 5416-5429 (2014).
- Howe, K., et al. The zebrafish reference genome sequence and its relationship to the human genome. Nature. 496, 498-503 (2013).
- Shepherd, I., Eisen, J. Development of the zebrafish enteric nervous system. Methods in Cell Biology. 101, 143-160 (2011).
- Holmberg, A., Olsson, C., Holmgren, S. The effects of endogenous and exogenous nitric oxide on gut motility in zebrafish Danio rerio embryos and larvae. The Journal of Experimental Biology. 209, 2472-2479 (2006).
- Olsson, C., Holmber, A., Holmgren, S. Development of enteric and vagal innervation of the zebrafish (Danio rerio) gut. The Journal of Comparative Neurology. 508, 756-770 (2008).
- Fleming, A., Jankowski, J., Goldsmith, P. In vivo analysis of gut function and disease changes in a zebrafish larvae model of inflammatory bowel disease: A feasibility study. Inflammatory Bowel Disease. 16 (7), 1162-1172 (2010).
- Cook, D., et al. Lessons learned from the fate of AstraZeneca's drug pipeline: A five-dimensional framework. Nature Reviews Drug Discovery. 13 (6), 419-431 (2014).
- Westerfield, M. The Zebrafish Book. A Guide for the Laboratory Use of Zebrafish (Danio Rerio). , University of Oregon Press. Eugene, OR, USA. (2000).
- Cassar, S., Huang, X., Cole, T. A high-throughput method for predicting drug effects on gut transit time using larval zebrafish. Journal of Pharmacolical and Toxicological Methods. 76, 72-75 (2015).
- McKim, J. M. Building a tiered approach to in vitro predictive toxicity screening: A focus on assays with in vivo relevance. Combinatorial Chemistry and High Throughput Screening. 13 (2), 188-206 (2010).
- Bruni, G., Lakhani, P., Kokel, D. Discovering novel neuroactive drugs through high-throughput behavior-based chemical screening in the zebrafish. Frontiers in Pharmacology. 5, 153(2014).
- Mandrell, D., et al. Automated zebrafish chorion removal and single embryo placement: optimizing throughput of zebrafish developmental toxicity screens. Journal of Laboratory Automation. 17, 66-74 (2012).
Przedruki i uprawnienia
