Przedstawiamy trzy protokoły, które oceniają różne formy impulsywności u szczurów i innych małych ssaków. Procedury wyboru międzyokresowego oceniają tendencję do dyskontowania wartości opóźnionych wyników. Zróżnicowane wzmocnienie niskich wskaźników i dyskryminacja cechowo-negatywna oceniają zdolność hamowania reakcji odpowiednio z karą i bez kary za niewłaściwe reakcje.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Trzy procedury laboratoryjne do oceny różnych objawów impulsywności u szczurów
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Niniejszy artykuł zawiera przewodnik do przeprowadzania i analizy trzech protokołów opartych na warunkowaniu do oceny impulsywności u szczurów. Impulsywność jest znaczącym pojęciem, ponieważ jest związana z zaburzeniami psychicznymi u ludzi i z nieprzystosowawczym zachowaniem u zwierząt innych niż ludzie. Uważa się, że impulsywność składa się z oddzielnych czynników. Istnieją protokoły laboratoryjne opracowane w celu oceny każdego z tych czynników przy użyciu znormalizowanego zautomatyzowanego sprzętu. Dyskontowanie opóźnień wiąże się z niezdolnością do motywowania się opóźnionymi wynikami. Czynnik ten jest oceniany za pomocą protokołów wyboru międzyokresowego, które polegają na przedstawieniu osobie sytuacji wyboru obejmującej natychmiastową nagrodę i większą, ale opóźnioną nagrodę. Deficyt hamowania odpowiedzi wiąże się z niezdolnością do powstrzymania silnych reakcji. Protokoły różnicowego wzmacniania niskich wskaźników (DLR) i dyskryminacji negatywnej cech oceniają czynnik deficytu hamowania odpowiedzi impulsywności. Pierwsza z nich narzuca zmotywowanej osobie warunek, w którym większość czeka minimalny okres czasu na odpowiedź, która ma zostać nagrodzona. Ta ostatnia ocenia zdolność osobników do powstrzymania się od reakcji związanych z poszukiwaniem pożywienia, gdy prezentowany jest sygnał braku pożywienia. Celem tych protokołów jest skonstruowanie obiektywnej ilościowej miary impulsywności, która służy do dokonywania porównań międzygatunkowych, umożliwiając badania translacyjne. Do zalet tych konkretnych protokołów należy ich łatwa konfiguracja i aplikacja, co wynika ze stosunkowo niewielkiej ilości potrzebnego sprzętu oraz zautomatyzowanego charakteru tych protokołów.
Wprowadzenie
Impulsywność można zdefiniować jako wymiar behawioralny związany z nieadaptacyjnymi rezultatami1. Pomimo powszechnego stosowania tego terminu, nie istnieje uniwersalny konsensus co do jego precyzyjnej definicji. W rzeczywistości wielu autorów definiowało impulsywność, podając przykłady zachowań impulsywnych lub ich konsekwencji, zamiast określać, jakie charakterystyczne aspekty rządzą tym zjawiskiem. Przykładowo, przyjmuje się, że impulsywność wiąże się z niezdolnością do czekania, planowania, hamowania zachowań dominujących lub z niewrażliwością na odroczone rezultaty2, a także uznaje się ją za kluczowy czynnik podatności na zachowania uzależniające3. Bari i Robbins4 scharakteryzowali impulsywność jako współwystępowanie silnych impulsów, wyzwalanych przez zmienne dyspozycyjne i sytuacyjne, oraz dysfunkcyjnych procesów hamowania. Inną definicję podali Dalley i Robbins, stwierdzając, że impulsywność można uznać za predyspozycję do szybkich, często przedwczesnych działań bez odpowiedniego wglądu5. Jeszcze inna definicja impulsywności, zaproponowana przez Sosę i dos Santos6, określa ją jako tendencję behawioralną, która odchyla organizm od maksymalizacji dostępnych nagród ze względu na nabytą kontrolę nad reakcjami organizmu, sprawowaną przez bodźce przypadkowo związane z tymi nagrodami.
Ze względu na procesy behawioralne związane z impulsywnością, jej substrat neurofizjologiczny obejmuje struktury wspólne dla zachowań motywowanych, podejmowania decyzji oraz oceny nagrody. Potwierdzają to badania wykazujące, że struktury szlaku korowo-prążkowiowego (np. jądro półleżące [NAc], kora przedczołowa [PFC], ciało migdałowate i jądro ogoniaste oraz skorupa [CPU]), a także wstępujący monoaminergiczny system neurotransmiterów, uczestniczą w ekspresji zachowań impulsywnych7. Jednakże neuralny substrat impulsywności jest bardziej złożony. Choć NAc i PFC są zaangażowane w zachowania impulsywne, struktury te stanowią część bardziej złożonego systemu i składają się z podstruktur o różnych funkcjach (bardziej szczegółową dokumentację można znaleźć u Dalley i Robbinsa5).
Niezależnie od kontrowersji dotyczących jego natury i podłoża biologicznego, wiadomo, że ten wymiar behawioralny różni się między osobnikami, w którym przypadku można go uznać za cechę, oraz w obrębie jednego osobnika, w którym przypadku można go uznać za stan8. Impulsywność od dawna jest uznawana za cechę niektórych schorzeń psychiatrycznych, takich jak zespół nadpobudliwości z deficytem uwagi (ADHD), nadużywanie substancji psychoaktywnych oraz epizody maniakalne9. Wydaje się istnieć wysoki konsensus co do tego, że impulsywność składa się z wielu rozdzielnych czynników, w tym niechęci do czekania (tj. dyskontowania opóźnienia), niezdolności do powstrzymania reakcji dominujących (tj. deficytu hamowania), trudności w koncentracji na istotnych informacjach (tj. nieuwagi) oraz tendencji do angażowania się w ryzykowne sytuacje (tj. poszukiwania doznań)5,10,11. Każdy z tych czynników można ocenić za pomocą specjalnych zadań behawioralnych, które zazwyczaj przypisuje się do dwóch szerokich kategorii: wyboru i hamowania reakcji (mogą one mieć różne nazwy w zależności od taksonomii poszczególnych autorów). Istotnymi cechami takich zadań behawioralnych jest to, że mogą one być stosowane u wielu gatunków zwierząt2 oraz że umożliwiają badanie impulsywności w kontrolowanych warunkach laboratoryjnych.
Modelowanie wymiaru behawioralnego na zwierzętach laboratoryjnych wykazuje szereg zalet, w tym możliwość pomiaru konkretnych, zoperacjonalizowanych tendencji behawioralnych, co pozwala badaczom w znacznym stopniu ograniczyć zmienne zakłócające (np. wpływ przeszłych zdarzeń życiowych4) oraz wprowadzić manipulacje eksperymentalne, takie jak przewlekła podaż farmakologiczna, wykonywanie uszkodzeń neurotoksycznych lub manipulacje genetyczne. Większość tych protokołów posiada wersje analogiczne dla ludzi, co ułatwia przeprowadzanie porównań5. Co istotne, stosowanie analogów tych protokołów laboratoryjnych u ludzi jest skuteczną pomocą w diagnozowaniu zaburzeń psychiatrycznych, takich jak ADHD (zwłaszcza gdy zastosowano więcej niż jeden protokół12).
Podobnie jak każdy inny pomiar psychologiczny, protokoły laboratoryjne służące do oceny impulsywności muszą spełniać określone kryteria, aby osiągnąć cel zapewnienia wglądu w badane zjawisko. Aby protokół laboratoryjny mógł zostać uznany za odpowiedni model zachowania impulsywnego, powinien być on rzetelny oraz posiadać (przynajmniej w pewnym stopniu) trafność treściową, teoretyczną i/lub prognostyczną13. Rzetelność może oznaczać albo to, że efekt pomiaru powtórzy się, jeśli manipulacja zostanie przeprowadzona dwa lub więcej razy, albo to, że pomiar jest spójny w czasie lub w różnych sytuacjach14,15. Pierwsza z tych cech byłaby szczególnie użyteczna w badaniach eksperymentalnych, natomiast druga w badaniach korelacyjnych14. Trafność treściowa odnosi się do stopnia, w jakim mierzona cecha przypomina zjawisko, które ma być modelowane, na przykład poprzez bycie pod wpływem tych samych zmiennych. Trafność prognostyczna odnosi się do zdolności pomiaru do przewidywania przyszłych wyników w protokołach, których celem jest pomiar tego samego lub powiązanego konstruktu. Wreszcie, trafność teoretyczna odnosi się do tego, czy protokół odtwarza zachowanie, które jest teoretycznie uzasadnione w odniesieniu do procesu lub procesów, które zakłada się, że są zaangażowane w badane zjawisko. Jednakże, mimo że są to cechy wysoce pożądane, należy zachować ostrożność przy stwierdzaniu, że protokół jest trafny wyłącznie na podstawie tych kryteriów16.
Istnieje kilka protokołów służących do pomiaru impulsywności w warunkach laboratoryjnych. Niniejszy artykuł przedstawia jednak tylko trzy takie metody: wybór intertemporalny, różnicowe wzmacnianie niskich częstotliwości oraz dyskryminację cech negatywnych. Procedury intertemporalne mają na celu ocenę komponentu impulsywności związanego z dyskontowaniem opóźnienia (tj. trudnością w kontrolowaniu zachowania przez odroczone wyniki). Podstawą tego protokołu jest skonfrontowanie badanych z dwiema nagrodami różniącymi się zarówno wielkością, jak i czasem oczekiwania17. Jedna z alternatyw oferuje małą natychmiastową nagrodę (określaną jako mniejsza wcześniej, SS), a druga większą, ale odroczoną nagrodę (określaną jako większa później, LL). Proporcja odpowiedzi na alternatywę SS może być wykorzystywana jako wskaźnik impulsywności18. W procedurach różnicowego wzmacniania niskich częstotliwości ocenianym czynnikiem impulsywności jest hamowanie odpowiedzi (tj. niezdolność do powstrzymania odpowiedzi prepotentnych) w sytuacji, gdy niewłaściwa odpowiedź wiąże się z warunkowaniem kary negatywnej. Podstawą tego protokołu jest wprowadzenie badanych w sytuację, w której jedynym sposobem uzyskania nagród jest zaprzestanie reagowania19. Wreszcie, procedura dyskryminacji cech negatywnych ocenia hamowanie odpowiedzi w sytuacji, gdy nie występuje wyraźna kara za niewłaściwe reagowanie. Podstawą tego protokołu (znanego również jako Pawłowowskie hamowanie warunkowe lub procedura A+/AX-) jest ocena zdolności badanych do powstrzymywania niepotrzebnych odpowiedzi20.
Procedury te wyróżniają się na tle innych kilkoma wygodnymi cechami. Na przykład przedstawione tutaj procedury nadają się do przeprowadzania w minimalnie wyposażonych komorach warunkowania (znanych również jako „skrzynka Skinnera”). Rysunek 1 przedstawia schemat typowej komory warunkowania. Komory warunkowania są użytecznymi instrumentami badawczymi ze względu na szereg zalet. Pozwalają one na zautomatyzowany zbiór stosunkowo dużej ilości danych, maksymalizując liczbę badanych obiektów w tej samej jednostce czasu i przestrzeni21. Co więcej, badania behawioralne prowadzone w komorach warunkowania wymagają minimalnej interwencji badacza, co zmniejsza nakład czasu i pracy personelu laboratoryjnego, w przeciwieństwie do innych dostępnych metod (np. nieautomatycznych labiryntów w kształcie litery T, pudełek do przesunięcia zestawu [set-shifting boxes])21. Minimalizacja interwencji badaczy pomaga również w redukcji błędu poznawczego badacza, zmniejsza wpływ krzywej uczenia się personelu oraz ogranicza stres wywołany kontaktem z człowiekiem22. Typowe komory warunkowania są w znacznym stopniu standaryzowane pod kątem użytkowania z gryzoniami średniej wielkości, takimi jak szczury (R. norvegicus), ale mogą być stosowane do badania innych taksonów, np. torbaczy o podobnej wielkości (np. D. albiventris* i L. crassicaudata23). Dostępne są również komercyjne komory warunkowania przystosowane dla gatunków mniejszych (np. myszy [M. musculus]) oraz większych (np. naczelnych). Konfiguracja i przeprowadzanie protokołów przedstawionych w tym artykule wymagają minimalnych umiejętności programistycznych i niewielkiej liczby dostępnych urządzeń wejścia i wyjścia, w przeciwieństwie do bardziej zaawansowanych metod alternatywnych (np. zadania z seryjnym czasem reakcji z 5 wyborami [5-CSRTT]24 oraz śledzenia sygnałów [sign-tracking]25).
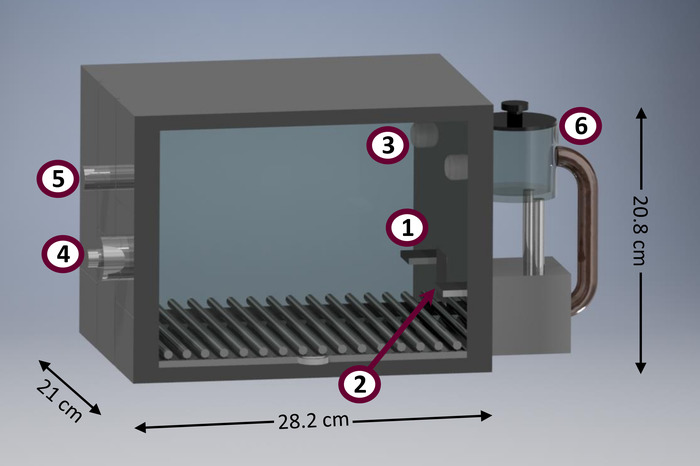
Rycina 1: Schemat prototypu komory warunkowania. Główne elementy komory warunkowania obejmują: (1) lewar lewy, (2) pojemnik na pokarm (wyposażony w boczne diody podczerwieni do wykrywania wkładania głowy), (3) światło skupione, (4) głośnik do emisji sygnału dźwiękowego (widok z tyłu), (5) światło pokojowe (widok z tyłu), (6) dozownik pokarmu. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Trzy protokoły opisane w tej sekcji wymagają wykorzystania szczurów jako obiektów badań. Odpowiednie są większość szczepów szczurów laboratoryjnych; na przykład Wistar, Long-Evans, Sprague-Dawley itp. Komisja Etyki Universidad Iberoamericana, zgodnie z Guide for the Care and Use of Laboratory Animals (Institute of Laboratory Animal Resources, Commission on Life Sciences, National Research Council, 1996), zatwierdziła opisane protokoły laboratoryjne.
1. Zakwaterowanie i przygotowanie zwierząt
- Określ liczbę szczurów, które zostaną wykorzystane. Będzie ona zależeć od kilku czynników, takich jak wybrany typ schematu badawczego, pożądana lub wymagana moc statystyczna, koszty przeprowadzenia badania oraz czas dostępny na realizację badania26.
- Oznacz ogon każdego szczura niezmywalnym markerem w celu ich identyfikacji.
- Kwateruj szczury pojedynczo lub w grupach (2-5), zapewniając im swobodny dostęp do wody.
- Ogranicz spożycie pokarmu przez szczury, aby zmotywować je do udziału w protokołach. W przypadku szczurów kwaterowanych pojedynczo wygodną metodą ograniczania pokarmu jest redukcja masy ciała do 85% masy przy swobodnym dostępie do pokarmu (stosować tylko u dorosłych szczurów)27. Utrzymuj tę docelową masę ciała, podając pokarm uzupełniający po przeprowadzeniu protokołu. W przypadku szczurów kwaterowanych grupowo zapewnij dostęp do pokarmu przez 60 min dziennie po przeprowadzeniu protokołu27.
- Umieść komory warunkowania wewnątrz osłon wygłuszających i zaciemniających.
2. Szkolenie wstępne
UWAGA: Przed rozpoczęciem któregokolwiek z tych protokołów behawioralnych szczury muszą oswoić się z komorami warunkującymi oraz granulkami pokarmowymi. Niezbędne jest również wytrenowanie reakcji, za pomocą których zwierzęta będą operować w protokole. Trzy zaprezentowane tutaj protokoły wykorzystują motywację appetywną w celu wywołania zachowań wskazujących na impulsywność, podobnie jak większość innych dostępnych zadań alternatywnych (z pewnymi wyjątkami28). Konwencjonalne dozowniki pokarmu nadają się do podawania zarówno komercyjnych oczyszczonych granulek zbożowych i cukrowych, ale w określonych okolicznościach mogą obsługiwać nawet „surowe” ziarno29.
- Habituacja
- Po wprowadzeniu reżimu ograniczenia pokarmowego umieścić szczury w komorach warunkowania na 30 min bez rozpoczynania żadnego protokołu, aby przyzwyczaić je do reakcji eksploracyjnych. Na początku sesji umieścić 60 granulek pokarmu w dozowniku, aby zniwelować neofobię pokarmową.
- Powtarzać codziennie, aż szczury będą spożywać wszystkie granulki pokarmu.
- Trening dozownika
- Po etapie habituacji umieścić szczury w komorach warunkowania podczas dwóch dodatkowych, codziennych sesji trwających 30 min, dostarczając granulkę pokarmu co 45 s. Pomaga to szczurom zidentyfikować źródło pokarmu.
- Trening naciskania dźwigni
- Stosować wyłącznie w protokołach wyboru intertemporalnego oraz DRL.
- Wprowadzić do komór jedną (dla DRL) lub dwie dźwignie (dla wyboru intertemporalnego) i rozpocząć procedurę wzmocnienia ciągłego, polegającą na dostarczaniu granulki pokarmu za każdym naciśnięciem dźwigni. Procedurę tę stosuje się równolegle z darmowym dostarczaniem granulek pokarmu co 45 s (tj. alternatywny harmonogram wzmocnień FR1-FT45 s30), analogicznie do poprzedniego etapu. Sesje mogą trwać 30 min.
- Powtarzać codziennie, aż szczury zdobędą 80 nagród przez dwa kolejne dni.
- Kształtowanie metodą przybliżeń sukcesywnych
- Stosować tę metodę w przypadku, gdy szczury nie osiągną kryterium w ciągu czterech sesji.
- Otworzyć izolującą obudowę komory warunkowania i obserwować zachowanie szczurów. Dostarczać granulkę pokarmu za każdą reakcję przybliżoną do reakcji docelowej (tj. naciskania dźwigni). Przykładami takich reakcji przybliżonych są zbliżanie się do dźwigni, węszenie przy niej lub dotykanie jej.
- Gdy szczury zaczną konsekwentnie wykonywać reakcje przybliżone, zaprzestać nagradzania za nie i zacząć wymagać reakcji bardziej zbliżonej do docelowej. Powtarzać w razie potrzeby.
3. Programowanie protokołów automatycznych
UWAGA: Przedstawione wartości (np. opóźnienia, wielkość nagrody, liczba prób, czas trwania sesji, wartości harmonogramów, czas trwania przerwy time-out, zakres odstępu między próbami, próg dla prób wymuszonych, obecność/brak towarzyszących bodźców, czas trwania bodźców) zostały wybrane arbitralnie. Czytelnicy mogą chcieć zapoznać się z literaturą w celu ustalenia odpowiednich parametrów i warunków niezbędnych do osiągnięcia ich konkretnych celów. Kody do przeprowadzenia próbek trzech zaprezentowanych tutaj protokołów w środowisku MED-PC znajdują się w repozytorium dostępnym pod następującym adresem URL: https://github.com/SaavedraPablo/MED-PC-codes. Kody te można swobodnie pobierać i modyfikować zgodnie z konkretnymi potrzebami.
- Wybór intertemporalny
- Wybierz wartości opóźnienia i wielkości nagrody. Na przykład wybory dla alternatywy SS dostarczają jedną pelletkę pokarmową natychmiast, a wybory dla alternatywy LL dostarczają pięć pelletek pokarmowych po stałym opóźnieniu wynoszącym 20 s.
- Wybierz kryterium zakończenia. Zakończ sesje automatycznie po spełnieniu określonego kryterium. Na przykład: zakończ sesję po 40 próbach wyboru lub po 50 min.
- Połącz każdą alternatywę z dźwignią (lewą lub prawą) w komorze warunkowania, równoważąc lateralizację alternatyw pomiędzy osobnikami.
- Wysuń obie dźwignie do komór warunkowania i udostępnij alternatywy SS i LL po zrealizowaniu harmonogramu zmiennego odstępu30. Naciśnięcie pierwszej dźwigni po upływie określonego odstępu czasu aktywuje powiązaną z nią alternatywę (wliczając opóźnienie). Zmienianie czasu trwania takiego odstępu w sposób pseudolosowy zapobiega wyłącznej preferencji konkretnej alternatywy.
- Wciągnij obie dźwignie i aktywuj konsekwencję powiązaną z alternatywami SS lub LL po zrealizowaniu harmonogramu wzmocnień o zmiennym odstępie.
- Zastosuj warunek przerwy (sygnalizowany wygaszeniem światła w pomieszczeniu) po dostarczeniu nagrody. Dostosuj czas trwania tego warunku, aby wyrównać średni czas trwania odstępów między próbami dla obu alternatyw. Kolejna próba wyboru rozpoczyna się po zakończeniu przerwy. Rysunek 2 przedstawia schemat zdarzeń podczas dwóch następujących po sobie prób procedury wyboru intertemporalnego.
- Wprowadź próby wymuszone. Jeśli osobniki wybiorą jedną alternatywę w dwóch kolejnych próbach, program ustali, że następna próba będzie próbą wymuszoną pozostałej alternatywy. Oznacza to, że w następnej próbie obie dźwignie są dostępne, ale tylko jedna z nich będzie działać. Zapewnia to, że osobniki doświadczą wyników związanych z obiema alternatywami.
- Zakończ codzienną sesję po wykonaniu określonej liczby prób lub po upływie maksymalnego czasu.
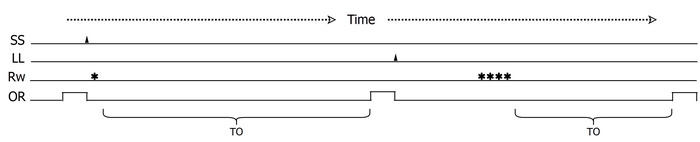
Rycina 2: Schemat zdarzeń wejściowych i wyjściowych w dwóch następujących po sobie próbach procedury wyboru intertemporalnego. Schemat prototypowej procedury wyboru międzyczasowego, ilustrujący wybór alternatywy SS oraz wybór alternatywy LL w dwóch kolejnych próbach. Każdy wiersz przedstawia oś czasu występowania poszczególnych zdarzeń wyjściowych lub wejściowych. Impulsy na osi czasu SS reprezentują wybory mniejszy-szybciej alternatywa (po zrealizowaniu harmonogramu o zmiennym odstępie). Piki na osi czasu LL reprezentują wybory) większa późniejsza alternatywa (to samo). Gwiazdki na osi czasu Rw reprezentują podawanie nagród. Podwyższone plateau na osi czasu w bloku operacyjnym reprezentują okresy możliwość odpowiedzi (zazwyczaj są one sygnalizowane, a ich czas trwania różni się w zależności od tego, ile czasu dana osoba potrzebuje na spełnienie określonego kryterium); TO oznacza przekroczenie czasu oczekiwania który rozpoczyna się po podaniu nagrody i kończy wraz z następną próbą; w tym czasie obie dźwignie są wciągnięte. Należy zauważyć, że czas trwania przerwy (timeout) różni się w zależności od rodzaju próby (wybór SS lub wybór LL), aby zachować równość odstępów międzypróbnych. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
- DLR
- Wybierz wartość minimalnego czasu, po upływie którego reakcja przyniesie nagrodę. Na przykład 10 s.
- Po rozpoczęciu sesji lub po każdej reakcji w postaci naciśnięcia dźwigni, uruchom odliczanie od wybranej wartości czasu (np. 10 s) do zera. Jeśli badane zwierzęta wykażą reakcję przed osiągnięciem przez licznik wartości zero, licznik zostanie zresetowany, co oznacza, że muszą one poczekać na nową okazję do otrzymania nagrody. Jeśli zwierzęta wykażą reakcję po osiągnięciu przez licznik wartości zero, podaj pelet spożywczy i zresetuj licznik po 2 s (pozwala to zwierzęciu na spożycie pokarmu). Rysunek 3 przedstawia niektóre możliwe wzorce reakcji oraz odpowiadające im zaprogramowane następstwa.
UWAGA: Podczas 2 s odstępu na pobranie nagrody reakcje nie są liczone, co może wpływać na proporcję reakcji seryjnych (burst responses) w rzadkich przypadkach, gdy szczury zjadają pokarm wystarczająco szybko i zdarza im się zareagować natychmiast po tym lub nie zauważą podania pokarmu. Można to poprawić, stosując sygnał informujący o 2 s odstępie na pobranie nagrody31. Jednak wcześniejsze badania wykazały, że liczba takich reakcji jest pomijalna nawet w przypadku braku sygnałów informacyjnych. - Zakończ sesję po osiągnięciu kryterium czasu i/lub liczby nagród.
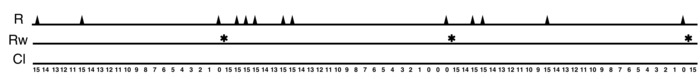
Rycina 3: Schemat hipotetycznego wzorca odpowiedzi i zaprogramowanych konsekwencji w procedurze DRL 15 s.Piki na osi czasu R reprezentują chronologię reakcji emitowanych spontanicznie przez badanego. Gwiazdki na osi czasu Rw reprezentują chronologię wydawania nagród. Liczby pod wierszem Cl reprezentują zegar odliczający od 15 s czas pozostały do następnej możliwości udzielenia odpowiedzi i otrzymania nagrody. Należy zauważyć, że wydanie nagrody następuje tylko wtedy, gdy udzielono odpowiedzi po upływie minimalnego czasu 15 s od ostatniej reakcji. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
- Dyskryminacja cechy negatywnej
- Wybierz czas trwania bodźców, czas trwania odstępów między próbami oraz kryterium zakończenia sesji. Na przykład: zastosuj czas trwania 8 s dla bodźców warunkowych, zmienny odstęp między próbami wynoszący 92 s oraz kryterium zakończenia po 24 próbach.
- Prezentuj pseudolosowo dwa rodzaje prób, A+ i AX-, z częstotliwością 50% dla każdej z nich; A i X reprezentują rodzaje bodźców, a znaki plus i minus oznaczają odpowiednio obecność lub brak pokarmu. Próby A+: włącz jedno z punktowych świateł (bodziec A) na 8 s, a następnie podaj dwa pellety pokarmowe (+). Próby AX-: włącz jedno z punktowych świateł (dowolna strona) na 8 s i jednocześnie emituj sygnał dźwiękowy (bodziec X), ale nie podawaj pokarmu (-). Rycina 4 przedstawia schemat zaprogramowanych zdarzeń dla każdego rodzaju próby.
- Zakończ sesję po osiągnięciu kryterium czasu i/lub liczby prób.
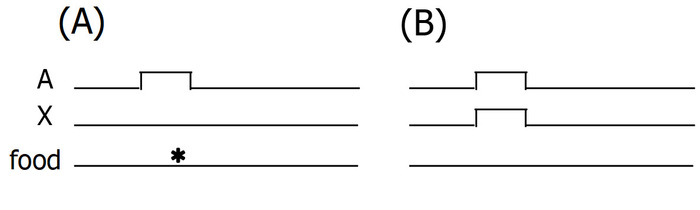
Rysunek 4: Schemat typów prób stosowanych w procedurze dyskryminacji cechy ujemnej.Wzniesienia na osi czasu A reprezentują początek bodźca pobudzającego. Wzniesienia na osi czasu X reprezentują początek bodźca hamującego. Gwiazdki na osi czasu pokarmu reprezentują podanie pokarmu. (A) Próby A+ obejmują prezentację bodźca pobudzającego, po której następuje podanie pokarmu. (B) Próby AX- obejmują prezentację bodźca pobudzającego w połączeniu z bodźcem hamującym bez podania pokarmu. Należy pamiętać, że w celu uzyskania lepszych wyników próby muszą być rozmieszczone losowo i oddzielone stosunkowo długimi odstępami międzypróbowymi. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
4. Wykonywanie protokołów
- Przeprowadzać protokół codziennie o stałej porze, zawsze umieszczając szczury w tej samej komorze operantycznej.
- Skonfigurować protokoły w oprogramowaniu komputerowym. Należy odpowiednio nazwać plik wynikowy, podając imiona osobników, warunki oraz nazwę badania.
- Wyczyścić wewnętrzne ścianki, sufit i kratowaną podłogę komór operantycznych roztworem etanolu lub chloru, aby usunąć zapachy z poprzednich sesji lub badań.
- Sprawdzić, czy wszystkie kluczowe wejścia i wyjścia działają prawidłowo, aktywując je ręcznie i monitorując za pomocą komputera.
- Upewnić się, że dozownik pokarmu zawiera wystarczającą ilość karmy na całą sesję.
- Przenieść klatki z osobnikami w pobliże komór warunkowania.
- Otworzyć klatkę i delikatnie przenieść każdego szczura do odpowiadającej mu komory warunkowania, a następnie zamknąć komory oraz osłony izolujące.
- Uruchomić program i poczekać do jego zakończenia. Jeśli dane nie są zapisywane automatycznie, zapisać pliki wynikowe z sesji na dysku komputera lub w innym miejscu.
- Po zakończeniu programu delikatnie przenieść szczury z powrotem do ich klatek.
- Podać szczurom pokarm uzupełniający zgodnie z wybranym reżimem ograniczenia pokarmowego.
5. Gromadzenie i analiza danych
UWAGA: Kody do ekstrakcji i manipulacji danymi z plików wyjściowych MED-PC (zapisanych z rozszerzeniem .txt) dla każdej procedury znajdują się w repozytorium dostępnym pod następującym adresem URL: https://github.com/SaavedraPablo/MED-PC-to-R-codes.
- Wybór intertemporalny
- Zarejestrować liczbę naciśnięć dźwigni w alternatywie SS oraz w alternatywie LL.
- Podzielić liczbę odpowiedzi w alternatywie SS przez całkowitą liczbę odpowiedzi, aby uzyskać proporcję odpowiedzi impulsywnych. Alternatywnie, podzielić liczbę odpowiedzi w alternatywie SS przez liczbę odpowiedzi w alternatywie LL, aby obliczyć stosunek odpowiedzi impulsywnych. Obliczyć logarytm dziesiętny wartości stosunku w celu usunięcia skośności rozkładu.
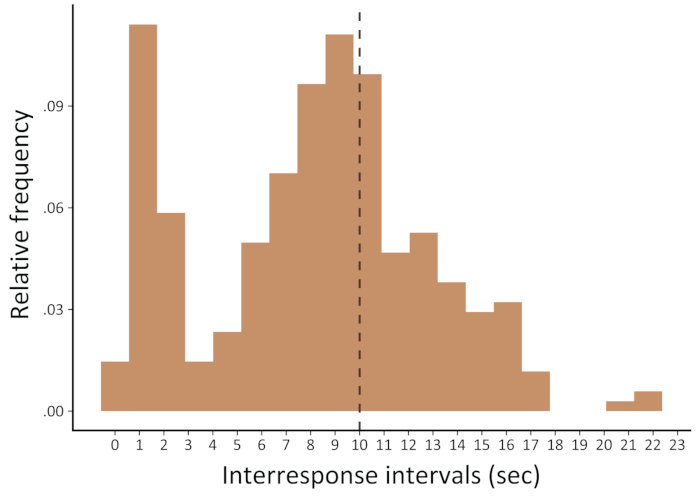
Rysunek 5: Histogram IRT dla jednego szczura w jednej sesji w protokole DRL 10 s. Rozkład jest bimodalny, z jednym z pików przy bardzo krótkich IRT (odpowiedzi seryjne) i drugim zlokalizowanym w pobliżu kryterium czasowego protokołu (odpowiedzi czasowe). Należy również zauważyć nagromadzenie niewielkiej liczby odpowiedzi po prawej stronie, stosunkowo daleko od rozkładu czasowego (luki uwagi). Dane zostały pobrane z 9th sesji w protokole DRL szczura nr 6 w niedawno przeprowadzonym, nieopublikowanym badaniu. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
- DRL
- W programie należy ustawić zmienną licznika, która zwiększa się o każdą jednostkę czasu od początku sesji.
- Wartość zmiennej licznika należy zapisywać na liście wartości dla każdej z odpowiedzi w momencie ich wystąpienia podczas sesji. Pozwoli to na uzyskanie skumulowanego zapisu odpowiedzi, czyli dokładnego czasu wystąpienia każdej odpowiedzi w trakcie sesji.
- Z zapisu skumulowanego należy odjąć każdą wartość, i, od wartości poprzedniej, i – 1, aby uzyskać czasy międzyodpowiedziowe (IRT), które stanowią badaną zmienną.
- Należy wykreślić histogram IRT dla jednej szczura w jednej sesji z interwałami 1 s na osi X w celu wizualnej inspekcji danych. W przypadku typowego, doświadczonego osobnika powinien on przypominać rozkład bimodalny, z jedną częścią danych zgromadzoną po lewej stronie i drugą częścią skupioną w pobliżu wybranego wymogu czasowego protokołu DRL. Rycina 5 przedstawia przykład typowych wyników w protokole DRL dla jednego szczura w pojedynczej sesji.
- Należy sklasyfikować typy IRT. Jak wspomniano powyżej, rozkład IRT dla typowego osobnika jest bimodalny. Jedną z możliwych interpretacji tego kształtu jest to, że składa się on z mieszaniny (co najmniej) dwóch rozkładów odzwierciedlających oddzielne procesy32.
- Klasyfikacja IRT wskazujących na ubytki uwagi.
- Zbyt długie IRT mogą wskazywać na ubytki uwagi (tj. okresy, w których szczury nie były zaangażowane w zadanie)33. Przydatną praktyką jest oddzielenie wartości odstających z prawego krańca od reszty danych32. Na przykład można pomnożyć rozstęp międzykwartylny rozkładu prawostronnego przez dowolną stałą (np. 3) i dodać tę liczbę do mediany tego rozkładu, aby wyznaczyć wartość odcięcia wyznaczającą granicę między ubytkami uwagi a resztą danych32.
- Klasyfikacja odpowiedzi w rozkładzie lewostronnym lub prawostronnym (po usunięciu wartości odstających32).
- Rozkład lewostronny, czyli rozkład odpowiedzi seryjnych (burst responses), tworzą zbyt krótkie IRT, które interpretuje się jako przejaw nadaktywności34 lub brak uwagi i/lub sprzężenia zwrotnego odpowiedzi35. Z kolei IRT w rozkładzie prawostronnym, czyli rozkładzie odpowiedzi czasowych, są uznawane za przejaw odpowiedzi dostosowanych do ograniczeń czasowych protokołu32. Należy zastosować albo dowolną wartość odcięcia do wyznaczenia granic rozkładów lewo- i prawostronnych31, albo wykorzystać modelowanie matematyczne32,33,36.
- Wyznaczenie parametrów rozkładu odpowiedzi czasowych.
- Należy zwrócić szczególną uwagę na rozkład prawostronny u doświadczonego zwierzęcia, który zazwyczaj obejmuje większość IRT i jest uznawany za najważniejszą część zbioru danych.
- Dwiema istotnymi parametrami są lokalizacja jego szczytu oraz jego rozpiętość. Pierwszy z nich stanowi wskaźnik zdolności do hamowania przedwczesnych odpowiedzi; przesunięcia w lewo względem kryterium czasowego mogą być interpretowane jako przejaw impulsywności37. Drugi parametr wskazuje na szacowanie czasowe; im węższy rozkład, tym większa dokładność czasowa32,40,43. Parametry te należy oszacować za pomocą prostych statystyk opisowych lub bardziej zaawansowanego modelowania matematycznego40,43,33.
- W celu uzyskania praktycznych wskazówek dotyczących dopasowania danych DRL do rozkładu teoretycznego zaproponowanego przez Sanabrii i Killeena33, należy zapoznać się z materiałami uzupełniającymi dostarczonymi przez tych autorów.
- Uzyskanie globalnej miary efektywności.
- Jeśli kryterium zakończenia sesji jest czasowe (tj. czas trwania sesji jest stały), należy podzielić liczbę uzyskanych nagród przez liczbę emitowanych odpowiedzi, aby uzyskać miarę efektywności. Jeśli kryterium zakończenia jest określona liczba nagród, należy obliczyć tempo nagradzania, czyli liczbę nagród podzieloną przez czas trwania sesji. Należy pamiętać, że globalne miary te niewiele mówią o tym, w jaki sposób zwierzęta uzyskują lub tracą nagrody w protokole i powinny być stosowane jedynie jako przybliżony wskaźnik.
- Klasyfikacja IRT wskazujących na ubytki uwagi.
- Dyskryminacja cechy ujemnej
- Należy zarejestrować częstotliwość lub czas trwania odpowiedzi podczas prób A+ oraz AX-. Główną miarą uwarunkowanej odpowiedzi może być średnia częstotliwość odpowiedzi38, średni czas trwania odpowiedzi39 lub procent prób z co najmniej jedną odpowiedzią.
- Po wyborze preferowanej miary uwarunkowanej odpowiedzi należy odjąć wartość odpowiedzi podczas prób AX- od wartości odpowiedzi podczas prób A+ dla każdego osobnika w danej sesji. Stworzy to ujemny indeks impulsywności40; czyli im mniejsza różnica między obiema wartościami, tym większa impulsywność.
UWAGA: Dane z tego zadania dobrze nadają się do analiz opartych na miarach z teorii detekcji sygnałów41,42, które mogą być stosowane jako uzupełnienie prostych miar odejmowania.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Trzy protokoły opisane w niniejszym artykule mogą być przeprowadzane osobno lub w połączeniu z innymi procedurami; zależy to od pytania badawczego, które z kolei determinuje plan badania. Przykłady planów badań kompatybilnych z tymi protokołami to: (1) badania szeregów czasowych, których celem jest opisanie podłużnych zmian w wynikach; (2) kwantyfikacja zmienności indywidualnej, mająca na celu określenie niezawodności pomiarów; (3) przekrojowe badania korelacyjne, których celem jest ocena...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Niniejszy artykuł zawiera opis różnych różnych protokołów badania przesiewowego impulsywności u szczurów. Twierdzi się, że te konkretne protokoły są preferowane ze względu na łatwość programowania i analizy danych oraz wymagają mniejszej liczby urządzeń operacyjnych i stymulacyjnych niż inne dostępne alternatywy. Istnieje kilka kluczowych kroków dla skutecznego wdrożenia tych protokołów, takich jak (1) uzyskanie pytania badawczego, (2) wybór odpowiedniego projektu badania, (3) zaprogramowanie wybranego protokołu, (4) prz...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Chcielibyśmy podziękować Florencii Mata, Maríi Elenie Chávez, Miguelowi Burgosowi i Alejandro Tapii za pomoc techniczną. Pragniemy również podziękować Sarah Gordon Frances za jej przydatne komentarze do poprzedniego szkicu tego artykułu oraz Vladimirowi Orduña za uprzejme udostępnienie surowych danych z opublikowanego artykułu. Podziękowania dla Claudio Nallena za stworzenie diagramu na rysunku 1. Jesteśmy wdzięczni Dirección de Investigación Universidad Iberoamericana Ciudad de México za sfinansowanie usług korekty/edycji oraz koszty produkcji wideo.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 25-pinowe | Med Associates | SG-213F | Podłącz inteligentne karty sterujące do inteligentnych paneli sterowania |
| 40-pinowy taśmowy | Med Associates | DIG-700C | Łączy komputer z szafą interfejsu |
| Komputer | Dell Computer Company | T8P8T-7G8MR-4YPQV-96C2F-7THHB | Do sterowania i monitorowania procesów protokołów |
| dyrygenckie | Med Associates | SG-210CP-8 | Dostarcza zasilanie do inteligentnych paneli sterowania za pośrednictwem zasilacza do montażu w szafie |
| Dozownik żywności z cokołem | Med Associates | ENV-203M-45 (12937) | Cicho dostarcza granulki spożywcze 45 mg |
| Detektor wejścia w głowę | Med Associates | ENV-254-CB | Wykorzystuje wiązkę światła podczerwonego do wykrywania wejścia głowy do pojemnika na żywność |
| House | Light Med Associates | ENV-215M | Do zapewniania rozproszonego oświetlenia wewnątrz komory |
| Interfejs Cabinet | Med Associates | SG-6080D | Pod, który może pomieścić do ośmiu inteligentnych kart sterujących |
| Med-PC IV Software | Med Associates | SOF-735 | Tłumaczenie kodów na polecenia dla wyjść operacyjnych i rejestrowania/przechowywania informacji wejściowych |
| Generator wielotonowy | Med Associates | ENV-223 (597) | Do kontrolowania częstotliwości tonów |
| Wypełniacze paneli | Med Associates | ENV-007-FP | Do wypełniania ścian modułowych, gdy urządzenia nie są używane |
| Pojemnik na pelety | Med Associates | ENV-200R2M | Odbiera i przechowuje granulki spożywcze dostarczane przez dozownik |
| Zasilacz do montażu w szafie | Med Associates | DIG-700F | Dostarcza energię do Szafa interfejsowa |
| Wysuwana dźwignia | Med Associates | ENV-112CM (10455) | Wykrywa reakcje naciśnięcia dźwigni; wysuwa się do komory lub chowa w razie potrzeby |
| Inteligentne karty kontrolne | Med Associates | DIG-716 | Steruje maksymalnie ośmioma wejściami i czterema wyjściami komory kondycjonowania |
| Inteligentne panele sterowania | Med Associates | SG-716 (3341) | Podłącz karty inteligentne do urządzeń w komorach kondycjonujących |
| Głośnik | Med Associates | ENV-224AM | Do dostarczania tonów wewnątrz komory |
| Standardowe komory modułowe dla Rat | Med Associates | ENV-008 | Wykonane z aluminiowych kanałów przeznaczone do utrzymywania urządzeń modułowych |
| Standardowe powłoki izolujące dźwięk, światło i temperaturę | Med Associates | ENV-022MD | Służą do przechowywania każdej komory kondycjonowania |
| Stimulus Light | Med Associates | ENV-221M | Do dostarczania okrągłego ogniskowego bodźca świetlnego |
| pinowe | Med Associates | SG-216A-2 | Łączy inteligentny panel sterowania z każdym z urządzeń wejściowych i wyjściowych w komorach kondycjonowania |
Bibliografia
- Loxton, N. J. The role of reward sensitivity and impulsivity in overeating and food addiction. Current Addiction Reports. 5 (2), 212-222 (2018).
- Richards, J. B., Gancarz, A. M., Hawk, L. W. Inhibitory control and drug abuse prevention. Bardo, M. T., Fishbein, D. H., Milich, R. , Springer. (2011).
- Gullo, M. J., Loxton, N. J., Dawe, S. Impulsivity: Four ways five fectors are not basic to addiction. Addictive Behaviors. 39 (11), 1547-1556 (2014).
- Bari, A., Robbins, T. W. Inhibition and impulsivity: Behavioral and neural basis of response control. Progress in Neurobiology. 108, 44-79 (2013).
- Dalley, J. W., Robbins, T. W. Fractionating impulsivity: neuropsychiatric implications. Nature Reviews Neuroscience. 18 (3), 158-171 (2017).
- Sosa, R., dos Santos, C. V. Toward a unifying account of impulsivity and the development of self-control. Perspectives in Behavior Science. , 1-32 (2018).
- King, J. A., Tenney, J., Rossi, V., Colamussi, L., Burdick, S. Neural substrates underlying impulsivity. Annals of the New York Academy of Sciences. 1008 (1), 160-169 (2003).
- Stayer, R., Ferring, D., Schmitt, M. J. States and traits in psychological assessment. European Journal of Psychological Assessment. 8 (2), 79-98 (1992).
- Moeller, F. G., Barratt, E. S., Dougherty, D. M., Schmitz, J. M., Swann, A. C. Psychiatric aspects of impulsivity. American Journal of Psychiatry. 158, 1783-1793 (2001).
- Evenden, J. L. Varieties of impulsivity. Psychopharmacology. 146 (4), 348-361 (1999).
- Winstanley, C. A. The utility of rat models of impulsivity in developing pharmacotherapies for impulse control disorders. British Journal of Pharmacology. 164 (4), 1301-1321 (2011).
- Solanto, M. V., et al. The ecological validity of delay aversion and response inhibition as measures of impulsivity in AD/HD: A supplement to the NIMH multimodal treatment study of AD/HD. Journal of Abnormal Child Psychology. 29 (3), 215-218 (2001).
- van der Staay, F. J. Animal models of behavioral dysfunctions: Basic concepts and classifications, and an evaluation strategy. Brain Research Reviews. 52, 131-159 (2006).
- Hedge, C., Powell, G., Summer, P. The reliability paradox: Why robust cognitive tasks do not produce reliable individual differences. Behavioral Research Methods. , 1-21 (2017).
- Nakagawa, S., Schielzeth, H. Repeatability for Gaussian and non-Gaussian data: A practical guide for biologists. Biological Reviews. 85, 935-956 (2010).
- Sjoberg, E. Logical fallacies in animal model research. Behavior and Brain Functions. 13 (1), (2017).
- Rachlin, H. Self-control: Beyond commitment. Behavioral and Brain Sciences. 18 (01), 109(1995).
- Logue, A. W. Research on self-control: An integrating framework. Behavioral and Brain Sciences. 11 (04), 665(1988).
- Kramer, T. J., Rilling, M. Differential reinforcement of low rates: A selective critique. Psychological Bulletin. 74 (4), 225-254 (1970).
- Sosa, R., dos Santos, C. V. Conditioned inhibition and its relationship to impulsivity: Empirical and theoretical considerations. The Psychological Record. , (2018).
- Gallistel, C. R., Balci, F., Freestone, D., Kheifets, A., King, A. Automated, quantitative cognitive/behavioral screening of mice: For genetics, pharmacology, animal cognition and undergraduate instruction. Journal of Visualized Experiments. (84), (2014).
- Skinner, B. F. A case history in scientific method. American Psychologist. 11 (5), 221-233 (1956).
- Papini, M. R. Associative learning in the marsupials Didelphis albiventris and Lutreolina crassicaudata. Journal of Comparative Psychology. 102 (1), 21-27 (1988).
- Leonard, J. A. 5 choice serial reaction apparatus. Medical Research Council of Applied Psychology Research. , 326-359 (1959).
- Robinson, T. E., Flagel, S. B. Dissociating the Predictive and Incentive Motivational Properties of Reward-Related Cues Through the Study of Individual Differences. Biological Psychiatry. 65 (10), 869-873 (2009).
- Charan, J., Kantharia, N. D. How to calculate sample size in animal studies? Journal of Pharmacology and Pharmacotherapeutics. 4 (4), 303-306 (2013).
- Toth, L. A., Gardiner, T. W. Food and water restriction protocols: Physiological and behavioral considerations. Journal of the American Association for Laboratory Animal Science. 39 (6), 9-17 (2000).
- Deluty, M. Z. Self-control and impulsiveness involving aversive events. Journal of Experimental Psychology: Animal Behavior Processes. 4, 250-266 (1978).
- Cabrera, F., Robayo-Castro, B., Covarrubias, P. The 'huautli' alternative: Amaranth as reinforcer in operant procedures. Revista Mexicana de Análisis de la Conducta. 36, 71-92 (2010).
- Ferster, C. B., Skinner, B. F. Schedules of reinforcement. , Appleton Century Crofts. (1957).
- Orduña, V., Valencia-Torres, L., Bouzas, A. DRL performance of spontaneously hypertensive rats: Dissociation of timing and inhibition of responses. Behavioural Brain Research. 201 (1), 158-165 (2009).
- Freestone, D. M., Balci, F., Simen, P., Church, R. Optimal response rates in humans and animals. Journal of Experimental Psychology: Animal Behavior and Cognition. 41 (1), 39-51 (2015).
- Sanabria, F., Killeen, P. R. Evidence for impulsivity in the Spontaneously Hypertensive Rat drawn from complementary response-withholding tasks. Behavioral and Brain Functions. 4 (1), 7(2008).
- van den Bergh, F. S., et al. Spontaneously hypertensive rats do not predict symptoms of attention-deficit hyperactivity disorder. Pharmacology, Biochemistry, and Behavior. 83, 11(2006).
- Topping, J. S., Pickering, J. W. Effects of punishing different bands of IRTs on DRL responding. Psychological Reports. 31 (19-22), (1972).
- Richards, J. B., Sabol, K. E., Seiden, L. S. DRL interresponse-time distributions: quantification by peak deviation analysis. Journal of the Experimental Analysis of Behavior. 60 (2), 361-385 (1993).
- Orduña, V. Impulsivity and sensitivity to amount and delay of reinforcement in an animal model of ADHD. Behavioural Brain Research. 294, 62-71 (2015).
- Harmer, C. J., Phillips, G. D. Enhanced conditioned inhibition following repeated pretreatment with d -amphetamine. Psychopharmacology. 142 (2), 120-131 (1999).
- Lister, S., Pearce, J. M., Butcher, S. P., Collard, K. J., Foster, G. Acquisition of conditioned inhibition in rats is impaired by ablation of serotoninergic pathways. European Journal of Neuroscience. 8, 415-423 (1996).
- Meyer, H. C., Bucci, D. J. The contribution of medial prefrontal cortical regions to conditioned inhibition. Behavioral Neuroscience. 128 (6), 644-653 (2014).
- McNicol, D. A primer of signal detection theory. , Erlbaum Associates. (1972).
- Carnero, S., Morís, J., Acebes, F., Loy, I. Percepción de la contingencia en ratas: Modulación fechneriana y metodología de la detección de señales. Revista Electrónica de Metodología Aplicada. 14 (2), (2009).
- López, H. H., Ettenberg, A. Dopamine antagonism attenuates the unconditioned incentive value of estrus female cues. Pharmacology, Biochemistry, and Behavior. 68, 411-416 (2001).
- Schotte, A., Janssen, P. F. M., Megens, A. A. H. P., Leysen, J. E. Occupancy of central neurotransmitter receptors by risperidone, clozapine and haloperidol, measured ex vivo. Brain Research. 631 (2), 191-202 (1993).
- van Hest, A., van Haaren, F., van de Poll, N. Haloperidol, but not apomorphine, differentially affects low response rates of male and female wistar rats. Pharmacology, Biochemistry, and Behavior. 29, 529-532 (1988).
- Finnegan, K. T., Ricaurte, G., Seiden, L. S., Schuster, C. R. Altered sensitivity to d-methylamphetamine, apomorphine, and haloperidol in rhesus monkeys depleted of caudate dopamine by repeated administration of d-methylamphetamine. Psychopharmacology. 77, 43-52 (1982).
- Britton, K. T., Koob, G. F. Effects of corticotropin releasing factor, desipramine and haloperidol on a DRL schedule of reinforcement. Pharmacology, Biochemistry, and Behavior. 32, 967-970 (1989).
- Maricq, A. V., Church, R. The differential effects of haloperidol and metamphetamine on time estimation in the rat. Psychopharmacology. 79, 10-15 (1983).
- Dalley, J. W., et al. Nucleus accumbens D2/3 receptors predict trait impulsivity and cocaine reinforcement. Science. 315, 1267-1270 (2007).
- Cole, B. J., Robbins, T. W. Effects of 6-hydroxydopamine lesions of the nucleus accumbens septi on performance of a 5-choice serial reaction time task in rats: Implications for theories of selective attention and arousal. Behavior and Brain Research. 33, 165-179 (1989).
- Reynolds, B., de Wit, H., Richards, J. B. Delay of gratification and delay discounting in rats. Behavioural Processes. 59 (3), 157-168 (2002).
- Evenden, J. L., Ryan, C. N. The pharmacology of impulsive behavior in rats: The effects of drugs on response choice with varying delays of reinforcement. Psychopharmacology. 128, 161-170 (1996).
- Autor, S. M. Conditioned reinforcement. Hendry, D. P. , Dorsey Press. (1969).
- van den Broek, M. D., Bradshaw, C. M., Szabadi, E. Behaviour of 'impulsive' and 'non-impulsive' humans in a temporal differentiation schedule of reinforcement. Personality and Individual Differences. 8 (2), 233-239 (1987).
- McGuire, P. S., Seiden, L. S. The effects of tricyclicantidepressants on performance under a differential-reinforcement-of-low-rates schedule in rats. Journal of Pharmacology and Experimental Therapeutics. 214 (3), 635-641 (1980).
- O'Donnell, J. M., Seiden, L. S. Differential-reinforcement-of-low-rates 72-second schedule: Selective effects of antidepressant drugs. Journal of Pharmacology and Experimental Therapeutics. 224 (1), 80-88 (1983).
- Seiden, L. S., Dahms, J. L., Shaughnessy, R. A. Behavioral screen for antidepressants: The effects of drugs and electroconvulsive shock on performance under a differential-reinforcement-of-low-rates schedule. Psychopharmacology. 86, 55-60 (1985).
- He, Z., Cassaday, H. J., Howard, R. C., Khalifa, N., Bonardi, C. Impaired Pavlovian conditioned inhibition in offenders with personality disorders. The Quarterly Journal of Experimental Psychology. 64 (12), 2334-2351 (2011).
- He, Z., Cassaday, H. J., Bonardi, C., Bibi, P. A. Do personality traits predict individual differences in excitatory and inhibitory learning? Frontiers in Psychology. 4, 1-12 (2013).
- Bucci, D. J., Hopkins, M. E., Keene, C. S., Sharma, M., Orr, L. E. Sex differences in learning and inhibition in spontaneously hypertensive rats. Behavioural Brain Research. 187 (1), 27-32 (2008).
- Gershon, J. A meta-analytic review of gender differences in ADHD. Journal of Attention Disorders. 5, 143-154 (2012).
- Mobini, S., et al. Effects of lesions of the orbitofrontal cortex on sensitivity to delayed and probabilistic reinforcement. Psychopharmacology. 160 (3), 290-298 (2002).
- Bouton, M. E., Nelson, J. B. Context-specificity of target versus feature inhibition in a negative-feature discrimination. Journal of Experimental Psychology: Animal Behavior Processes. 20 (1), 51-65 (1994).
- Bouton, M. E., Nelson, J. B. Occasion setting: Associative learning and cognition in animals. Schmajuk, N., Holland, P. , American Psychological Association. 69-112 (1998).
- Rescorla, R. A. Pavlovian conditioned inhibition. Psychological Bulletin. 72 (2), 77-94 (1969).
- Miller, R. R., Matzel, L. D. The psychology of learning and motivation. Bower, G. H. , Academic Press. (1988).
- Williams, D. A., Overmier, J. B., Lolordo, V. M. A reevaluation of Rescorla's early dictums about conditioned inhibition. Psychological Bulletin. 111 (2), 275-290 (1992).
- Papini, M. R., Bitterman, M. E. The two-test strategy in the study of inhibitory conditioning. Psychological Review. 97 (3), 396-403 (1993).
- Sosa, R., Ramírez, M. N. Conditioned inhibition: Critiques and controversies in the light of recent advances. Journal of Experimental Psychology: Animal Behavior and Cognition. , in press (2018).
- Fox, A. T., Hand, D. J., Reilly, M. P. Impulsive choice in a rodent model of attention-deficit/hyperactivity disorder. Behavioural Brain Research. 187, 146-152 (2008).
- Foscue, E. P., Wood, K. N., Schramm-Sapyta, N. L. Characterization of a semi-rapid method for assessing delay discounting in rodents. Pharmacology, Biochemistry, and Behavior. 101, 187-192 (2012).
- Brucks, D., Marshall-Pescini, S., Wallis, L. J., Huber, L., Range, F. Measures of Dogs' Inhibitory Control Abilities Do Not Correlate across Tasks. Frontiers in Psychology. 8, (2017).
- McDonald, J., Schleifer, L., Richards, J. B., de Wit, H. Effects of THC on Behavioral Measures of Impulsivity in Humans. Neuropsychopharmacology. 28 (7), 1356-1365 (2003).
- Reynolds, B., Ortengren, A., Richards, J. B., de Wit, H. Dimensions of impulsive behavior: Personality and behavioral measures. Personality and Individual Differences. 40 (2), 305-315 (2006).
- Dellu-Hagedorn, F. Relationship between impulsivity, hyperactivity and working memory: a differential analysis in the rat. Behavioral and Brain Functions. 2 (10), 18(2006).
- López, P., Alba, R., Orduña, V. Individual differences in incentive salience attribution are not related to suboptimal choice in rats. Behavior and Brain Research. 341 (2), 71-78 (2017).
- Ho, M. Y., Al-Zahrani, S. S. A., Al-Ruwaitea, A. S. A., Bradshaw, C. M., Szabadi, E. 5-Hydroxytryptamine and impulse control: prospects for a behavioural analysis. Journal of Psychopharmacology. 12 (1), 68-78 (1998).
- Sagvolden, T., Russell, V. A., Aase, H., Johansen, E. B., Farshbaf, M. Rodent models of attention-deficit/hyperactivity disorder. Biological Psychiatry. 57, 9(2005).
- Tomie, A., Aguado, A. S., Pohorecky, L. A., Benjamin, D. Ethanol induces impulsive-like responding in a delay-of-reward operant choice procedure: impulsivity predicts autoshaping. Psychopharmacology. 139 (4), 376-382 (1998).
- Monterosso, J., Ainslie, G. Beyond discounting: possible experimental models of impulse control. Psychopharmacology. 146 (4), 339-347 (1999).
- Burguess, M. A. Methodology of frontal and executive function. Rabbit, P. , Psychology Press. 81-116 (1997).
- Watterson, E., Mazur, G. J., Sanabria, F. Validation of a method to assess ADHD-related impulsivity in animal models. Journal of Neuroscience Methods. 252, 36-47 (2015).
- Hackenberg, T. D. Of pigeons and people: some observations on species differences in choice and self-control. Brazilian Journal of Behavior Analysis. 1 (2), 135-147 (2005).
- Asinof, S., Paine, T. A. The 5-choice serial reaction time task: A task of attention and impulse control for rodents. Journal of Visualized Experiments. (90), e51574(2014).
- Masaki, D., et al. Relationship between limbic and cortical 5-HT neurotransmission and acquisition and reversal learning in a go/no-go task in rats. Psychopharmacology. 189, 249-258 (2006).
- Bari, A., et al. Prefrontal and monoaminergic contributions to stop-signal task performance in rats. The Journal of Neuroscience. 31, 9254-9263 (2011).
- Flagel, S. B., Watson, S. J., Robinson, T. E., Akil, H. Individual differences in the propensity to approach signals vs goals promote different adaptations in the dopamine system of rats. Psychopharmacology. 191, 599-607 (2007).
- Swann, A. C., Lijffijt, M., Lane, S. D., Steinberg, J. L., Moeller, F. G. Trait impulsivity and response inhibition in antisocial personality disorder. Journal of Psychiatric Research. 43 (12), 1057-1063 (2009).
- Lawrence, A. J., Luty, J., Bogdan, N. A., Sahakian, B. J., Clark, L. Impulsivity and response inhibition in alcohol dependence and problem gambling. Psychopharmacology. 207 (1), 163-172 (2009).
- Dougherty, D. M., et al. Behavioral impulsivity paradigms: a comparison in hospitalized adolescents with disruptive behavior disorders. Journal of Child Psychology and Psychiatry. 44 (8), 1145-1157 (2003).
- Rosval, L., et al. Impulsivity in women with eating disorders: Problem of response inhibition, planning, or attention. International Journal of Eating Disorders. 39 (7), 590-593 (2006).
- Huddy, V. C., et al. Reflection impulsivity and response inhibition in first-episode psychosis: relationship to cannabis use. Psychological Medicine. 43 (10), 2097-2107 (2013).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
