Prezentowany protokół powoduje uporczywy konflikt sensoryczny w eksperymentach mających na celu badanie długoterminowej nauki. Nosząc na stałe urządzenie na głowie, myszy są stale narażone na niedopasowanie sensoryczne między bodźcami wzrokowymi i przedsionkowymi podczas swobodnego poruszania się w klatkach domowych.
Artykuł metodologiczny
Długotrwały konflikt sensoryczny u swobodnie zachowujących się myszy
W tym artykule
Podsumowanie
Streszczenie
Długoterminowe protokoły konfliktów sensorycznych są cennym sposobem na naukę motoryczną. Przedstawiony protokół powoduje trwały konflikt sensoryczny w eksperymentach mających na celu zbadanie długotrwałego uczenia się u myszy. Nosząc na stałe urządzenie przymocowane do głowy, myszy są stale narażone na niedopasowanie sensoryczne między bodźcami wzrokowymi i przedsionkowymi podczas swobodnego poruszania się w klatkach domowych. W związku z tym protokół ten z łatwością umożliwia badanie układu wzrokowego i interakcji multisensorycznych w dłuższym okresie czasu, który w przeciwnym razie nie byłby dostępny. Oprócz obniżenia kosztów eksperymentalnych długoterminowego uczenia się sensorycznego u naturalnie zachowujących się myszy, podejście to uwzględnia połączenie eksperymentów in vivo i in vitro. W przedstawionym przykładzie wideookulosografia jest wykonywana w celu ilościowego określenia odruchu przedsionkowo-ocznego (VOR) i odruchu optokinetycznego (OKR) przed i po uczeniu się. Myszy wystawione na ten długotrwały konflikt sensoryczny między bodźcami wzrokowymi i przedsionkowymi wykazywały silny spadek wzmocnienia VOR, ale wykazywały niewiele zmian OKR. Szczegółowe etapy montażu urządzenia, opieki nad zwierzętami i pomiarów odruchowych są niniejszym podane.
Wprowadzenie
Konflikty sensoryczne, takie jak wizualne, występują w codziennym życiu, na przykład, gdy ktoś nosi okulary lub przez cały okres życia (rozwój rozwojowy, zmiany w ostrości sensorycznej itp.). Ze względu na dobrze opisaną anatomię obwodu, łatwo kontrolowane bodźce sensoryczne, wymierne wyjścia motoryczne i precyzyjne metody kwantyfikacji1, odruchy stabilizacji wzroku były wykorzystywane jako modele uczenia się motorycznego u wielu gatunków. U ludzi i małp adaptacja odruchu przedsionkowo-ocznego (VOR) jest badana za pomocą pryzmatów, które badany nosi przez kilka dni2,3,4,5. Ponieważ model gryzoni pozwala na połączenie eksperymentów behawioralnych i komórkowych, opracowaliśmy nową metodę tworzenia długotrwałego konfliktu sensorycznego u swobodnie zachowujących się myszy z urządzeniem przypominającym hełm. Zainspirowany metodologią zastosowaną u ludzi i małp, protokół generuje niezgodność między danymi wejściowymi przedsionkowymi i wzrokowymi (tj. niezgodność wzrokowo-przedsionkową, VVM), która prowadzi do zmniejszenia przyrostu VOR.
Klasyczne protokoły wywołujące adaptację wzmocnienia VOR u gryzoni polegają na obracaniu zwierzęcia z głową na talerzu obrotowym podczas obracania pola widzenia w fazie. Ten paradygmat tworzy konflikt wzrokowo-przedsionkowy, co sprawia, że VOR przynosi efekt przeciwny do zamierzonego. Długoterminowe protokoły adaptacyjne polegają na powtarzaniu tej procedury przez kilka kolejnych dni6,7,8. W rezultacie, gdy trzeba przebadać dużą grupę zwierząt, klasyczna metodologia wymaga dużej ilości czasu. Ponadto, ponieważ zwierzę jest skupione na głowie, uczenie się jest w większości ograniczone do dyskretnej częstotliwości/prędkości i składa się z nieciągłych treningów przerywanych interwałami międzypróbnymi o zmiennym czasie trwania6. Wreszcie, klasyczne protokoły wykorzystują uczenie bierne, ponieważ stymulacja przedsionkowa nie jest aktywnie generowana przez dobrowolne ruchy zwierzęcia, co w znacznym stopniu kształtuje przetwarzanie przedsionkowe9,10.
Wyżej wymienione ograniczenia eksperymentalne zostały przekroczone przez prezentowaną innowacyjną metodologię. Wymagane podejście chirurgiczne jest proste, a użyte materiały są łatwo dostępne na rynku. Jedyną częścią, która opiera się na droższym materiale, jest kwantyfikacja zachowania; Niemniej jednak podstawy protokołu mogą być wykorzystane w każdym eksperymencie, od badań in vitro po inne behawioralne badania uczenia się. Ogólnie rzecz biorąc, generując tymczasowe upośledzenie wzroku i konflikt wzrokowo-przedsionkowy w ciągu kilku dni, metodologia ta może być łatwo przeniesiona do dowolnego badania dotyczącego zaburzeń sensorycznych lub uczenia się motorycznego.
Protokół
Wszystkie procedury dotyczące zwierząt były zgodne z przepisami Uniwersytetu Kartezjusza w Paryżu.
1. Montaż urządzenia
UWAGA: Urządzenie użyte w tym protokole to konstrukcja przypominająca hełm, przymocowana do czaszek myszy za pomocą wszczepionego słupka na głowę.
- Korzystając z drukarki 3D i białego, nieprzezroczystego tworzywa sztucznego z poli(kwasu mlekowego) (PLA), drukuj, korzystając z plików projektowych i specyfikacji dostarczonych tutaj (patrz Tabela materiałów) zarówno dla urządzenia, jak i słupka głównego.
UWAGA: Wymiary urządzenia są pokazane w Rysunek 1, a wymiary słupka pokazane są w Rysunek 2. - Testowane są zarówno urządzenia w paski, jak i pozorowane (Rysunek 2A11). Aby uzyskać model w paski, za pomocą czarnego lakieru do paznokci narysuj 3 mm duże pionowe paski na zewnętrznej powierzchni urządzenia. Warunek pozorny nie wymaga żadnych modyfikacji urządzenia drukowanego.
2. Operacja wszczepienia implantu głowy
Wszystkie materiały użyte w tym protokole są szczegółowo opisane na liście materiałów w dodatkowych informacjach. Kroki 2.7-2.9 polegają na wykorzystaniu biomateriałów dostarczonych w zestawie implantacyjnym (patrz Tabela Materiałów). Upewnij się, że używasz sterylnych narzędzi i zorganizuj operację i rekonwalescencję w różnych strefach. Raz opanowany zabieg implantacji trwa około 30 minut.
- W przypadku analgezji 30 minut przed rozpoczęciem zabiegu należy wstrzyknąć podskórnie buprenorfinę (0,05 mg/kg) i umieścić zwierzę z powrotem w klatce domowej.
UWAGA: Działanie przeciwbólowe buprenorfiny utrzymuje się przez około 12 godzin, długo po zakończeniu zabiegu. Z naszego doświadczenia wynika, że myszy nie wykazują żadnych oznak niepokoju związanych z tą interwencją, ale zalecana jest kolejna dawka 0,05 mg/kg buprenorfiny 24 godziny po zabiegu. - Znieczulić zwierzę w komorze z 2,5%-3% gazem izofluranowym. Odczekaj 3 minuty i sprawdź, czy mysz jest odpowiednio znieczulona, obserwując oddychanie i brak ruchu wewnątrz komory. Przenieś mysz do stożka nosowego na stole operacyjnym z poduszką grzewczą i poprzez międzypalcowe szczypanie sprawdź, czy nie ma odruchu odstawienia i obniż poziom izofluranu do 1,5%.
- Ogol głowę myszy za pomocą elektrycznej maszynki do golenia. Aby uzyskać sterylne środowisko, przetrzyj ogolony obszar roztworem jodu, a następnie 70% alkoholem. Powtórz tę procedurę jeszcze dwa razy.
- Wstrzyknąć chlorowodorek lidokainy (2%, 2 mg/kg) pod skórę głowy w celu znieczulenia miejscowego i odczekać 5 minut, aby zaczęły się efekty. Aby uniknąć uszkodzenia oczu z powodu suchości, zakryj oczy myszy miejscową maścią okulistyczną weterynaryjną.
- Za pomocą kleszczy chwyć skórę z tyłu głowy, a za pomocą nożyczek (lub skalpela) wykonaj podłużne nacięcie o długości około 1,5 cm, aby odsłonić czaszkę.
- Za pomocą skalpela podrap okostną. Uważaj, aby nie drapać zbyt mocno, ponieważ mocowanie słupka głowy może zostać naruszone, jeśli czaszka zacznie lekko krwawić.
- Nałóż kroplę zielonego aktywatora na środek czaszki. Poprawi to utrwalenie cementu poprzez zwiększenie przepuszczalności kości.
- Przygotuj cement: wymieszaj jedną łyżkę (dołączoną do zestawu) polimeru z pięcioma kroplami monomeru i jedną kroplą katalizatora. Za pomocą pędzla nałóż dużą ilość mieszanki cementowej między punkty orientacyjne czaszki lambda i bregma;
- Szybko umieść słupek na cemencie ruchem przesuwającym, przechodząc od lambda do bregma. Po umieszczeniu słupka na głowę ponownie nałóż więcej cementu wokół dolnej części, aby upewnić się, że sztyca prawidłowo przylega do czaszki. Aby zagwarantować prawidłowe mocowanie, upewnij się, że cement jest obficie nałożony i wyschł przed przejściem do następnego kroku.
UWAGA: Dzięki tej procedurze mocowania sztyca nie odpadnie i pozwoli na długotrwałe, powtarzające się testy; W naszych rękach usunięcie sztycy wynosi <10%. - Przygotuj mieszankę żywicy, nakładając stosunek proszku do cieczy, który umożliwia uzyskanie gładkiej konsystencji mieszanki. Żywicę należy nakładać w miejscu, w którym został nałożony cement, a także wokół słupka głównego, aby zabezpieczyć jego powierzchnię.
- Odczekaj 3 minuty, aż żywica wyschnie i zamknij skórę z tyłu uszu szwem monofilamentowym. Za pomocą bawełnianego wacika nanieść rozcieńczony (10%-20%) roztwór jodu na operowany obszar.
UWAGA: Upewnij się, że skóra nie przykleja się do żywicy. - Wyłącz znieczulenie i umieść zwierzę pod czerwonym, ciepłym światłem, aby uniknąć hipotermii. Umieść zwilżoną karmę i hydrożel lub inne źródło wody na bazie żelu w podłodze klatki. Nie pozostawiaj myszy bez opieki, dopóki nie odzyska przytomności. Gdy tylko zwierzę w pełni wyzdrowieje po zabiegu (zwykle od 30 minut do 1 godziny po), umieść je w klatce z grupami po trzy lub cztery, aby stymulować interakcje społeczne.
3. Fiksacja urządzenia
- Po 48 godzinach od zabiegu przymocuj specjalnie skonstruowane urządzenie na głowę do słupka głównego.
- Za pomocą pary 1.2 mm i śrubokręta (sześciokąt 1.3 mm) wyrównaj otwory w urządzeniu w paski z otworami w słupku głównym, umieść i dokręć je. Aby naprawić stan pozorowany, odwróć urządzenie do góry nogami i tylną częścią (Rysunek 1A) urządzenia skierowaną w kierunku rostralnym, wyrównaj otwory w urządzeniu z otworami w słupku głównym.
UWAGA: Zaleca się, aby ten krok został wykonany przez dwóch operatorów, z których jeden trzyma mysz za pomocą jednoręcznego ogranicznika myszy, a drugi mocuje urządzenie do słupka głównego. Jeśli fiksacja jest wykonywana przez jednego operatora, urządzenie można umieścić, gdy mysz jest w znieczuleniu gazowym. - Sprawdź, czy urządzenie jest dobrze zabezpieczone i nie może zostać usunięte przez zwierzę oraz czy nie wywiera nacisku bezpośrednio na nos myszy, co może potencjalnie powodować ból, trudności w oddychaniu lub obrażenia skóry.
UWAGA: Ważne jest również, aby upewnić się, że urządzenie jest symetrycznie włożone do tarczy myszy, tak aby oczy były całkowicie zakryte przez urządzenie na głowę. Sprawdź, czy zwierzę nie wykazuje żadnych oznak nietypowego bólu lub niepokoju.
- Za pomocą pary 1.2 mm i śrubokręta (sześciokąt 1.3 mm) wyrównaj otwory w urządzeniu w paski z otworami w słupku głównym, umieść i dokręć je. Aby naprawić stan pozorowany, odwróć urządzenie do góry nogami i tylną częścią (Rysunek 1A) urządzenia skierowaną w kierunku rostralnym, wyrównaj otwory w urządzeniu z otworami w słupku głównym.
- Pozostaw urządzenie na myszy na 14 dni.
4. Opieka nad zwierzętami i nadzór
- Po powrocie do klatek myszy będą wykazywać pewne nieprawidłowości w zachowaniu. Na początku zwierzę może pozostać na ziemi i próbować zdjąć urządzenie za pomocą przednich łap, ale powinno to ustąpić po pierwszej godzinie. W ciągu następnych godzin zwierzę zwykle będzie miało trudności z orientacją w klatce i sięganiem po jedzenie i wodę. Dlatego w ciągu 48 godzin po implantacji należy monitorować myszy i zapewnić im łatwy dostęp do wody i pożywienia, na przykład umieszczając je bezpośrednio na podłodze klatki.
- Śledź wagę myszy w czasie trwania protokołu. Zważ myszy zaraz po implantacji i ponownie co 24 godziny. Szczególną uwagę należy zwrócić na zwierzęta noszące urządzenie w paski, ponieważ zwykle doświadczają one utraty masy ciała (1-2 g) w ciągu pierwszych 48 godzin, ale po tym początkowym okresie zaczynają ponownie przybierać na wadze w normalnym tempie (patrz Rysunek 2B11).
- Oczekuje się, że po 2 dniach myszy powrócą do swoich normalnych zdolności. W zależności od systemu stosowanego w pomieszczeniach dla zwierząt, urządzenie może uniemożliwiać dostęp do żywności i wody. Upewnij się, że zwierzę jest spokojne podczas jedzenia i picia lub odpowiednio dostosuj system dozowania.
UWAGA: Zakres ruchów głowy wytwarzanych przez zwierzęta po kilku dniach z włączonym urządzeniem nie jest modyfikowany przez urządzenie (patrz Rysunek 211) (tj. zakres wytwarzanych ruchów głowy pozostaje podobny do naturalnych ruchów głowy). - Aby dodatkowo zapewnić dobrostan myszy, należy zapewnić codzienny nadzór i stosować skalę jakościową (Tabela 1) dobrostanu przez cały okres trwania protokołu.
- Usuń mysz z trwającego protokołu, jeśli spełnione jest co najmniej jedno z następujących kryteriów:
- Myszy, które uzyskały łączny wynik wyższy niż 4 punkty w wyżej wymienionej skali jakościowej, muszą zostać natychmiast wykluczone z eksperymentu (patrz Tabela 1). Niezależnie od wyniku, jeśli mysz nie odzyska początkowej wagi po 6 dniach, procedurę należy przerwać.
- Urządzenie nie jest prawidłowo przymocowane do słupka, jeśli na przykład sztyca trzęsie się po dotknięciu lub część zaczyna odpadać. Powoduje to, że słupek głowy odpada od głowy myszy, a w konsekwencji przerywa naukę, co wyjaśnia, dlaczego konieczna jest codzienna obserwacja.
- Gdy mysz ma oderwany słupek głowy podczas dowolnej części protokołu. Ze względu na krwawienie czaszki związane z tym oderwaniem, operacja reimplantacji ma niski wskaźnik powodzenia i nie warto jej podejmować.
5. Usunięcie urządzenia
- Po okresie nauki (w tym protokole 14 dni) wyjmij urządzenie postępując zgodnie z tymi samymi instrukcjami, co w przypadku jego mocowania (punkt 3). Jak tylko urządzenie zostanie usunięte, przetestuj myszy za pomocą eksperymentów, takich jak testy wideookulograficzne lub, na przykład, za pomocą elektrofizjologii in vitro, jak opisano wcześniej11.
UWAGA: Gdy tylko urządzenie zostanie zdjęte, myszy są wystawione z powrotem na standardowe, niezakłócone wizualnie środowisko. Dlatego wykonuj eksperymenty, które mają na celu przetestowanie efektów uczenia się tego urządzenia bezpośrednio po jego usunięciu.
6. Sesje wideookulograficzne
UWAGA: Eksperymenty wideo-okulograficzne są wykonywane w celu rejestrowania generowanych ruchów gałek ocznych, gdy zwierzę obraca się w ciemności (odruch przedsionkowo-oczny, VOR) lub poprzez obracanie otoczenia zwierzęcia, gdy zwierzę jest nieruchome (odruch optokinekinetyczny, OKR). Każda mysz została przetestowana pod kątem obu tych odruchów przed, jak i po protokole adaptacyjnym. Więcej szczegółów na temat konfiguracji wideookulograficznej można znaleźć w wcześniej opublikowanych raportach12,13. Aby przyzwyczaić myszy do ograniczonych warunków nagrywania, dzień przed rozpoczęciem nagrywania umieść zwierzę na rurze na środku gramofonu na 10 minut, nie wykonując żadnego testu.
- Przymocuj mysz do gramofonu, mocując ją głową za pomocą wkręconych w słupek główny. Umieść kopułę ekranu otaczającą zwierzę i wyłącz wszystkie światła w pomieszczeniu z wyjątkiem projektora optokinetycznego.
UWAGA: Nagrania wideookulograficzne wymagają, aby zwierzę było nieruchome i miało otwarte oczy. Przerwij sesję nagraniową i umieść zwierzę z powrotem w klatce na wypadek, gdyby mysz nie miała dobrowolnie otwartych oczu lub jeśli wygląd oka pogorszył się podczas sesji nagraniowej. Kolejną próbę można podjąć po okresie odpoczynku trwającym co najmniej 12 godzin. - Rozpocznij stymulację pełnego pola OKR (projekcja wzoru białej kropki) i nagrywaj z kilkoma różnymi prędkościami zarówno w kierunku zgodnym z ruchem wskazówek zegara, jak i przeciwnym do ruchu wskazówek zegara. Jak tylko nagrania się skończą, zdejmij kopułę.
- Aby móc nagrać VOR w całkowitej ciemności, nałóż kroplę 2% pilokarpiny na oczy14. Odczekaj co najmniej 5 minut, aż zacznie działać i delikatnie usuń go bawełnianym wacikiem. Pilokarpina będzie utrzymywać źrenicę zwężoną ze stałym rozmiarem przez cały czas pomiarów, umożliwiając właściwą kwantyfikację ruchów w ciemności.
- Wyłącz wszystkie światła w pokoju i dodaj pudełko na górze gramofonu, aby zwierzę było w całkowitej ciemności. Rozpocznij poziomy VOR, używając sinusoidalnych obrotów kątowych wokół osi pionowej o różnych częstotliwościach i/lub różnych prędkościach.
- Po zakończeniu sesji nagraniowej umieść mysz z powrotem w klatce odpowiednio oświetlonej lampą na podczerwień. Ciepło zapobiegnie hipotermii spowodowanej wtórnym działaniem pilokarpiny na ciało myszy na rozszerzenie naczyń krwionośnych.
UWAGA: Ze względu na skrępowanie zwierzęcia sesje nagraniowe nie mogą trwać dłużej niż 90 minut. Gdy potrzebne są dodatkowe sesje testowe, pozwól zwierzęciu odpocząć przez 24 godziny między sesjami.
Wyniki
Poniższe rysunki ilustrują wyniki uzyskane u myszy, które przeszły 2-tygodniowy protokół adaptacyjny z użyciem urządzenia w paski lub urządzenia pozorowanego (sham). Rysunek 3 przedstawia przykład surowych zapisów zarejestrowanych podczas sesji pomiarowych. Jak wynika z porównania zapisów, odpowiedź VOR ulega zmniejszeniu po zastosowaniu protokołu VVM (Rysunek 3A, przed i po zastosowaniu urządzenia w paski). VOR u myszy w grupie pozorowanej pozostał niezmieniony po adaptacji (Rysunek 3A, przed i po zastosowaniu urządzenia pozorowanego). OKR myszy noszących urządzenie w paski (Rysunek 3B) jest porównywalny z okresem poprzedzającym protokół VVM oraz z wynikami myszy z grupy pozorowanej. Rysunek 4 przedstawia przykład kwantyfikacji średnich wzmocnień VOR przy stałej częstotliwości 0.5 Hz i prędkości 40 stopni na sekundę, przed i po protokole VVM, zarówno dla urządzeń w paski, jak i pozorowanych. Odnotowano znaczny spadek wzmocnienia po tym, jak myszy nosiły urządzenie w paski, podczas gdy u myszy z grupy pozorowanej nie wystąpiły istotne zmiany wzmocnienia. Efekty zmniejszenia VOR testowane przy różnych prędkościach/częstotliwościach zostały opisane przez Carcaud i wsp.11 oraz Idoux i wsp.15.
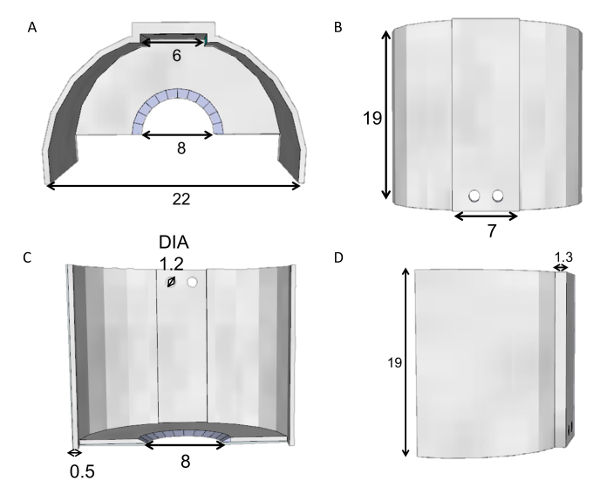
Rycina 1: Przedstawienie urządzenia na głowę wraz z wymiarami w milimetrach. Widoki: (A) z tyłu, (B) z boku, (C) z dołu oraz (D) z góry. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
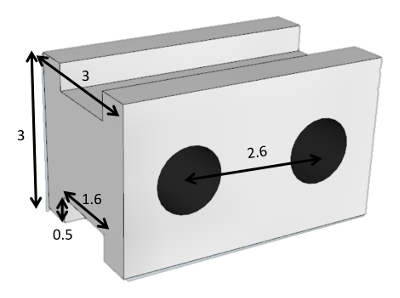
Rycina 2: Przedstawienie headpostu z wymiarami w milimetrach. Ten lekki (0,2 g) plastikowy headpost z poli(kwasu mlekowego), mocowany podczas operacji implantacji, umożliwia zablokowanie urządzenia adaptacyjnego na myszy oraz unieruchomienie głowy zwierzęcia na obrotowym stole podczas sesji wideookulografii. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
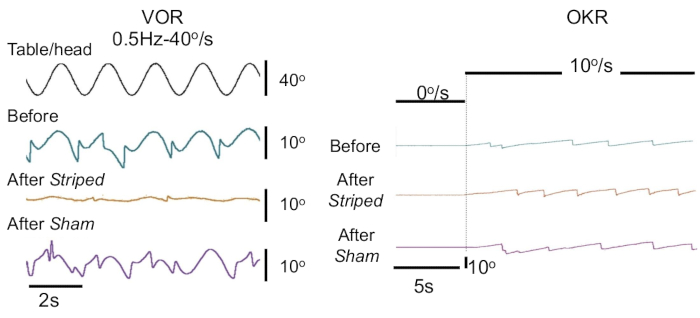
Rysunek 3: Przykładowe surowe zapisy ruchów gałek ocznych podczas stymulacji VOR i OKR. (A, lewo) Po lewej: VOR wykonany przy 0.5 Hz i 40 °/s oraz (B, prawo) stymulacja optokinetyczna ze stałą prędkością 10 °/s (czarna linia), w kierunku zgodnym z ruchem wskazówek zegara, przed (zielone linie) i po (żółte) zastosowaniu urządzenia prążkowanego lub pozorowanego (fioletowe). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
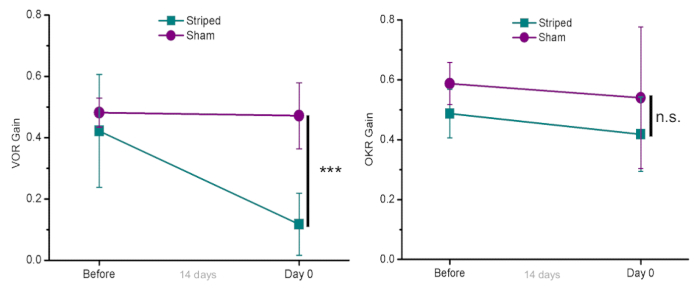
Rycina 4: Przykładowe średnie wartości wzmocnienia VOR i OKR po adaptacji do urządzenia z pasami lub urządzenia pozorowanego. Wzmocnienia wykreślono w funkcji czasu (dni) dla urządzeń z pasami (n = 10) i pozorowanych (n = 6) przy stymulacjach 40°/s i 0.5 Hz dla VOR (lewo) oraz 10 °/s w kierunku zgodnym z ruchem wskazówek zegara dla OKR (prawo). Na osi czasu dzień „before” oznacza dzień bezpośrednio poprzedzający adaptację, a „day 0” oznacza dzień usunięcia urządzenia. Słupki błędów reprezentują odchylenie standardowe, ***p < 0.001, brak istotności statystycznej. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
| Punkty | Zmiany masy ciała | Wygląd zewnętrzny | Zachowanie |
| 0 | brak lub przyrost masy ciała | standard | brak oznak stresu i prawidłowa lokomocja |
| 1 | utrata masy ciała <10% | brak pielęgnacji ciała | zaburzenia lokomocji lub orientacji w klatce |
| 2 | utrata masy ciała w przedziale od 10% do 20% | odwodnienie | -- |
| 3 | utrata masy ciała >20% | rany | tyki nerwowe (np. drapanie, gryzienie) |
Tabela 1: Skala jakościowa do oceny dobrostanu. Wymieniono parametry jakościowe, które należy oceniać przez cały czas trwania protokołu. Suma punktów za zmiany masy ciała, wygląd zewnętrzny i zachowanie nie powinna przekraczać czterech punktów.
Plik uzupełniający 1. Device.stl. Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 2. Headpost.stl. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Opisane tutaj długotrwałe zaburzenia czuciowe polegają na niedopasowaniu wzrokowo-przedsionkowym wytwarzanym u swobodnie zachowujących się myszy. Aby wszczepić urządzenie, które myszy noszą przez 14 dni, przeprowadza się prostą i krótką operację przy użyciu dostępnego na rynku zestawu chirurgicznego. Myszy wracają do zdrowia w czasie krótszym niż 1 godzina po tej procedurze implantacji głowy i nie wykazują żadnych związanych z tym oznak stresu. Następnie, w podanym przykładzie zastosowania tego protokołu, VOR i OKR są mierzone za pomocą techniki wideookulograficznej. Niemniej jednak ten indukowany przez urządzenie protokół długoterminowego uczenia się może być stosowany w różnych eksperymentach, takich jak elektrofizjologia in vitro 1, obrazowanie neuronów i różne testy behawioralne. Uzasadnienie rozwoju tej techniki zostało zainspirowane metodologią opartą na pryzmacie stosowaną u ludzi i małp. Ta technika różni się jednak tym, że raczej upośledza niż modyfikuje widzenie. Stanowi więc (w obecnej formie) skrajny przypadek niedopasowania wzrokowo-przedsionkowego. Autorzy uważają, że dostarczone informacje techniczne mogą być przydatne do zaprojektowania wersji urządzenia przypominającej pryzmat lub dalszego rozwoju konkretnych urządzeń ograniczających funkcje16.
Wykonane z lekkiego (0,9 g) tworzywa sztucznego z poli(kwasu mlekowego) urządzenie na głowę zostało zaprojektowane tak, aby pasowało do głowy młodej dorosłej myszy, umożliwiając ochronę pyska i pozostawiając wystarczająco dużo miejsca z boku, aby zwierzę mogło się oczyścić. Przednia część tego urządzenia odsłania koniec pyska, aby umożliwić zachowania związane z karmieniem i pielęgnacją. Urządzenie jest lekko nieprzezroczyste, dzięki czemu zwierzę jest pozbawione precyzyjnego widzenia otoczenia, ale nadal otrzymuje stymulację luminancją. Implantacje pasiaste i pozorowane są testowane w celu zapewnienia, że mierzone efekty wynikają przede wszystkim z niedopasowania wzrokowo-przedsionkowego spowodowanego sygnałem wizualnym o wysokim kontraście podczas samodzielnie generowanych ruchów urządzenia pasiastego, a nie modyfikacją proprioceptywną (tj. ciężarem urządzenia przyłożonego do głowy i szyi myszy).
Eksperymentalnie myszy, które nosiły urządzenie w paski, wykazały znaczny spadek przyrostu VOR o 50% po okresie uczenia się; Mimo to może istnieć zmienność międzyosobnicza dla bezwzględnych wartości wzmocnienia. Myszy pozorowane nie wykazywały znaczących zmian wzmocnienia VOR, co pokazuje, że redukcja VOR jest spowodowana konfliktem sensorycznym, a nie upośledzeniem motorycznym. Ponadto młode myszy (17. Z tego powodu przy planowaniu eksperymentu należy wziąć pod uwagę wiek zwierząt. Wreszcie, wyżej wymienione kryteria wykluczenia myszy (sekcja 4.5) są kluczowym krokiem, który należy wykonać, aby zapewnić dobre samopoczucie, a także uzyskać wiarygodne wyniki.
Jedną z zalet tego protokołu jest czas, który oszczędza eksperymentatorom w okresie uczenia się, w porównaniu z innymi typami protokołów adaptacyjnych VOR/OKR. Do tej pory adaptację VOR u myszy badano poprzez mocowanie głowy i szkolenie zwierzęcia na obrotowym stoleobrotowym 6,8,18,19, co jest czasochłonne, zwłaszcza gdy trzeba trenować wiele zwierząt. Prezentowany protokół pozwala na szkolenie kilku zwierząt jednocześnie i oszczędza czas. Ponadto w tych klasycznych eksperymentach treningi są zazwyczaj ograniczone do 1 godziny dziennie, co pozostawia długie okresy domniemanego oduczania się, które powodują, że adaptacja jest iteracyjną przemianą uczenia się/oduczania o różnej dynamice20. W tym przypadku mocowanie urządzenia na głowie pozwala na nieprzerwaną naukę. Kolejną zaletą jest to, że ponieważ okres uczenia się jest generowany w swobodnie zachowującej się sytuacji bez głowy, myszy są w stanie uczyć się poprzez szereg naturalnych ruchów głowy, które są aktywnie generowane. W klasycznych protokołach zwierzę jest unieruchomione głową, podczas gdy jest biernie obracane na gramofonie, tak że uczenie się odbywa się przy określonej stymulacji (jedna częstotliwość, jedna prędkość)21, która nie odzwierciedla naturalnego zakresu ruchów głowy. Ważne jest, aby pamiętać, że układ przedsionkowy koduje ruchy inaczej, gdy są one aktywnie generowane przez podmiot lub gdy są stosowane zewnętrznie10; W związku z tym mechanizmy komórkowe uruchamiane w obu sytuacjach mogą się również różnić.
Ogólnie rzecz biorąc, opisana metodologia nadaje się do połączonych badań in vivo/in vitro nad długoterminowymi adaptacjami sensorycznymi występującymi po konflikcie wzrokowym i/lub niedopasowaniu wzrokowo-przedsionkowym u swobodnie zachowujących się myszy. Konflikty sensoryczne są uznaną przyczyną choroby lokomocyjnej, która jest dziedziną, która ostatnio przyciągnęła myszy 22,23. Niedawno wykazano, że adaptacja wzmocnienia spowodowana użyciem tego urządzenia zapewnia ochronę przed chorobą lokomocyjną, gdy myszy są narażone na prowokacyjny bodziec15. W związku z tym protokół ten może być wykorzystany do identyfikacji mechanizmów komórkowych leżących u podstaw adaptacji do konfliktu sensorycznego, a także do opracowania metod leczenia choroby lokomocyjnej.
Oświadczenia
Autorzy deklarują brak konfliktu interesów.
Podziękowania
Dziękujemy Patrice Jegouzo za rozwój i produkcję urządzeń głównych oraz słupków. Dziękujemy również P. Calvo, A. Mialotowi i E. Idoux za pomoc w rozwoju poprzednich wersji urządzenia i protokołu VVM.
Ta praca została sfinansowana przez Centre National des Etudes Spatiales, CNRS i Université Paris Descartes. J. C. i M. B. otrzymują wsparcie od francuskiego ANR-13-CESA-0005-02. F. F. B. i M. B. otrzymują wsparcie od francuskiego ANR-15-CE32-0007.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Drukarka 3D | Ulimaker, USA | S5 | |
| nożyczki | FST | 14079-10 | |
| Catalyst V | Sun Medical, Japonia | LX22 | Biomateriały Parkell, Zestaw n° S380 |
| Dentalon Plus | Heraeus | 37041 | |
| System i oprogramowanie do śledzenia ruchu gałek ocznych | Iscan | ETN200 | |
| Zielony aktywator | Sun Medical, Japonia | VE-1 | Biomateriały Parkell, zestaw n° S380 |
| Monomer | Sun Medical, Japonia | MF-1 | Biomateriały Parkell, zestaw n° S380 |
| Ocrygel | TvmLab | 10779 | Okulistyczna maść weterynaryjna |
| Polimer bezbarwny typu L (cement) | Sun Medical, Japonia | TT12F | Biomateriały Parkell, Zestaw n° Oprogramowanie |
| Sketchup | Trimble | używane do tworzenia gotowego do druku pliku projektowego urządzenia | |
| Gramofon | Niedostępne w sprzedaży |
Bibliografia
- Blazquez, P. M., Hirata, Y., Highstein, S. M. The vestibulo-ocular reflex as a model system for motor learning: what is the role of the cerebellum. Cerebellum. 3 (3), 188-192 (2004).
- Berthoz, A., Jones, G. M., Begue, A. E. Differential visual adaptation of vertical canal-dependent vestibulo-ocular reflexes. Experimental Brain Research. 44 (1), 19-26 (1981).
- Melvill Jones, G., Guitton, D., Berthoz, A. Changing patterns of eye-head coordination during 6 h of optically reversed vision. Experimental Brain Research. 69 (3), 531-544 (1988).
- Anzai, M., Kitazawa, H., Nagao, S. Effects of reversible pharmacological shutdown of cerebellar flocculus on the memory of long-term horizontal vestibulo-ocular reflex adaptation in monkeys. Neuroscience Research. 68 (3), 191-198 (2010).
- Nagao, S., Honda, T., Yamazaki, T. Transfer of memory trace of cerebellum-dependent motor learning in human prism adaptation: a model study. Neural Networks. 47, 72-80 (2013).
- Boyden, E. S., Raymond, J. L. Active reversal of motor memories reveals rules governing memory encoding. Neuron. 39 (6), 1031-1042 (2003).
- Raymond, J. L., Lisberger, S. G. Behavioral analysis of signals that guide learned changes in the amplitude and dynamics of the vestibulo-ocular reflex. Journal of Neuroscience. 16 (23), 7791-7802 (1996).
- Rinaldi, A., et al. HCN1 channels in cerebellar Purkinje cells promote late stages of learning and constrain synaptic inhibition. Journal of Physiology. 591 (22), 5691-5709 (2013).
- Roy, J. E., Cullen, K. E. Dissociating self-generated from passively applied head motion: neural mechanisms in the vestibular nuclei. Journal of Neuroscience. 24 (9), 2102-2111 (2004).
- Cullen, K. E. The vestibular system: multimodal integration and encoding of self-motion for motor control. Trends in Neurosciences. 35 (3), 185-196 (2012).
- Carcaud, J., et al. Long-Lasting Visuo-Vestibular Mismatch in Freely-Behaving Mice Reduces the Vestibulo-Ocular Reflex and Leads to Neural Changes in the Direct Vestibular Pathway. eNeuro. 4 (1), (2017).
- Stahl, J. S. Using eye movements to assess brain function in mice. Vision Research. 44 (28), 3401-3410 (2004).
- de Jeu, M., De Zeeuw, C. I. Video-oculography in mice. Journal of Visualized Experiments. (65), e3971(2012).
- van Alphen, B., Winkelman, B. H., Frens, M. A. Three-dimensional optokinetic eye movements in the C57BL/6J mouse. Investigative Ophthalmology and Visual Science. 51 (1), 623-630 (2010).
- Idoux, E., Tagliabue, M., Beraneck, M. No Gain No Pain: Relations Between Vestibulo-Ocular Reflexes and Motion Sickness in Mice. Frontiers in Neurology. 9 (918), (2018).
- Yoshida, T., Ozawa, K., Tanaka, S. Sensitivity profile for orientation selectivity in the visual cortex of goggle-reared mice. PloS One. 7 (7), 40630(2012).
- Faulstich, B. M., Onori, K. A., du Lac, S. Comparison of plasticity and development of mouse optokinetic and vestibulo-ocular reflexes suggests differential gain control mechanisms. Vision Research. 44 (28), 3419-3427 (2004).
- Schonewille, M., et al. Purkinje cell-specific knockout of the protein phosphatase PP2B impairs potentiation and cerebellar motor learning. Neuron. 67 (4), 618-628 (2010).
- Kimpo, R. R., Rinaldi, J. M., Kim, C. K., Payne, H. L., Raymond, J. L. Gating of neural error signals during motor learning. eLife. 3, 02076(2014).
- Kimpo, R. R., Boyden, E. S., Katoh, A., Ke, M. C., Raymond, J. L. Distinct patterns of stimulus generalization of increases and decreases in VOR gain. Journal of Neurophysiology. 94 (5), 3092-3100 (2005).
- Hubner, P. P., Khan, S. I., Migliaccio, A. A. Velocity-selective adaptation of the horizontal and cross-axis vestibulo-ocular reflex in the mouse. Experimental Brain Research. 232 (10), 3035-3046 (2014).
- Wang, J., et al. Storage of passive motion pattern in hippocampal CA1 region depends on CaMKII/CREB signaling pathway in a motion sickness rodent model. Scientific Reports. 7, 43385(2017).
- Wang, Z. B., et al. Low level of swiprosin-1/EFhd2 in vestibular nuclei of spontaneously hypersensitive motion sickness mice. Scientific Reports. 7, 40986(2017).
Przedruki i uprawnienia
