Ten eksperymentalny protokół łączył śledzenie ruchu gałek ocznych i ocenę preakkadowej wrażliwości wzrokowej w paradygmacie podwójnego zadania, składającego się z zadania sakad wolnego wyboru i zadania dyskryminacji wizualnej, aby zbadać rozmieszczenie wizualnej uwagi przestrzennej przed zarówno dokładnymi, jak i uśredniającymi sakkadami.
Artykuł metodologiczny
Badanie rozmieszczenia uwagi wzrokowej przed dokładnymi i uśredniającymi sakkadami poprzez śledzenie ruchu gałek ocznych i ocenę wrażliwości wzrokowej
W tym artykule
Podsumowanie
Streszczenie
Ten eksperymentalny protokół został zaprojektowany w celu zbadania, czy uwaga wzrokowa jest obowiązkowo stosowana na końcu sakkad. W tym celu zarejestrowaliśmy pozycję oczu uczestników zaangażowanych w zadanie sakkady za pomocą śledzenia wzroku i oceniliśmy skuteczność dyskryminacji orientacji wzrokowej w różnych miejscach podczas przygotowania sakkady. Co ważne, zamiast stosować pojedynczy paradygmat docelowy sakady, dla którego punkt końcowy sakady zwykle pokrywa się z celem, protokół ten obejmował prezentację dwóch pobliskich celów sakadowych, co prowadziło do wyraźnej dysocjacji przestrzennej między lokalizacjami docelowymi a punktem końcowym sakad w znacznej liczbie prób. Paradygmat pozwolił nam porównać preakkadową dyskryminację wzrokową na punkcie końcowym dokładnych sakkad (lądowanie na jednym z celów sakadowych) i sakkad uśredniających (lądowanie w miejscu pośrednim pomiędzy dwoma celami). Zaobserwowaliśmy selektywne zwiększenie wrażliwości wzrokowej w punkcie końcowym dokładnych sakkad, ale nie w punkcie końcowym sakkad uśredniających. Raczej, przed wykonaniem sakkad uśredniających, wrażliwość wzrokowa była w równym stopniu zwiększona w obu celach, co sugeruje, że uśrednianie sakad wynika z nierozwiązanej selekcji uwagi wśród celów sakadowych. Wyniki te przemawiają przeciwko obowiązkowemu sprzężeniu między uwagą wzrokową a programowaniem sakad w oparciu o bezpośrednią miarę preakkadowej wrażliwości wzrokowej, a nie czasy reakcji sakkady, które zostały wykorzystane w innych protokołach do wyciągnięcia podobnych wniosków. Chociaż nasz protokół zapewnia użyteczne ramy do badania związku między uwagą wzrokową a sakkadowymi ruchami gałek ocznych na poziomie behawioralnym, można go również połączyć ze środkami elektrofizjologicznymi w celu rozszerzenia wglądu na poziomie neuronalnym.
Wprowadzenie
Zgromadzone dowody przemawiają za silnym sprzężeniem między kontrolą okoruchową a uwagą. Wpływowa premotoryczna teoria uwagi1,2 dostarcza szczególnie ścisłego wyjaśnienia dotyczącego tego sprzężenia, sugerując, że ukryte przesunięcia uwagi wzrokowej odpowiadają programowaniu sakkadowemu bez późniejszego wykonania. Rzeczywiście, wspólne neuronalne korelaty kontroli uwagi i okulomotorycznej zostały zidentyfikowane za pomocą funkcjonalnego rezonansu magnetycznego (fMRI)3, a podprogowa mikrostymulacja przedniego pola oka (FEF) i górnego wzgórka (SC) daje korzyści w zakresie uwagi, mierzone zarówno behawioralnie, jak i elektrofizjologicznie w pozycji stymulowanego pola ruchu, nawet jeśli nie są indukowane żadne ruchy gałek ocznych4, 5,6,7. Eksperymenty psychofizyczne wykazały ponadto, że uwaga wzrokowa jest konsekwentnie przenoszona w kierunku celu sakkady podczas przygotowania okoruchowego8,9. Jednak dysocjacje na poziomie neuronalnym10,11,12 oraz obserwacje, że przygotowanie do sakkad niekoniecznie pociąga za sobą odpowiednie przesunięcie uwagi13,14,15,16 poddają w wątpliwość obowiązkowe sprzężenie między programowaniem sakkad a wizualną przestrzenią uwaga.
Tutaj ponownie przyjrzeliśmy się naturze sprzężenia między uwagą a programowaniem okulomotorycznym na poziomie behawioralnym, używając podwójnego zadania, które obejmowało zadanie sakady wolnego wyboru i zadanie wizualnej dyskryminacji. Co istotne, w połowie prób dwa cele sakkadowe zostały zaprezentowane w odległości kątowej 30°, co dało wyraźny efekt globalny17,18,19,20 związane ze znaczną liczbą sakkad lądujących pomiędzy dwoma celami (uśrednianie sakkad). Ponieważ losowo przedstawiliśmy cel dyskryminacji na krótko przed wystąpieniem sakad w jednej z 24 równoodległych lokalizacji (w tym dwóch lokalizacji docelowych sakad, lokalizacji pomiędzy nimi i 21 lokalizacji kontrolnych), byliśmy w stanie ocenić i porównać preakkadowe rozmieszczenie uwagi wzrokowej, gdy cel sakady i punkt końcowy sakady były albo przestrzennie powiązane (dokładne sakady), albo zdysocjowane (sakkady uśredniające).
Aby sprawdzić, czy uwaga wzrokowa jest obowiązkową konsekwencją programowania okulomotorycznego, a zatem zawsze przesuwa się w kierunku punktu końcowego sakkady, przeanalizowaliśmy wrażliwość wzrokową dla wszystkich 24 lokalizacji w funkcji kierunku lądowania sakkady. Podczas gdy dokładne sakady wiązały się ze stałym preakkadowym wzmocnieniem wrażliwości wzrokowej w ich punkcie końcowym, nie znaleźliśmy takiego wzmocnienia w punkcie końcowym sakkad uśredniających. Ta dysocjacja wyklucza obowiązkowe sprzężenie uwagi wzrokowej z wykonanym programem okoruchowym na poziomie behawioralnym i sugeruje, że kontrola uwagowa i okoruchowa są dysocjujące na pewnym etapie przetwarzania korowego lub podkorowego. Co ważne, zaobserwowaliśmy równe zwiększenie wrażliwości wzrokowej na dwóch celach sakkad przed uśrednieniem sakkad, co sugeruje, że globalny efekt wynika z nierozstrzygniętego wyboru celu sakad przed wystąpieniem sakkady.
Protokół
Ten protokół został opracowany zgodnie z wymaganiami etycznymi określonymi przez Ludwig-Maximilians-Universität München i za zgodą rady etyki wydziału.
1. Uczestnicy
- Zrekrutuj wystarczającą liczbę naiwnych uczestników z normalnym lub skorygowanym do normalnego widzeniem i bez zaburzeń neurologicznych lub psychiatrycznych. Zaleca się 10 uczestników na podstawie podobnych, najnowszych protokołów21,22.
nuta: Ogólnie rzecz biorąc, zrekrutowaliśmy 13 uczestników (w wieku 20-28 lat, 7 kobiet, 12 z dominacją prawego oka, 1 autor), z których 3 zostały wykluczone z końcowej analizy, ponieważ ich wyniki w zakresie dyskryminacji orientacji pozostały na poziomie szansy we wszystkich badanych lokalizacjach.
2. Konfiguracja eksperymentalna
- Przeprowadź eksperyment w cichym i słabo oświetlonym pomieszczeniu pod nadzorem doświadczonego eksperymentatora zaznajomionego ze śledzeniem ruchu gałek ocznych i wszystkimi innymi elementami eksperymentu.
- Przygotuj zestaw eksperymentalny składający się z komputera, monitora kineskopowego (CRT), standardowej klawiatury, dwóch głośników i urządzenia śledzącego ruch gałek ocznych (patrz tabela materiałów).
- Sekwencjonuj i kontroluj eksperyment za pomocą odpowiedniego oprogramowania (patrz tabela materiałów). Napisz skrypt, który można uruchomić w oprogramowaniu, aby automatycznie załadować i uruchomić eksperyment dla każdego uczestnika (https://github.com/mszinte/CompAttExo). Upewnij się, że skrypt koduje wszystkie niezbędne parametry eksperymentalne i implementuje prezentację bodźców, a także zbieranie danych behawioralnych i wzrokowych.
- Wyświetlaj wszystkie bodźce wizualne na ekranie CRT z minimalną częstotliwością odświeżania w pionie 120 Hz. Zapewnij prawidłowe wyświetlanie wizualnych gaborów poprzez linearyzację gamma ekranu eksperymentalnego.
- Oceń ocenę uczestników dotyczącą orientacji celu dyskryminacji (przeciwnie do ruchu wskazówek zegara vs. zgodnie z ruchem wskazówek zegara) za pomocą strzałek w lewo i w prawo na standardowej klawiaturze.
- Przekazuj dźwiękową informację zwrotną przez głośniki w przypadku nieprawidłowych reakcji ręcznych.
3. Śledzenie ruchu gałek ocznych
- Rejestruj spojrzenie dominującego oka uczestników z częstotliwością próbkowania co najmniej 1 kHz przez cały czas trwania eksperymentu za pomocą urządzenia śledzącego ruch gałek ocznych.
- Poproś uczestnika, aby usiadł wygodnie na krześle, położył podbródek na podbródku i oparł czoło o drążek, aby ograniczyć ruchy głowy podczas eksperymentu. Indywidualnie dostosuj wysokość krzesła, podbródka i listwy na czoło tak, aby oczy uczestników były wyrównane ze środkiem monitora eksperymentalnego.
- Indywidualna kalibracja eye trackera
- Przed każdym blokiem eksperymentalnym (czas trwania: około 10 min) i zawsze, gdy jest to konieczne (np. po zauważalnych ruchach głowy i wynikających z nich przesunięciach szacowanego utrwalenia), należy przeprowadzić procedurę kalibracji, aby zagwarantować, że wzrok uczestników może być dokładnie śledzony w promieniu 1°.
nuta: W tym przypadku zastosowaliśmy 13-punktową procedurę kalibracji, aby uzyskać dokładne oszacowanie charakterystycznych odbić światła (odbicie źrenicy i rogówki) śledzonego oka w funkcji spojrzenia.- Poproś uczestnika, aby podążał wzrokiem za kropką poruszającą się w różnych miejscach na ekranie, aby ocenić pozycję swojego spojrzenia.
- Powtórz procedurę z obrotem punktu o 30° i porównaj zmierzoną pozycję spojrzenia z szacowaną pozycją spojrzenia, aby potwierdzić wstępną kalibrację. Kalibrację można uznać za dokładną, gdy uśredniona różnica między szacowaną pozycją spojrzenia po etapie kalibracji a zmierzoną pozycją spojrzenia na etapie walidacji jest mniejsza niż 1°.
- Powtórz procedurę kalibracji za każdym razem, gdy uczestnik wielokrotnie przerywa fiksację, aby zagwarantować wysoką dokładność śledzenia przez cały czas trwania eksperymentu.
- Przed każdym blokiem eksperymentalnym (czas trwania: około 10 min) i zawsze, gdy jest to konieczne (np. po zauważalnych ruchach głowy i wynikających z nich przesunięciach szacowanego utrwalenia), należy przeprowadzić procedurę kalibracji, aby zagwarantować, że wzrok uczestników może być dokładnie śledzony w promieniu 1°.
- Podczas eksperymentu monitoruj prawidłowe fiksowanie w centrum ekranu na początku każdej próby. Próbę należy rozpocząć tylko wtedy, gdy wzrok pozostaje w promieniu 2° wokół centralnego celu fiksacji przez co najmniej 200 ms.
4. Instrukcje
- Przekaż uczestnikom jasne instrukcje dotyczące zadań. Przedstaw instrukcje dotyczące zadania co najmniej raz na początku każdej sesji eksperymentalnej w formie tekstu pisanego, wraz z wizualizacją chronologii badania. Zachęć uczestników do uważnego przeczytania instrukcji i zadania pozostałych pytań eksperymentatorowi.
UWAGA: Instrukcje, które są prezentowane uczestnikom przed każdym blokiem, są pokazane w Rysunek 1.- Poinstruuj uczestnika, aby na początku każdej próby skupił się na środku ekranu.
- Poinformuj uczestnika, że na ekranie pojawią się 24 migoczące strumienie dystraktora, a dwa z nich będą sygnalizowane białymi ramkami, które albo zostaną krótko, albo pozostaną na ekranie do końca próby.
- Poproś uczestnika, aby według własnego wyboru wykonał sakkadę w kierunku środka jednego z dwóch strumieni dystraktora. Podkreśl, że uczestnicy powinni poruszać oczami tak szybko i dokładnie, jak to możliwe po nadejściu wskazówek.
- Poinformuj uczestnika, że przez krótki czas trwania badania przechylony Gabor będzie prezentowany losowo w jednym z 24 strumieni dystraktora.
- Poproś uczestnika, aby ręcznie zgłosił, czy przechylony Gabor został obrócony zgodnie z ruchem wskazówek zegara, czy przeciwnie do ruchu wskazówek zegara względem pionu, naciskając odpowiednio strzałkę w prawo lub w lewo na klawiaturze. Wyjaśnij, że dźwięk zostanie odtworzony, jeśli orientacja przechylonego Gabora jest zgłaszana nieprawidłowo.
5. Projekt eksperymentalny, bodźce i chronologia prób
- Upewnij się, że eksperyment został podzielony na co najmniej dwie sesje eksperymentalne w różne dni, aby zagwarantować koncentrację uczestników przez cały czas trwania eksperymentu. W ramach sesji eksperymentalnej poproś uczestników o zrobienie krótkich przerw między kolejnymi blokami.
nuta: Eksperyment ten składał się z 24 bloków, z których każdy zawierał 290 poprawnych prób online (wszystkie próby bez przerw w fiksacji i z początkiem sakady między 50 a 350 ms po rozpoczęciu sakad docelowych; nieprawidłowe próby powtórzono na końcu bloku), co dało łączny czas trwania około 5 godzin. - Celowo wstępnie zdefiniuj cechy bodźca (kolor, luminancję i rozmiar), czas bodźca i odległość widzenia, która zapewnia pożądany rozmiar bodźca kątowego. Podczas gdy większość cech bodźców wzrokowych (np. rozmiar, luminancja i kontrast) można dostosować do określonych celów eksperymentalnych opartych na pilotażu, precyzyjne wyczucie czasu bodźca ma kluczowe znaczenie dla oceny uwagi wzrokowej w okresie przedakkadowym.
- Bodźce i chronologia procesu
- Prezentuj wszystkie bodźce na szarym (~19,5 cd/m2) tle, aby zminimalizować efekty wizualne i ekranowe.
nuta: Wizualizację procedury eksperymentalnej można znaleźć w Rysunek 2. - Na początku próby należy przedstawić cel fiksacji (FT) w postaci czarnego (~0 cd/m2) i białego (~57 cd/m2) "strzału w dziesiątkę" (promień 0,4°) na środku ekranu. Usuń cel fiksacji z ekranu wraz z początkiem tarcz sakkadowych.
- Wyświetlić 24 równomiernie rozmieszczone strumienie dystraktora (DS) w promieniu 10° od celu fiksacji na początku próby. Używaj bodźców dynamicznych, zmieniając się co 25 ms (40 Hz) między pionową plamą Gabora (częstotliwość: 2,5 cpd; 100 % kontrastu; losowo wybierana faza przy każdym odświeżaniu strumienia; SD okna Gaussa: 1,1°; średnia luminancja: ~28,5 cd/m2) oraz gaussowska maska szumów pikseli (złożona z pikseli o szerokości około 0,22° z taką samą obwiednią gaussowską jak gabory).
nuta: Użycie migotania szumu pomaga zminimalizować przechwytywanie uwagi z powodu nagłych początków, które są zwykle związane z bodźcami statycznymi, a tym samym zmniejsza wykrywalność celu dyskryminacji bez jednoczesnego selektywnego wdrażania uwagi21. - Pomiędzy 300 a 600 ms (w krokach co częstotliwość odświeżania ekranu ~8 ms) po nadejściu celu fiksacji, przedstaw dwa cele sakkadowe (ST1 i ST2) w postaci szarych kółek (~39 cd/m2; promień 1,1°; szerokość 0,2°) otaczające dwa losowo wybrane strumienie dystraktora. Upewnij się, że czas wystąpienia docelowego sakad różni się od próby do próby, aby uniknąć sytuacji, w której uczestnicy przyjmują predykcyjny wzorzec wykonywania sakad.
- Losowo przedstawić dwa cele sakkadowe w odległości kątowej 30° lub 90° w poprzek prób.
- Losowo wyświetlaj cele sakkady przez 50 ms (przejściowy stan podpowiedzi: tST1+2) lub do końca próby (ciągły warunek podpowiedzi: cST1+2) we wszystkich próbach.
- Losowo przedstawić cel dyskryminacji (DT) w jednym z 24 strumieni dystraktorów i w okresie od 75 do 175 ms po wystąpieniu celów sakkadowych. Wyświetlaj cel dyskryminacji, pochyloną łatkę Gabora, obróconą zgodnie z ruchem wskazówek zegara lub przeciwnie do ruchu wskazówek zegara o 12 ° w stosunku do pionu, przez 25 ms, aby zastąpić pionową łatkę Gabora w losowo wybranym strumieniu dystraktora. Wybierz okno czasowe prezentacji celu dyskryminacji, aby zmaksymalizować liczbę prób, w których przesunięcie docelowej dyskryminacji wystąpiło przed wystąpieniem sakady.
nuta: Zastosowany poziom nachylenia celu dyskryminacji został uzyskany na podstawie testów wstępnych, których celem było uzyskanie wydajności dyskryminacji wizualnej powyżej poziomu szansy w obserwowanych lokalizacjach. Poziom nachylenia można ogólnie zmienić, ale eksperymentatorzy powinni najpierw sprawdzić, czy uczestnicy są w stanie prawidłowo rozróżnić kąt docelowy, przynajmniej w wskazanych miejscach. - Usuń wszystkie bodźce z ekranu 500 ms po rozpoczęciu sakkad celów tak, aby pozostało tylko szare tło.
- Poczekaj, aż uczestnik wskaże orientację celu dyskryminacji za pomocą klawiatury (naciskając strzałkę w lewo w przypadku orientacji przeciwnej do ruchu wskazówek zegara i strzałkę w prawo w przypadku orientacji zgodnej z ruchem wskazówek zegara) i odtwórz dźwięk informacji zwrotnej za każdym razem, gdy uczestnicy zgłoszą nieprawidłową orientację celu dyskryminacji. Automatyczne uruchamianie następnej wersji próbnej po udzieleniu ręcznej odpowiedzi.
- Prezentuj wszystkie bodźce na szarym (~19,5 cd/m2) tle, aby zminimalizować efekty wizualne i ekranowe.
6. Wstępne przetwarzanie i analiza danych
- Przetwarzaj zarejestrowane dane dotyczące oka przed przystąpieniem do końcowej analizy danych. Obejmują one wyłącznie próby, w których uczestnik utrzymywał fiksację w promieniu 2° wokół celu fiksacji bez mrugnięcia okiem i inicjował lądowanie sakkadowe między 7° a 13° od celu fiksacji (tj. w granicach ± 30 % zalecanego rozmiaru sakady). Upewnij się, że wszystkie pomiary wrażliwości wzrokowej zostały zebrane w okresie preakkady, uwzględniając tylko te próby, w których przesunięcie docelowego celu dyskryminacji nastąpiło przed wystąpieniem sakady.
nuta: Ogółem 75,7% wszystkich badań uwzględniono w analizach końcowych po wstępnym przetworzeniu danych dotyczących oczu. - Aby przeanalizować dane w funkcji położenia celu dyskryminacji względem położenia celów sakkadowych, należy obrócić konfigurację bodźca każdej próby tak, aby wyrównać lokalizacje docelowe sakkad symetrycznie wokół kąta geometrycznego 0 orbity strumienia bodźców.
- Próby dzielone w zależności od kierunku lądowania sakkady. Aby to zrobić, podziel całą orbitę strumienia bodźca na 24 parzyste sektory kątowe 15° (±7,5°) wyśrodkowane na każdym strumieniu dystraktora i połącz próby obejmujące sakkady skierowane w ten sam odpowiedni sektor.
- Zdefiniuj czułość wizualną jako: d' = z (współczynnik trafień) − z (wskaźnik fałszywych alarmów). Licz odpowiedzi zgodnie z ruchem wskazówek zegara na cele dyskryminacji zgodnie z ruchem wskazówek zegara jako trafienia, a odpowiedzi zgodnie z ruchem wskazówek zegara na cele dyskryminacji zgodnie z ruchem wskazówek zegara jako fałszywe alarmy (i na odwrót). Zastąp wartości skuteczności dyskryminacji wynoszące 100% i 0% wartościami odpowiednio 99% i 1%, zanim przekształcisz je w d'. Przekształć wartości skuteczności dyskryminacji poniżej poziomu szansy (50% lub d' = 0) na ujemne wartości d'.
Wyniki
W niniejszym opracowaniu prezentujemy jedynie wybrane, reprezentatywne wyniki. Kompletny zestaw wyników znajduje się w naszej ostatniej publikacji23. Należy zauważyć, że dane analizowano głównie bez względu na czas trwania celów sakkadowych (tj. warunki sygnałów przejściowych i ciągłych zostały połączone w analizach końcowych). Do porównań statystycznych pobrano 10 000 prób bootstrapowych (z powtórzeniami) z rozkładu średnich dla pojedynczych badanych, a dwustronne wartości p wyliczono z rozkładu różnic między próbami bootstrapowymi.
Wykrywanie początków i zakończeń sakad oparto na rozkładzie prędkości spojrzenia24. Do wyznaczania początków i zakończeń sakad zastosowano średnią kroczącą z 20 kolejnych próbek pozycji oka; sakadę uznawano za rozpoczętą lub zakończoną w momencie, gdy prędkość ruchu oka przekroczyła lub spadła poniżej mediany średniej kroczącej o 3 SD przez co najmniej 20 ms. Sakady korygujące zdefiniowano jako ruchy gałek ocznych wykonane po wybranej w trybie offline sekwencji sakad głównych. Uwzględniono je w odpowiedniej analizie sakad korygujących tylko wtedy, gdy punkt lądowania znajdował się w przedziale od 7° do 13° od punktu fiksacji oraz gdy zostały one zainicjowane w ciągu pierwszych 500 ms po sekwencji sakad głównych, a także przed reakcją manualną uczestnika.
Przed przystąpieniem do końcowej analizy danych, wykonano rotację danych (patrz 6.2). W związku z tym, po rotacji danych, najbardziej przeciwskręcony cel sakady ST1 był zawsze reprezentowany w punkcie +45°/+15° (odpowiednio w warunkach 90° i 30°), lokalizacja BTW pomiędzy celami sakad w punkcie 0° (w obu warunkach, 90° i 30°), a najbardziej zgodnie z kierunkiem wskazówek zegara cel sakady ST2 w punkcie -45°/-15° (odpowiednio w warunkach 90° i 30°) względem kąta 0. Lokalizacje inne niż ST1, ST2 i BTW uznano za lokalizacje kontrolne (CTRL) w obu warunkach: 90° i 30°.
Nasz protokół pozwolił nam ocenić sakady w odpowiedzi na konkurencję okulomotoryczną między dwoma celami sakadowymi przedstawionymi pod różnymi kątami na podstawie zarejestrowanych danych ruchów gałek ocznych. Zgodnie z oczekiwaniami, rozkłady punktów końcowych sakad powiązane z warunkiem 90° (Rysunek 3A i 3C) oraz 30° (Rysunek 3B i 3D) różniły się znacząco. W warunku 90° zaobserwowano głównie dokładne sakady w kierunku jednego z celów, gdzie 41,0% ± 1,0% sakad zakończyło się w sektorze obejmującym najbardziej przeciwnie do ruchu wskazówek zegara cel sakadowy ST1, a 41,8% ± 1,9% w sektorze obejmującym najbardziej zgodny z ruchem wskazówek zegara cel sakadowy ST2 (Rysunek 3C). W przeciwieństwie do tego, w warunku 30° uczestnicy wykonali znaczną liczbę sakad uśredniających. W tym przypadku 33,6% ± 2,4% sakad zakończyło się w sektorze pomiędzy dwoma celami sakadowymi BTW, 29,95% ± 1,6% zakończyło się w sektorze obejmującym ST1, a 32,0% ± 1,8% w sektorze obejmującym ST2 (Rysunek 3D).
Ponadto ocena czułości wzrokowej we wszystkich 24 lokalizacjach rozmieszczonych w polu widzenia pozwoliła nam na szczegółową analizę przestrzennego rozmieszczenia uwagi podczas programowania okulomotorycznego. Ogólnie, biorąc pod uwagę sakady we wszystkich kierunkach, zaobserwowaliśmy selektywne ułatwienie czułości wzrokowej w dwóch celach sakady w stosunku do lokalizacji kontrolnych CTRL (odpowiadających średniej dla wszystkich pozycji z wyjątkiem ST1, ST2 i BTW) zarówno w warunkach 90° (ST1: d' = 2.2 ± 0.3 versus CTRL: d' = 0.3 ± 0.1, p < 0.0001; ST2: d' = 2.2 ± 0.4 versus CTRL, p < 0.0001; ST1 versus ST2, p = 0.8964; Rysunek 4A), jak i 30 ° (ST1: d' = 2.2 ± 0.3 versus CTRL: d' = 0.3 ± 0.1, p < 0.0001; ST2: d' = 2.1 ± 0.3 versus CTRL, p < 0.0001; ST1 versus ST2, p = 0.6026; Rysunek 4B). Choć czułość wzrokowa w lokalizacji pośredniej była znacznie niższa niż w lokalizacjach celów sakady (BTW: d' = 0.6 ± 0.2 versus ST1, p < 0.0001; BTW versus ST2, p < 0.0001; Rysunek 4B), była ona jednak nieznacznie zwiększona w stosunku do lokalizacji kontrolnych w warunku 30° (BTW versus CTRL, p = 0.0010).
Aby rozstrzygnąć, czy uwaga wzrokowa jest obligatoryjnie kierowana do punktu końcowego sakad, przeanalizowano czułość wzrokową we wszystkich lokalizacjach w zależności od kierunku lądowania sakady (patrz krok 6.3 w protokole). Co kluczowe, specyficzny rozkład lądowania sakad zaobserwowany w warunku 30° w tym protokole umożliwił analizę rozmieszczenia uwagi wzrokowej przed sakadami związanymi z przestrzennie rozdzielnymi punktami końcowymi w odpowiedzi na identyczny bodziec wzrokowy. Bardziej szczegółowo, analizując czułość wzrokową przed wystąpieniem sakad uśredniających, można było ustalić, czy uwaga przesuwa się w stronę punktu końcowego sakad nawet wtedy, gdy nie pokrywa się on przestrzennie z celem sakady. Zaobserwowano, że czułość wzrokowa była znacząco zwiększona w punkcie końcowym dokładnych sakad zarówno w warunku 90° (ST1+2 z sakadą: d' = 3,0 ± 0,4 wobec ST1+2 bez sakady: d' = 1,7 ± 0,4, p < 0,0001; Rycina 4E), jak i 30° (ST1+2 z sakadą: d' = 2,7 ± 0,4 wobec ST1+2 bez sakady: d' = 2,0 ± 0,3, p = 0,0080; Rycina 4F). W przeciwieństwie do tego, przed sakadami uśredniającymi czułość wzrokowa nie była zwiększona w punkcie końcowym sakady, lecz nieznacznie obniżona (BTW z sakadą: d' = 0,4 ± 0,2 wobec BTW bez sakady: d' = 0,7 ± 0,2, p < 0,0001; Rycina 4F). Zatem uwaga wzrokowa nie była obligatoryjnie przesunięta w stronę punktu końcowego nadchodzącej sakady. Co ciekawe, sakady uśredniające wiązały się z równym zwiększeniem czułości wzrokowej w dwóch otaczających celach sakad (ST1: d' = 2,2 ± 0,4 wobec ST2: d' = 2,2 ± 0,4, p = 0,8402; Rycina 4D), co sugeruje, że selekcja uwagi spośród celów sakad nie została szybko rozstrzygnięta przed rozpoczęciem sakad uśredniających.
Aby dalej ocenić potencjalny korelat selekcji uwagi przed uśrednianiem sakkad, dane przeanalizowano w funkcji kierunku lądowania sakkad korygujących, które często obserwuje się podczas wykonywania sakkad uśredniających. Nie zaobserwowano istotnej korzyści w punkcie końcowym sakkad korygujących po sakkadzie uśredniającej (sakkada korygująca skierowana w stronę ST1+2: d' = 2,8 ± 0,5 versus sakkada korygująca nie skierowana w stronę ST1+2: d' = 2,5 ± 0,8, p = 0,68300; Rycina 5C), co wspiera interpretację, że selekcja uwagi nie została rozstrzygnięta przed sakkadami uśredniającymi.
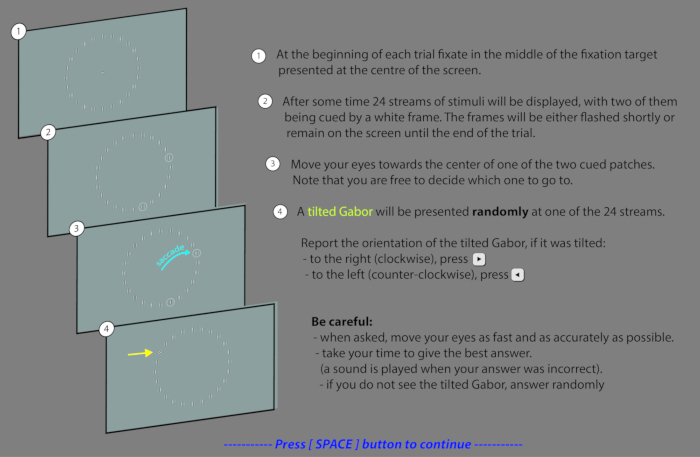
Rysunek 1: Instrukcje przedstawione uczestnikom. Wizualizacja instrukcji eksperymentalnych przedstawionych uczestnikom na początku każdego bloku. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
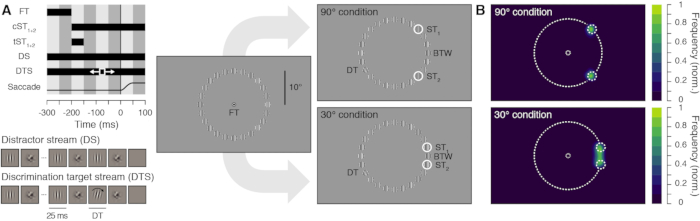
Rysunek 2: Procedura eksperymentalna i znormalizowane mapy częstotliwości lądowania sakkad. (A) Czas prezentacji i wyświetlanie bodźców. Uczestnicy przygotowywali sakkadę z punktu fiksacji (FT) do jednego z dwóch potencjalnych celów sakkady (ST1 i ST2), prezentowanych jednocześnie w dwóch losowo wybranych strumieniach bodźców z kątową odległością między celami wynoszącą 90° (panele górne) lub 30° (panele dolne). Cele sakkady były prezentowane albo w sposób ciągły (cST1+2), albo przejściowo (tST1+2). Strumienie bodźców mogły być albo strumieniami dystraktorów (DS), składającymi się z naprzemiennych pionowych filtrów Gabora i masek (40 Hz), albo strumieniami celów dyskryminacyjnych (DTS), które obejmowały prezentację krótkiego celu dyskryminacyjnego (DT, 25 ms) – filtra Gabora nachylonego zgodnie lub przeciwnie z ruchem wskazówek zegara, wyświetlanego od 75 do 175 ms po pojawieniu się celów sakkady. Uczestnicy wykonywali sakkadę w kierunku jednego z celów sakkady i musieli zgłosić orientację celu dyskryminacyjnego, który pojawiał się losowo w jednej z 24 lokalizacji strumienia bodźców. Należy zauważyć, że bodźce zostały naszkicowane w celu zwiększenia ich widoczności. Rzeczywiste bodźce odpowiadają tym przedstawionym w depiction strumieni bodźców. (B) Znormalizowane mapy częstotliwości lądowania sakkad uśrednione dla uczestników (n = 10) dla warunków 90° (góra) i 30° (dół) (połączone dla przejściowej i ciągłej prezentacji ST). Rysunek ten został przedrukowany z Wollenberg et al. (2018)23. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
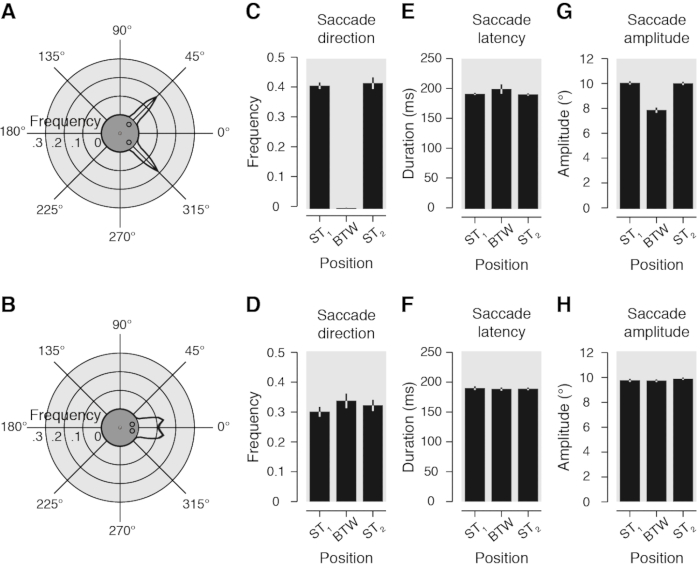
Rycina 3: Metryki sakad. (A-B) Wykresy kołowe przedstawiają uśredczony rozkład częstości kierunków lądowania sakad podzielonych na równomiernie rozłożone sektory kątowe o szerokości 5°, w warunkach 90° (A) i 30° (B). Konfiguracja bodźców została obrócona tak, aby dwa cele sakad były rozmieszczone symetrycznie względem kąta geometrycznego zero (patrz wstawki centralne). (C-D) Wykresy słupkowe ilustrują uśrednioną częstość prób w funkcji kierunku lądowania sakad podzielonych na 24 równomiernie rozłożone sektory kątowe o szerokości 15°. Dane przedstawiono dla trzech pozycji docelowych (ST1, BTW i ST2) w warunkach 90° (C) i 30° (D). (E-H) Uśredniona latencja sakad (E, F) oraz amplituda (G, H) zaobserwowane dla tych samych trzech pozycji docelowych w warunkach 90° (E, G) i 30° (F, H). Wszystkie dane przedstawiono niezależnie od czasu trwania (ciągłego lub przejściowego) celów sakad. Jasnoszare obszary i słupki błędów reprezentują SEM. Czarne linie na wykresach polarnych i odpowiadające im jasnoszare obszary przedstawiają interpolację liniową między punktami danych. Rycina ta została przedrukowana z pracy Wollenberg et al. (2018)23. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
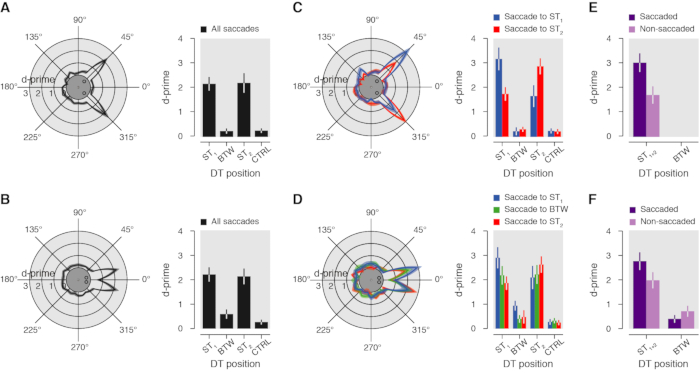
Rycina 4: Czułość wzrokowa. (A-B). Wykresy kołowe przedstawiają średnią czułość wzrokową (d') jako funkcję pozycji DT w warunkach 90° (A) i 30° (B), niezależnie od czasu trwania celów sakadycznych i dla wszystkich obserwowanych kierunków sakad. Wykresy słupkowe ilustrują czułość wzrokową dla czterech pozycji zainteresowania (ST1, BTW, ST2, CTRL). (C-D) Czułość wzrokowa jako funkcja pozycji DT względem kierunku lądowania sakady w warunkach 90° (C) i 30° (D), niezależnie od czasu trwania celów sakadycznych (niebieski: sakada do ST1; zielony: sakada do BTW; czerwony: sakada do ST2). Dla każdego kierunku sakady obliczono średnią czułość dla każdej lokalizacji celu dyskryminacyjnego. Na przykład niebieska linia przedstawia czułość wzrokową, gdy sakady były wykonywane w kierunku ST1, a cel dyskryminacyjny znajdował się w ST1 (+15° na wykresie polarnym), BTW (15° przeciwnie do ruchu wskazówek zegara od ST1; 0° na wykresie polarnym) lub ST2 (30° przeciwnie do ruchu wskazówek zegara od ST1; +345° na wykresie polarnym) i tak dalej. (E-F) Wykresy słupkowe ilustrują czułość zaobserwowaną dla DT wyświetlonego w pozycji sakadowanej (fioletowy: np. DT w ST1 i sakada do ST1) oraz w pozycjach niesakadowanych (jasnofioletowy: np. DT w ST1 i sakada do ST2 lub BTW) w warunkach 90° (E) i 30° (F). Konwencje są zgodne z Rycina 3. Rycina ta została przedrukowana z pracy Wollenberg et al. (2018)23. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.

Rysunek 5: Sakady korygujące. (A) Wykres kołowy przedstawia uśredniony rozkład częstotliwości kierunków lądowania sakad korygujących po sakadzie uśredniającej. (B) Wykres słupkowy ilustruje uśrednioną częstotliwość prób w funkcji kierunku lądowania sakady korygującej po sakadzie uśredniającej dla trzech pozycji zainteresowania (ST1, BTW i ST2). (C) Wykres słupkowy ilustruje czułość wzrokową w funkcji kierunku pierwszej sakady korygującej dla wszystkich prób, w których wykonano sakadę uśredniającą. Fioletowe słupki przedstawiają czułość wzrokową dla prób, w których sakada korygująca była skierowana w stronę miejsca pojawienia się DT (np. DT w ST1 i sakada korygująca w stronę ST1). Jasnofioletowe słupki przedstawiają czułość wzrokową dla prób, w których sakada korygująca była skierowana w inne miejsce niż to, w którym pojawił się DT (np. DT w ST1 i sakada korygująca w stronę ST2 lub BTW). Konwencje są zgodne z Rysunkiem 3-4. Rysunek ten został przedrukowany z pracy Wollenberg et al. (2018)23. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dyskusja
W tym eksperymentalnym protokole wykorzystano jednoczesną ocenę zachowania wzroku i presakkadowej wrażliwości wzrokowej w zadaniu sakadowym z wolnym wyborem. Pozwoliło nam to przeanalizować, czy uwaga wzrokowa jest rzeczywiście obowiązkowo sprzężona z programowaniem okoruchowym na poziomie behawioralnym, a zatem systematycznie wdrażana na końcu sakkad. Dwa cele sakkadowe zostały przedstawione w bliskiej odległości (30°) w połowie prób, w których zaobserwowaliśmy wyraźny efekt globalny, odzwierciedlony w rozkładzie lądowania sakkad składającym się zarówno z dokładnych, jak i uśredniających sakkad. Aby wyciągnąć wnioski na temat przestrzennego sprzężenia między uwagą wzrokową a sakkadowym punktem końcowym, przeanalizowano i porównano wrażliwość wzrokową w różnych lokalizacjach w funkcji kierunku lądowania sakkady. Podczas gdy zaobserwowaliśmy konsekwentne i selektywne zwiększanie wrażliwości wzrokowej w punkcie końcowym dokładnych sakkad, wrażliwość wzrokowa nie uległa zwiększeniu w punkcie końcowym uśredniania sakkad. Wrażliwość wzrokowa była raczej w równym stopniu ułatwiona na dwóch celach sakad przed wykonaniem sakkad uśredniających, co sugeruje, że uśrednianie sakad wynika z nierozwiązanej selekcji uwagi wśród celów sakadowych. Nasze wyniki pokazują zatem, że uwaga wzrokowa nie jest obligatoryjnie rozmieszczona w punkcie końcowym wykonywanego programu okoruchowego. Analiza sakad korekcyjnych, która wykazała, że równomierne rozmieszczenie wrażliwości wzrokowej na dwóch obiektach sakkad przed uśrednieniem sakkad nie zmieniało się systematycznie w funkcji kierunku sakkad korekcyjnych, dodatkowo potwierdziła tę interpretację. Pod tym względem nasze dane są zgodne z niedawnym modelem Zirnsaka i wsp.25 , który zakłada proces selekcji celów, który stopniowo narasta w czasie.
Co ważne, nasz protokół różni się od innych badań behawioralnych, które dostarczyły dowodów na dysocjację między uwagą a sakkadami w kilku aspektach. Podczas gdy niektóre badania opierały swoje wnioski na czasach reakcji sakkad 14,15,16, my użyliśmy bezpośredniej miary wizualnej uwagi przestrzennej, a mianowicie wrażliwości wzrokowej podczas przygotowania sakkady. Specyficzne parametry stosowane w tym protokole były skuteczne w replikowaniu klasycznego preakkadowego przesunięcia uwagi 8,9, co widać w konsekwentnym zwiększaniu wrażliwości wzrokowej w punkcie końcowym dokładnych sakkad. W ten sposób protokół pozwolił na wiarygodne wykrycie systematycznych modulacji uwagi wzrokowej charakterystycznych dla przygotowania sakkad. Jest to ważny warunek wstępny do prawidłowej interpretacji preakkadowych efektów uwagi, a w szczególności obserwowanego braku wzmocnienia uwagi w punkcie końcowym uśredniających sakkad.
Centralnym i wyróżniającym się aspektem tego protokołu było losowe przedstawienie celu dyskryminacji w różnych lokalizacjach. W ten sposób mogliśmy pobrać próbki wrażliwości wzrokowej w całym polu widzenia, co w konsekwencji pozwoliło nam nie tylko określić, czy uwaga jest ułatwiona w punkcie końcowym sakkad, ale także zbadać rozprzestrzenianie się uwagi wokół tego obszaru, w tym w sąsiednich lokalizacjach. Dyskretna alokacja uwagi na dwóch celach sakkadowych (ograniczona do mniej niż ~2,6°, odległości między dwoma sąsiednimi bodźcami), którą zaobserwowaliśmy przed uśrednieniem sakkad, jest sprzeczna z wczesnym opisem, który sugerował, że uśrednianie sakkad może odzwierciedlać zgrubne przetwarzanie sceny wizualnej17 i przemawia za wzmocnieniem lokalnego, a nie globalnego przetwarzania informacji wizualnych. Co więcej, wyrywkowa prezentacja celu dyskryminacji sprawiła, że jego lokalizacja była całkowicie nieprzewidywalna dla uczestników. W związku z tym nasz protokół generalnie ułatwiał równomierne rozmieszczenie uwagi wzrokowej w całym polu widzenia w odniesieniu do zadania dyskryminacji. Uważamy ten fakt za istotny w odniesieniu do wszelkich potencjalnych efektów uwagi i wniosków związanych z przygotowaniem sakkady.
Ponieważ jednak ruchy gałek ocznych nie są zwykle wykonywane podczas próby rozróżnienia bodźców w całym polu widzenia w naturalnym widzeniu, wyniki uzyskane w tym protokole nie mogą bez ograniczeń wyjaśnić zachowań okoruchowych w codziennym życiu. Co więcej, zadanie okoruchowe nieuchronnie wpływało na rozmieszczenie uwagi za pomocą wskazówki celu sakkadowego. Cele sakkadowe nie tylko wprowadzały istotne cele okoruchowe, ale także istotne sygnały egzogenne, które prawdopodobnie przyciągnęły uwagę. W związku z tym możliwe jest, że skuteczność dyskryminacji wzrokowej w miejscu pośrednim była ogólnie pogorszona z powodu pewnego maskowania wywołanego przez dwa otaczające cele sakkady. W celu zmniejszenia wpływu celów sakkad w odniesieniu do skuteczności dyskryminacji w miejscu pośrednim oraz w celu oceny potencjalnych efektów maskowania, zdecydowaliśmy się prezentować cele sakkad tylko przejściowo (przez 50 ms) zamiast w sposób ciągły (do końca próby) w połowie prób. W rezultacie, mimo że oba warunki sygnalizacji wprowadzały wizualne początki w miejscach docelowych sakkad, cele sakkad zawsze znikały przed nadejściem celu dyskryminacji w stanie przejściowym podpowiedzi. Podczas gdy większość wyników była bardzo spójna w obu warunkach podpowiedzi i dlatego zostały połączone w końcowej analizie, rzeczywiście zaobserwowaliśmy wskazanie efektu maskowania w warunkach ciągłego podpowiadania w stosunku do przejściowego warunku podpowiedzi. Ogólnie, niezależnie od kierunku sakkady, wrażliwość wzrokowa w miejscu pośrednim była nieznacznie zmniejszona w stanie ciągłym w porównaniu z przejściowym podpowiedzią. Biorąc pod uwagę pogląd, że przejściowe wskazanie celu sakad pozornie minimalizuje maskowanie lokalizacji pośredniej, a jednocześnie jest skuteczne w wywoływaniu sakkad uśredniających, przyszłe badania wykorzystujące protokół podobny do naszego powinny rozważyć zastosowanie przejściowych wskazówek celów. Jednak pomimo naszych wysiłków, aby zminimalizować efekty maskowania poprzez przejściowe sygnalizowanie celów, nie możemy wykluczyć, że przejściowe podpowiedzi nadal wprowadzały efekt maskowania do przodu, co może potencjalnie do pewnego stopnia odpowiadać za słabą wydajność dyskryminacji w lokalizacji pośredniej.
Podsumowując, nasz protokół pozwolił bezpośrednio zająć się sprzężeniem między uwagą wzrokową a programowaniem okulomotorycznym oraz ujawnić wyraźną dysocjację przestrzenną między uwagą a punktem końcowym uśredniania sakkad na poziomie behawioralnym. Nasze wyniki przemawiają przeciwko obowiązkowemu sprzężeniu między uwagą wzrokową a programowaniem okulomotorycznym sugerowanym w przedmotorycznej teorii uwagi. Przyszłe badania powinny wykorzystywać paradygmaty, w tym równoczesne zapisy neurofizjologiczne w obszarach takich jak FEF i SC, aby dalej rozstrzygać sprzężenie między uwagą wzrokową a programowaniem okoruchowym.
Oświadczenia
Autorzy oświadczyli, że nie istnieją konkurencyjne interesy.
Podziękowania
To badanie było wspierane przez granty Deutsche Forschungsgemeinschaft dla H.D. (DE336/5-1 i RTG 2175 "Percepcja w kontekście i jego neuronalne podstawy") i dla M.S. (SZ343/1) oraz indywidualne stypendium Marie Skłodowska-Curie dla M.S. (704537).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Komputer | Apple iMac (Cupertino, Kalifornia) | ||
| Ekran CRT | Sony GDM F900 (Tokio, Japonia) | 24-calowy ekran o rozdzielczości przestrzennej 1024 x 640 pikseli i częstotliwości odświeżania w pionie 120 Hz | |
| Eye Tracker | EyeLink 1000 Desktop Mount (SR Research, Osgoode, Ontario, Kanada) | działający z częstotliwością próbkowania 1 kHz | |
| Oprogramowanie | Matlab (The MathWorks, Natick, MA) / przyborniki: Psychophics, EyeLink |
Bibliografia
- Rizzolatti, G., Riggio, L., Dascola, I., Umiltá, C. Reorienting attention across the horizontal and vertical meridians: evidence in favor of a premotor theory of attention. Neuropsychologia. 25 (1), 31-40 (1997).
- Rizzolatti, G., Riggio, L., Sheliga, B. M. Space and selective attention. Attention and performance XV. 15, 231-265 (1994).
- Corbetta, M. Frontoparietal cortical networks for directing attention and the eye to visual locations: Identical, independent, or overlapping neural systems? Proceedings of the National Academy of Sciences. 95, 831-838 (1998).
- Müller, J. R., Philiastides, M. G., Newsome, W. T. Microstimulation of the superior colliculus focuses attention without moving the eyes. Proceedings of the National Academy of Sciences. 102 (3), 524-529 (2005).
- McPeek, R. M., Keller, E. L. Deficits in saccade target selection after inactivation of superior colliculus. Nature nueroscience. 7 (7), 757(2004).
- Moore, T., Armstrong, K. M. Selective gating of visual signals by microstimulation of frontal cortex. Nature. 421, 370(2003).
- Moore, T., Fallah, M. Microstimulation of the frontal eye field and its effects on covert spatial attention. Journal of neurophysiology. 91 (1), 152-162 (2004).
- Kowler, E., Anderson, E., Dosher, B., Blaser, E. The role of attention in the programming of saccades. Vision research. 35 (13), 1897-1916 (1995).
- Deubel, H., Schneider, W. X. Saccade target selection and object recognition: Evidence for a common attentional mechanism. Vision research. 36, 1827-1837 (1996).
- Thompson, K. G., Biscoe, K. L., Sato, T. R. Neuronal basis of covert spatial attention in the frontal eye field. Journal of Neuroscience. 25 (41), 9479-9487 (2005).
- Ignashchenkova, A., Dicke, P. W., Haarmeier, T., Thier, P. Neuron-specific contribution of the superior colliculus to overt and covert shifts of attention. Nature nueroscience. 7 (1), 56(2004).
- Gregoriou, G. G., Gotts, S. J., Desimone, R. Cell-type-specific synchronization of neural activity in FEF with V4 during attention. Neuron. 73 (3), 581-594 (2012).
- Born, S., Mottet, I., Kerzel, D. Presaccadic perceptual facilitation effects depend on saccade execution: Evidence from the stop-signal paradigm. Journal of Vision. 14 (3), 7-7 (2014).
- Belopolsky, A. V., Theeuwes, J. Updating the premotor theory: the allocation of attention is not always accompanied by saccade preparation. Journal of Experimental Psychology: Human Perception and Performance. 38 (4), 902(2012).
- Hunt, A. R., Kingstone, A. Covert and overt voluntary attention: linked or independent? Cognitive Brain Research. 18 (1), 102-105 (2003).
- Smith, D. T., Schenk, T., Rorden, C. Saccade preparation is required for exogenous attention but not endogenous attention or IOR. Journal of Experimental Psychology: Human Perception and Performance. 38 (6), 1438(2012).
- Findlay, J. M. Global visual processing for saccadic eye movements. Vision research. 22, 1033-1045 (1982).
- Coren, S., Hoenig, P. Effect of non-target stimuli upon length of voluntary saccades. Perceptual and motor skills. 34 (2), 499-508 (1972).
- Van der Stigchel, S., Nijboer, T. C. The global effect: what determines where the eyes land? Journal of Eye Movement Research. 4 (2), (2011).
- Vitu, F. About the global effect and the critical role of retinal eccentricity: Implications for eye movements in reading. Journal of Eye Movement Research. 2 (3), (2008).
- Hanning, N., Deubel, H., Szinte, M. Sensitivity measures of visuospatial attention. Journal of Vision. 17 (10), 673-673 (2017).
- Van der Stigchel, S., De Vries, J. P. There is no attentional global effect: Attentional shifts are independent of the saccade endpoint. Journal of vision. 15, 17-17 (2015).
- Wollenberg, L., Deubel, H., Szinte, M. Visual attention is not deployed at the endpoint of averaging saccades. PLoS biology. 16 (6), e2006548(2018).
- Engbert, R., Mergenthaler, K. Microsaccades are triggered by low retinal image slip. Proceedings of the National Academy of Sciences. 103 (18), 7192-7197 (2006).
- Zirnsak, M., Beuth, F., Hamker, F. H. Split of spatial attention as predicted by a systems-level model of visual attention. European Journal of Neuroscience. 33 (11), 2035-2045 (2011).
Przedruki i uprawnienia
