Ten protokół demonstruje użycie podzielonych na przedziały mikroprzepływowych chipów, formowanych wtryskowo w cyklicznym kopolimerze olefin, do hodowanych neuronów zróżnicowanych od ludzkich komórek macierzystych. Chipy te są wstępnie zmontowane i łatwiejsze w użyciu niż tradycyjne urządzenia z poli(dimetylosiloksanu) z przedziałami. Opisano tutaj wiele powszechnych paradygmatów eksperymentalnych, w tym znakowanie wirusów, izolację płynów, aksotomię i barwienie immunologiczne.
Artykuł metodologiczny
Podział neuronów pochodzących z ludzkich komórek macierzystych na wstępnie zmontowane plastikowe chipy mikroprzepływowe
W tym artykule
Podsumowanie
Streszczenie
Użycie urządzeń mikroprzepływowych do podziału hodowanych neuronów stało się standardową metodą w neurobiologii. Protokół ten pokazuje, jak wykorzystać wstępnie zmontowany wielokompartmentowy chip wykonany z cyklicznego kopolimeru olefin (COC) do podziału neuronów zróżnicowanych od ludzkich komórek macierzystych. Powierzchnia tych chipów COC jest taka sama jak w przypadku standardowego szkiełka mikroskopowego i jest równie kompatybilna z mikroskopią o wysokiej rozdzielczości. Neurony są różnicowane z ludzkich nerwowych komórek macierzystych (NSC) w neurony glutaminergiczne w chipie i utrzymywane przez 5 tygodni, dając tym neuronom wystarczająco dużo czasu na rozwój synaps i kolców dendrytycznych. Ponadto demonstrujemy wiele powszechnych procedur eksperymentalnych z wykorzystaniem tych wielokompartmentowych chipów, w tym znakowanie wirusów, ustalanie mikrośrodowisk, aksotomię i immunocytochemię.
Wprowadzenie
Neurony różnicujące ludzkie komórki macierzyste (hSC-neurony) są coraz częściej wykorzystywane do badań biologicznych. Te neurony, które mogą pochodzić z ludzkiego materiału źródłowego, są bardzo interesujące dla badań translacyjnych, w tym badań nad urazowymi uszkodzeniami mózgu i zaburzeniami neurodegeneracyjnymi, takimi jak choroba Alzheimera. W związku z tym potrzebne są narzędzia usprawniające i ułatwiające badanie neuronów hSC.
Aby zbadać unikalną spolaryzowaną morfologię neuronów, wielu badaczy korzysta z wielokomorowych urządzeń mikroprzepływowych1,2,3,4,5,6,7,8,9,10,11. Urządzenia te umożliwiają pomiary i manipulacje długimi neuronami projekcyjnymi z unikalnym dostępem subkomórkowym. Wielokomorowe urządzenia mikroprzepływowe składają się z dwóch równoległych przedziałów mikroprzepływowych oddzielonych mikrorowkami, które kierują wzrostem aksonów. Neurony lub nerwowe komórki macierzyste (NSC) są siane w przedziale somatodendrycznym, a następnie po kilku minutach przylegają do dna powierzchni komory. Zróżnicowane neurony rosną i rozszerzają swoje aksony/projekcje przez obszar mikrorowka do sąsiedniego i izolowanego przedziału aksonalnego. W przeszłości urządzenia te były wytwarzane wyłącznie przy użyciu formowania replik z poli(dimetylosiloksanu) (PDMS). Urządzenia PDMS mają wiele wad opisanych wcześniej12, w tym uporczywą hydrofobowość i konieczność montażu na szklanym szkiełku nakrywkowym bezpośrednio przed użyciem. Wstępnie zmontowane chipy formowane wtryskowo przezwyciężają wiele z tych wad i są sprzedawane komercyjnie (patrz Tabela materiałów)12. Przedziały tych chipów są trwale hydrofilowe, a cały chip jest formowany wtryskowo z optycznie przezroczystego cyklicznego kopolimeru olefin (COC).
Ten protokół pokazuje, jak używać tego chipa COC do różnicowania ludzkich NSC na neurony pobudzające, oraz do rozdzielania i płynnego izolowania ich długich projekcji neuronalnych. W tej demonstracji neurony zróżnicowano z zatwierdzonych przez NIH komórek macierzystych H9. Podobne procedury można zastosować do różnicowania ludzkich indukowanych pluripotencjalnych komórek macierzystych.
Protokół
UWAGA: Rysunek 1A,B pokazuje schemat wstępnie zmontowanego układu COC, w tym lokalizacje głównych kanałów lub komór, studzienek i mikrorowków. Chip podzielony na przedziały może tworzyć wyraźne mikrośrodowiska płynów w komorze, jak pokazano na przykładzie izolacji barwnika barwiącego żywność (Rysunek 1C). Protokół przygotowania wstępnie zmontowanego wielokomorowego układu scalonego jest podany w Nagendran et al., Sekcja 112.
1. Powlekanie wielokomorowych chipów dla neuronów hSC
UWAGA: Rysunek 2A pokazuje przegląd procedur powlekania.
- Rozpuścić poli-L-ornitynę w wodzie destylowanej do hodowli komórkowych, aby uzyskać 600 μl roztworu na wiór roztworu roboczego o stężeniu 20 μg/ml.
- Odessać pozostały PBS pozostały po przygotowaniu wiórów z dołków. Podczas zasysania należy upewnić się, że końcówka pipety znajduje się z dala od otworu kanału.
UWAGA: Kanały mikroprzepływowe muszą pozostać wypełnione przez cały czas trwania tej procedury. Nie zasysaj cieczy z kanałów/komór, tylko ze studzienek. - Załaduj 150 μl roztworu roboczego poli-L-ornityny do prawego górnego dołka. Poczekaj 90 s lub do momentu, gdy płyn zacznie wypełniać dolną prawą studzienkę. Dodaj 150 μl pożywki do prawego dolnego dołka i odczekaj 5 minut, aby płyn przeszedł przez mikrorowki.
- Dodaj 150 μl pożywki do lewego górnego dołka. Odczekaj 90 s, a następnie dodaj 150 μl do lewego dolnego dołka. Owinąć uchwyt wióra (wiórów) folią parafilmową i umieścić w temperaturze 4 °C na noc.
UWAGA: Alternatywnie umieść chip i uchwyt w temperaturze 37 °C na 1 godzinę. - Zassać pożywkę ze studzienek, upewniając się, że końcówka pipety jest umieszczona z dala od otworu kanału. Dodaj 150 μl sterylnej wody do prawego górnego dołka. Odczekaj 90 sekund, a następnie dodaj 150 μl do prawego dolnego dołka. Odczekaj 5 minut, aby płyn przeszedł przez mikrorowki.
- Dodaj 150 μl sterylnej wody do lewego górnego dołka, odczekaj 90 sekund, a następnie dodaj kolejne 150 μl do lewego dolnego dołka.
- Powtórz kroki 1.5-1.6.
- Powoli rozmrażać lamininę w temperaturze od 2 °C do 8 °C i przygotować roztwór roboczy o stężeniu 10 μg/ml.
- Załaduj 150 μl roztworu roboczego lamininy do prawego górnego dołka. Poczekaj 90 s lub do momentu, gdy płyn zacznie wypełniać dolną prawą studzienkę. Odpipetować 150 μl do prawego dolnego dołka. Odczekaj 5 minut, aby laminina przeszła przez mikrorowki.
- Dodaj 150 μl lamininy do lewego górnego dołka. Odczekaj 90 s, a następnie dodaj 150 μl do lewego dolnego dołka. Inkubować wiór w uchwycie przez 2 godziny w temperaturze 37 °C.
- Wypłucz chip PBS (bez Ca2+ i Mg2+). Załaduj 150 μl PBS do prawego górnego dołka. Poczekaj 90 s lub do momentu, gdy płyn zacznie wypełniać dolną prawą studzienkę. Dodaj 150 μl PBS do prawego dolnego dołka i odczekaj 5 minut, aby PBS przeszedł przez mikrorowki.
- Odpipetować 150 μl PBS do lewego górnego dołka. Po 90 s odpipetować 150 μl do lewego dolnego dołka.
- Odessać PBS z chipa, a następnie przepłukać chip pożywką NSC (patrz Tabela materiałów). Załaduj 150 μl pożywki do prawego górnego dołka. Po 90 s lub gdy ciecz przejdzie przez prawy kanał do prawego dolnego dołka, dodaj 150 μl do prawego dolnego dołka. Odczekaj 5 minut, aby media przepłynęły przez mikrorowki.
- Dodaj 150 μl pożywki do lewego górnego dołka i kolejne 150 μl do lewego dolnego dołka. Inkubować chip w inkubatorze w temperaturze 37 °C z 5% CO2 w celu wstępnego przygotowania chipa do momentu, gdy będzie gotowy do wysiewu NSC.
UWAGA: W razie potrzeby frytki można wstępnie kondycjonować przez noc.
2. Umieszczanie NSC w chipie wielokomorowym
UWAGA: Ten protokół wykorzystywał komercyjnie zakupione NSC, w przeciwieństwie do naszej poprzedniej publikacji, która zaczynała się od ludzkich embrionalnych komórek macierzystych5. W tym protokole nerwowe komórki macierzyste są umieszczane bezpośrednio w plastikowych chipach, gdzie różnicują się w neurony. Komórkom można pozwolić na namnażanie się jako NSC (bez różnicowania) przez maksymalnie 2 pasaże i przechowywać w fiolkach w płynnym N2 do dalszego wykorzystania. W protokole tym wykorzystuje się fiolki NSC przechowywane w cieczy N2 po przejściu 1 lub 2. Rysunek 2B pokazuje przegląd procedur powlekania.
- Rozmrażać NSC zgodnie z instrukcjami producenta.
UWAGA: Procedura ta ma zastosowanie do NSC pochodzących z H9. Inne linie komórkowe będą wymagały optymalizacji gęstości komórek. - Policz stężenie komórek za pomocą hemocytometru i dostosuj za pomocą pożywki NSC, aby uzyskać stężenie 7 x 10⁶ komórek na ml.
- Zassać media z każdej studzienki chipa. Unikaj zasysania multimediów z głównych kanałów.
- Odpipetuj 5 μl roztworu komórkowego do prawego górnego dołka, a następnie 5 μl do prawego dolnego dołka (łącznie 70 000 komórek). Upewnij się, że komórki są pipetowane w kierunku głównych otworów kanału. Użyj mikroskopu, aby sprawdzić, czy komórki dostały się do kanału. Odczekaj 5 minut, aż komórki przylgną do dolnej części chipa.
UWAGA: Do załadowania ogniw można użyć jednej lub obu komór. - Odpipetować ~150 μl pożywki NSC do prawego górnego dołka, a następnie 150 μl do prawego dolnego dołka. Powtórz po lewej stronie. Inkubować w temperaturze 5% CO2 i temperaturze 37 °C w odpowiednim nawilżonym pojemniku.
- Po 48 godzinach odessać pożywkę NSC ze studzienek i zastąpić pożywką różnicującą neurony, dodając 150 μl do każdej studzienki górnej i każdej studzienki dolnej.
- Hodowla neuronów w inkubatorze o stężeniu 5%CO2 i temperaturze 37 °C w odpowiednim nawilżonym pojemniku.
UWAGA: Nośniki należy wymieniać co 2-3 dni. Ze względu na małe objętości użyte w chipie, parowanie nawet w wilgotnym inkubatorze może znacząco wpłynąć na żywotność komórek. Użyj odpowiedniego pojemnika wtórnego, aby zapewnić dodatkową wilgotność do długotrwałej hodowli komórek z chipem (patrz Tabela materiałów).
3. Wirusowe fluorescencyjne znakowanie neuronów hSC w chipie
UWAGA: Wiele wirusów może być używanych do oznaczania neuronów w chipie. Poniższe instrukcje opisują stosowanie wirusa wścieklizny z delecją G lub wirusa -eGFP. Z materiałami potencjalnie zakaźnymi należy obchodzić się zgodnie z obowiązującymi przepisami i regulacjami oraz mogą one wymagać dodatkowego szkolenia i zatwierdzenia przez instytucję.
- Ciepłe ~400 μL świeżego podłoża różnicującego neurony na chip do 37 °C.
- Usunąć 50 μl pożywki z jednego dołka komory aksonu do probówki wirówkowej, a następnie dodać do probówki 100 000 jednostek wirusowych zmodyfikowanego wirusa wścieklizny.
UWAGA: Zużyte końcówki pipet i probówki wirówkowe zawierające wirusa należy zutylizować w odpowiedni sposób. - Usuń pozostałe pożywki różnicujące neurony z przedziału aksonalnego i umieść w probówce wirówkowej. Przechowywać w temperaturze 37 °C.
UWAGA: Upewnij się, że kanały pozostają wypełnione płynem. - Zmieszać 50 μl roztworu wirusa ze 150 μl podgrzanego podłoża. Odpipetować 100 μl do jednego dołka komory aksonu i 100 μl do drugiego dołka komory aksonu. Inkubować przez 2 godziny w inkubatorze o temperaturze 37 °C.
UWAGA: Różnica w objętości między przedziałami aksonalnymi i somatycznymi pomaga zapewnić, że wirus pozostaje w przedziale aksonalnym podczas infekcji/inkubacji. - Wycofaj i wyrzuć nośniki zawierające wirusy.
UWAGA: Nie usuwaj płynu z zamkniętych kanałów mikroprzepływowych. - Delikatnie odpipetować 75 μl świeżej pożywki do jednej komory aksonu i pozwolić pożywce przepłynąć przez kanał do drugiej studzienki aksonowej.
- Wyjmij nośnik z komory aksonu i zutylizuj go w odpowiedni sposób.
- Powtórz kroki 3.6 i 3.7.
- Napełnij komorę aksonu zapisanymi nośnikami. W razie potrzeby odpipetować dodatkowe 50 μl świeżej pożywki, a następnie umieścić chip z powrotem w inkubatorze. Te dodatkowe świeże media mają być wliczane do strat mediów podczas przenoszenia cieczy i parowania podczas procesu.
UWAGA: Widoczne znakowanie fluorescencyjne przy użyciu tych zmodyfikowanych wirusów wścieklizny następuje po 48 godzinach i do 8 dni, po czym śmierć komórek zakażonych neuronów zwykle następuje z powodu toksyczności wirusa. Obrazowanie neuronów można przeprowadzić tak jak w przypadku innych standardowych platform hodowlanych (np. naczyń ze szklanym dnem), ale należy zwrócić szczególną uwagę na utrzymanie wystarczającej wilgotności, aby zapobiec stratom parowania.
4. Izolacja płynowa, aksotomia i barwienie immunologiczne w chipie
- Postępuj zgodnie z izolacją fluidyczną, aksotomią i barwieniem immunologicznym za pomocą chipa, zgodnie z opisem w Nagendran et al.12.
Wyniki
Po jednym tygodniu (7-10 dni) w chipie z medium różnicującym, NSCs różnicują się w neurony, a wypustki neuronalne wnikają do komory aksonalnej (Rycina 3). Wewnątrz chipa neurony przytwierdzają się i rozkładają równomiernie w komorze somatycznej. W porównaniu z nimi, neurony w urządzeniach z PDMS zbijają się w grudki/agregaty już 5 dni po dodaniu medium różnicującego, co prowadzi do pogorszenia stanu zdrowia komórek, co widać na Rycina 3B (powiększony obraz z dnia 13). Neurony w chipach wyglądają na zdrowe i posiadają wiązki aksonów. Zdrowe neurony mogą być utrzymywane w chipach przez 4-5 tygodni.
W celu wizualizacji dojrzewania neuronów i rozwoju kolców dendrytycznych w 29. dniu podano zmodyfikowany wirus wścieklizny do przedziału aksonalnego, aby przeprowadzić retrogradne znakowanie neuronów, w tym kolców dendrytycznych, białkiem fluorescencyjnym mCherry. Cztery dni po infekcji wirusem wścieklizny neurony wysyłające aksony do przedziału aksonalnego wykazywały ekspresję mCherry. Neurony w 33. dniu różnicowania wykazywały tworzenie kolców dendrytycznych (Rycina 4). Wizualizacja kolców dendrytycznych dowodzi, że neurony pochodzące z NSC, które zróżnicowały się wewnątrz chipów, tworzą dojrzałe synapsy.
Chip wielokomorowy jest również kompatybilny z immunocytochemią w celu wizualizacji lokalizacji komórkowej białka. Po 26 dniach utrzymywania neuronów w pośrodku różnicującym, neurony znakowano przeciwciałem przeciwko markerowi synaps pobudzających, vGlut1 (Rycina 5). Wyniki te pokazują, że neurony znakowane wirusowo kolokalizują z vGlut1 (Rycina 5E) oraz marker specyficzny dla neuronów, β-tubulinę III (Rysunek 5F-H).
Zdolność do tworzenia odrębnych mikrośrodowisk izolowanych w aksonach została również zademonstrowana przy użyciu hydrazydy Alexa Fluor 488, fluorescencyjnego barwnika o niskiej masie cząsteczkowej (Rysunek 6).
Badania nad uszkodzeniami aksonów są powszechnie przeprowadzane przy użyciu urządzeń przedzielonych komorami. W celu wykazania zasady działania przeprowadzono eksperyment polegający na selektywnym uszkadzaniu aksonów zróżnicowanych neuronów przy użyciu wstępnie zmontowanego chipa COC (Rysunek 7). Wyniki były równoważne wynikom uzyskanym przy użyciu silikonowych urządzeń przedzielonych komorami6,13,14.

Rycina 1: Przedmontowany, wielokomorowy chip mikrofluidyczny z COC. (A) Rysunek chipu z zaznaczonymi studzienkami górnymi i dolnymi. Rozmiar chipu wynosi 75 mm x 25 mm, co odpowiada rozmiarowi standardowych szkiełek mikroskopowych. (B) Powiększony obszar pokazujący kanały oraz mikrowyżłobienia oddzielające kanały od siebie. Dodatkowe szczegóły znajdują się w pracy Nagendran et al.12. (C) Fotografia ilustrująca tworzenie izolowanych mikrośrodowisk w każdej komorze przy użyciu barwnika spożywczego. Cała rycina została powielona z 12. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
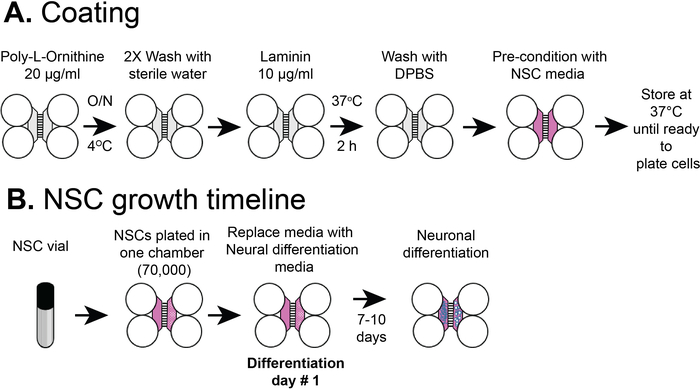
Rysunek 2: Harmonogram powlekania plastikowego chipa przedzielonego na komory oraz wysiewu komórek NSC. (A) Plastikowe chipy wielokomorowe powlekano roztworem wstępnym, a następnie poli-L-ornityną i lamininą przed wstępnym kondycjonowaniem w pożywce NSC. (B) Do komory somatycznej chipa wysiano NSCs w zagęszczeniu 7 x 10⁴ komórek. Komórki hodowano w pożywce NSC przez 24 h, a następnie pożywkę zastąpiono pożywką do różnicowania neuralnego. Zróżnicowane neurony zaobserwowano w 7–10 dniach po rozpoczęciu różnicowania. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rycina 3: Porównanie wzrostu neuronów hSC w chipach i urządzeniach PDMS. (A) Obraz w kontraście fazowym neuronów hSC hodowanych w plastikowym chipie wieloprzedziałowym 13 dni po dyferencjacji. (B) Powiększony obszar neuronów hSC hodowanych w białej ramce na zdjęciu (A) oraz odpowiadający mu obszar w urządzeniu PDMS (po prawej). Neurony hSC w chipach dobrze przylegają. W urządzeniach opartych na PDMS tworzą się agregaty klastrów neuronalnych. Wyniki reprezentatywne dla 2 niezależnych eksperymentów. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
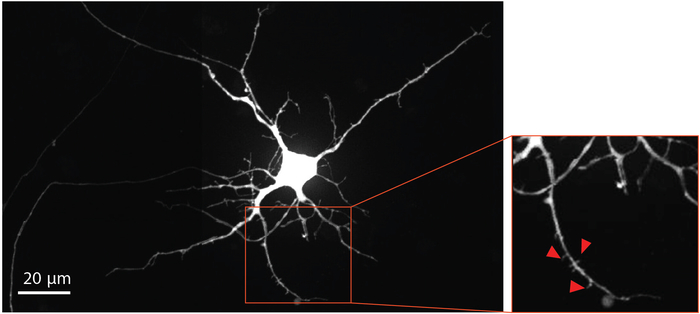
Rycina 4: Neurony pochodzące z ludzkich NSC wykazują morfologię kolców dendrytycznych. Neuron z retrogradowym znakowaniem mCherry w 33. dniu różnicowania, hodowany wewnątrz chipa. Powiększony obszar obwiedziony czerwienią podkreśla obecność kolców dendrytycznych, co stanowi dowód wspierający rozwój dojrzałych synaps glutaminergicznych. Czerwone strzałki wskazują kolce dendrytyczne. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
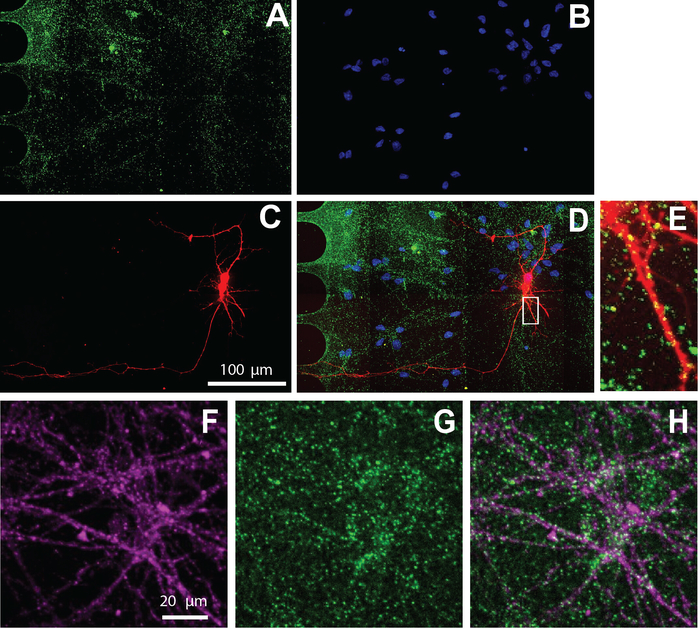
Rysunek 5: Neurony pochodzące z ludzkich NSC hodowane w chipach wykazują obecność synaps pobudzających. Immunobarwienie wykonano w 26. dniu różnicowania. Obrazowanie neuronów przeprowadzono w przedziale somatycznym. A) immunoznakowanie vGlut1 (zielony) i (B) DAPI (niebieski). (C) neurony znakowane mCherry (czerwony) znakowane retrogradnie przy użyciu zmodyfikowanego wirusa wścieklizny. (D) Nałożona mikrofotografia fluorescencyjna z (A-C). (E) Kolce dendrytyczne i punkty vGlut1-dodatnie kolokalizowane z dendrytami mCherry-dodatnimi, pokazane w powiększonym obszarze z (D). Mikrofotografie immunofluorescencyjne (F) specyficznego markera neuronalnego, β-tubuliny III (magenta), oraz (G) vGlut1 (zielony). (H) Nałożenie obrazów β-tubuliny III i vGlut1. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
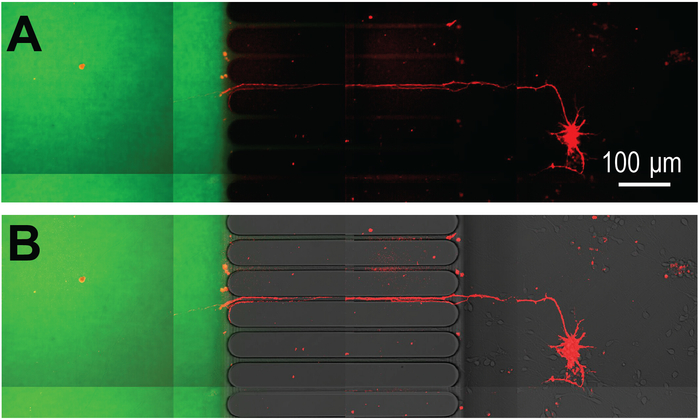
Rycina 6: Neuron mCherry przetransdukowane wirusem emitują wypustki do zlokalizowanego mikrośrodowiska aksonów utworzonego wewnątrz wcześniej zmontowanego chipa COC. (A) Neurony znakowane mCherry wysyłają aksony przez mikrorowki chipa do izolowanej komory aksonalnej. Izolacja komory aksonalnej została zobrazowana przy użyciu hydrazydy Alexa Fluor 488. Obrazowanie neuronów wykonano w 26. dniu różnicowania oraz 3 dni po zakażeniu zmodyfikowanym wirusem wścieklizny. (B) Obraz fluorescencyjny z (A) został nałożony na obraz DIC. Zwróć uwagę na położenie mikrorowków. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
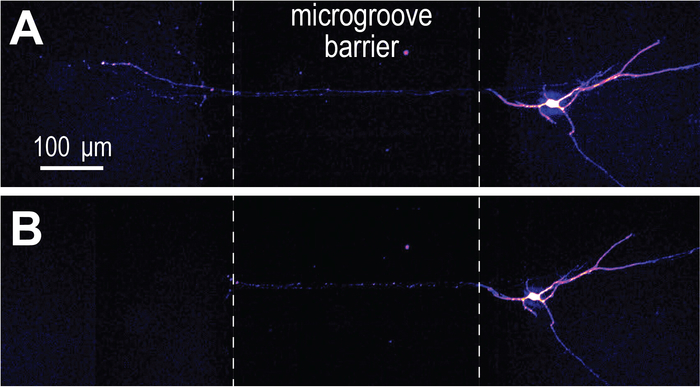
Rycina 7: Aksotomia przeprowadzona w wielokomorowym chipie COC. (A) Obraz neuronów znakowanych mCherry w 33. dniu różnicowania przed aksotomią. Tabela wyszukiwania kolorów „Fire”. (B) Stan bezpośrednio po aksotomii, pokazujący całkowite przerwanie aksonów. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
| Plastikowe chipy wielokomorowe | Wielokomorowe urządzenia z PDMS |
| izolacja aksonów | izolacja aksonów |
| tworzenie mikrośrodowisk | tworzenie mikrośrodowisk |
| przeprowadzić aksonotomię neuronów | przeprowadzić aksonotomię neuronów |
| optycznie przezroczysty | optycznie przezroczysty |
| kompatybilne z obrazowaniem o wysokiej rozdzielczości | kompatybilne z obrazowaniem o wysokiej rozdzielczości |
| kompatybilny z mikroskopią fluorescencyjną | kompatybilny z mikroskopią fluorescencyjną |
| w pełni zmontowany | wymagany montaż do podłoża |
| zdrowe aksony >21 dni | zdrowe aksony >14 dni |
| hydrofilowa powierzchnia hodowlana | hydrofobowy |
| gazoszczelny | gazoprzepuszczalny |
| zaokrąglone mikrowyżłobienia i kanały | proste mikrowycięcia |
| niekompatybilny z ablacją laserową | Może być stosowane do ablacji laserowej, gdy komory z PDMS są montowane na specjalnych szkiełkach kompatybilnych z ablacją laserową. |
| urządzenia nie można zmodyfikować w celu usunięcia górnej części | górna pokrywa jest zdejmowana w celu przeprowadzenia barwienia w mikrokanalikach |
| niekompatybilne z olejami imersyjnymi na bazie olejów mineralnych (oleje na bazie silikonu są dopuszczalne) | kompatybilne z olejami imersyjnymi na bazie olejów mineralnych |
| nieprzepuszczalny dla małych cząsteczek i rozpuszczalników organicznych | wchłanianie małych cząsteczek & rozpuszczalniki organiczne |
| Brak wycieków z chipa | powlekanie poli-L-ornityną i lamininą powoduje nieszczelność urządzeń |
| zróżnicowane neurony pozostają równomiernie rozmieszczone (> (4 tygodnie) przy badanych gęstościach komórek) | zróżnicowane neurony zaczynają agregować po 3-4 dniach hodowli przy badanych gęstościach komórek |
Tabela 1: Porównanie wielokomorowych chipów COC i urządzeń silikonowych do hodowli neuronów
Dyskusja
Wstępnie zmontowany, wielokomorowy chip COC jest łatwą w użyciu platformą z podziałami na przedziały do różnicowania i utrzymywania ludzkich NSC w neuronach przez długi czas (>4 tygodnie). W tym protokole pokazujemy różnicowanie ludzkich NSC w neurony glutaminergiczne, neurony etykietowane wstecznie, przeprowadzamy immunocytochemię, wizualizujemy morfologię kolców dendrytycznych i wykonujemy aksotomię. Chipy te są kompatybilne z obrazowaniem w wysokiej rozdzielczości i nie ma autofluorescencji w COC12.
Wielokomorowe chipy COC są funkcjonalnie równoważne urządzeniom z przedziałami na bazie silikonu i mają zalety i wady, jak opisano wcześniej12. W tabeli 1 porównano wielokomorowe chipy COC i urządzenia silikonowe do hodowli neuronów hSC. Chipy z przedziałami COC zapewniają lepszą hydrofilową powierzchnię do przyczepiania i utrzymywania komórek macierzystych przez długi okres hodowli. Urządzenia oparte na PDMS muszą być zmontowane i przymocowane do szklanych szkiełek nakrywkowych. Hydrofobowy charakter urządzeń PDMS powoduje agregację komórek macierzystych5; Prowadzi to zarówno do wyzwań związanych z obrazowaniem na poziomie komórkowym, jak i do większej podatności na uszkodzenia fizyczne spowodowane ruchem agregatów komórkowych podczas zmian pożywki. Plastikowy chip pokonuje te wyzwania. COC jest nieprzepuszczalny dla gazów, w przeciwieństwie do PDMS, więc kieszenie powietrzne uwięzione lub utworzone w kanałach muszą zostać usunięte przez użytkownika. Rozwiązanie do wstępnego powlekania zmniejsza możliwość uwięzienia powietrza w kanałach. To rozwiązanie składa się z etanolu i innych środków. Wcześniej opublikowany protokół hodowli mysich neuronów w tych plastikowych chipach dostarcza dodatkowych szczegółów na temat komórek pipetujących i pożywek w chipach12. NSC są bardziej kruche niż neurony mysie, więc muszą być traktowane delikatniej. Bardzo ważne jest również, aby dokładnie wymieszać komórki macierzyste przed posiewem, delikatnie pipetując je w górę iw dół.
Wykorzystanie neuronów pochodzących ze zróżnicowanych ludzkich komórek macierzystych in vitro staje się coraz bardziej popularne w medycynie i badaniach. Neurony te są ważne dla badań i zastosowań klinicznych w wielu zaburzeniach OUN, w tym chorobach neurodegeneracyjnych i urazowych urazach mózgu. Neurony te bardzo przypominają ludzkie neurony płodowe15. W przyszłości odpowiednio starzejące się neurony mogą być generowane z komórek macierzystych, aby naśladować funkcje neuronalne związane z wiekiem i być używane w połączeniu z tymi przedziałowymi urządzeniami. Urządzenia te ułatwią badania nad chorobami wpływającymi na zdrowie i funkcję aksonów, takimi jak deficyty aksonów w neuronach pacjentów ze zdiagnozowanymi zaburzeniami ze spektrum autyzmu i regeneracją aksonów po urazie16,17.
Oświadczenia
S.P. i T.N. deklarują brak sprzecznych interesów finansowych. V.P. jest pracownikiem Xona Microfluidics, LLC. J.H. jest członkiem Xona Microfluidics, LLC. A.M.T. jest wynalazcą komory/chipa mikroprzepływowego (US 7419822 B2, EPO 2719756 B1) i jest członkiem Xona Microfluidics, LLC.
Podziękowania
Autorzy dziękują za wsparcie ze strony Xona Microfluidics, LLC, National Institute of Mental Health (R42 MH097377) oraz National Institute of Neurological Disorders and Stroke (R41 NS108895, P30 NS045892). Wyłączną odpowiedzialność za treść ponoszą autorzy i nie muszą one reprezentować oficjalnych poglądów National Institutes of Health.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Alexa Fluor hydrazyd 488 | ThermoFisher Scientific | A10436 | |
| Przeciwciała drugorzędowe Alexa Fluor | ThermoFisher Scientific | 1:1000 | |
| anti_beta-tubulina III | Aves | TUJ | 1:1000 |
| anty-vGAT | Układy synaptyczne | 131 003 | 1:1000 |
| przeciwciało anty-vGlut1 | NeuroMab | 75-066 | klon N28/9, 1:100 |
| complete pożywka dla nerwowych komórek macierzystych: | |||
| REC HU EGF 10 UG BIOSOURCE (TM) | ThermoFisher Scientific | PHG0314 | 20 ng/ml |
| REC HU FGF BASIC 10 UG BIOSOURCE (TM) | ThermoFisher Scientific | PHG0024 | 20ng/ml |
| Suplement GlutaMAX (100X) | ThermoFisher Scientific | 35050061 | 2mM |
| KnockOut DMEM/F-12 | ThermoFisher Scientific | ||
| Suplement neuronowy StemPro | ThermoFisher Scientific | A1050801 | |
| obrazowania epifluorescencji | 2% EVOS System obrazowania fluorescencyjnego | AMF4300 | 10x obiektywna |
| American Durafilm | 50A | o grubości 0,5 mil | |
| Fluoromount G | ThermoFisher Scientific | 00-4958-02 | |
| Gibco DPBS bez wapnia i magnezu | ThermoFisher Scientific | 14190144 | |
| ZESTAW GIBCO HUMAN NSC (H9) COMBO ZESTAW | Gibco | N7800200 | |
| Gibco Laminin | ThermoFisher Scientific | 23017015 | |
| Szklane pipety Pasteura | Sigma-Aldrich | CLS7095D5X SIGMA | 5,75 o |
| DŁUGOŚCI H9-POCHODZĄCE Z HU, KOMÓRKI/ 1E6 KOMÓREK/FIOLKĘ; 1 ML | ThermoFisher Scientific | 510088 | |
| hibernate-E Medium | A1247601 | ThermoFisher Scientific | |
| , 5% CO2 37 ° C | |||
| Laserowy skaningowy system obrazowania konfokalnego | Olympus | FV3000RS | 30x obiektywnie |
| zmodyfikowany wirus wścieklizny | Salk Institute for Biological Studies | G-deleted Rabies-eGFP | Wymagana umowa o transferze materiału |
| Pan Frosty | ThermoFisher Scientific | 5100-0001 | |
| Neural differentiation media | Per 100 mL. | ||
| Antybiotyk-Antybiotyk (100x) | ThermoFisher Scientific | 15240112 | 1mL (100X) |
| Kwas askorbinowy | Sigma Aldrich | A8960 | 200mM |
| BDNF | ThermoFisher Scientific | PHC7074 | 40 ng/ml |
| Suplement Gibco B27 Plus (50X) | FisherScientific | A3582801 | 2mL (50X) |
| Suplement Gibco CultureOne (100X) | FisherScientific | A3320201 | 1mL (100X) |
| Gibco Neurobasal Plus Medium | FisherScientific | A3582901 | |
| StemPro Odczynnik do dysocjacji komórek | ThermoFisher Scientific | A1110501 | |
| Taylor Wharton Liquid N2 dewar | FisherScientific | 20HCB11M | |
| tryton X-100 | ThermoFisher Scientific | 28314 | |
| Powłoka wstępna XC | Xona Microfluidics, LLC | Powłoka wstępna XC | dołączona do XonaChips |
| XonaChip Xona | Microfluidics, LLC | XC450 | 450 µ Bariera z mikrorowkami o długości m |
| Taca nawilżacza | Xona Microfluidics, LLC | Taca |
Bibliografia
- Taylor, A. M., Wu, J., Tai, H. C., Schuman, E. M. Axonal translation of beta-catenin regulates synaptic vesicle dynamics. The Journal of Neuroscience. 33 (13), 5584-5589 (2013).
- Virlogeux, A., et al. Reconstituting Corticostriatal Network on-a-Chip Reveals the Contribution of the Presynaptic Compartment to Huntington’s Disease. Cell Reports. 22 (1), 110-122 (2018).
- Neto, E., et al. Compartmentalized Microfluidic Platforms: The Unrivaled Breakthrough of In Vitro Tools for Neurobiological Research. The Journal of Neuroscience. 36 (46), 11573-11584 (2016).
- Pinto, M. J., et al. The proteasome controls presynaptic differentiation through modulation of an on-site pool of polyubiquitinated conjugates. The Journal of Cell Biology. 212 (7), 789-801 (2016).
- Bigler, R. L., Kamande, J. W., Dumitru, R., Niedringhaus, M., Taylor, A. M. Messenger RNAs localized to distal projections of human stem cell derived neurons. Scientific Reports. 7 (1), 611(2017).
- Nagendran, T., et al. Distal axotomy enhances retrograde presynaptic excitability onto injured pyramidal neurons via trans-synaptic signaling. Nature Communications. 8 (1), 625(2017).
- Van Laar, V. S., et al. Evidence for compartmentalized axonal mitochondrial biogenesis: Mitochondrial DNA replication increases in distal axons as an early response to Parkinson's disease-relevant stress. The Journal of Neuroscience. , (2018).
- del Río, J. A., Ferrer, I., Gavín, R. Role of cellular prion protein in interneuronal amyloid transmission. Progress in Neurobiology. 165-167, 87-102 (2018).
- Jia, L., et al. MiR-34a Regulates Axonal Growth of Dorsal Root Ganglia Neurons by Targeting FOXP2 and VAT1 in Postnatal and Adult Mouse. Molecular Neurobiology. , (2018).
- Taylor, A. M., Dieterich, D. C., Ito, H. T., Kim, S. A., Schuman, E. M. Microfluidic local perfusion chambers for the visualization and manipulation of synapses. Neuron. 66 (1), 57-68 (2010).
- Menon, S., et al. The E3 Ubiquitin Ligase TRIM9 Is a Filopodia Off Switch Required for Netrin-Dependent Axon Guidance. Developmental cell. 35 (6), 698-712 (2015).
- Nagendran, T., Poole, V., Harris, J., Taylor, A. M. Use of Pre-Assembled Plastic Microfluidic Chips for Compartmentalizing Primary Murine Neurons. Journal of visualized experiments : JoVE. (141), (2018).
- Taylor, A. M., et al. A microfluidic culture platform for CNS axonal injury, regeneration and transport. Nature Methods. 2 (8), 599-605 (2005).
- Taylor, A. M., et al. Axonal mRNA in uninjured and regenerating cortical mammalian axons. The Journal of Neuroscience. 29 (15), 4697-4707 (2009).
- Oh, J. H., Jung, C. R., Lee, M. O., Kim, J., Son, M. Y. Comparative analysis of human embryonic stem cellderived neural stem cells as an in vitro human model. International Journal of Molecular Medicine. 41 (2), 783-790 (2018).
- Lazar, M., Miles, L. M., Babb, J. S., Donaldson, J. B. Axonal deficits in young adults with High Functioning Autism and their impact on processing speed. Neuroimage Clinical. 4, 417-425 (2014).
- DePaul, M. A., Lin, C. Y., Silver, J., Lee, Y. S. Combinatory repair strategy to promote axon regeneration and functional recovery after chronic spinal cord injury. Scientific Reports. 7 (1), 9018(2017).
Przedruki i uprawnienia
Tagi
Neurony z ludzkich komórek macierzystychprzedziałowanie na chipach mikroprzepływowychchipy z kopolimeru cyklicznego olefinowegoprotokół różnicowania neuronalnegoprocedura znakowania wirusowegotechnika aksotomiimetoda immunocytochemicznahodowla neuronów glutaminergicznychanaliza rozwoju synapstworzenie kolców dendrytycznych
