Prezentowany tutaj jest protokół do określania liczby wciornastków i drobnych drapieżników owadów pirackich w uprawach w wielu terminach w doświadczeniach polowych. Przedstawiono również, w jaki sposób określić skuteczność taktyki zarządzania przeciwko wciornastkom i ocenić korzyści płynące z drapieżnictwa przez drobne robaki pirackie.
Artykuł metodologiczny
Pobieranie próbek w celu oszacowania gatunków Frankliniella, wciornastków kwiatowych i drapieżników z gatunku Orius w doświadczeniach terenowych
W tym artykule
Podsumowanie
Streszczenie
Zachodni wciornastek kwiatowy, Frankliniella occidentalis (Pergande), jest polifagicznym szkodnikiem, który rozprzestrzenił się na całym świecie. Szerokie stosowanie insektycydów w próbach kontrolowania jego populacji eliminuje naturalnych wrogów i konkurencyjne gatunki wciornastków kwiatowych, zwiększając w ten sposób jego populacje. Rozwija się niezrównoważona sytuacja z towarzyszącymi odpornymi populacjami szkodników, wtórnymi ogniskami agrofagów i degradacją środowiska. Zintegrowana ochrona przed szkodnikami wykorzystuje wiedzę na temat relacji między szkodnikami a naturalnymi wrogami w celu wdrożenia taktyki, która jest przyjazna dla środowiska i zrównoważona. Drobne robaki pirackie są najważniejszymi światowymi drapieżnikami wciornastków. Mogą tłumić i ostatecznie kontrolować wciornastki kwiatowe gatunków Frankliniella. Próbki kwiatów pobierane co najmniej raz w tygodniu są potrzebne do zrozumienia dynamiki drapieżnik-ofiara. Pokazano tutaj pobieranie próbek kwiatów warzyw owocujących i roślin towarzyszących w celu oszacowania zagęszczenia poszczególnych wciornastków i drobnych gatunków pluskwiaków pirackich. Reprezentatywne dane ilustrują, w jaki sposób protokół jest wykorzystywany do określania skuteczności taktyk zarządzania w czasie oraz jak oceniać korzyści płynące z drapieżnictwa przez drobne pirackie robaki. Protokół pobierania próbek można również dostosować do pobierania próbek wciornastków i drobnych pluskwiaków pirackich u innych gatunków żywicieli roślin.
Wprowadzenie
Zachodni wciornastek kwiatowy, Frankliniella occidentalis (Pergande), był jednym z pierwszych wielkich szkodników, które rozprzestrzeniły się na całym świecie w wyniku globalizmu i międzynarodowego handlu produktami rolnymi. Szkody gospodarcze wynikają bezpośrednio z żerowania i składania jaj, a pośrednio z przenoszenia wirusów chorobotwórczych dla roślin. Populacje inwazyjne były już w dużej mierze odporne na większość klas insektycydów, a próby kontrolowania populacji za pomocą insektycydów tylko zwiększyły szkody poprzez eliminację ważnych naturalnych wrogów i konkurencyjnych gatunków. Takie podejście do kontroli zdestabilizowało programy zarządzania i doprowadziło do powstania odpornych populacji szkodników, wtórnych epidemii szkodników i degradacji środowiska1.
Zintegrowane programy zwalczania szkodników zostały opracowane na podstawie wiedzy o relacjach między szkodnikami a naturalnymi wrogami oraz o wpływie taktyki zarządzania na te relacje. Od dawna uważano, że cechy populacji charakteryzujące się szybką kolonizacją i wzrostem przewyższają zdolności naturalnych wrogów do regulowania oportunistycznych zachodnich wciornastków kwiatowych; to znaczy, dopóki nie wykazano, że drapieżnictwo z naturalnych populacji Orius insidiosus (Say) nie tylko spowodowało zahamowanie populacji zachodnich wciornastków kwiatowych, ale także spadek populacji w kierunku wyginięcia2. Co więcej, zachodni wciornastek kwiatowy jest w większości zasiedlany przez kwiaty, w którym konkuruje o pyłek i inne zasoby kwiatowe z rodzimymi polifagicznymi wciornastkami kwiatowymi.
W większości wschodnich Stanów Zjednoczonych głównym rodzimym konkurentem jest Frankliniella tritici (Fitch), podczas gdy na południu Florydy głównym konkurentem jest Frankliniella bispinosa (Morgan)3. Wciornastki zachodnie cierpią na Florydzie na silną odporność biotyczną ze strony rodzimych gatunków drapieżników i konkurencyjnych gatunków wciornastków kwiatowych; Jest to jednak gatunek dominujący w siedliskach zakłóconych przez insektycydy i inne taktyki, które wykluczają konkurencyjne wciornastki i naturalnych wrogów. Dlatego kluczowym elementem udanych programów integrowanej ochrony przed szkodnikami warzyw owocowych jest zwiększone drapieżnictwo i konkurencja3,4. Programy te zostały opracowane w oparciu o wiedzę na temat dynamiki drapieżnik-ofiara oraz skuteczności różnych taktyk zwalczania wciornastków i zwiększania odporności biotycznej. W tym artykule przedstawiono metodologię zastosowaną do oszacowania zagęszczenia poszczególnych wciornastków i drobnych gatunków pluskwiaków pirackich w kwiatach warzyw owocowych i roślin towarzyszących na Florydzie. Dane są wykorzystywane do określenia skuteczności taktyk zarządzania i oceny korzyści płynących z drapieżnictwa przez drobne pirackie robaki.
Projektowanie protokołu pobierania próbek wciornastków kwiatowych: informacje ogólne
Gdy w latach 80. XX wieku wciornastki zachodnie stały się głównym szkodnikiem5, konieczne było opracowanie procedur pozwalających na dokładne, efektywne i precyzyjne określenie liczby poszczególnych gatunków wciornastków w badaniach terenowych. Opisane tutaj procedury zostały opracowane na podstawie wiedzy zdobytej w licznych badaniach przeprowadzonych w celu zrozumienia biologii i leczenia wciornastków kwiatowych. Przykłady takich badań obejmują prace Funderburka i wsp.2, Hansen et al.6, Salguero Navas et al.7, Sutherland et al.8 oraz Tyler-Julian et al.9. Stężenie gatunków Frankliniella i drobnych pluskwiaków pirackich w kwiatach jest oparte na zachowaniu, a nie jest artefaktem aplikacji środków owadobójczych lub pobierania próbek6. Oszacowanie populacji w kwiatach w stosunku do innych części roślin zwykle wystarcza do zrozumienia lokalnej dynamiki drapieżnika i ofiary na żywicielu rośliny i oceny korzyści płynących z programów kontroli biologicznej opartych na stosunku drapieżnika do ofiary. Metodologia opracowana dla kwiatów może być jednak dostosowana do pobierania próbek z innych części roślin. Zwykłą jednostką próbki jest jeden lub więcej kwiatów. Liczba próbek potrzebnych do osiągnięcia pożądanego poziomu precyzji jest funkcją gęstości populacji i liczby kwiatów w jednostce próby.
Gatunki Frankliniella wydają się być zagregowanym rozkładem w kwiatach, a populacje zazwyczaj koncentrują się w kwiatach górnej części baldachimu rośliny7. W większości badań kwiaty są wybierane losowo z górnej połowy rośliny. Względne techniki usuwania wciornastków z kwiatów, w tym mycie płynem, mechaniczne usuwanie lub suszenie, są niedokładne i nieprecyzyjne8. Z tego powodu stosuje się technikę bezpośredniego liczenia, szacowania bezwzględnego. Wciornastki to małe organizmy o wielkości około 2 mm w Iength, a mikroskopia jest zwykle konieczna do dokładnego określenia gatunku. Kwiaty stanowiące jednostkę próbki umieszcza się w fiolce o stężeniu 70% alkoholu. Po pobraniu próbek fiolki z każdej działki są zwracane do laboratorium w celu ekstrakcji wciornastków i drobnych robaków pirackich oraz dokładnego określenia płci, gatunku i stadium każdego z nich. Eksperymenty składają się z replikowanych wykresów terenowych, które są wykorzystywane do oceny skuteczności zabiegów mających na celu stłumienie wciornastków oraz korzyści płynących z drapieżnictwa przez drobne robaki pirackie. Próbki kwiatów pobiera się co najmniej raz w tygodniu w okresie kwitnienia żywiciela rośliny. Losowe projekty eksperymentalne kompletnych bloków są przydatne w usuwaniu z błędu eksperymentalnego różnic w wciornastkach i niewielkiej gęstości błędów pirackich między blokami. Układy leczenia na poletkach podrzędnych są przydatne do zmniejszenia międzydziałkowych efektów taktyki zarządzania, które wpływają na ruch wciornastków9.
Przetwarzanie i analiza próbek kwiatów: informacje ogólne
Przed 1990 rokiem, klucze do gatunków wciornastków były opracowywane do użytku przez specjalistów taksonomicznych, którzy umieszczali wciornastki do identyfikacji na szkiełkach mikroskopowych za pomocą jednego z kilku nośników montażowych. Naukowcy zajmujący się biologią wciornastków i leczeniem wciornastków nie byli specjalistami w dziedzinie taksonomii i nie było udziału specjalistów taksonomicznych w badaniach. Zazwyczaj wciornastki w próbkach z tych badań były wrzucane do jednego worka z poziomami klasyfikacji rodzaju, rodziny, podrzędu lub rzędu. Po rozprzestrzenieniu się zachodnich wciornastków kwiatowych nastąpiło: 1) szybkie rozpowszechnienie badań dotyczących biologii i leczenia wciornastków oraz 2) uznanie przez naukowców potrzeby identyfikacji gatunków wciornastków i opracowania wydajnego systemu przetwarzania próbek.
W badaniach z połowy lat 90. dotyczących biologii populacji wciornastków, dorosłe wciornastki z próbek były umieszczane na szkiełkach mikroskopowych i identyfikowane według gatunków przez specjalistę taksonomicznego R. J. Besheara (np. Salguero Navas et al.7). Larwy zostały zidentyfikowane tylko do rodzaju ze względu na brak dostępnych w tym czasie kluczy identyfikacyjnych larw. Montaż prowadnicy był kosztowny i pracochłonny, a opracowano bardziej wydajny system2. W kolejnych badaniach wciornastki w próbkach zostały wyekstrahowane z kwiatów na szalce Petriego zawierającej 70% alkoholu, a samce i samice na szalce Petriego zostały zidentyfikowane jako gatunki za pomocą stereoskopii. Większość naszych badań dotyczy gatunków Frankliniella. Dorosłe osobniki tych gatunków zostały rozdzielone na gatunki pod stereoskopem na podstawie różnic w ich chaetotaksji na grzbietowej powierzchni przedplecza, głowy i czułków10,11,12.
Zdobyto dodatkowe doświadczenie w taksonomii wciornastków, aby rozpoznać i zidentyfikować inne rodzaje i gatunki wciornastków w próbkach. Na całym świecie istnieje wiele gatunków Orius, które są ważnymi drapieżnikami wciornastków. Dwa gatunki, O. insidiosus i O. pumilio (Champion), są sympatryczne w dużej części Florydy13. Dorosłe osobniki tych gatunków są oddzielone cechami kolorystycznymi podstawnego segmentu czułka, kości udowej tylnej nogi i klina na skrzydle. Wciornastki różnią się gatunkami i płciami pod względem biologii i zachowania; W związku z tym dane dla każdego z nich są zazwyczaj analizowane oddzielnie. Ponieważ populacje wciornastków w kwiatach mają zagregowany wzorzec rozmieszczenia, dane wymagają transformacji, aby ustabilizować różnice między zabiegami. Średnie leczenia są porównywane przy użyciu analizy wariancji odpowiedniej dla projektu eksperymentalnego, a dane są analizowane dla każdej indywidualnej daty i/lub dla danych zebranych w ciągu dnia2,9. Analiza wpływu na poszczególne daty jest ważna, gdy różnice w leczeniu różnią się w czasie. Stosunek całkowitej liczby wciornastków (dorosłych i larw) na minutę pluskwiaka pirackiego (dorosłego osobnika i nimfy) służy do oceny skuteczności kontroli biologicznej z drobnymi pluskwiakami pirackimi w badaniach terenowych na Florydzie, tłumiących populacje wciornastków w stosunku około jednego drapieżnika na każde 180 wciornastków2,9.
Protokół
1. Eksperyment polowy w celu określenia wpływu ściółkowania odblaskowego w zakresie UV, kaolinu oraz roślin towarzyszących na tripsy kwiatowe i ich drapieżnika – pluskwiaka z rodzaju Orius
- Zaprojektowano doświadczenie polowe z układem dzielonym dwukrotnie (split-split-plot) w ramach randomizowanego pełnego bloku, w którym zabiegami w głównych polecie były rodzaje ściółki, zabiegami w podpolecie zastosowanie kaolinu i brak kaolinu, a zabiegami w najmniejszych poletkach rośliny towarzyszące i brak roślin towarzyszących (Rysunek 1A,B)9,14.
- Wyznacz bloki pomidorów lub papryki, z których każdy ma szerokość co najmniej 6 m i długość 72 m.
- W każdym bloku należy losowo rozmieścić pełne parcele z mulczem czarnym oraz mulczem odbijającym promienie UV, przy czym każda pełna parcela powinna składać się z sześciu podwyższonych grządek ściółkowych o długości co najmniej 36 m.
- W czterech wewnętrznych grządkach każdej pełnej działki posadź jeden liniowy rząd pomidorów co 45 cm lub dwa liniowe rzędy papryki co 30 cm.
- Obróbka kaolinem
- Każdą pełną działkę należy losowo podzielić na równe poddziałki z zastosowaniem traktowania kaolinem lub bez niego.
- Stosować kaolin raz lub dwa razy w tygodniu w dawce 7,0 kg/ha na roślinach pomidora lub papryki w poddziałkach przeznaczonych do zabiegu z kaolinem.
- Rośliny towarzyszące
- Losowo podziel każdą poletkę doświadczalną na równe podpoletki z roślinami towarzyszącymi lub bez roślin towarzyszących.
- Posadź dwa liniowe rzędy Bidens alba (L.) co 30 cm lub jeden rząd liniowy Helianthus annuus L. co 30 cm w dwóch zewnętrznych grządkach każdego podpodziału doświadczalnego w wariancie z roślinami towarzyszącymi.
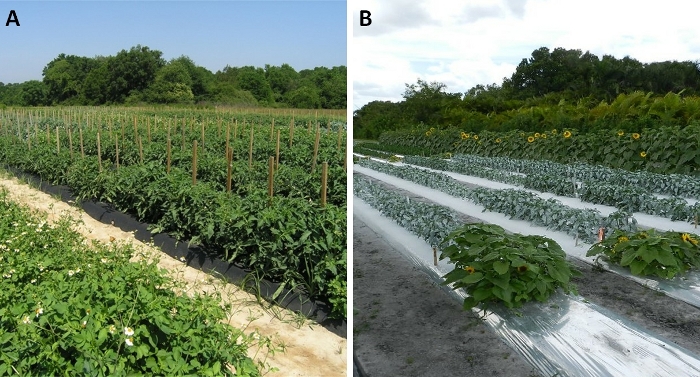
Rysunek 1: Przykład eksperymentalnego badania polowego.
(A) Zrandomizowany układ blokowy do oceny oddzielnych i interaktywnych efektów roślin towarzyszących, ściółkowania oraz kaolinu na tripsy kwiatowe i pluskwawce drapieżne. (B) Bidens alba (L.) oceniany jako gatunek rośliny towarzyszącej przy uprawie pomidora9. Helianthus annuus L. oceniany jako gatunek rośliny towarzyszącej przy uprawie papryki14. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
2. Protokół pobierania próbek tripsów kwiatowych
- Przygotuj probówki na próbki o pojemności 50 ml przed udaniem się do poletek doświadczalnych.
- Na zewnątrz i wewnątrz każdej probówki umieść etykietę z oznaczeniem rodzaju ściółkowania, kaolinu i rośliny towarzyszącej, numerem bloku oraz datą pobrania próbki.
- Do każdej fiolki o pojemności 50 ml należy wlać dokładnie 30 ml 70% alkoholu.
- Umieść fiolki w taczce.
- Przenieś tace do miejsca prowadzenia doświadczenia w terenie.
- Pobierz próbki kwiatów w celu sprawdzenia obecności wiciowców i pluskwiaków z rodzaju *Orius*.
- Losowo przydziel rośliny pomidora lub papryki do pobrania próbek w każdym pod-podparcelowaniu.
- Pobranie próbki między południem a połową popołudnia.
- Pobrać próbki z górnej połowy rośliny.
- Zdejmij zakrętkę z fiolki. Za pomocą ostrej żyletki lub nożyczek ostrożnie oddziel kwiat od rośliny. Szybko umieść kwiat w odpowiednio oznakowanej wcześniej fiolce. Wciśnij kwiat do alkoholu w fiolce (Rysunek 2). Zamknąć pokrywkę.
- Zebrać 10 kwiatów na każdą próbkę. Upewnić się, że każda probówka jest szczelnie zamknięta, a następnie wstrząsnąć każdą probówką, aby upewnić się, że kwiaty są zanurzone w alkoholu.
- Należy zwrócić tacki z próbkami do laboratorium w celu ich przechowywania. Aby zapobiec degradacji próbek przed ich przetworzeniem, należy przechowywać je w chłodnym i suchym miejscu. Jeśli to możliwe, należy je chłodzić, zwłaszcza w przypadku próbek, które nie zostaną przetworzone niezwłocznie.
- Powtarzać pobieranie próbek z każdej poddziałki co najmniej raz w tygodniu w okresie kwitnienia uprawy.
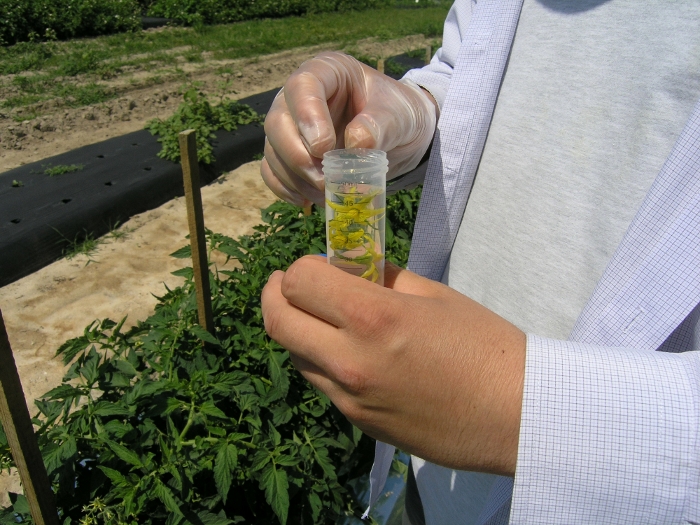
Rysunek 2: Technika pobierania próbek.
Pobieranie próbki 10 kwiatów pomidora z podpodziału w eksperymencie push-pull z pomidorami9. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
3. Przetwarzanie próbek w laboratorium
- Wyizoluj wciornastki i pluskwiaki z rodzaju Orius z kwiatów w każdej próbce.
- Wyjmij próbkę z lodówki i tacy, uważając, aby nie poruszyć zawartości.
- Zdejmij zakrętkę z fiolki i ostrożnie odessij pipetą nadmiar alkoholu znajdujący się nad kwiatami.
- Ponownie zakręć fiolkę i wstrząśnij nią, aby uwolnić wciornastki i pluskwiaki z wnętrza kwiatów.
- Otwórz fiolkę i wlej zawartość do szalki Petriego. Przepłucz wnętrze fiolki 70% alkoholem i wlej płuczkę do szalki Petriego. Upewnij się, że wszystkie wciornastki i pluskwiaki z fiolki zostały przelane do szalki Petriego.
- Rozdziel każdy kwiat za pomocą pęsety i przepłucz 70% alkoholem, aby upewnić się, że wszystkie wciornastki i pluskwiaki zostały usunięte. Wyjmij i odrzuć części kwiatów z szalki Petriego (Rysunek 3).
- Przenieś szalkę Petriego na stolik stereomikroskopu z powiększeniem 40x–150x.
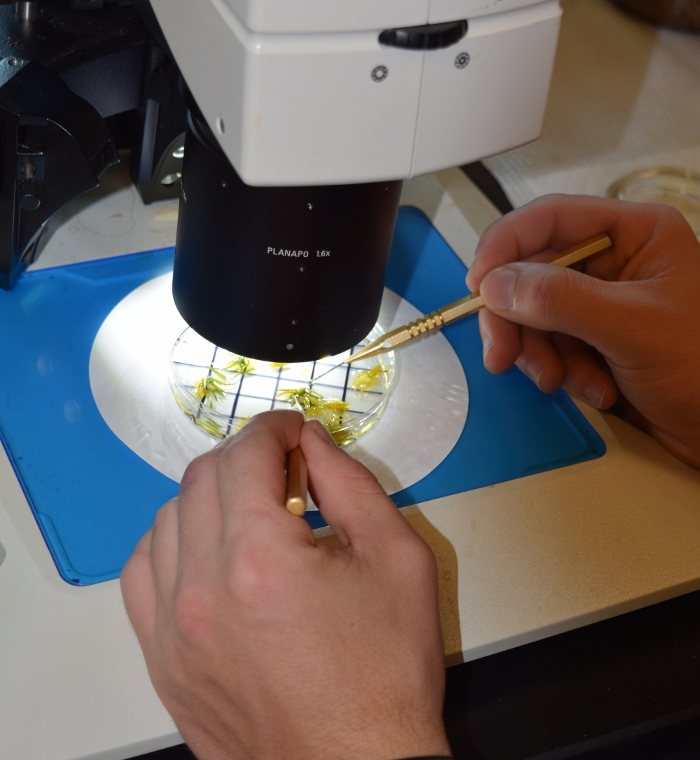
Rysunek 3: Wyodrębnianie tripsów i pluskwiek z kwiatów.
Próbka 10 kwiatów pomidora przelana do szalki Petri w celu przetworzenia i ustalenia liczby tripsów oraz pluskwiek. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
- Zidentyfikuj i policz tripsy kwiatowe w próbkach.
- W każdej siatce zidentyfikuj i policz liczbę dorosłych samców i samic każdego gatunku tripsów kwiatowych oraz liczbę larw gatunków Frankliniella.
- Zidentyfikuj dorosłe gatunki tripsów kwiatowych występujących na Florydzie na podstawie szczecinek na przedpleczu, głowie i drugim członie czułka10,11,12.
- Oddziel dorosłe osobniki F. bispinosa od dorosłych F. tritici i F. occidentalis na podstawie większej grubości dwóch szczecinek na przednim brzegu grzbietowym drugiego członka czułka (Rycina 4).
- Oddziel dorosłe F. occidentalis od F. bispinosa i F. tritici na podstawie niemal równych długości przednich szczecinek marginesowych i przednich szczecinek kątowych na przedpleczu oraz dłuższych czwartych szczecinek pozakątowych na głowie (Rycina 4).
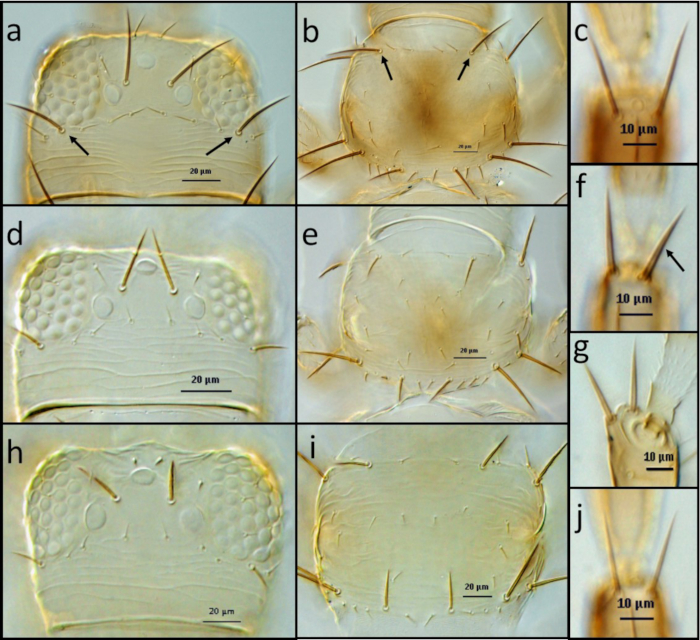
Rysunek 4: Przykłady cech morfologicznych służących do identyfikacji thripsów.
(A,B,C) F occidentalis: głowa (A), strzałki wskazują parę IV szczecinek pozawzrokowych; przedplecze (B), strzałki wskazują parę długich szczecinek przedmargynalnych; dystalne szczecinki grzbietowe drugiego segmentu anteny (B). (D,E,F,G) F. bispinosa: głowa (D); przedplecze (E); dystalne szczecinki grzbietowe drugiego segmentu anteny (F,G), strzałka wskazuje grubą szczecinkę (F), widok boczny grubej szczecinki (G). (H,I,J) F. tritici: głowa (H); przedplecze (I); dystalne szczecinki grzbietowe drugiego segmentu anteny (J). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
- Identyfikacja i zliczanie pluskwiaków pirackich w próbkach z Florydy.
- Zidentyfikuj i policz w każdej siatce liczbę osobników dorosłych *O. insidiosus* i O. pumilio or liczba nimf Orius gatunki13,15.
- Zidentyfikuj osobnika dorosłego O. insidiosus przez brązowe bazalne segmenty czułków, uda z ciemnymi oznaczeniami oraz ciemnobrązowy kuneus.
- Zidentyfikuj osobnika dorosłego *O. pumilio* przez żółte podstawowe człony czułków, żółte lub słomkowe uda oraz przez cuneus o bladosłomkowej lub jasnobrązowej barwie.
- Zsumuj liczby z każdej siatki, aby określić całkowitą liczbę dorosłych samców i samic każdego gatunku tripsów kwiatowych oraz liczbę Frankliniella larwy gatunków, liczba osobników dorosłych pluskwiaków z rodzaju *Orius* każdego z gatunków oraz liczba nimf pluskwiaków z rodzaju *Orius* w próbce.
- Wybierz reprezentatywne okazy voucherowe dorosłych osobników tripsów kwiatowych oraz pluskiew z rodzaju *Orius* z pobranych próbek. Oznacz je datą, rośliną żywicielską, lokalizacją oraz nazwiskiem kolektora. Przygotuj okazy do długoterminowego przechowywania.
- Przenieś dane z każdej próbki do arkusza kalkulacyjnego zawierającego datę pobrania próbki, rodzaj opracowania oraz powtórzenie.
- Utwórz plik danych zawierający dane z każdej próbki. Uwzględnij lokalizację eksperymentu, plan doświadczenia oraz ilości i daty każdego zabiegu agrotechnicznego zastosowanego w celu założenia i prowadzenia eksperymentu.
- Należy konserwować i zarządzać plikiem danych, zapewniając odpowiednią kopię zapasową w celu umożliwienia długoterminowego dostępu.
Wyniki
Dane zebrane w badaniu przeprowadzonym przez Tyler-Julian i wsp.9 mogą posłużyć do wykazania oddzielnych i połączonych efektów czynników wypychających (tj. ściółkowania folią odbijającą promieniowanie ultrafioletowe oraz aplikacji kaolinu) i czynnika przyciągającego (tj. rośliny towarzyszącej, która jest kocianką białą, B. alba) na dynamikę populacji dorosłych samców i samic F. occidentalis w kwiatach pomidora (Rycina 1A). Zabiegi z użyciem rolniczej ściółki plastikowej w eksperymencie zostały zastosowane w celu utworzenia grządek w systemie z podwyższonymi grządkami i ściółkowaniem plastikowym, który jest typowy dla systemów produkcji wysokowartościowych warzyw na Florydzie. Mechanizmem działania ściółki odbijającej promieniowanie ultrafioletowe w zwalczaniu szkodników jest odstraszanie wizualne, które zaburza poszukiwanie gospodarza przez dorosłe tripsy. Aplikacja kaolinu na rośliny pomidora również odbija wystarczającą ilość światła ultrafioletowego, aby odstraszyć dorosłe tripsy. W związku z tym w eksperymencie zastosowano schemat bloków randomizowanych z podziałem na podparcelki i pod-podparcelki (split-split plot randomized complete block design), aby zredukować interferencję między parcelami w ruchu tripsów wynikającą z właściwości odbijających promieniowanie ultrafioletowe ściółki i zabiegów z kaolinem, gdzie zabieg ściółkowaniem (ściółka odbijająca promieniowanie ultrafioletowe vs konwencjonalna ściółka czarna) stanowił parcelę główną, zabieg kaolinem (aplikacja kaolinu dwa razy w tygodniu vs brak kaolinu) podparcelkę, a zabieg z rośliną towarzyszącą (rośliny towarzyszące vs brak roślin towarzyszących) pod-podparcelkę. Wielkość pod-podparcelki wynosiła sześć grządek o długości 9 m, przy czym cztery wewnętrzne grządek każdej pod-podparcelki składały się z jednego liniowego rzędu pomidorów z odstępem 45 cm między roślinami, co dawało łącznie 80 roślin na pod-podparcelkę. Dwa rzędy kocianki białej zostały posadzone w każdej z dwóch zewnętrznych grządek w pod-podparcelkach z roślinami towarzyszącymi, z odstępami 30 cm wewnątrz i między rzędami, co dało łącznie 128 roślin towarzyszących na pod-podparcelkę.
W każdym podsegmentie pobrano dwie próbki po 10 kwiatów pomidora w każdym z 13 terminów w 2011 roku podczas okresu kwitnienia pomidorów, a następnie określono liczbę dorosłych samców i samic F. occidentalis w każdej próbce (Rycina 5). Wpływ ściółki, kaolinu i roślin towarzyszących na każdą płeć analizowano za pomocą analizy wariancji dla zrandomizowanego kompletnego układu blokowego w schemacie podzielonych pól (split-split plot) dla danych z różnych dat poboru próbek, wykorzystując model mieszany (pełny opis analizy wariancji i wyników znajduje się w pracy Tyler-Julian et al.9). Główne efekty ściółki, kaolinu i roślin towarzyszących były istotne dla samców wiciowca zachodniego (odpowiednio p < 0,01, 0,001 i 0,001), natomiast efekty interakcji: ściółka X kaolin, ściółka X rośliny towarzyszące, kaolin X rośliny towarzyszące oraz ściółka X kaolin X rośliny towarzyszące nie były istotne (p > 0,05). Wyniki te wykazały, że każdy z głównych czynników zredukował liczbę dorosłych samców F. occidentalis, a efekty poszczególnych metod były addytywne po ich połączeniu.
Główny efekt ściółkowania był istotny dla samic F. occidentalis (p < 0,01), natomiast główne efekty zastosowania kaolinu i roślin towarzyszących nie były istotne dla samic F. occidentalis (p > 0,05). Zatem ściółka odbijająca promieniowanie ultrafioletowe zredukowała liczbę samic F. occidentalis w kwiatach pomidora, ale kaolin i rośliny towarzyszące nie przyniosły takiego efektu. Jednakże interakcja ściółka X kaolin była istotna (p < 0,05), co wskazuje, że połączone działanie ściółki odbijającej promieniowanie ultrafioletowe oraz kaolinu zredukowało liczbę samic F. occidentalis w większym stopniu niż każda z tych metod stosowana osobno, podczas gdy kaolin zastosowany na pomidorach na czarnej ściółce nie zredukował liczebności samic F. occidentalis. Interakcje ściółka X rośliny towarzyszące, kaolin X rośliny towarzyszące oraz ściółka X kaolin X rośliny towarzyszące dla samic F. occidentalis nie były istotne (p > 0,05).
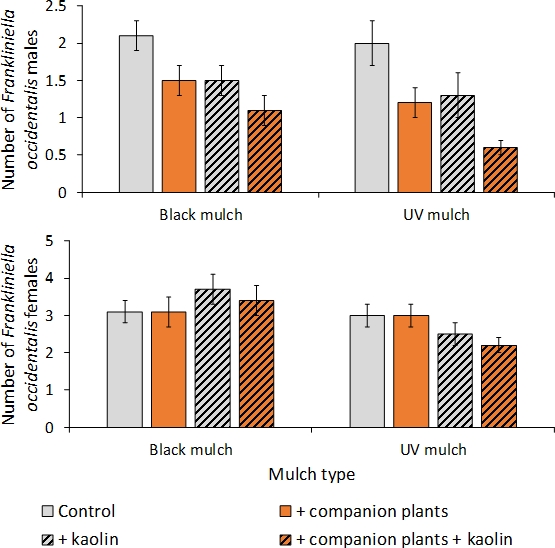
Rysunek 5: Przykład analizy danych w zależności od daty pobrania próbek.
Średnia liczba (SEM) dorosłych samców i samic F. occidentalis na 10 kwiatów pomidora w wariantach ze ściółką, kaolinem i roślinami towarzyszącymi, dla danych zebranych w ciągu 13 dat w 2011 roku w eksperymencie typu push-pull przeprowadzonym w hrabstwie Gadsden na Florydzie. Rysunek został zmodyfikowany na podstawie pracy Tyler-Julian i wsp.9
Oddziaływanie ściółki X data z próbek była istotna w eksperymencie w 2011 roku dla osobników płci męskiej i żeńskiej *F. occidentalis* dorośli (p < odpowiednio 0,01 i 0,001)9Wykazało to, że ściółka odbijająca promieniowanie ultrafioletowe zmniejszyła liczbę tripsów kwiatowych w niektórych, lecz nie we wszystkich terminach poboru prób. W związku z tym przeprowadzono dodatkowe analizy w celu oceny wpływu ściółki w poszczególnych terminach poboru prób. Interakcja wykazała, że ściółka odbijająca promieniowanie ultrafioletowe była skuteczna w ograniczaniu liczebności tripsów kwiatowych na początku sezonu, natomiast w poszczególnych terminach poboru prób w środkowej lub późnej fazie sezonu nie odnotowano istotności (Rysunek 6).
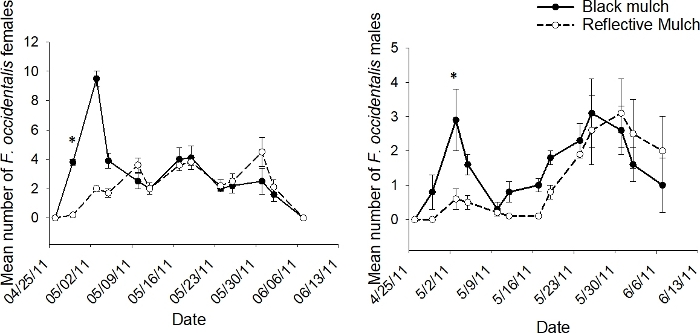
Rycina 6: Przykład dynamiki populacji dla traktowania całej działki.
Średnia liczba (+SEM) na 10 kwiatów pomidora (n = 18 próbek) dorosłych samców i samic F. occidentalis w każdym dniu pobierania próbek w 2011 roku w wariancie traktowania całej działki ściółką czarną i odblaskową w ultrafiolecie dla danych połączonych z traktowaniem kaolinem i roślinami towarzyszącymi w eksperymentach typu push-pull przeprowadzonych w hrabstwie Gadsden na Florydzie (* oznacza istotność powyżej 95% poziomu istotności zgodnie z analizą wariancji przeprowadzoną dla poszczególnych dat pobrania próbek; d.f. = 1, 2). Rycina ta została zmodyfikowana na podstawie pracy Tyler-Julian et al.9. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Interakcja kaolinu X data próbkowania nie była istotna w 2011 roku dla samców ani samic F. occidentalis (p > 0.05)9. Jak wykazano wcześniej, analizy danych zbiorczych z różnych dat próbkowania ujawniły, że kaolin nie wpłynął istotnie na liczebność samic F. occidentalis, podczas gdy liczebność samców F. occidentalis uległa istotnemu zmniejszeniu. Brak istotnej interakcji kaolinu X data próbkowania w analizach danych zbiorczych sugerował, że wyniki dla każdej płci były spójne we wszystkich datach próbkowania (Rysunek 7).
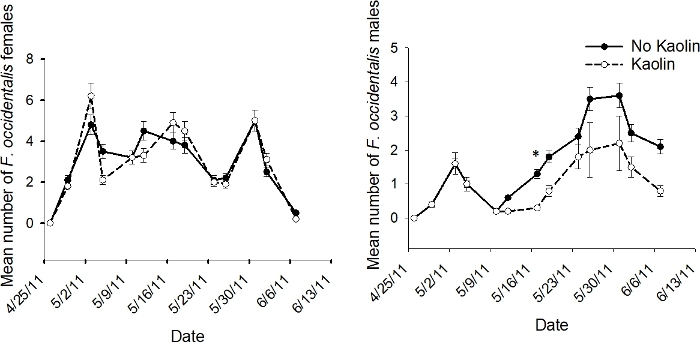
Rycina 7: Przykład dynamiki populacji dla zabiegu w obrębie subpopniczki.
Średnia liczba (+SEM) na 10 kwiatów pomidora (n = 12 próbek) dorosłych samców i samic F. occidentalis w każdym terminie pobierania próbek w 2011 roku, w wariantach z zastosowaniem kaolinu i bez kaolinu, dla danych zbiorczych z różnych zabiegów roślin towarzyszących w eksperymentach push-pull przeprowadzonych w hrabstwie Gadsden na Florydzie (* oznacza istotność powyżej poziomu 95% zgodnie z analizą wariancji przeprowadzoną dla poszczególnych dat pobrania próbek; d.f. = 1, 4). Rycina została zmodyfikowana na podstawie pracy Tyler-Julian i wsp.9. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
Interakcja daty pobrania próbek rośliny towarzyszącej X była istotna w 2011 roku dla samców F. occidentalis (p < 0,05), ale nie dla samic F. occidentalis (p > 0,05)9. Analizy przeprowadzone w celu oceny wpływu rośliny towarzyszącej na poszczególne daty pobrania próbek wykazały, że rośliny towarzyszące zmniejszyły liczebność dorosłych osobników F. occidentalis w późnych terminach pobierania próbek w sezonie, ale nigdy nie wystąpiło to w terminach wczesnych lub środkowych (Rysunek 8).
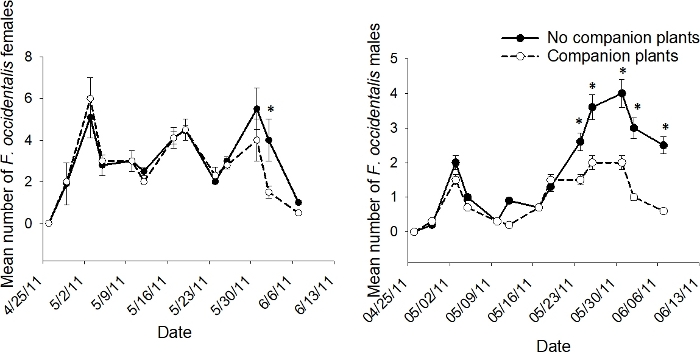
Rysunek 8: Przykład dynamiki populacji dla traktowania w obrębie poddziałki.
Średnia liczba (+SEM) na 10 kwiatów pomidora (n = 6 próbek) dorosłych samców i samic F. occidentalis w każdej dacie poboru prób w 2011 roku w traktowaniu w obrębie poddziałki z rośliną towarzyszącą i bez rośliny towarzyszącej w eksperymentach typu push-pull przeprowadzonych w hrabstwie Gadsden na Florydzie (* oznacza istotność powyżej poziomu 95% zgodnie z analizą wariancji przeprowadzoną dla poszczególnych dat poboru prób; d.f. = 1, 8). Rysunek ten został zmodyfikowany na podstawie pracy Tyler-Julian i wsp.9. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
Dane zebrane z kwiatów rośliny towarzyszącej w badaniu przeprowadzonym przez Tyler-Julian i wsp.14 można wykorzystać do zademonstrowania dynamicznej relacji między pluskwami z rodzaju *Orius* a ich ofiarami z rzędu thripsów w kwiatach (Rysunek 1B). Podobnie jak w pracy Tyler-Julian i wsp.9 w badaniu celem było określenie oddzielnych i połączonych skutków czynników wypychających (tj. ściółkowania folią odbijającą promienie ultrafioletowe i aplikacji kaolinu) oraz czynnika przyciągającego (tj. rośliny towarzyszącej) na dynamikę populacji Frankliniella dorosłe samce i samice tego gatunku w kwiatach roślin uprawnych. W pracy Tyler-Julian i wsp.14 w badaniu przeważającym gatunkiem tripsów kwiatowych był F. bispinosa w roślinie towarzyszącej H. annuus oraz w uprawie papryki (>99% wszystkich tripsów w kwiatach). Tripsy szybko skolonizowały słoneczniki oraz kwiaty papryki, a ich liczebność była największa wkrótce po rozpoczęciu kwitnienia (Rycina 9). Populacje tripsów spadały w czasie wraz ze wzrostem liczebności pluskwiaków z rodzaju *Orius*. Stosunek drapieżnika do ofiary zilustrował zdolność drapieżnika do ograniczania populacji tripsów, przy czym niemal całkowite wyginięcie populacji tripsów następowało przy stosunkach wynoszących >1 drapieżnik na 40 tripsów.
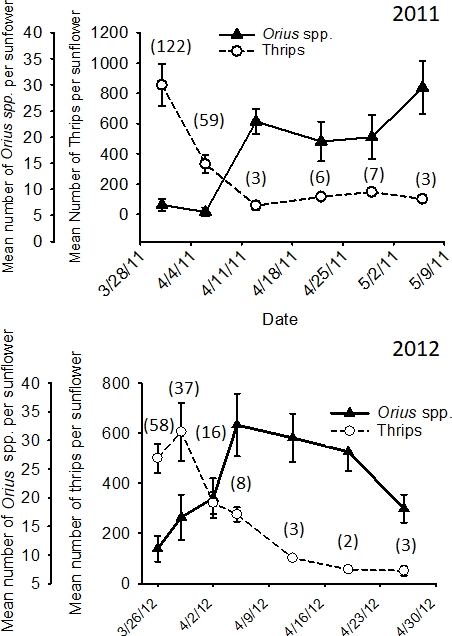
Rycina 9: Przykład oceny korzyści wynikających z drapieżnictwa.
Średnia liczba (+SEM) wszystkich tripsów (dorosłych i larw) oraz wszystkich przedstawicieli Orius spp. (dorosłych i nimf) na koszyczek kwiatowy Helianthus annuus w eksperymentach przeprowadzonych w latach 2011 i 2012 w hrabstwie Palm Beach na Florydzie (liczba wszystkich ofiar z tripsów na jednego drapieżnika w poszczególnych datach podana w nawiasach). Rycina została opracowana na podstawie danych przedstawionych w pracy Tyler-Julian et al.14 za zgodą Oxford University Press.
Dyskusja
Protokoły pobierania próbek o pożądanym poziomie precyzji w celu oszacowania zagęszczenia populacji wciornastków kwiatowych zostały opracowane dla upraw na Florydzie w ciągu ponad trzech dekad badań terenowych. Przeprowadzono badania w celu zrozumienia ważnych aspektów biologii wciornastków kwiatowych, które wpływają na szacunki populacji. Na przykład przeprowadzono badania mające na celu zrozumienie wpływu na szacunki pory dnia podczas pobieraniapróbek 16, lokalizacji próbki w polu16, lokalizacji próbki na poszczególnych roślinach 6,16, wzorców agregacji kwiatów7 i koloru kwiatów17. Stwierdzono, że czynniki te wpływają na szacunki populacji; Tak więc decyzje o tym, gdzie, kiedy i jak są niezwykle ważne przy projektowaniu protokołu pobierania próbek w przyszłych badaniach naukowych.
Dorosłe osobniki i nimfy pirackie są wysoce antofilne, a drapieżnik łączy się ze swoją zdobyczą w sposób zależny od zagęszczenia, preferując te same kwiaty, które są również preferowane przez wciornastki17. Wykorzystują również wskazówki od ofiary lub od roślin uszkodzonych przez zdobycz do lokalizowania wciornastków. Dorosłe osobniki szybko przemieszczają się między kwiatami, co zwiększa ich zdolność do śledzenia lokalnych populacji wciornastków żerujących w czasie i przestrzeni18. W związku z tym protokoły pobierania próbek opracowane do szacowania populacji wciornastków powinny być stosowane w przyszłych badaniach przy szacowaniu populacji drobnych pluskwiaków pirackich. Drobne pluskwiaki pirackie są skutecznymi drapieżnikami dorosłych i larw różnych gatunków wciornastków kwiatowych Frankliniella 19. Liczba drapieżników w stosunku do całkowitej liczby ofiar wciornastków zapewnia najlepsze oszacowanie zdolności drobnych robaków pirackich do tłumienia i kontrolowania mieszanych populacji wciornastków w kwiatach. Należy to wziąć pod uwagę przy analizie danych w przyszłych badaniach.
Dorosłe osobniki gatunku Frankliniella szybko kolonizują rośliny żywicielskie po rozpoczęciu kwitnienia, a szybki wzrost populacji następuje przy braku śmiertelności z powodu naturalnych wrogów 2,18,19. Na dobrym żywicielu rośliny zarówno dla drapieżników, jak i wciornastków, takich jak słonecznik, liczba wciornastków jest największa wkrótce po zainicjowaniu kwitnienia, po czym następuje spadek populacji wraz ze wzrostem liczby drobnych robaków pirackich (ryc. 9). Populacje drobnych robaków pirackich utrzymują się, mimo że wciornastki są prawie wymarłe. Aby w pełni zrozumieć tę dynamiczną relację drapieżnik-ofiara, konieczne jest częste pobieranie próbek przez cały okres kwitnienia uprawy. To samo dotyczy badania skuteczności innych rodzajów taktyk, ponieważ mogą one być skuteczne w niektórych terminach, a w innych nie. Raz lub dwa razy w tygodniu pobieranie próbek przez cały okres kwitnienia zastosowano w celu oceny efektów wielu taktyk w badanym systemie push-pull w Tyler-Julian et al.9,14.
Frankliniella jest drugim co do wielkości rodzajem w rodzinie Thripidae i istnieje duża ilość literatury opisującej dorosłe etapy życia20. Kwiaty zamieszkuje kompleks gatunków, który jest specyficzny dla różnych gatunków gospodarzy roślin i lokalizacji geograficznych. W związku z tym kluczowe znaczenie ma specjalistyczna identyfikacja próbek przygotowanych na szkiełku z podzbioru wstępnych próbek. Następnie, w dowolnym żywicielu rośliny i lokalizacji geograficznej, można wybrać cechy taksonomiczne unikalne dla dorosłych osobników każdego gatunku, tak aby można było określić gatunek w przyszłych badaniach bez przechodzenia do pracochłonnej i kosztownej procedury umieszczania każdego z nich na szkiełkach mikroskopowych w celu oglądania pod mikroskopem złożonym. Można je po prostu oglądać i identyfikować pod stereoskopem. (W niektórych nietypowych sytuacjach cechy morfologiczne oddzielające dwa gatunki są tak podobne, że nie da się ich rozdzielić pod stereoskopem). Opisane tutaj metody dla gatunków wciornastków kwiatowych powszechnych w większości upraw na Florydzie powinny być dostosowane i stosowane w innych lokalizacjach geograficznych podczas przetwarzania dużej liczby próbek potrzebnych w badaniach terenowych w celu określenia skuteczności taktyki zarządzania i oceny korzyści płynących z drapieżnictwa przez drobne pluskwiaki pirackie.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Wsparcie zostało zapewnione przez Specialty Crop Block Grants z Departamentu Rolnictwa Florydy i Usług Konsumenckich o numerach 01856 i 024049. Dodatkowe wsparcie pochodziło z umów o współpracy między USDA-ARS a University of Florida o numerach 58-6618-2-096 i 58-6618-4-035. Dziękujemy poprzednim studentom, doktorantom i współpracownikom, którzy na tak wiele sposobów przyczynili się do naszych badań, aby zrozumieć czynniki wpływające na dynamikę populacji wciornastków kwiatowych.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Alkohol | Dowolne źródło | 70% etanolu lub izopropylu | |
| Probówka wirówkowa | Fisher Scientific Co. | 06-443-18 | Kleszcze płaskie i tacowe |
| Fisher Scientific Co. | 08-885 | Średni punkt | |
| Glinka kaolinowa | Novasource | Surround WP | 95% kaolin |
| Pasteur pipet | Fisher Scientific Co. | 13-678-6A | 5 i frac34; calowa jednorazowa |
| szalka Petriego | Fisher Scientific Co. | FB0875711A | siatkowymi |
| / poszukiwaczami | Fisher Scientific Co. | 08-995 | 6-calowy gięty koniec |
| Skalpel | Fisher Scientific Co. | 14-840-00 | Excel międzynarodowy |
| mikroskop stereoskopowy | Leica Microsystems | M Series | 40X i lepsza ściółka |
| Intergro | Metalized |
Bibliografia
- Morse, J. G., Hoddle, M. S. Invasion biology of thrips. Annual Review of Entomology. 51, 67-89 (2006).
- Funderburk, J., Stavisky, J., Olson, S. Predation of Frankliniella occidentalis (Thysanoptera: Thripidae) in field peppers by Orius insidiosus (Hemiptera: Anthocoridae). Environmental Entomology. 29, 376-382 (2000).
- Funderburk, J., Frantz, G., Mellinger, C., Tyler-Julian, K., Srivastava, M. Biotic resistance limits the invasiveness of the western flower thrips, Frankliniella occidentalis (Thysanoptera: Thripidae), in Florida. Insect Science. 23, 175-182 (2016).
- Demirozer, O., Tyler-Julian, K., Funderburk, J., Leppla, N., Reitz, S. Frankliniella occidentalis (Pergande) integrated pest management programs for fruiting vegetables in Florida. Pest Management Science. 68, 1537-1545 (2012).
- Kirk, W. D. J., Terry, L. I. The spread of the western flower thrips Frankliniella occidentalis (Pergande). Agricultural and Forest Entomology. 5, 301-310 (2003).
- Hansen, E. A., et al. Within-plant distribution of Frankliniella species (Thysanoptera: Thripidae) and Orius insidiosus (Heteroptera: Anthocoridae) in field pepper. Environmental Entomology. 32, 1035-1044 (2003).
- Salguero Navas, V. E., Funderburk, J. E., Mack, T. P., Beshear, R. J., Olson, S. M. Aggregation indices and sample size curves for binomial sampling of flower-inhabiting Frankliniella species (Thysanoptera: Thripidae) on tomato. Journal of Economic Entomology. 87, 1622-1626 (1994).
- Sutherland, A. M., Parrella, M. P. Accuracy, precision, and economic efficiency for three methods of thrips (Thysanoptera: Thripidae) population density assessment. Journal of Economic Entomology. 104, 1323-1328 (2011).
- Tyler-Julian, K., Funderburk, J., Srivastava, M., Olson, S., Adkins, S. Evaluation of a push-pull system for the management of Frankliniella species (Thysanoptera: Thripidae) in tomato. Insects. 9, 187(2018).
- Arthurs, S. P., Kok-Yokomi, M. L., Smith, H. Florida flower thrips (suggested common name) Frankliniella bispinosa Morgan (Insecta: Thysanoptera: Thripidae). University of Florida, IFAS, EDIS Document EENY639. , (2018).
- Cluever, J. D., Smith, H. A., Funderburk, J. E., Frantz, G. Western flower thrips (Frankliniella occidentalis [Pergande). University of Florida, IFAS, EDIS Document ENY883. , (2018).
- Sprague, D., Funderburk, J., Lucky, A. Flower thrips, Frankliniella tritici (Fitch). University of Florida, IFAS, EDIS Document EENY720. , (2018).
- Herring, J. L. The genus Orius of the Western Hemisphere (Hemiptera: Anthocoridae). Annals of the Entomological Society of America. 59, 1093-1109 (1966).
- Tyler-Julian, K., Funderburk, J., Frantz, G., Mellinger, C. Evaluation of a push-pull strategy for the management of Frankliniella bispinosa (Thysanoptera: Thripidae) in bell pepper. Environmental Entomology. 43, 1364-1378 (2014).
- Shapiro, J. P., Shirk, P. D., Kelley, K., Lewis, T. M., Horton, D. R. Identity of two sympatric species of Orius (Hemiptera: Heteroptera: Anthocoridae). Journal of Insect Science. 10, 189(2010).
- Salguero Navas, V. E., Funderburk, J. E., Beshear, R. J., Olson, S. M., Mack, T. P. Seasonal patterns of Frankliniella spp. (Thysanoptera: Thripidae) in tomato flowers. Journal of Economic Entomology. 84, 1818-1822 (1991).
- Funderburk, C., et al. Population dynamics of Frankliniella bispinosa (Thysanoptera: Thripidae) and the predator Orius insidiosus (Hemiptera: Anthocoridae) as influenced by flower color of Lagerstroemia (Lythraceae). Environmental Entomology. 44, 668-679 (2015).
- Ramachandran, S., Funderburk, J. E., Stavisky, J., Olson, S. Population abundance and movement of Frankiliniella thrips and Orius insidiosus in field pepper. Agricultural and Forest Entomology. 3, 129-137 (2001).
- Baez, I., Reitz, S., Funderburk, J. Predation by Orius insidiosus (Heteroptera: Anthocoridae) on life stages and species of Frankliniella flower thrips (Thysanoptera: Thripidae) in pepper flowers. Environmental Entomology. 33, 662-670 (2004).
- Nakahara, S. Annotated list of the Frankliniella species of the world (Thysanoptera: Thripidae). Contributions on Entomology, International. 2, 355-389 (1997).
Przedruki i uprawnienia
