Tutaj prezentujemy implementację MATLAB automatycznego wykrywania i ilościowego opisu kropelek lipidów w obrazach mikroskopii fluorescencyjnej rozszczepienia i pączkowania komórek drożdży.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Analiza zawartości kropelek lipidów w drożdżach rozszczepialnych i pączkujących przy użyciu zautomatyzowanego przetwarzania obrazu
W tym artykule
Podsumowanie
Streszczenie
Metabolizm lipidów i jego regulacja są przedmiotem zainteresowania zarówno podstawowych, jak i stosowanych nauk przyrodniczych oraz biotechnologii. W związku z tym różne gatunki drożdży są wykorzystywane jako modele w badaniach metabolizmu lipidów lub do przemysłowej produkcji lipidów. Kropelki lipidów są wysoce dynamicznymi ciałami spichrzowymi, a ich zawartość komórkowa stanowi wygodny odczyt stanu metabolicznego lipidów. Mikroskopia fluorescencyjna jest metodą z wyboru do analizy ilościowej kropelek lipidów komórkowych, ponieważ opiera się na powszechnie dostępnym sprzęcie i umożliwia analizę pojedynczych kropelek lipidów. Co więcej, mikroskopową analizę obrazu można zautomatyzować, co znacznie zwiększa ogólną wydajność analizy. W tym miejscu opisujemy eksperymentalny i analityczny proces automatycznego wykrywania i ilościowego opisu pojedynczych kropelek lipidów w trzech różnych modelowych gatunkach drożdży: drożdżach rozszczepialnych Schizosaccharomyces pombe i Schizosaccharomyces japonicus oraz pączkujących drożdżach Saccharomyces cerevisiae. Kropelki lipidów są wizualizowane za pomocą BODIPY 493/503, a nieprzepuszczalny dla komórek dekstran fluorescencyjny jest dodawany do pożywki hodowlanej, aby pomóc w identyfikacji granic komórkowych. Komórki są poddawane mikroskopii epifluorescencyjnej 3D w kanałach zielonym i niebieskim, a uzyskane obrazy z-stack są przetwarzane automatycznie przez potok MATLAB. Procedura generuje bogate dane ilościowe dotyczące zawartości kropelek lipidów w komórkach i charakterystyki poszczególnych kropelek lipidów w formacie tabelarycznym odpowiednim do dalszych analiz w głównych arkuszach kalkulacyjnych lub pakietach statystycznych. Przedstawiamy przykładowe analizy zawartości kropelek lipidów w różnych warunkach, które wpływają na komórkowy metabolizm lipidów.
Wprowadzenie
Lipidy odgrywają kluczową rolę w metabolizmie energii komórkowej i węgla, syntezie składników błony i produkcji substancji bioaktywnych. Metabolizm lipidów jest precyzyjnie dostrojony w zależności od warunków środowiskowych, dostępności składników odżywczych i fazy cyklu komórkowego1. U ludzi metabolizm lipidów jest powiązany z chorobami, takimi jak otyłość, cukrzyca typu II i rak2. W przemyśle lipidy wytwarzane przez mikroorganizmy, takie jak drożdże, stanowią obiecujące źródło odnawialnych olejów napędowych3. Komórki przechowują obojętne lipidy w tak zwanych kropelkach lipidowych (LD). Te ewolucyjnie zachowane ciała składają się z triacylogliceroli, estrów sterylowych, zewnętrznej monowarstwy fosfolipidowej i powiązanych białek1. LD pochodzą z retikulum endoplazmatycznego, wywierają dynamikę cyklu komórkowego lub fazy wzrostu i są ważne dla homeostazy lipidów komórkowych1. Liczba LD i morfologia mogą być używane jako wygodne wskaźniki zastępcze podczas oznaczania metabolizmu lipidów w różnych warunkach wzrostu lub podczas badań przesiewowych panelu mutantów. Ze względu na ich dynamiczny charakter, techniki zdolne do analizy właściwości poszczególnych LD są szczególnie interesujące w badaniach metabolizmu lipidów.
Różne gatunki drożdży były używane do opisywania szlaków metabolicznych związanych z lipidami i ich regulacji, lub używane w biotechnologii do produkcji interesujących związków lub paliw1. Ponadto dla drożdży modelowych, takich jak pączkujące drożdże Saccharomyces cerevisiae lub daleko spokrewnione drożdże rozszczepialne Schizosaccharomyces pombe, dostępne są biblioteki szczepów delecyjnych całego genomu, które można wykorzystać do badań przesiewowych o wysokiej przepustowości4,5. Ostatnio skład i dynamika LD zostały opisane w S. pombe6,7,8,9, a mutanty związane z metabolizmem lipidów zostały wyizolowane w powstającym modelu drożdży Schizosaccharomyces japonicus10.
Liczne techniki są dostępne do badania treści i dynamiki LD. Większość z nich stosuje jakiś rodzaj barwienia LD barwnikami lipofilowymi, takimi jak czerwień nilowa lub BODIPY 493/503. Ten ostatni wykazuje węższe widma wzbudzenia i emisji oraz zwiększoną specyficzność w stosunku do neutralnych lipidów (LD) w przeciwieństwie do fosfolipidów (błon)11. Metody fluorymetryczne i cytometrii przepływowej są z powodzeniem stosowane u różnych gatunków grzybów w celu odkrycia genów i warunków wzrostu, które wpływają na zawartość lipidów magazynujących12,13,14,15. Chociaż metody te są odpowiednie do zastosowań o wysokiej przepustowości, nie mogą mierzyć liczby i morfologii poszczególnych LD w komórkach, które mogą się znacznie różnić w zależności od warunków wzrostu i genotypów. Koherentne rozpraszanie Ramana lub cyfrowa mikroskopia holograficzna to metody bez etykiet, które dają dane na poziomie LD, ale wymagają specjalistycznego, drogiego sprzętu16,17,18. Z drugiej strony mikroskopia fluorescencyjna może dostarczyć szczegółowych danych na temat zawartości LD, wykorzystując powszechnie dostępne instrumenty i narzędzia do analizy obrazu. Istnieje kilka procedur analizy, które charakteryzują się różnym stopniem zaawansowania i automatyzacji wykrywania komórek/LD na podstawie danych obrazowych i są zoptymalizowane pod kątem różnych typów komórek, takich jak komórki metazoan z dużymi LDs19,20,21, lub pączkujące drożdże17,22,23. Niektóre z tych podejść działają tylko w 2D (np. na obrazach o maksymalnej projekcji), które mogą nie być w stanie wiarygodnie opisać zawartości LD w komórkach. O ile nam wiadomo, nie istnieją żadne narzędzia do oznaczania zawartości LD i morfologii na podstawie danych mikroskopowych drożdży rozszczepialnych. Opracowanie zautomatyzowanych i niezawodnych analiz na poziomie LD przyniosłoby większą czułość i zwiększoną moc statystyczną, a także dostarczyłoby bogatych informacji na temat zawartości neutralnych lipidów, najlepiej w przypadku wielu gatunków drożdży.
Opracowaliśmy przepływ pracy do analizy zawartości LD na podstawie obrazów 3D z mikroskopii fluorescencyjnej komórek drożdży. Żywe komórki są barwione BODIPY 493/503 i dekstranem Cascade Blue w celu wizualizacji LD i określenia granic komórek. Komórki są unieruchamiane na szkiełkach podstawowych i poddawane obrazowaniu z-stack przy użyciu standardowego mikroskopu epifluorescencyjnego. Obrazy są następnie przetwarzane przez zautomatyzowany potok zaimplementowany w MATLAB, szeroko stosowanym (komercyjnym) pakiecie do analiz statystycznych. Potok wykonuje wstępne przetwarzanie obrazu, segmentację (komórki vs. tło, usuwanie martwych komórek) i identyfikację LD. Bogate dane na poziomie LD, takie jak rozmiar LD i intensywność fluorescencji, są następnie dostarczane w formacie tabelarycznym zgodnym z głównymi narzędziami oprogramowania do obsługi arkuszy kalkulacyjnych. Przepływ pracy został z powodzeniem wykorzystany do określenia wpływu dostępności źródła azotu na metabolizm lipidów w S. pombe24. Teraz demonstrujemy funkcjonalność przepływu pracy u S. pombe, S. japonicus i S. cerevisiae, wykorzystując warunki wzrostu lub mutanty, które wpływają na zawartość LD w komórkach.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Przygotowanie roztworów i pośrodków
- Przygotowanie roztworu do barwienia lipidów.
- Aby przygotować roztwór zapasowy do barwienia lipidów, rozpuścić 10 mg BODIPY 493/503 w 10 mL bezwodnego DMSO (stężenie końcowe 1 mg/mL). Należy rozpuścić całą zawartość fiolki 10 mg BODIPY 493/503, aby zapobiec utracie materiału podczas ważenia.
OSTRZEŻENIE: DMSO może przenikać przez skórę. Należy stosować odpowiednie środki ochrony indywidualnej. - Przygotować roboczy roztwór do barwienia lipidów, mieszając 100 µL roztworu zapasowego BODIPY 493/503 o stężeniu 1 mg/mL oraz 90 µL bezwodnego DMSO (stężenie końcowe 0,1 mg/mL).
- Rozdzielić roztwory zapasowe i robocze na aliquoty i przechowywać w temperaturze -20 °C.
UWAGA: Rozpuszczony BODIPY 493/503 jest stabilny przez kilka lat w temperaturze -20 °C. Należy jednak chronić roztwór przed wilgocią i światłem.
- Aby przygotować roztwór zapasowy do barwienia lipidów, rozpuścić 10 mg BODIPY 493/503 w 10 mL bezwodnego DMSO (stężenie końcowe 1 mg/mL). Należy rozpuścić całą zawartość fiolki 10 mg BODIPY 493/503, aby zapobiec utracie materiału podczas ważenia.
- Aby przygotować roztwór zapasowy do wizualizacji granic komórkowych, rozpuścić 25 mg dekstranu Cascade Blue (cała zawartość fiolki) w 2,5 mL wody dejonizowanej (stężenie końcowe 10 mg/mL). Rozdzielić roztwór zapasowy na aliquoty i przechowywać w temperaturze -20 °C, chroniąc przed światłem.
- Aby przygotować roztwór do powlekania szkiełek mikroskopowych, rozpuścić 5 mg lektyny sojowej w 5 mL wody dejonizowanej (stężenie końcowe 1 mg/mL). Rozdzielić roztwór lektyny na aliquoty i przechowywać w temperaturze -80 °C.
UWAGA: Roztwór lektyny jest stabilny przez kilka lat w temperaturze -80 °C. Alikwoty aktualnie używane można przechowywać w temperaturze -20 °C. - Przygotowanie pożywek hodowlanych.
- Aby przygotować 40 mL złożonej pożywki hodowlanej YES dla S. pombe i S. japonicus, rozpuścić 2 g ekstraktu drożdżowego i 0,1 g suplementów SP (jeśli są wymagane dla mutantów auksotroficznych) w 340 mL wody dejonizowanej w butelce o pojemności 50 mL i autoklawować. W warunkach aseptycznych dodać 60 mL 20% (w/v) glukozy, wcześniej autoklawowanej oddzielnie lub wysterylizowanej przez filtr.
- Aby przygotować 40 mL zdefiniowanej pożywki hodowlanej EMM dla S. pombe i S. japonicus, rozpuścić 4,9 g pożywki EMM bez dekstrozy w 360 mL wody dejonizowanej w butelce o pojemności 50 mL i autoklawować. W warunkach aseptycznych dodać 40 mL 20% (w/v) glukozy, wcześniej autoklawowanej oddzielnie lub wysterylizowanej przez filtr.
UWAGA: Ogólne wytyczne dotyczące hodowli S. pombe i S. japonicus znajdują się odpowiednio w punktach25 i26. - Aby przygotować 30 mL złożonej pożywki hodowlanej YPAD dla Saccharomyces cerevisiae, rozpuścić 3 g ekstraktu drożdżowego, 6 g peptonu i 30 mg siarczanu adeniny w 270 mL wody dejonizowanej w butelce o pojemności 50 mL i autoklawować. W warunkach aseptycznych dodać 30 mL 20% (w/v) glukozy, wcześniej autoklawowanej oddzielnie lub wysterylizowanej przez filtr.
- Aby przygotować 30 mL zdefiniowanej pożywki minimalnej dla S. cerevisiae, rozpuścić 2 g azotowej bazy drożdżowej (bez aminokwasów) w 270 mL wody dejonizowanej w butelce o pojemności 50 mL i autoklawować. W warunkach aseptycznych dodać 30 mL 20% (w/v) glukozy, wcześniej autoklawowanej oddzielnie lub wysterylizowanej przez filtr.
UWAGA: Ogólne wytyczne dotyczące hodowli S. cerevisiae znajdują się w punkcie27.
2. Hodowla komórek
- hodowla S. pombe lub S. japonicus do fazy wykładniczej lub wczesnej fazy stacjonarnej.
- Rano zaszczepić 5 ml pożywki YES świeżą biomasą drożdży rozszczepialnych. Inkubować w 32 °C z wytrząsaniem (180 obr./min) przez kilka godzin.
UWAGA: W przypadku wszystkich hodowli należy stosować kolby Erlenmeyera o objętości 10-krotnie większej niż objętość kultury, aby zapewnić odpowiednie napowietrzanie. Niektóre laboratoria preferują hodowlę drożdży rozdzielczych przy 30 °C, lecz temperatura hodowli wynosząca 32 °C prowadzi do skrócenia czasu podwojenia bez wywierania szkodliwego wpływu na komórki, co tym samym skraca całkowity czas wymagany do przeprowadzenia eksperymentu25,28. - Późnym popołudniem tego samego dnia (po co najmniej 6 godzinach hodowli) należy rozcieńczyć kulturę świeżą pożywką YES do końcowej objętości 10 ml, tak aby następnego ranka osiągnęła ona pożądaną gęstość optyczną (OD) (lub liczbę komórek/ml), a następnie inkubować w 32 °C przy wytrząsaniu (180 obr./min). W celu dokładnego określenia czynnika rozcieńczenia korzystnie jest znać czas podwojenia każdego użytego szczepu (należy zastosować Równanie 1).
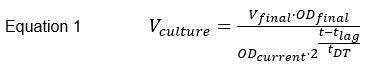
Gdzie Vhodowla czy objętość prekultury jest niezbędna do rozcieńczenia, Vkońcowy jest całkowitą objętością nowej hodowli (10 ml w przypadku standardowych hodowli), OD (gęstość optyczna)ostateczny czy pożądana wartość OD ma zostać osiągnięta następnego ranka, OD (gęstość optyczna)aktualny jest aktualnie zmierzona gęstość optyczna (OD) prekultury, t jest czasem wzrostu komórek do momentu zbioru, topóźnienie jest czas trwania fazy adaptacyjnej (zależny od warunków laboratoryjnych, wymaga empirycznego określenia) oraz tDT jest czasem podwojenia szczepu.
UWAGA: W przypadku analizy komórek w fazie wykładniczej należy dopilnować, aby prekultury nie osiągnęły fazy stacjonarnej, ponieważ drastycznie zmienia to fizjologię komórek (w tym zawartość LD) przez kilka kolejnych pokoleń. - W dniu obrazowania, jeśli rano hodowla osiągnęła nieco wyższą wartość OD niż wymagana (w przypadku komórek w fazie wykładniczej), należy rozcieńczyć ją świeżą pożywką YES i kontynuować inkubację przez co najmniej dwa kolejne czasy podwojenia przed przeprowadzeniem barwienia kropli lipidowych (LD). W przeciwnym razie należy przejść bezpośrednio do barwienia (Sekcja 3).
- Rano zaszczepić 5 ml pożywki YES świeżą biomasą drożdży rozszczepialnych. Inkubować w 32 °C z wytrząsaniem (180 obr./min) przez kilka godzin.
- Hodowla S. cerevisiae do fazy wykładniczej i stacjonarnej.
- W godzinach popołudniowych zaszczepić 10 ml pożywki YPAD niewielką ilością świeżej biomasy drożdży pączkujących i inkubować przez noc w temperaturze 30 °C z wytrząsaniem (180 obr./min).
- W dniu obrazowania, rano rozcieńczyć kulturę do OD 0,1 w 10 ml pożywki YPAD i hodować do wymaganej wartości OD (np. OD 1 dla fazy wykładniczej). Wszelkie rozcieńczenia kultur przeprowadzić zgodnie z opisem w kroku 2.1.2. Przejść do barwienia (Sekcja 3).
3. Barwienie kropli lipidowych
- Przygotuj szkiełko nakrywkowe dla każdej próbki przeznaczonej do obrazowania. Nanieś 1 µL roztworu do powlekania szkiełek na czystą nakrywkę, używając długiego boku poziomo ustawionego końcówki pipety. Pozostaw roztwór do całkowitego wyschnięcia i przechowuj nakrywki w środowisku wolnym od kurzu.
UWAGA: Szkiełka przedmiotowe i nakrywki można oczyścić przed użyciem, jeśli jest to wymagane. Procedura czyszczenia polega na myciu detergentem do naczyń, płukaniu wodą, moczeniu przez noc w 3% kwasie solnym i płukaniu wodą destylowaną. Oczyszczone szkiełka i nakrywki przechowuje się w czystym etanolu do momentu użycia. - Zmierz OD hodowli komórkowej lub liczbę komórek/mL, zgodnie z wymaganiami. Staraj się uzyskać podobne wartości dla wszystkich badanych szczepów, aby zapewnić porównywalne warunki eksperymentalne.
- Pipetuj 1 mL każdej hodowli komórkowej do probówki do mikrowirowania o pojemności 1,5 mL. Wyłącznie w przypadku S. cerevisiae dodaj 5 µL roztworu do powlekania szkiełek, krótko wymieszaj w wortexie i inkubuj w temperaturze 30 °C z wytrząsaniem przez 5 min.
- Dodaj 1 µL roztworu do barwienia lipidów do każdej alikwoty hodowli i krótko wymieszaj wortexie. Następnie dodaj 10 µL roztworu do wizualizacji granic komórek i krótko wymieszaj wortexie.
UWAGA: Nie przygotowuj gotowych mieszanin obu barwników, ponieważ prowadzi to do gaszenia fluorescencji BODIPY 493/503. - Zbierz komórki poprzez wirowanie (1 0 x g, 3 min, RT) i usuń prawie cały supernatant (~950 µL). Resuspenduj komórki w pozostałym supernatancie.
- Pipetuj 2 µL gęstej zawiesiny komórkowej na nakrywkę powleczoną lektyną i umieść ją na czystym szkiełku przedmiotowym. Komórki powinny tworzyć monowarstwę. Przejdź do mikroskopii (Sekcja 4) tak szybko, jak to możliwe, aby zminimalizować artefakty obrazowania; przetwarzaj maksymalnie dwie próbki jednocześnie.
4. Konfiguracja mikroskopu i obrazowanie
- Zoptymalizuj warunki obrazowania.
UWAGA: Konfiguracja mikroskopu wymaga długiej ekspozycji na silne źródła światła, co może spowodować uszkodzenie próbki i zafałszować wyniki. Dlatego warunki obrazowania należy ustawić, korzystając z oddzielnego preparatu, który nie będzie dalej wykorzystywany do kwantyfikacji kropli lipidowych (LD).- Ustaw ostrość na komórkach, korzystając z kontrastu fazowego lub dyferencjalnego kontrastu interferencyjnego (DIC).
UWAGA: Obrazy w kontraście fazowym lub DIC mogą być wykonane jako referencyjne, ale nie są one wykorzystywane podczas etapu zautomatyzowanej analizy obrazu. - Ustaw parametry stosu z (z-stack) tak, aby objął całą objętość komórki. Całkowita odległość w pionie zależy od wielkości komórki; liczba przekrojów optycznych zależy od apertury numerycznej obiektywu (funkcja punktowego rozproszenia w osi z). Ustaw przesuwanie ogniska względem centralnej płaszczyzny ogniskowania.
UWAGA: Optymalna liczba przekrojów jest często ustalana przez oprogramowanie sterujące mikroskopem i nie musi być obliczana ręcznie. Typowa szerokość komórek wynosi 3-5 µm dla S. pombe, 4-7 µm dla S. japonicus oraz 3-7 µm dla S. cerevisiae. - Aby obrazować LD, ustaw natężenie światła i czas ekspozycji w kanale zielonym (maksima wzbudzenia i emisji BODIPY wynoszą odpowiednio 493 i 503 nm).
UWAGA: BODIPY 493/503 jest bardzo jasnym fluorochromem, jednak może ulegać szybkiemu blaknięciu przy zbyt dużym natężeniu światła. Co więcej, LD są mobilne w żywych komórkach, dlatego należy zminimalizować czas ekspozycji i najpierw zarejestrować pełny stos z w kanale zielonym (przed przejściem do kanału niebieskiego), aby zapobiec artefaktom rozmycia. Należy również wziąć pod uwagę liniowy zakres dynamiki kamery dla natężenia sygnału, aby uniknąć nasycenia pikseli. - Aby obrazować granice komórek, ustaw natężenie światła i czas ekspozycji w kanale niebieskim (maksima wzbudzenia i emisji dekstranu Cascade Blue wynoszą odpowiednio 400 i 420 nm).
UWAGA: Natężenie sygnału w kanale niebieskim jest wymagane do segmentacji obrazu, ale nie jest wykorzystywane do samej kwantyfikacji LD. W związku z tym optymalne ustawienia w tym kanale nie są kluczowe dla analizy. - Jeśli to możliwe, utwórz w oprogramowaniu sterującym mikroskopem zautomatyzowany schemat eksperymentalny, aby ułatwić obrazowanie wielu próbek w standaryzowanych warunkach.
- Ustaw ostrość na komórkach, korzystając z kontrastu fazowego lub dyferencjalnego kontrastu interferencyjnego (DIC).
- Po optymalizacji warunków obrazowania, wykonaj zdjęcia próbek przeznaczonych do kwantyfikacji. Ustaw ostrość na komórkach i obrazuj je w kanałach zielonym i niebieskim, zgodnie z opisem w kroku 4.1.
UWAGA: Wszystkie obrazy muszą być pozyskiwane przy użyciu tych samych ustawień, aby umożliwić porównanie próbek. Obrazuj wiele pól widzenia na każdą próbkę, aby uzyskać wiarygodne i reprezentatywne dane. - Zapisz obrazy stosów z kanału niebieskiego i zielonego jako 16-bitowe wielowarstwowe pliki TIFF (tj. dwa pliki na każde pole widzenia). W odpowiednich nazwach plików uwzględnij słowa „green” lub „blue”. Przejdź do analizy obrazu (Sekcja 5).
5. Analiza obrazu
- Wizualnie sprawdź jakość uzyskanych obrazów.
- Otwórz obrazy mikroskopowe w programie ImageJ29,30 lub innym odpowiednim oprogramowaniu do analizy obrazu.
- Usuń wszystkie stosy obrazów zawierające znaczną liczbę komórek, które przemieściły się podczas akwizycji (co spowodowało powstanie artefaktów rozmycia).
- Usuń wszystkie stosy obrazów zawierające silnie fluorescencyjne cząstki niebędące komórkami w kanale niebieskim (np. zanieczyszczenia na szkiełku przedmiotowym lub osłonce, zanieczyszczenia w pożywce hodowlanej).
UWAGA: Bardzo jasne obiekty niebędące komórkami w kanale niebieskim mogą tworzyć artefakty detekcji komórek lub zakłócać detekcję komórek w ich bezpośrednim sąsiedztwie. - Usuń wszystkie stosy obrazów zawierające dużą proporcję martwych komórek (tj. komórek o zwiększonej fluorescencji niebieskiej w porównaniu z komórkami żywymi).
UWAGA: Choć obecność niewielkiej proporcji martwych komórek w próbce zazwyczaj nie stanowi problemu i komórki te są automatycznie odrzucane podczas analizy, niektóre martwe lub obumierające komórki mogą być sporadycznie rozpoznawane jako komórki żywe przez algorytm segmentacji, co może zniekształcić raportowane wyniki.
- Przeanalizuj obrazy w oprogramowaniu MATLAB.
- Utwórz folder główny i skopiuj do niego wszystkie skrypty MATLAB.
- Utwórz podfolder („pombe”, „cerevisiae” lub „japonicus”) i skopiuj do niego wejściowe pliki obrazów TIFF.
- Uruchom MATLAB, otwórz skrypt MAIN.m i go uruchom. W menu wybierz gatunek drożdży do analizy i rozpocznij przetwarzanie obrazów.
UWAGA: Niektóre parametry wymagane do detekcji komórek i LD są ustawione fabrycznie dla konkretnego gatunku, inne są określane automatycznie podczas przetwarzania obrazu. Wartości domyślne zostały wyznaczone empirycznie i zależą od kilku czynników, takich jak powiększenie obiektywu, typ i czułość kamery oraz ustawienia obrazowania. W razie potrzeby użytkownicy mogą edytować pliki skryptów, aby zmienić ustawienia specyficzne dla organizmu tak, aby lepiej odzwierciedlały ich układ eksperymentalny. Mianowicie, podczas rozpoznawania komórek dopuszczalne rozmiary obiektów są określone przez parametry „minArea” i „maxArea”, a minimalna frakcja wypełnionej objętości w granicach obiektu przez parametr „Solidity”. Dla rozpoznawania LD próg jasności jest określony przez parametr „th” (na jego wartość wpływa głównie głębia bitowa obrazu i intensywność sygnału fluorescencji), a maksymalny dopuszczalny rozmiar LD przez parametr „MaxArea”. - Przejrzyj i przetwórz pliki wyjściowe zgodnie z potrzebami, używając edytora arkuszy kalkulacyjnych lub pakietu statystycznego; proces generuje pliki CSV rozdzielane średnikami oraz segmentowane pliki TIFF z wykrytymi obiektami komórek i LD.
UWAGA: Proces segmentuje obrazy na tło i obiekty komórkowe, gdzie każdy obiekt komórkowy może składać się z wielu sąsiadujących komórek. W związku z tym wyniki w plikach „xxxx_cells.csv” nie reprezentują danych z pojedynczych komórek i powinny być używane wyłącznie do obliczania wskaźników przypadających na jednostkę objętości komórki.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Cała procedura została podsumowana na Rysunku 1 dla drożdży rozdzielających się (przepływ pracy dla drożdży pączkujących jest analogiczny); poniżej przedstawiamy przykłady wykorzystania tego schematu do badania zawartości LD u trzech różnych gatunków drożdży w różnych warunkach, o których wiadomo, że wpływają one na komórkową zawartość LD. Każdy przykład reprezentuje pojedynczy eksperyment biologiczny.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Zrozumienie metabolizmu lipidów i jego regulacji jest ważne zarówno dla podstawowej biologii, jak i zastosowań klinicznych i biotechnologicznych. Zawartość LD stanowi wygodny odczyt stanu metabolizmu lipidów w komórce, a mikroskopia fluorescencyjna jest jedną z głównych metod stosowanych do oznaczania zawartości LD. Przedstawiony protokół pozwala na zautomatyzowane wykrycie i ilościowy opis poszczególnych LD w trzech różnych i morfologicznie odrębnych gatunkach drożdży. O ile nam wiadomo, nie istnieją podobne narzędzia d...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca była wspierana przez granty Uniwersytetu Karola PRIMUS/MED/26, GAUK 1308217 i SVV 260310. Dziękujemy Ondřejowi Šebestie za pomoc w mikroskopii i opracowaniu procesu analizy obrazu. Dziękujemy laboratorium ReGenEx za szczepy S. cerevisiae oraz laboratorium JapoNet i Hironori Niki za szczepy S. japonicus. Szczep ppc1-88 został dostarczony przez The Yeast Genetic Resource Center Japan. Mikroskopię wykonano w Laboratorium Mikroskopii Konfokalnej i Fluorescencyjnej współfinansowanym ze środków Europejskiego Funduszu Rozwoju Regionalnego i budżetu państwa Republiki Czeskiej (nr projektu). CZ.1.05/4.1.00/16.0347 oraz CZ.2.16/3.1.00/21515).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 12-bitowa monochromatyczna kamera CCD Hamamatsu ORCA C4742-80-12AG | Hamamatsu | lub równoważne | |
| Sól półsiarczanu adeniny, ≥ 99% | Merck | A9126-25G | |
| BODIPY 493/503 (4,4-Difluoro-1,3,5,7,8-Pentamethyl-4-Bora-3a,4a-Diaza-s-Indacene) | Thermo Fisher Scientific | D3922 | do barwienia obojętnymi lipidami |
| D-(+) - Glukoza, ≥ 99.5% | Merck | G7021 | |
| Dekstran, Cascade Blue, 10 000 MW, Anionowy, Lizyna Fixable | Thermo Fisher Scientific | D1976 | do ujemnego barwienia komórek |
| Dimetylosulfotlenek, ≥ 99,5% | Merck | D4540 | lub wyższej czystości, utrzymuj bezwodny na sitach molekularnych |
| Rosół EMM bez dekstrozy | Formedium | PMD0405 | pożywkę można również przygotować z poszczególnych składników |
| Oprogramowanie Fiji/ImageJ | NIH& | nbsp; | lub równoważny; do kontroli wzrokowej danych mikroskopowych |
| Szkła nakrywkowe o wysokiej precyzji, 22 mm x 22 mm, nr 1.5 | VWR | 630-2186 | użyj dowolnego szkła osłonowego # 1.5 |
| Image Processing Toolbox dla MATLAB, wersja 10.0 | Mathworks | ||
| Lektyna z Glycine max (soja) | Merck | L1395 | do unieruchamiania komórek na preparatach |
| Oprogramowanie MATLAB, wersja 9.2 | Mathworks | ||
| Szkiełko mikroskopowe, 26 mm x 76 mm, grubość 1 mm | Knittel Glass | L762601.2 | użyj dowolnego szkiełka mikroskopowego pasującego do stolika mikroskopu, dokładnie wyczyść przed załadowaniem komórek |
| Mikroskop Olympus CellR z automatycznym ruchem obiektywu w osi Z | Olympus | lub równoważne | |
| Zestaw filtrów Pentaband | Semrock | F66-985 | jasne pole, kanały zielony i niebieski są wystarczające |
| Signal Processing Toolbox dla MATLAB, wersja 7.4 | Mathworks | ||
| SP suplementy | Formedium | PSU0101 | |
| Standardowy komputer biurowy z możliwością uruchomienia MATLAB& | nbsp; | ||
| Zestaw narzędzi do statystyki i uczenia maszynowego dla MATLAB, wersja 11.1 | Mathworks | ||
| Uniwersalny pepton M66 do mikrobiologii | Merck | 1070431000 | |
| Obiektyw UPLSAPO 60XO | Olympus | lub równoważne | |
| Ekstrakt drożdżowy | Formedium | YEA03 | |
| Drożdżowa baza azotowa bez aminokwasów | Formedium | CYN0405 |
Bibliografia
- Koch, B., Schmidt, C., Daum, G. Storage lipids of yeasts: a survey of nonpolar lipid metabolism in Saccharomyces cerevisiae, Pichia pastoris, and Yarrowia lipolytica. FEMS Microbiology Reviews. 38 (5), 892-915 (2014).
- Krahmer, N., Farese, R. V., Walther, T. C. Balancing the fat: lipid droplets and human disease. EMBO Molecular Medicine. 5 (7), 973-983 (2013).
- Lazar, Z., Liu, N., Stephanopoulos, G. Holistic Approaches in Lipid Production by Yarrowia lipolytica. Trends in Biotechnology. 36 (11), 1157-1170 (2018).
- Kim, D. U., et al. Analysis of a genome-wide set of gene deletions in the fission yeast Schizosaccharomyces pombe. Nature Biotechnology. 28 (6), 1628-1629 (2010).
- Giaever, G., Nislow, C. The yeast deletion collection: a decade of functional genomics. Genetics. 197 (2), 451-465 (2014).
- Meyers, A., et al. The protein and neutral lipid composition of lipid droplets isolated from the fission yeast, Schizosaccharomyces pombe. Journal of Microbiology (Seoul, Korea). 55 (2), 112-122 (2017).
- Meyers, A., et al. Lipid Droplets Form from Distinct Regions of the Cell in the Fission Yeast Schizosaccharomyces pombe. Traffic (Copenhagen, Denmark). 17 (6), 657-659 (2016).
- Long, A. P., et al. Lipid droplet de novo formation and fission are linked to the cell cycle in fission yeast. Traffic (Copenhagen, Denmark). 13 (5), 705-714 (2012).
- Yang, H. J., Osakada, H., Kojidani, T., Haraguchi, T., Hiraoka, Y. Lipid droplet dynamics during Schizosaccharomyces pombe sporulation and their role in spore survival. Biology Open. , 8(2016).
- Aoki, K., Shiwa, Y., Takada, H., Yoshikawa, H., Niki, H. Regulation of nuclear envelope dynamics via APC/C is necessary for the progression of semi-open mitosis in Schizosaccharomyces japonicus. Genes To Cells: Devoted To Molecular & Cellular Mechanisms. 18 (9), 733-752 (2013).
- Karolin, J., Johansson, L. B. A., Strandberg, L., Ny, T. Fluorescence and Absorption Spectroscopic Properties of Dipyrrometheneboron Difluoride (BODIPY) Derivatives in Liquids, Lipid Membranes, and Proteins. Journal of the American Chemical Society. 116 (17), 7801-7806 (1994).
- Bozaquel-Morais, B. L., Madeira, J. B., Maya-Monteiro, C. M., Masuda, C. A., Montero-Lomeli, M. A new fluorescence-based method identifies protein phosphatases regulating lipid droplet metabolism. PloS One. 5 (10), e13692(2010).
- Sitepu, I. R., et al. An improved high-throughput Nile red fluorescence assay for estimating intracellular lipids in a variety of yeast species. Journal of Microbiological Methods. 91 (2), 321-328 (2012).
- Rostron, K. A., Lawrence, C. L. Nile Red Staining of Neutral Lipids in Yeast. Methods in Molecular Biology (Clifton, N.J.). 1560, 219-229 (2017).
- Romero-Aguilar, L., Montero-Lomeli, M., Pardo, J. P., Guerra-Sánchez, G. Lipid Index Determination by Liquid Fluorescence Recovery in the Fungal Pathogen Ustilago Maydis. Journal of Visualized Experiments. (134), 1-6 (2018).
- Gupta, A., Dorlhiac, G. F., Streets, A. M. Quantitative imaging of lipid droplets in single cells. The Analyst. , (2018).
- Wolinski, H., Bredies, K., Kohlwein, S. D. Quantitative imaging of lipid metabolism in yeast: from 4D analysis to high content screens of mutant libraries. Methods in Cell Biology. , 108-365 (2012).
- Campos, V., Rappaz, B., Kuttler, F., Turcatti, G., Naveiras, O. High-throughput, nonperturbing quantification of lipid droplets with digital holographic microscopy. Journal of Lipid Research. 59 (7), 1301-1310 (2018).
- Ranall, M. V., Gabrielli, B. G., Gonda, T. J. High-content imaging of neutral lipid droplets with 1,6-diphenylhexatriene. BioTechniques. 51 (1), 35-42 (2011).
- Schnitzler, J. G., et al. Nile Red Quantifier: a novel and quantitative tool to study lipid accumulation in patient-derived circulating monocytes using confocal microscopy. Journal of Lipid Research. 58 (11), 2210-2219 (2017).
- Bombrun, M., Gao, H., Ranefall, P., Mejhert, N., Arner, P., Wählby, C. Quantitative high-content/high-throughput microscopy analysis of lipid droplets in subject-specific adipogenesis models. Cytometry. Part A the journal of the International Society for Analytical Cytology. 91 (11), 1068-1077 (2017).
- Capus, A., Monnerat, M., Ribeiro, L. C., de Souza, W., Martins, J. L., Sant’Anna, C. Application of high-content image analysis for quantitatively estimating lipid accumulation in oleaginous yeasts with potential for use in biodiesel production. Bioresource Technology. 203, 309-317 (2016).
- Lv, X., et al. Identification of gene products that control lipid droplet size in yeast using a high-throughput quantitative image analysis. Biochimica et biophysica acta. Molecular and Cell Biology Of Lipids. 1864 (2), 113-127 (2018).
- Zach, R., Tvarůžková, J., Schätz, M., Ťupa, O., Grallert, B., Převorovský, M. Mitotic defects in fission yeast lipid metabolism “cut” mutants are suppressed by ammonium chloride. FEMS Yeast Research. 18 (6), 1-7 (2018).
- Petersen, J., Russell, P. Growth and the Environment of Schizosaccharomyces pombe. Cold Spring Harbor Protocols. 2016 (3), (2016).
- Aoki, K., Furuya, K., Niki, H. Schizosaccharomyces japonicus: A Distinct Dimorphic Yeast among the Fission Yeasts. Cold Spring Harbor Protocols. (12), (2017).
- Curran, B. P. G., Bugeja, V. Basic investigations in Saccharomyces cerevisiae. Methods in Molecular Biology (Clifton, N.J.). , 1-14 (2014).
- Sabatinos, S. A., Forsburg, S. L. Molecular genetics of Schizosaccharomyces pombe. Methods in Enzymology. 470 (10), 759-795 (2010).
- Schindelin, J., Rueden, C. T., Hiner, M. C., Eliceiri, K. W. The ImageJ ecosystem: An open platform for biomedical image analysis. Molecular Reproduction and Development. 82 (7-8), 518-529 (2015).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nature Methods. 9 (7), 676-682 (2012).
- Nakamura, T., Pluskal, T., Nakaseko, Y., Yanagida, M. Impaired coenzyme A synthesis in fission yeast causes defective mitosis, quiescence-exit failure, histone hypoacetylation and fragile DNA. Open Biology. 2 (9), 120117(2012).
- Furuya, K., Niki, H. Isolation of heterothallic haploid and auxotrophic mutants of Schizosaccharomyces japonicus. Yeast. 26 (4), 221-233 (2009).
- Ivnitski-Steele, I., et al. Identification of Nile red as a fluorescent substrate of the Candida albicans ATP-binding cassette transporters Cdr1p and Cdr2p and the major facilitator superfamily transporter Mdr1p. Analytical Biochemistry. 394 (1), 87-91 (2009).
- Wolinski, H., Kohlwein, S. D. Microscopic analysis of lipid droplet metabolism and dynamics in yeast. Methods in Molecular Biology (Clifton, N.J.). 457 (1), 151-163 (2008).
- Graml, V., et al. A genomic Multiprocess survey of machineries that control and link cell shape, microtubule organization, and cell-cycle progression. Developmental Cell. 31 (2), 227-239 (2014).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
