Tutaj prezentujemy protokół minimalnie inwazyjnego chirurgicznego uszkadzania mięśni nieodłącznie związanych z aparatem żywieniowym morskiego Aplysia californica, aby zrozumieć rolę tych mięśni podczas zachowania żywieniowego.
Artykuł metodologiczny
Minimalnie inwazyjna technika zmiany mięśni nieodłącznie związana z odontoforem Aplysia californica
W tym artykule
Podsumowanie
Streszczenie
Aplysia californica to modelowy system do badania neuronalnej kontroli uczenia się i zachowania. Zwierzę to ma półotwarty układ krążenia, dzięki czemu możliwe jest uzyskanie dostępu do wielu jego wewnętrznych struktur bez powodowania znacznych uszkodzeń. Wiele manipulacji można łatwo wykonać zarówno in vivo, jak i in vitro, co czyni go bardzo wykonalnym modelem do analizy zachowania i obwodów neuronalnych. Aby lepiej zrozumieć funkcje mięśni w chwytaku do karmienia, opracowaliśmy technikę ich uszkadzania bez otwierania głównej jamy ciała zwierzęcia lub uszkadzania zewnętrznych warstw narządu żywieniowego (tj. masy policzkowej). W tej technice chwytak jest częściowo napięty, co umożliwia bezpośredni dostęp do mięśni. Ta procedura pozwala zwierzętom szybko i niezawodnie wrócić do zdrowia. Umożliwiło to uszkodzenie mięśni I7 i włókien podradradkowych, co pozwoliło nam wykazać, że oba mięśnie znacząco przyczyniają się do otwarcia in vivo.
Wprowadzenie
Układ pokarmowy Aplysia californica od dawna służy jako system modelowy do badania uczenia się i pamięci1, zachowań motywowanych2,3 oraz interakcji między zachowaniem, biomechaniką a kontrolą neuronalną podczas żerowania4. Charakteryzuje się on bardzo dostępnymi obwodami neuronalnymi z relatywnie niewielką liczbą dużych, identyfikowalnych neuronów. Zwierzę posiada półotwarty układ krwionośny, co umożliwia dostęp do wielu struktur wewnętrznych bez powodowania znacznych uszkodzeń. Jest ono również odporne na wiele manipulacji zarówno in vivo, jak i in vitro, co czyni je niezwykle podatnym modelem do analizy zachowania i obwodów neuronalnych.
Aby zrozumieć wzorce neuronalne warunkujące zachowania żerowania, ważne jest opisanie mechaniki miękkiej struktury tworzącej organ pokarmowy, czyli masy gębowej4. Choć przeprowadzono prace nad charakterystyką zewnętrznych mięśni tworzących masę gębową5,6, wewnętrzne mięśnie struktury znajdującej się wewnątrz niej, która kontroluje powierzchnię chwytaka, czyli odontofora, pozostawały w dużej mierze niedostępne dla eksperymentów in vivo. Mimo że istnieją badania in vitro dotyczące funkcji niektórych z tych mięśni7,8, brak bezpośredniego dostępu do nich utrudniał badanie ich roli u nienaruszonych, wykazujących naturalne zachowania zwierząt.
Większość technik implantacji elektrod lub wykonywania uszkodzeń u Aplysia lub podobnych gatunków mięczaków wymaga otwarcia ściany ciała9,10,11,12Otwarcie ściany ciała powoduje uszkodzenie nabłonka, a nacięcie musi zostać szczelnie zamknięte, aby zapobiec wyciekowi hemolimfy. Jeszcze poważniejsze trudności pojawiają się podczas prób dotarcia do wewnętrznych mięśni chwytnika u Aplysia (mięśnie znajdujące się pod powierzchnią raduli lub w obrębie odontoforu): po wejściu przez główną jamę ciała należy następnie przejść przez część mięśniowej ściany masy gębowej, aby uzyskać dostęp do struktur wewnętrznych (Rycina 1A). Nagromadzone uszkodzenia oraz trudności w dostępie sprawiły, że podejście metodami konwencjonalnymi stało się problematyczne, ponieważ zwierzęta nie regenerują się prawidłowo po tych zabiegach (spośród zwierząt z pełną ewersją tylko 17% odzyskało jakąkolwiek zdolność do żerowania, N = 12; około 85% zwierząt bez ewersji odzyskało zdolność do żerowania, N = 84).
Mięsień I7, który został scharakteryzowany jako mięsień otwierający radulę8, znajduje się głęboko wewnątrz samego odontoforu, co dodatkowo utrudnia dostęp. Rozciąga się on między podstawą trzonka raduli (Rycina 1C) a dolną stroną powierzchni raduli, przechodząc przez światło w odontoforze (Rycina 1C). Z trzech stron mięśnie I7 otoczone są ścianami mięśniowymi, a czwartą ścianę stanowi trzonek raduli. Na potrzeby badania biomechanicznego znaczne uszkodzenie którejkolwiek z tych struktur naruszyłoby prawidłowe funkcjonowanie aparatu pokarmowego. Opracowaliśmy nowatorskie podejście polegające na wysunięciu odontoforu przez szczęki i przeprowadzeniu operacji poprzez nacięcie cienkiej, chrzęstnej powierzchni raduli, co umożliwiło uszkodzenie mięśnia I7, a także nowo opisanych drobnych włókien mięśniowych przebiegających tuż pod powierzchnią raduli, które nazywamy włóknami podradularnymi (Rycina 1C).

Rycina 1: Przegląd anatomiczny. (A) Położenie masy gębowej u Aplysia. (B) Anatomia zewnętrzna odontoforu. Powierzchnia raduli i worka radularnego jest zaznaczona na żółto; mięśnie tworzące odontofor są przedstawione na czerwono, zgodnie z ich rzeczywistymi kolorami. (C) Przekrój strzałkowy odontoforu, pokazujący położenie włókien podradularnych (zakrzywiona różowa linia) i mięśnia I7 (prosta różowa linia). Przekrój poprzeczny mięśnia I6 przedstawiono w kolorze ciemnoczerwonym. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Protokół
Aplysia są bezkręgowcami, w związku z czym nie podlegają zatwierdzeniu przez IAUC. Aby zminimalizować dyskomfort zwierząt, należy upewnić się, że są one w pełni znieczulone przed zastosowaniem opisanych poniżej technik chirurgicznych.
1. Wybór i znieczulenie zwierząt
- Wybierz aktywne zwierzę, oferując mu wodorosty i potwierdzając, że odstępy między kęsami nie przekraczają od 3 do 5 s.
- Znieczul zwierzę, wstrzykując 0,333 M chlorku magnezu (patrz Tabela 1) w okolicy głowy za pomocą igły 18 G na strzykawce 60 mL, tak aby najwyższe stężenie środka znieczulającego znajdowało się wokół masy policzkowej.
- Należy zadbać o to, aby igła przebiła zarówno nabłonek zewnętrzny, jak i wewnętrzną warstwę tkanki. Należy upewnić się, że iniekcja zostaje wykonana mniej więcej pod rinoforem, w połowie drogi między rinoforem a stopą, a igła powinna zostać wprowadzona ukośnie, skierowana w stronę żuwaczek.
- Po 10 min delikatnie spróbuj wbić szpilkę w skrzela oraz rinofor; brak ich cofnięcia potwierdzi wystarczający poziom znieczulenia.
- Upewnij się, że wargi i żuwaczki ślimaka są rozluźnione, co umożliwi odsłonięcie odontoforu.
UWAGA: Zmarszczki na wargach widoczne na Ryc. 2A wskazują, że wargi i żuwaczki zwierzęcia nie są wystarczająco rozluźnione, aby można było przeprowadzić procedurę chirurgiczną bez ryzyka uszkodzeń. Gładkie, rozluźnione wargi na Ryc. 2B wskazują, że żuwaczki są w pełni rozluźnione.
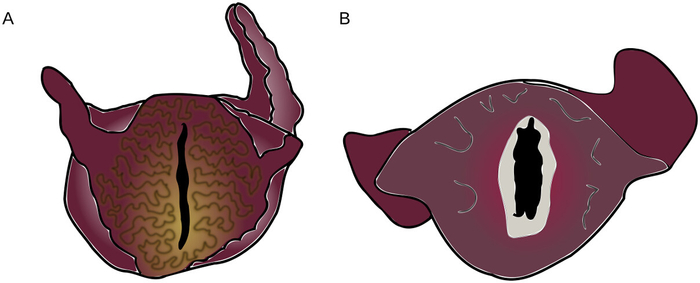
Rycina 2: Napięcie i rozluźnienie w jamie ustnej znieczulonego Aplysia. (A) Aplysia wykazująca wysoki stopień napięcia mięśni wokół warg. Koreluje to z napięciem żuwaczek i przeciwwskazuje kontynuowanie zabiegu chirurgicznego. (B) Aplysia z rozluźnionymi wargami, ukazująca wnętrze żuwaczek (jasnoszary). Kolory odpowiadają tym obserwowanym u zwierzęcia. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
- Jeśli wargi zwierzęcia nie są rozluźnione, wstrzyknij dodatkowe 30 mL chlorku magnezu i odczekaj kolejne 5 min. Jeśli nie doprowadzi to do rozluźnienia warg, przenieś zwierzę do osobnego pojemnika z dobrym przepływem wody w celu rekonwalescencji (patrz krok 4) i kontynuuj procedurę z innym osobnikiem.
2. Odsłanianie powierzchni raduli
- Ustaw ślimaka tak, aby głowa zwisała w dół, co pozwoli masie bzylcowej osiąść przy żuwaczkach.
- Wywieraj nacisk kciukiem i palcem wskazującym, aby pchnąć masę bzylcową w stronę żuwaczek, utrzymując ją w tej pozycji.
- Obróć żuwaczki tak, aby były widoczne. Jednocześnie utrzymuj nacisk na masę bzylcową, tak aby jej przednia część była widoczna przez żuwaczki (Rysunek 3).
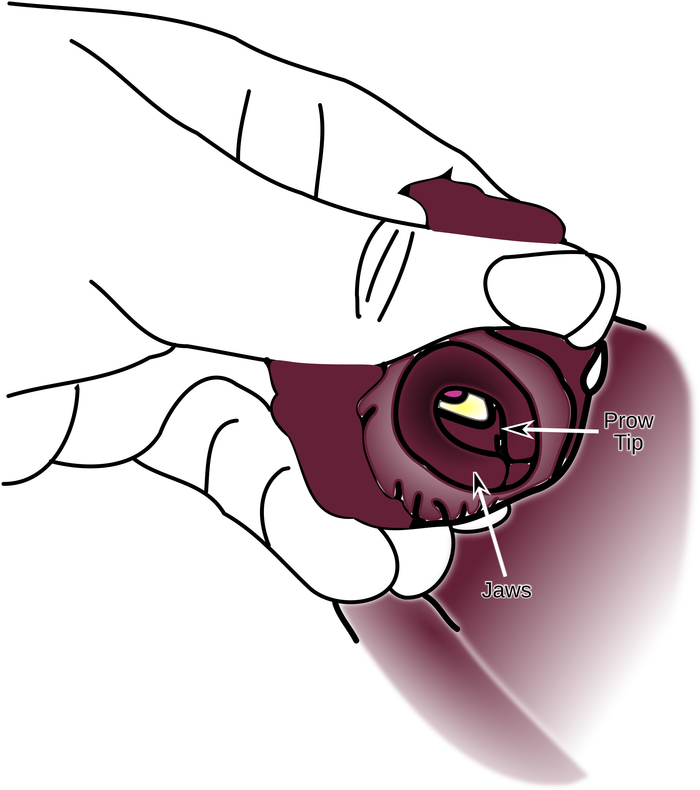
Rycina 3: Podtrzymywanie masy gębowej przy wewnętrznej stronie żuwaczek. Palce podtrzymują masę gębową, która została wypchnięta w stronę wewnętrznej krawędzi żuwaczek, aż do momentu, gdy widoczny stanie się wierzchołek dzioba. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
- Ostrożnie wsuń końcówki tępych pęsety w szczelinę odontoforu i użyj ich jako dźwigni, aby wysunąć powierzchnię raduli przez żuwaczki. Jeśli żuwaczki nie są wystarczająco rozluźnione, użyj pęsety, aby delikatnie chwycić krawędź szczeliny i wspomóc ten proces.
UWAGA: Taki nacisk wiąże się z ryzykiem większego uszkodzenia zwierzęcia. - Po odsłonięciu powierzchni odsuń żuwaczki od przedniej części powierzchni raduli wzdłuż całego obwodu. Zmniejsza to prawdopodobieństwo cofnięcia się odontoforu (Rysunek 4). Upewnij się, że odsłonięto nie więcej niż połowę ścian odontoforu.
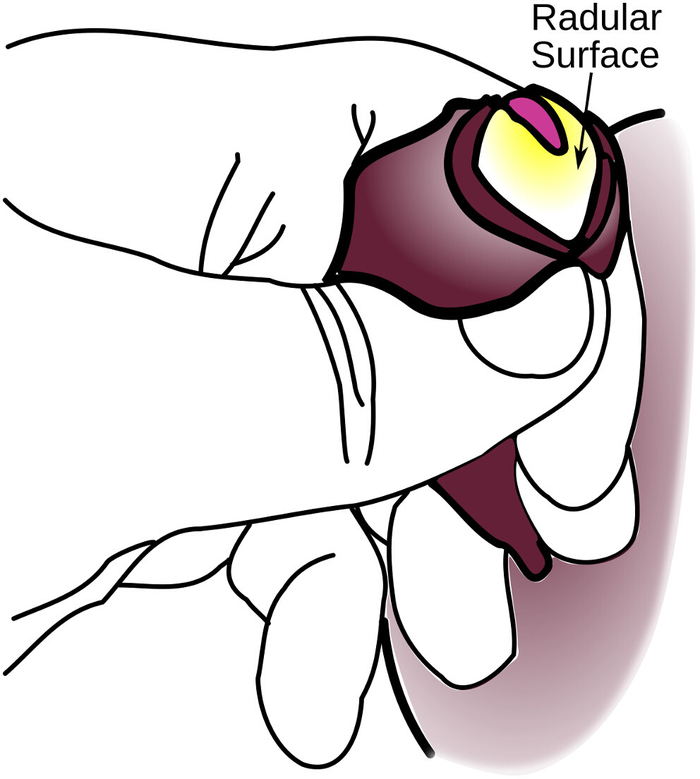
Rycina 4: Częściowe wywinięcie odontoforu. Powierzchnia raduli jest w pełni odsłonięta, jednak boki odontoforu pozostają zakryte, co sprawia, że jest to jedynie częściowe wywinięcie. Dalsze wywinięcie prawdopodobnie doprowadzi do uszkodzenia zwierzęcia. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
UWAGA: Pełne wywinięcie odontoforu spowoduje poważne uszkodzenia mięśni, z których zwierzęta bardzo powoli się regenerują.
3. Cięcia chirurgiczne
- Gdy powierzchnia raduli zostanie całkowicie odsłonięta, ułóż ślimaka pod stereomikroskopem sekcyjnym w celu przeprowadzenia zabiegu.
- Alternatywnie można użyć szerokiej gumki recepturki i uchwytu typu „trzecia ręka”, aby ustabilizować żuwaczki i powierzchnię raduli podczas zabiegu, szczególnie w trakcie nauki. Metoda ta wydłuża jednak czas procedury i zwiększa uszkodzenia tkanek, co czyni ją mniej optymalną w dłuższej perspektywie.
- Ułóż powierzchnię raduli tak, aby strona szczeliny była skierowana w stronę badacza.
- Delikatnie chwyć powierzchnię raduli w pobliżu jej nasady w taki sposób, aby utworzyła się pozioma fałda prostopadła do bruzdy anatomicznej. Za pomocą precyzyjnych nożyczek przetnij tę fałdę, wykonując nacięcie wzdłuż bruzdy anatomicznej (Rycina 5).
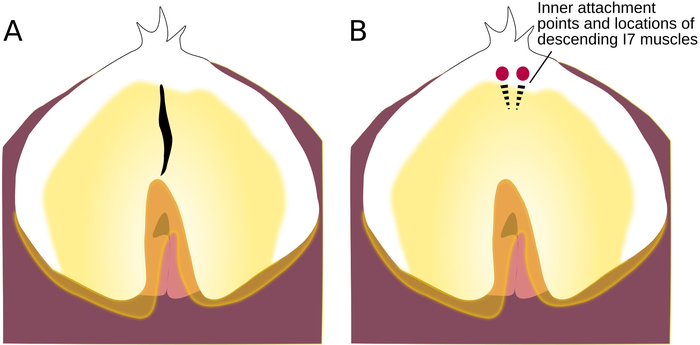
Rycina 5: Lokalizacja nacięcia powierzchni radularnej. (A) Powierzchnia radularna z nacięciem. (B) Powierzchnia radularna z okręgami wskazującymi miejsca przyczepu włókien obustronnego mięśnia I7; linie przerywane wskazują położenie mięśni zstępujących pod powierzchnią radularną. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
- Przedłuż to wstępne nacięcie do 3-5 cm, aby uzyskać dostęp do wnętrza masy policzkowej.
- Ustaw światło tak, aby padało bezpośrednio przez to nacięcie.
- Rozchyl brzegi nacięcia tak, aby widoczna była tylna część światła odontoforu oraz cienkie pionowe pasma mięśnia I7. (Rysunek 6)
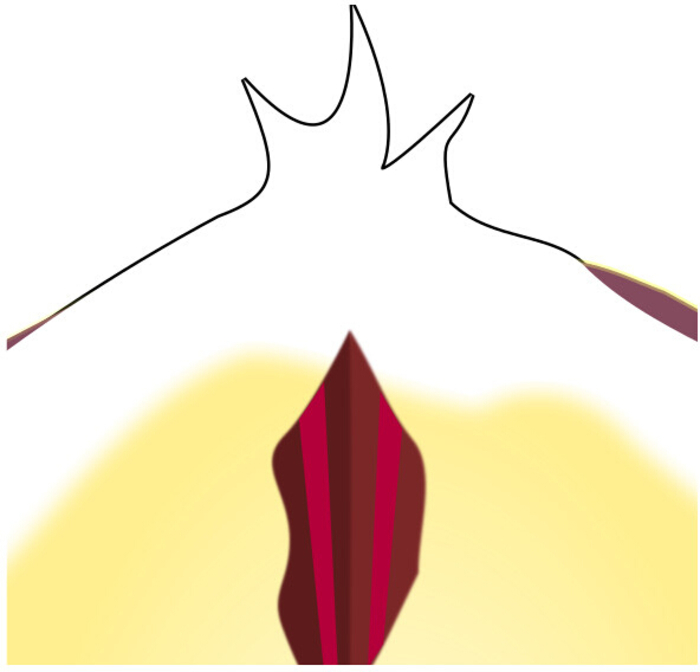
Rycina 6: Lokalizacja I7 widoczna przez nacięcie powierzchni radularnej. Patrząc przez nacięcie, oba pasma I7 są widoczne pomiędzy wewnętrznymi powierzchniami I4. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
- Wprowadź palce przez nacięcie, chwyć obie nitki I7 i wyciągnij je przez nacięcie, odcinając przy tym tyle mięśnia, ile jest to praktycznie możliwe (Rysunek 7).
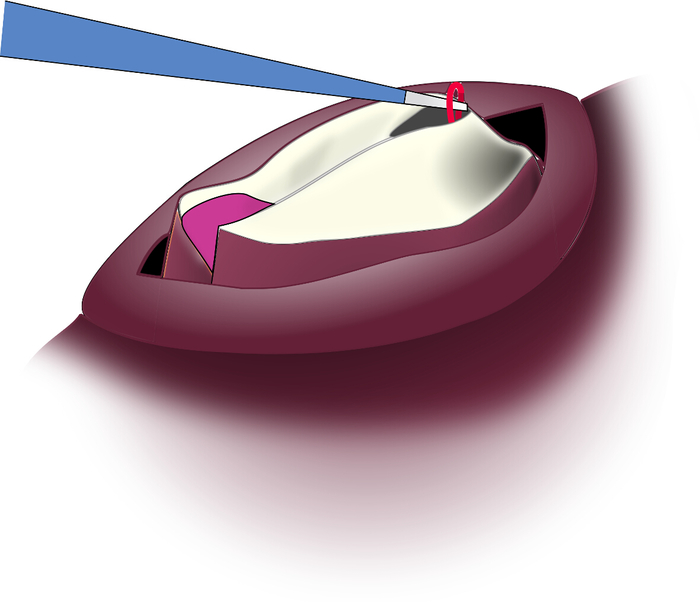
Rycina 7: Wyciąganie pasma mięśnia I7 przez nacięcie. Mięsień I7 jest bardzo elastyczny i może zostać wyciągnięty przez nacięcie w celu usunięcia. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
UWAGA: Wraz z praktyką zazwyczaj skuteczniejsze jest lokalizowanie I7 za pomocą dotyku niż wzroku.
4. Opieka pooperacyjna
- Po wykonaniu uszkodzeń chwyć czułki przednie i dociśnij powierzchnię radularną, aby przywrócić śluzakowi jego pierwotną konfigurację.
- Umieść zwierzęta po zabiegu w chronionym środowisku z dobrym przepływem wody. Zwiększone natlenienie przyspiesza rekonwalescencję. Upewnij się, że zwierzęta są czujne i reagują dzień po operacji. Jeśli tak nie jest, można założyć, że nie wyzdrowieją.
UWAGA: Zwierzęta zazwyczaj zaczynają żerować pierwszego lub drugiego dnia po zabiegu. Nawet zwierzętom, które mają trudności z gryzieniem, należy oferować wodorosty, ponieważ nasze anegdotyczne obserwacje wskazują, że próby jedzenia poprawiają rekonwalescencję zwierzęcia.
5. W przypadku uszkodzenia włókien podradularnych
- Należy wykonać kroki od 1.1 do 3.5.
- Wprowadzić końcówkę małego prostego ostrza skalpela (nr 11 lub podobnego) przez nacięcie, kierując ostrą krawędzią ku górze. Delikatnie zeskrobać drobne włókna mięśniowe z dolnej strony powierzchni raduli (Rysunek 8).
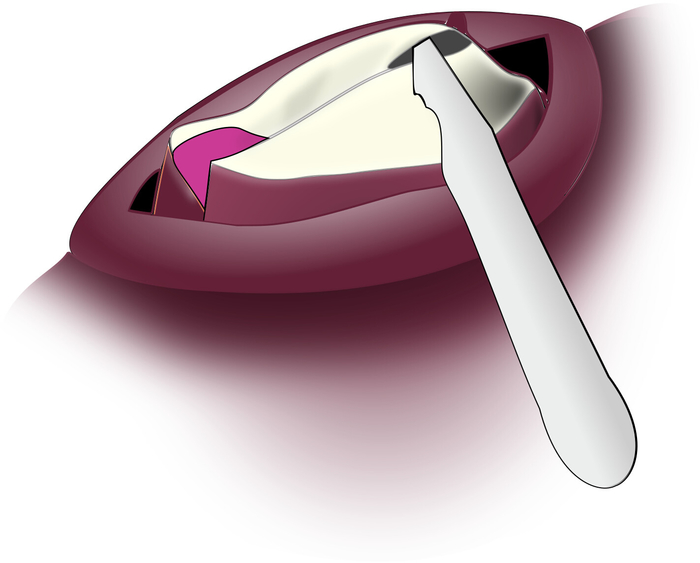
Rysunek 8: Przecinanie włókien podradularnych. Krawędź ostrza skalpela jest skierowana pod kątem w górę przez nacięcie w stronę dolnej powierzchni raduli, aby umożliwić delikatne zeskrobanie włókien podradularnych. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
- Wróć do kroku 4.1.
Wyniki
Poprzednie prace sugerowały, że mięsień I7 przyczynia się do otwierania chwytaka8. Nasze własne badania anatomiczne wskazały, że włókna podradularne również mogą przyczyniać się do otwierania chwytaka. Aby przetestować te hipotezy, u zwierząt indukowano ugryzienia zarówno przed, jak i po przeprowadzeniu procedury chirurgicznej. Zwierzęta z grupy kontrolnej (sham) poddano wszystkim etapom operacji, w tym nacięciu powierzchni raduli, ale nie usunięto żadnych mięśni wewnętrznych. Zwierzęta z uszkodzeniem I7 miały usunięte oba mięśnie I7. U zwierząt z uszkodzeniem włókien podradularnych usunięto ok. 25% włókien podradularnych bezpośrednio pod nacięciem. Operacje pozorowane (sham) nie miały istotnego wpływu na szerokość otworu w szczytowej fazie gryzienia, natomiast uszkodzenia mięśnia I7 oraz włókien podradularnych znacząco zmniejszyły szerokość ugryzienia (Rysunek 9).
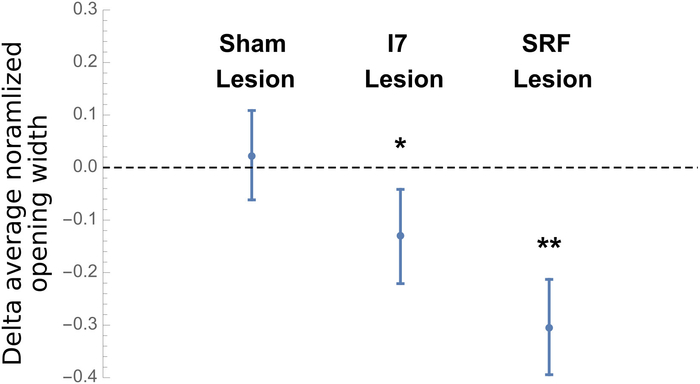
Rysunek 9: Wyniki uszkodzeń w zakresie szerokości otwarcia podczas maksymalnego ugryzienia. Przedstawione dane to różnice między średnią znormalizowaną szerokością otwarcia raduli przed i po procedurze chirurgicznej dla 5 zwierząt w każdej z 3 grup (sham, uszkodzenie I7 lub uszkodzenie SRF), gdzie każde zwierzę służyło jako własna kontrola. Średnie obliczono z 5 ugryzień przed i 5 ugryzień po procedurze chirurgicznej, aby określić średnią znormalizowaną różnicę. Szerokość otwarcia była odległością od środka raduli do krawędzi raduli w szczycie protrakcji, znormalizowaną przez odległość od wewnętrznej powierzchni podstawy raduli do krawędzi powierzchni raduli od strony szczeliny. Różnice przedstawiono jako średnie plus minus odchylenie standardowe. Po stwierdzeniu, że dane dotyczące różnic mają rozkład normalny, określono prawdopodobieństwo, że uszkodzenie nie miało wpływu (t.j. przetestowano hipotezę zerową, że efekty procedur chirurgicznych będą w średnim ujęciu zerowe), stosując test t dla prób zależnych w każdej niezależnej grupie. Dane wykazują, że operacja pozorowana (sham) nie miała istotnego wpływu, podczas gdy uszkodzenie mięśni I7 lub uszkodzenie włókien podradularnych miało istotny wpływ na otwarcie raduli (p < 0.031 dla grupy z uszkodzeniem I7, oznaczonej pojedynczą gwiazdką, lub p < 0.002 dla grupy z uszkodzeniem SRF, oznaczonej podwójną gwiazdką). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Masa ciała | Dawka chlorku magnezu |
| <200 g | ½ masy ciała |
| 200-350 g | 1/3 masy ciała |
| 350-450 g | ¼ masy ciała |
Tabela 1: Dawkowanie chlorku magnezu w zależności od masy ciała.
Dyskusja
Najbardziej krytycznymi krokami w protokole jest konieczność upewnienia się, że zwierzę jest w pełni znieczulone i że wywinięcie masy policzkowej jest wystarczające, aby uzyskać dostęp do leżących poniżej mięśni. Doskonalenie tych kroków może wymagać pewnej praktyki, ale gdy już zostaną opanowane, wyniki operacji będą prawdopodobnie większe niż 85% wszystkich przeprowadzonych eksperymentów. Najważniejszym sposobem na prawidłową modyfikację i rozwiązywanie problemów z protokołem jest poświęcenie czasu na wykonanie sekcji masy policzkowej, tak aby lokalizacje mięśni wewnętrznych były całkowicie jasne dla badacza. Ponieważ sugerowane nacięcie przez powierzchnię promieniowania nieuchronnie powoduje pewne uszkodzenie leżących pod spodem włókien podpromienionych, może być właściwa modyfikacja dokładnej lokalizacji nacięcia, aby uniknąć określonych obszarów tych włókien.
Jednym z ograniczeń techniki chirurgicznej jest to, że może ona mieć niespecyficzny wpływ na reakcje żywieniowe, takie jak siła protrakcji. Jednym ze sposobów na przezwyciężenie tego ograniczenia jest sprawienie, by zwierzęta służyły jako ich własne kontrole. Ponadto bardzo ważne jest, aby mieć pozorowaną grupę zmian, która jest poddawana całemu protokołowi chirurgicznemu, z wyjątkiem usunięcia określonego mięśnia (tj. I7 lub SRF). Postępując zgodnie z tymi sugestiami, badacz zmniejszy skutki zmienności między zwierzętami i będzie miał wewnętrzną miarę niespecyficznych skutków operacji.
W poprzednich pracach stosowano podejścia przez ścianę ciała do uszkodzenia lub zapisu z nerwów13,14 lub mięśni 15,16,17. W naszym laboratorium anegdotycznie zaobserwowaliśmy, że nacięciom ścian ciała często towarzyszy znaczna utrata hemolimfy, a tym samym objętości ciała. Zwierzęta często potrzebują kilku dni, aby dojść do siebie, a jeśli zmiana ściany ciała nie zostanie starannie zszyta, zwierzęta mogą nie wyzdrowieć. Ponadto sekcja zwłok zwierząt ujawnia znaczne blizny wokół nacięcia i silną odpowiedź immunologiczną (obserwacje anegdotyczne). W przeciwieństwie do tego, zwierzęta nie wykazują utraty hemolimfy ani zmiany objętości ciała po wyzdrowieniu z opisanego tutaj protokołu (na podstawie obserwacji na 96 zwierzętach).
Przyszłe zastosowania tej techniki mogą rozszerzyć ją na inne mięśnie w aparacie żywieniowym Aplysia oraz na inne zwierzęta. Skupiliśmy się na usunięciu mięśnia I7 i włókien podradradkowych. Te same ogólne techniki chirurgiczne umożliwiają również dostęp do większości innych mięśni zęboforu. Niektóre z nich, takie jak wewnętrzna część mięśnia I5, są najlepiej dostępne przez powierzchnię radularną. Inne, takie jak wewnętrzne ulotki I4, mogą być lepiej dostępne przez zewnętrzny nabłonek odontoforu. Przeprowadziliśmy wstępne próby, w których nacięcie pod szczeliną radną częściowo odciętego odontoforu umożliwiło dostęp do wprowadzenia zaostrzonego haczyka, który można było następnie wykorzystać do uszkodzenia innego mięśnia w obrębie odontoforu, mięśnia I88. Ponieważ opisany tutaj protokół chirurgiczny nie otwiera głównej jamy ciała, nie jest wymagane szycie.
Opisany przez nas protokół może być ogólnie interesujący dla innych badaczy pracujących nad strukturami tkanek miękkich, które w innym przypadku byłyby trudne do manipulowania, np. aparatem pokarmowym innych. Mówiąc bardziej ogólnie, protokół ten może sugerować inne nowatorskie podejścia chirurgiczne do analizy miękkich struktur, takich jak języki, tułowia lub macki18.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Chcielibyśmy podziękować za ciężką pracę, jaką Sherry Niggel, Sisi Lu i Joey Wu włożyli w ulepszenie i walidację tych protokołów. Prace te były wspierane przez NSF Grant IOS 1754869.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Kleszcze do | Fine Science Tools | 11210-10 | 2 pary |
| Ostrze skalpela (#11) | Fine Science Tools | 10011-00 | |
| Nożyczki sprężynowe | Fine Science Tools | 15024-10 | |
| Kamera internetowa | Logitech | c920 | do nagrywania danych |
Bibliografia
- Pinsker, H., Kupfermann, I., Castellucci, V., Kandel, E. Habituation and Dishabituation of the GM-Withdrawal Reflex in Aplysia. Science. 167, 1740-1742 (1970).
- Kupfermann, I. Feeding Behavior in Aplysia: A Simple System for the Study of Motivation. Behavioral Biology. 10, 1-26 (1974).
- Susswein, A. J., Chiel, H. J. Nitric oxide as a regulator of behavior: New ideas from Aplysia feeding. Progress in Neurobiology. 97, 304-317 (2012).
- Chiel, H. J. Aplysia feeding biomechanics. Scholarpedia. 2, 4165(2007).
- Neustadter, D. M., Drushel, R. F., Chiel, H. J. Kinematics of the buccal mass during swallowing based on magnetic resonance imaging in intact, behaving Aplysia californica. Journal of Experimental Biology. 205, 939-958 (2002).
- Neustadter, D. M., Herman, R. L., Drushel, R. F., Chestek, D. W., Chiel, H. J. The kinematics of multifunctionality: comparisons of biting and swallowing in Aplysia californica. Journal of Experimental Biology. 210, 238-260 (2007).
- Brezina, V., Evans, C. G., Weiss, K. R. Characterization of the membrane ion currents of a model molluscan muscle, the accessory radula closer muscle of Aplysia california. I. Hyperpolarization-activated currents. Journal of Neurophysiology. 71, 2093-2112 (1994).
- Evans, C. G., Rosen, S., Kupfermann, I., Weiss, K. R., Cropper, E. C. Characterization of a Radula Opener Neuromuscular System in Aplysia. Journal of Neurophysiology. 76 (2), 1267-1281 (1996).
- Cullins, M. J., Chiel, H. J. Electrode Fabrication and Implantation in Aplysia californica for Multi-channel Neural and Muscular Recordings in Intact, Freely Behaving Animals. Journal of Visualized Experiment. (40), 1791(2010).
- Dudek, F. E., Cobbs, J. S., Pinsker, H. M. Bag cell electrical activity underlying spontaneous egg laying in freely behaving Aplysia brasiliana. Journal of Neurophysiology. 42, 804-817 (1979).
- Hermann, P., Maat, A., Jansen, R. The Neural Control of Egg-Laying Behaviour in the Pond Snail Lymnaea Stagnalis: Motor Control of Shell Turning. Journal of Experimental Biology. 197, 79-99 (1994).
- Jansen, R. F., Pieneman, A. W., Ater Maat, Pattern Generation in the Buccal System of Freely Behaving Lymnaea stagnalis. Journal of Neurophysiology. 82, 3378-3391 (1999).
- Kupfermann, I. Dissociation of the appetitive and consummatory phases of feeding behavior in Aplysia: a lesion study. Behavioral Biology. 10, 89-97 (1974).
- Scott, M. L., Kirk, M. D. Recovery of consummatory feeding behavior after bilateral lesions of the cerebral-buccal connectives in Aplysia california. Brain Research. 585, 272-274 (1992).
- de Boer, P. A., Jansen, R. F., ter Maat, A., van Straalen, N. M., Koene, J. M. The distinction between retractor and protractor muscles of the freshwater snail’s male organ has no physiological basis. Journal of Experimental Biology. 213, 40-44 (2010).
- Chiel, H. J., Weiss, K. R., Kupfermann, I. An identified histaminergic neuron modulates feeding motor circuitry in Aplysia. Journal of Neuroscience. 6, 2427-2450 (1986).
- Hurwitz, I., Neustadter, D., Morton, D. W., Chiel, H. J., Susswein, A. J. Activity patterns of the B31/B32 pattern initiators innervating the I2 muscle of the buccal mass during normal feeding movements in Aplysia californica. Journal of Neurophysiology. 75, 1309-1326 (1996).
- Kier, W. M. The diversity of hydrostatic skeletons. Journal of Experimental Biology. 215, 1247-1257 (2012).
Przedruki i uprawnienia
