Ten protokół wykorzystywał dostępny na rynku system miografu ciśnieniowego do wykonywania testów miografu ciśnieniowego na mysiej pochwie i szyjce macicy. Wykorzystując pożywki z wapniem i bez niego, wyizolowano wkład komórek mięśni gładkich (SMC) w ton podstawowy i pasywną macierz zewnątrzkomórkową (ECM) dla narządów w szacowanych warunkach fizjologicznych.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Dwuosiowy ton podstawowy i bierne badanie mysiego układu rozrodczego za pomocą miografu ciśnieniowego
W tym artykule
Podsumowanie
Streszczenie
Żeńskie narządy rozrodcze, w szczególności pochwa i szyjka macicy, składają się z różnych składników komórkowych i unikalnej macierzy zewnątrzkomórkowej (ECM). Komórki mięśni gładkich wykazują funkcję skurczową w obrębie ścian pochwy i szyjki macicy. W zależności od środowiska biochemicznego i mechanicznego rozdęcia ścian narządów, komórki mięśni gładkich zmieniają warunki skurczu. Udział komórek mięśni gładkich w wyjściowych warunkach fizjologicznych jest klasyfikowany jako ton podstawowy. Mówiąc dokładniej, ton podstawowy to podstawowe częściowe zwężenie komórek mięśni gładkich przy braku stymulacji hormonalnej i nerwowej. Co więcej, ECM zapewnia wsparcie strukturalne dla ścian narządów i działa jako rezerwuar dla sygnałów biochemicznych. Te sygnały biochemiczne są niezbędne dla różnych funkcji narządów, takich jak pobudzanie wzrostu i utrzymywanie homeostazy. ECM każdego narządu składa się głównie z włókien kolagenowych (głównie kolagenu typu I, III i V), włókien elastycznych i glikozaminoglikanów/proteoglikanów. Skład i organizacja ECM dyktują właściwości mechaniczne każdego narządu. Zmiana składu ECM może prowadzić do rozwoju patologii rozrodczych, takich jak wypadanie narządów miednicy mniejszej lub przedwczesna przebudowa szyjki macicy. Ponadto zmiany w mikrostrukturze i sztywności ECM mogą zmieniać aktywność i fenotyp komórek mięśni gładkich, powodując w ten sposób utratę siły skurczu.
W tej pracy, zgłoszone protokoły są używane do oceny podstawowego tonu i pasywnych właściwości mechanicznych nieciężarnej mysiej pochwy i szyjki macicy w wieku 4-6 miesięcy w rui. Narządy zamontowano w dostępnym na rynku miografie ciśnieniowym i przeprowadzono testy zarówno ciśnienie-średnica, jak i siła-długość. Uwzględniono przykładowe dane i techniki analizy danych do mechanicznej charakterystyki narządów rozrodczych. Takie informacje mogą być przydatne do konstruowania modeli matematycznych i racjonalnego projektowania interwencji terapeutycznych w przypadku patologii zdrowia kobiet.
Wprowadzenie
Ściana pochwy składa się z czterech warstw: nabłonka, blaszki właściwej, muscularis i przydanki. Nabłonek składa się głównie z komórek nabłonkowych. Blaszka właściwa posiada dużą ilość elastycznych i fibrylarnych włókien kolagenowych. Mięśnie również składają się z włókien elastyny i kolagenu, ale mają zwiększoną ilość komórek mięśni gładkich. Przydanka składa się z elastyny, kolagenu i fibroblastów, choć w zmniejszonych stężeniach w porównaniu z poprzednimi warstwami. Komórki mięśni gładkich są przedmiotem zainteresowania grup badawczych motywowanych biomechanicznie, ponieważ odgrywają rolę w kurczliwości narządów. W związku z tym ilościowe określenie frakcji i organizacji komórek mięśni gładkich jest kluczem do zrozumienia funkcji mechanicznej. Wcześniejsze badania sugerują, że zawartość mięśni gładkich w ścianie pochwy jest przede wszystkim zorganizowana w osi obwodowej i podłużnej. Analiza histologiczna sugeruje, że frakcja obszaru mięśni gładkich wynosi około 35% zarówno dla bliższego, jak i dalszego odcinka ściany1.
Szyjka macicy to wysoce kolagenowa struktura, która do niedawna uważano, że ma minimalną zawartość komórek mięśni gładkich2,3. Ostatnie badania sugerują jednak, że komórki mięśni gładkich mogą odgrywać większą obfitość i rolę w szyjce macicy4,5. Szyjka macicy wykazuje gradient komórek mięśni gładkich. Wewnętrzny system operacyjny zawiera 50-60% komórek mięśni gładkich, podczas gdy zewnętrzny system operacyjny zawiera tylko 10%. Badania na myszach wskazują jednak, że szyjka macicy składa się w 10-15% z komórek mięśni gładkich i w 85-90% z włóknistej tkanki łącznej, bez wzmianki o różnicach regionalnych6,7,8. Biorąc pod uwagę, że model mysi różni się od często zgłaszanego modelu ludzkiego, potrzebne są dalsze badania dotyczące szyjki macicy myszy.
Celem tego protokołu było wyjaśnienie właściwości mechanicznych mysiej pochwy i szyjki macicy. Udało się to osiągnąć dzięki zastosowaniu miografu ciśnieniowego, który umożliwia jednoczesną ocenę właściwości mechanicznych w kierunku obwodowym i osiowym, przy jednoczesnym zachowaniu natywnych interakcji komórka-matryca i geometrii narządów. Narządy zostały osadzone na dwóch niestandardowych kaniulach i zabezpieczone jedwabnymi szwami 6-0. Testy ciśnienia i średnicy przeprowadzono wokół szacowanego fizjologicznego rozciągnięcia osiowego w celu określenia podatności i modułów stycznych9. Przeprowadzono testy siły i długości, aby potwierdzić szacowane rozciągnięcie osiowe i upewnić się, że właściwości mechaniczne zostały określone ilościowo w zakresie fizjologicznym. Protokół eksperymentalny przeprowadzono na nieciężarnej mysiej pochwie i szyjce macicy w wieku 4-6 miesięcy w rui.
Protokół jest podzielony na dwie główne sekcje testów mechanicznych: podstawowe tony i pasywne testy. Ton podstawowy definiuje się jako podstawowe częściowe zwężenie komórek mięśni gładkich, nawet przy braku zewnętrznej stymulacji miejscowej, hormonalnej i nerwowej10. Ta podstawowa kurczliwość pochwy i szyjki macicy powoduje charakterystyczne zachowania mechaniczne, które są następnie mierzone przez system miografu ciśnieniowego. Właściwości pasywne ocenia się poprzez usunięcie międzykomórkowego wapnia, który utrzymuje wyjściowy stan skurczu, co powoduje rozluźnienie komórek mięśni gładkich. W stanie pasywnym włókna kolagenu i elastyny zapewniają dominujący wkład w charakterystykę mechaniczną narządów.
Model mysi jest szeroko stosowany do badania patologii w zdrowiu reprodukcyjnym kobiet. Mysz oferuje kilka korzyści w ilościowym określaniu zmieniających się relacji między ECM a właściwościami mechanicznymi w układzie rozrodczym11,12,13,14. Do tych zalet należą krótkie i dobrze scharakteryzowane cykle rujowe, stosunkowo niski koszt, łatwość obsługi i stosunkowo krótki czas ciąży15. Ponadto genom myszy laboratoryjnych jest dobrze zmapowany, a genetycznie zmodyfikowane myszy są cennymi narzędziami do testowania hipotez mechanistycznych16,17,18.
Komercyjnie dostępne systemy miografu ciśnieniowego są szeroko stosowane do ilościowego określania reakcji mechanicznych różnych tkanek i organów. Niektóre godne uwagi struktury analizowane w systemie miografu ciśnieniowego obejmują elastyczne tętnice19,20,21,22, żyły i przeszczepy naczyniowe inżynierii tkankowej23,24, esophagus25, and the large intestines26. Technologia miografu ciśnieniowego pozwala na jednoczesną ocenę właściwości w kierunku osiowym i obwodowym przy zachowaniu natywnych oddziaływań komórka-ECM i geometrii in vivo. Pomimo szerokiego zastosowania systemów miografowych w mechanice tkanek miękkich i narządów, protokół wykorzystujący technologię miografu ciśnieniowego nie został wcześniej opracowany dla pochwy i szyjki macicy. Wcześniejsze badania właściwości mechanicznych pochwy i szyjki macicy zostały ocenione jednoosiowo27,28. Narządy te doświadczają jednak obciążenia wieloosiowego w obrębie ciała29,30, dlatego ważne jest ilościowe określenie ich dwuosiowej odpowiedzi mechanicznej.
Ponadto, ostatnie badania sugerują, że komórki mięśni gładkich mogą odgrywać potencjalną rolę w patologiach tkanek miękkich5,28,31,32. Stanowi to kolejną atrakcję wynikającą z wykorzystania technologii miografu ciśnieniowego, ponieważ zachowuje ona natywne interakcje komórka-macierz, umożliwiając w ten sposób określenie wkładu, jaki komórki mięśni gładkich odgrywają w stanach fizjologicznych i patofizjologicznych. W niniejszym artykule proponujemy protokół ilościowego określenia wieloosiowych właściwości mechanicznych pochwy i szyjki macicy zarówno w warunkach tonu podstawowego, jak i biernego.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
W badaniu wykorzystano nieporodne samice myszy C57BL6J w wieku 4-6 miesięcy (29,4 ± 6,8 g) w fazie rujowania. Wszystkie procedury zostały zatwierdzone przez Komisję ds. Opieki i Korzystania ze Zwierząt (Institute Animal Care and Use Committee) Uniwersytetu Tulane. Po dostawie myszy poddano aklimatyzacji przez jeden tydzień przed eutanazją; zwierzęta przetrzymywano w standardowych warunkach (12-godzinne cykle światła/ciemności).
1. Uśmiercanie myszy w fazie rujowania
- Określenie cyklu rujowego: Cykl rujowy monitorowano za pomocą oceny wizualnej zgodnie z poprzednimi badaniami15,33,34. Cykl rujowy składa się z czterech faz: proestrusu, estrusu, metestrusu i diestrusu. W fazie proestrusu narządy płciowe są obrzęknięte, różowe, wilgotne i pomarszczone. Faza estrusu charakteryzuje się pomarszczeniem, ale mniejszym obrzękiem, różowym kolorem i wilgotnością. W przypadku metestrusu i diestrusu zgłasza się brak obrzęku i pomarszczenia, brak różowego odcienia oraz suchość34,35.
- Przeprowadzenie eksperymentu w fazie estrusu: Wszystkie testy mechaniczne przeprowadzono, gdy myszy znajdowały się w fazie estrusu, ponieważ jest ona najłatwiejsza do zidentyfikowania wizualnie i zapewnia spójny oraz powtarzalny punkt czasowy.
- W przypadku myszy poddawanych badaniu napięcia podstawowego, przeprowadzić eutanazję za pomocą gilotyny. W przypadku myszy badanych wyłącznie w warunkach pasywnych, przeprowadzić eutanazję poprzez inhalację dwutlenkiem węgla (CO2). Gilotyna służy do zachowania funkcji komórek mięśni gładkich dróg rodnych, ponieważ gaz CO2 zmienia właściwości skurczowe komórek mięśni gładkich36,37,38,39,40,41,42. Niezbędne jest przeprowadzenie sekcji w ciągu 30 minut, aby zminimalizować ryzyko apoptozy komórek.
2. Disekcja układu rozrodczego
- Przygotowanie: Połóż podkład chłonny na stanowisku pracy i napełnij szalkę Petriego oraz strzykawkę 4 °C zrównoważonym roztworem soli Hanksa (HBSS). Przygotuj chusteczkę do utylizacji tkanki tłuszczowej. Połóż mysz brzuchem do góry i przymocuj łapami oraz ogon taśmą. Włącz oświetlenie mikroskopu i przygotuj mikronożyczki, nożyczki, dwie pary pęset prostych oraz dwie pary pęset zakrzywionych.
- Używając pęsety kątowej i nożyczek, unieś skórę wokół brzucha i wykonaj nacięcie u podstawy brzucha, powyżej kości łonowej. Nacięcie powinno być na tyle płytkie, aby nie przebić ściany mięśni brzucha. Kontynuuj nacinanie nożyczkami w kierunku górnym, w stronę klatki piersiowej, przecinając głęboko mięśnie brzucha.
- Usuń tłuszcz powierzchowny, lekko pociągając go pęsetą zakrzywioną i mikronożyczkami. Tkanka tłuszczowa będzie odbijać światło niejednorodnie, wykazując połyskliwy wygląd. Połóż cały usunięty tłuszcz i tkankę na chusteczce. Zidentyfikuj oba rogi macicy oraz kość łonową.
- Umieść zamknięte nożyczki między ścianą pochwy a kością łonową. Ostrożnie przetnij środek kości łonowej (synfizę łonową). Umieść pęsety zakrzywione na obu końcach przeciętej kości łonowej. Rozszerz oba przecięte końce bocznie, aby uzyskać lepszy dostęp do narządów rozrodczych.
- Usuń pęcherz moczowy i cewkę moczową ze ściany pochwy. Można to zrobić za pomocą pęsety prostej i mikronożyczek. Przytrzymaj pęcherz pęsetą prostą, aby stworzyć napięcie, i zastosuj techniki rozdzielania tępego, aby oddzielić otaczającą tkankę od pochwy. Po oddzieleniu pęcherza i cewki moczowej przetnij ich podstawę i usuń z jamy ciała.
- Zidentyfikuj układ rozrodczy: rogi macicy odchodzą od szyjki macicy. Szyjkę macicy można odróżnić od pochwy na podstawie różnic w geometrii i sztywności. Średnica zewnętrzna szyjki macicy jest mniejsza niż pochwy. Szyjka macicy jest sztywniejsza niż pochwa i w dotyku przypomina koralik (Rycina 1).
- Używając tuszu i suwmiarki, zaznacz kropki o średnicy 3 mm wzdłuż narządów. Zacznij poniżej jajników na jajowodach i zaznaczaj kropki w kierunku dolnym, aż dotrzesz do szyjki macicy. Wykorzystaj kropkę w centrum szyjki macicy, aby rozpocząć ścieżkę kropek prowadzącą w dół do ujścia pochwy.
- Pozostaw tusz do wyschnięcia i oddziel narządy rozrodcze od otaczającej tkanki tłuszczowej, tkanki łącznej i jelita grubego. Oczyść pochwę jak najbliżej ujścia pochwy. Za pomocą nożyczek przetnij tkankę wokół ujścia pochwy.
UWAGA: W trakcie tego procesu możliwe jest wyschnięcie narządów. Jeśli jest to problemem, można użyć strzykawki wypełnionej 4 °C HBSS, aby nawilżyć narządy. - Przetnij rogi macicy bezpośrednio poniżej jajników. Należy pamiętać, że narządy skurczą się w porównaniu do długości po wyjęciu, gdy tkanka łączna zostanie usunięta, a narząd powróci do swojej naturalnej formy. Umieść wypreparowane narządy rozrodcze w szalce Petriego wypełnionej 4 °C HBSS. Tę zmianę długości można wykorzystać do obliczenia szacunkowej długości in vivo (sekcja 5).
UWAGA: Stwierdzono, że stosowanie HBSS w tej temperaturze podczas dyssekcji i kanulacji nie wpływa na żywotność komórek mięśni gładkich. Utrzymanie pH na poziomie 7,4 jest jednak niezbędne dla zachowania żywotności komórek mięśni gładkich. W tej temperaturze HBSS ma wartość pH 7,4. - Po 15-minutowym okresie równowagowania w 4 °C HBSS zmierz odległość między kropkami za pomocą suwmiarki. Zapisz pomiary każdego dystansu w arkuszu kalkulacyjnym. Wartości te zostaną wykorzystane do obliczenia współczynnika rozciągnięcia in vivo (długość oryginalna/długość po wyjęciu).
- Połóż chusteczkę z usuniętą tkanką na obszarze brzusznym, tak aby nadmiar tkanki był skierowany do wnętrza myszy, i nasącz chusteczkę 4 °C HBSS. Zawiń mysz i nadmiar tkanki w folię i umieść w worku odpornym na zamrażanie, aby przechowywać w temperaturze -20 °C. Nie stwierdzono, aby pasywne zachowanie mechaniczne pochwy różniło się znacząco po jednym cyklu zamrażania i rozmrażania43. Wszystkie testowane narządy były wykorzystywane natychmiast po eutanazji lub po jednym cyklu zamrażania i rozmrażania.
3. Kanulacja
- Dobierz odpowiedni rozmiar kaniuli dla danego typu narządu. W typowej myszy szczepu C57BL6J do pochwy stosuje się kaniule o średnicy 3,75 mm, które są nitowane. W przypadku szyjki macicy stosuje się jedną kaniulę o średnicy 3,75 mm na końcu pochwowym oraz kaniulę o średnicy 0,75 mm na końcu macicznym (Rycina 2) Kanula o średnicy 0,75 mm jest gładka.
UWAGA: Powyżej podane wartości średnic odnoszą się do typowych myszy C57BL6 w wieku 4–6 miesięcy (niepochodziły w porodzie), myszy C57BL6 x 129SvEv oraz myszy niepochodziłych w wieku 7–9 miesięcy. Jednakże w określonych okolicznościach, takich jak wypadnięcie narządów lub ciąża, może być wymagana kaniula o większym rozmiarze. - W przypadku każdego organu należy przymocować stronę szyjki do części urządzenia do kaniulacji wyposażonej w przetwornik siły. Przeciwny koniec organu (pochwy lub macicy) należy przymocować do części urządzenia wyposażonej w mikrometr. Oba końce należy mocno zawiązać szwami.
- Ze względu na różnice w grubości i stopniu kurczliwości pochwy i szyjki macicy, w celu przeprowadzenia najskuteczniejszej kanulacji można stosować różne techniki. W przypadku pochwy należy umieścić 2 szwy pomiędzy 2nd oraz 3rd nituje kaniulę w kształcie litery „X”. Podczas kaniulowania szyjki macicy kaniuli nie nituje, zatem organ najlepiej umieścić w tylnej części kaniuli, stosując 3 szwy poziome na końcu macicznym oraz 4 szwy na zewnętrznym ujściu szyjki macicy. W przypadku obu narządów maksymalna długość między szwami nie powinna przekraczać 7 mm (Rysunek 3).
4. Konfiguracja miografu ciśnieniowego
- Aby przygotować system miografii ciśnieniowej, włącz system testowy i napełnij butelkę zbiornika 200 mL HBSS (Rysunek 4). Włącz podgrzewanie i odczekaj, aż HBSS w butelce zbiornika zostanie ogrzany. Następnie włącz mikroskop i uruchom program komputerowy. Upewnij się, że obraz kaniulowanego narządu, interfejs ciśnienia, odczyty przepływomierza oraz narzędzie funkcji sekwencjonowania są widoczne (Rysunek 5).
5. Mechaniczne badanie napięcia spoczynkowego
UWAGA: Szyjka macicy wykazywała charakter fazowy w początkowych etapach badania. Zjawisko to zmniejszyło się jednak po wstępnym kondycjonowaniu. Pomiar napięcia spoczynkowego jest przeprowadzany z wykorzystaniem buforu Krebsa-Ringera (KRB) w komorze urządzenia DMT. Bufor jest napowietrzany mieszanką 95% O2 i 5% CO2. Po zakończeniu pomiaru napięcia spoczynkowego stosowany jest KRB pozbawiony wapnia.
- Wyznaczanie geometrii nieobciążonej: Rozciągnij narząd tak, aby ściana nie była pod napięciem. W przypadku pochwy obserwuj bruzdy na ścianie pochwy. W przypadku szyjki macicy wykonaj cięcie bezpośrednio poniżej kropek z tuszu znajdujących się nad i pod centralnym znacznikiem szyjki macicy. Pozwala to na zastosowanie powtarzalnej metody uzyskania długości in situ szyjki macicy wynoszącej 6 mm44. Zmierz długość od szwu do szwu za pomocą suwmiarki
- Wyznaczanie ciśnienia nieobciążonego (UP): Zwiększaj ciśnienie od 0 do 10 mmHg w przyrostach po 1 mmHg. Określ ciśnienie, przy którym narząd przestaje być zapadnięty. Można to ustalić na podstawie największego skoku średnicy zewnętrznej przy danym ciśnieniu, co jest widoczne na monitorze programu. Po zarejestrowaniu ciśnienia i średnicy zewnętrznej, odnotuj ten punkt jako pierwszy moment, w którym narząd nie jest zapadnięty, a następnie wyzeruj siłę.
- Szacowane rozciągnięcie in vivo: Oblicz szacowane rozciągnięcie in vivo, dzieląc długość zmierzoną in vivo przez długość zmierzoną po eksplantacji:
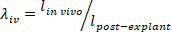
- Przygotowanie (prekondycjonowanie) ciśnienie-średnica: Ustaw ciśnienie na 0 mmHg, długość na szacowaną długość in vivo
 oraz gradient na 1,5 mmHg/s. Uruchom sekwencję, która zwiększa ciśnienie od 0 mmHg do ciśnienia in vivo + nieobciążonego (Tabela 1), utrzymaj przez 30 sekund, a następnie obniż ciśnienie do 0 mmHg z 30-sekundowym okresem utrzymania. Po powtórzeniu tego procesu łącznie 5 razy, naciśnij Stop w programie komputerowym i zapisz plik.
- Wyznaczanie eksperymentalnego rozciągnięcia in vivo: Dostosuj narząd tak, aby miał szacowaną długość in vivo przy ciśnieniu nieobciążonym, a następnie naciśnij Start. Oceń wartości ciśnienia względem siły dla wartości ciśnienia w zakresie od ciśnienia nieobciążonego do ciśnienia maksymalnego (Tabela 1). Naciśnij przycisk Stop w programie komputerowym i zapisz plik.
UWAGA: Zmierzona wartość rozciągnięcia jest obliczana in situ. Wiąże się to z ograniczeniem polegającym na tym, że pomiar jest możliwy dopiero po rozdzieleniu spojenia łonowego. W rezultacie tracone jest naturalne zakotwiczenie, co może zmodyfikować długość. Teoretyczne rozciągnięcie opiera się jednak na wcześniej wprowadzonej teorii, według której narząd wykazuje minimalne zmiany siły przy ekspozycji na ciśnienia fizjologiczne w celu oszczędzania energii45. W protokole zmierzone rozciągnięcie in vivo będzie wartością rozciągnięcia obliczoną przy użyciu eksperymentalnie zidentyfikowanej długości, przy której występuje minimalna zmiana siły pod wpływem fizjologicznego zakresu ciśnień. - Przygotowanie (prekondycjonowanie) ciśnienie-średnica: Ustaw ciśnienie na 0 mmHg, długość na eksperymentalną długość in vivo oraz gradient na 1,5 mmHg/s. Uruchom sekwencję, która zwiększa ciśnienie od 0 mmHg do ciśnienia maksymalnego + UP, utrzymaj przez 30 sekund, a następnie wróć do 0 mmHg z dodatkowym 30-sekundowym okresem utrzymania. Po powtórzeniu tego procesu łącznie 5 razy, naciśnij przycisk Stop w interfejsie programu i zapisz plik.
UWAGA: Krok 5.4 jest niezbędny do uzyskania bardziej spójnego odczytu siły osiowej wraz ze wzrostem ciśnienia. Krok ten pomaga w znalezieniu prawidłowego rozciągnięcia in vivo, które często jest niedoszacowane na podstawie wskazówek wizualnych. Krok 5.6 służy jako środek ostrożności w celu zminimalizowania histerezy i uzyskania spójnej, powtarzalnej i matematycznie interpretowalnej odpowiedzi narządu. - Przygotowanie (prekondycjonowanie) siła-długość: Wprowadź wartość 1/3 ciśnienia max + UP dla ciśnienia wlotowego i wylotowego. Dostosuj narząd do -2% długości in vivo i naciśnij Start. Zmień długość do +2% długości in vivo, a następnie z powrotem do -2% z prędkością 10 µm/s. Powtórz rozciąganie osiowe łącznie 5 razy. Naciśnij Stop w programie komputerowym i zapisz plik.
- Równoważenie: Przy narządzie o ustalonej długości in vivo ustaw ciśnienie wlotowe i wylotowe na 1/3 ciśnienia maksymalnego + UP. Równoważ narząd przez 10 minut. Powoli obniż oba ciśnienia z powrotem do 0 mmHg, przy ustawionym gradiencie 1,5 mmHg/s.
- Ponowna ocena geometrii nieobciążonej: Ustaw narząd na długość in vivo, a ciśnienie na ciśnienie nieobciążone. Zmniejszaj długość osiową w kierunku szacowanej długości nieobciążonej z prędkością 10 µm/s, aż wystąpi minimalna zmiana siły. Odpowiadająca temu długość jest znana jako długość nieobciążona, czyli stan, w którym narząd nie jest ani napięty, ani ściśnięty. Przed wyzerowaniem siły zarejestruj długość nieobciążoną, średnicę zewnętrzną oraz wartość siły.
UWAGA: Poprzednia geometria nieobciążona została wyznaczona na podstawie wskazówek wizualnych, co ma charakter czysto jakościowy. Ponowna ocena jest konieczna dla metody ilościowej oraz w celu uwzględnienia możliwych zmian długości, które mogły wystąpić podczas przygotowania. - Konfiguracja ultradźwięków: Użyj ogólnego pakietu obrazowania brzusznego do wizualizacji narządów w urządzeniu testowym (Rysunek 6). Przed testowaniem zminimalizuj artefakty pochodzące z dna metalowej misy myografu ciśnieniowego. Dostosuj kaniulę do wysokości, która jest maksymalną odległością od dna, przy której tkanka jest wciąż w pełni zanurzona w roztworze testowym. Do stabilizacji przetwornika w pozycji pionowej podczas obrazowania użyto wydrukowanego w 3D specjalnego uchwytu.
- Obrazowanie ultradźwiękowe: Zlokalizuj kaniulę w pobliżu przetwornika siły i dostosuj stolik mikroskopu, aby obrazować wzdłuż długości tkanki. Przez cały proces testowy śledzony jest region środkowy wzdłuż długości (Rysunek 6A,C). Po obrazowaniu przejrzyj pętlę „Cine store”, składającą się z serii klatek w trybie B, i zidentyfikuj klatkę z największą średnicą zewnętrzną. Obliczenia grubości zostaną wykorzystane w sekcji 8.
- Badanie ciśnienie-średnica (-2% długości in vivo): Naciśnij Start i dostosuj narząd tak, aby stanowił -2% długości in vivo, ustaw ciśnienie na 0 mmHg i gradient na 1,5 mmHg/s. Zwiększ ciśnienie od 0 mmHg do ciśnienia maksymalnego. Obniż ciśnienie z powrotem do 0 mmHg z 20-sekundowym okresem utrzymania. Powtórz to przez 5 cykli.
- Badanie ciśnienie-średnica (długość in vivo): Naciśnij Start i dostosuj narząd tak, aby miał długość in vivo, ustaw ciśnienie na 0 mmHg i gradient na 1,5 mmHg/s. Zwiększ ciśnienie od 0 mmHg do ciśnienia maksymalnego. Obniż ciśnienie z powrotem do 0 mmHg z 20-sekundowym okresem utrzymania. Powtórz to przez 5 cykli.
- Badanie ciśnienie-średnica (+2% długości in vivo): Dostosuj narząd tak, aby stanowił +2% długości in vivo, ustaw ciśnienie na 0 mmHg i gradient na 1,5 mmHg/s. Zwiększ ciśnienie od 0 mmHg do ciśnienia maksymalnego, a następnie obniż do 0 mmHg z 20-sekundowym okresem utrzymania. Powtórz to przez 5 cykli. Dane ciśnienia dla wszystkich trzech długości zostaną wykorzystane w sekcji 8.
- Badanie siła-długość (ciśnienie nominalne): Ustaw ciśnienie na ciśnienie nieobciążone, a narząd na -2% długości in vivo. Rozciągnij narząd do +2% długości in vivo i wróć do -2% długości in vivo z prędkością 10 µm/s. Powtórz łącznie 3 razy.
- Badanie siła-długość (1/3 ciśnienia maksymalnego + UP): Ustaw ciśnienie na 1/3 ciśnienia maksymalnego + UP i dostosuj narząd do -2% długości in vivo. Po naciśnięciu Start rozciągnij narząd do +2% długości in vivo i z powrotem do -2% długości in vivo z prędkością 10 µm/s. Po powtórzeniu łącznie 3 razy, naciśnij Stop i zapisz dane.
- Badanie siła-długość (2/3 ciśnienia maksymalnego + UP): Ustaw ciśnienie na 2/3 ciśnienia maksymalnego + UP i dostosuj narząd do -2% długości in vivo. Naciśnij Start i rozciągnij narząd do +2% długości in vivo oraz z powrotem do -2% długości in vivo z prędkością 10 µm/s. Po powtórzeniu łącznie 3 razy, naciśnij Stop i zapisz dane.
- Badanie siła-długość (ciśnienie maksymalne + UP): Ustaw ciśnienie na ciśnienie maksymalne + UP i dostosuj narząd do -2% długości in vivo. Z prędkością 10 µm/s rozciągnij narząd do +2% długości in vivo i z powrotem do -2% długości in vivo. Po powtórzeniu łącznie 3 razy, zapisz dane. Wszystkie dane dotyczące siły zostaną wykorzystane w sekcji 8.
- Usuń medium testowe KRB i przemyj roztworem KRB wolnym od wapnia. Zastąp medium roztworem KRB wolnym od wapnia uzupełnionym o 2 mM EGTA. Inkubuj tkankę przez 30 minut. Usuń roztwór i zastąp medium świeżym roztworem KRB wolnym od wapnia.
6. Pasywne badania mechaniczne
UWAGA: Jeśli rozpoczynasz od testów pasywnych, zacznij od kroku 1. Jeśli testy napięcia podstawowego zostały przeprowadzone przed testami pasywnymi, zacznij od kroku 6. W przypadku rozpoczęcia pracy z zamrożoną tkanką, odczekaj 30 minut w temperaturze pokojowej przed zakanulowaniem narządu.
- Wyznaczenie geometrii stanu nieobciążonego: Rozciągnij organ tak, aby jego ściana nie była poddana naprężeniom. Zmierz kaniulowany organ od szwu do szwu i zapisz tę wartość jako długość stanu nieobciążonego.
- Wyznaczenie ciśnienia stanu nieobciążonego: Po naciśnięciu przycisku Start, zwiększaj ciśnienie od 0 do 10 mmHg w przyrostach 1 mmHg. Podczas tego procesu określ ciśnienie, przy którym organ nie jest poddany naprężeniom. Korzystając z monitora programu komputerowego, można to ustalić na podstawie największego skoku średnicy zewnętrznej. Po wyzerowaniu siły zapisz to ciśnienie oraz średnicę zewnętrzną i odnotuj to jako pierwszy punkt, w którym organ nie jest zapadnięty.
- Szacowane rozciągnięcie in vivo: Oblicz szacowane rozciągnięcie in vivo, dzieląc długość zmierzoną in vivo przez długość zmierzoną po eksplantacji.
- Kondycjonowanie zależności ciśnienie-średnica: Po naciśnięciu przycisku Start, ustaw ciśnienie na 0 mmHg, długość na szacowaną długość in vivo, a gradient na 1,5 mmHg/s. Uruchom sekwencję, która zwiększa ciśnienie od 0 mmHg do ciśnienia maksymalnego, a następnie zmniejsza je z powrotem do 0 mmHg. Powtórz ten proces przez 5 cykli z czasem przytrzymania 30 sekund.
- Kondycjonowanie zależności siła-długość: Dostosuj organ do długości in vivo i ręcznie wprowadź do programu komputerowego ciśnienie stanu nieobciążonego dla obu ciśnień. Po naciśnięciu przycisku Start, ustaw gradient na 2 mmHg, a ciśnienie na 1/3 wartości maksymalnej. Rozciągnij organ do +2% i z powrotem do -2% rozciągnięcia z prędkością 10 µm/s. Powtórz ten cykl łącznie 5 razy i naciśnij Stop.
- Wyznaczenie eksperymentalnej długości in vivo: Wyznacz i nanieś na wykres wartości siły przy -2% długości in vivo, długości in vivo oraz +2% długości in vivo. Odczytaj wartości sił przy równomiernie rozmieszczonych ciśnieniach w zakresie od 0 mmHg do ciśnienia maksymalnego. Eksperymentalnym rozciągnięciem in vivo będzie wartość rozciągnięcia, dla której linia jest stosunkowo płaska w szerokim zakresie ciśnień.
- Powtórz etapy kondycjonowania zależności ciśnienie-średnica oraz kondycjonowania osiowego dla nowej długości in vivo.
- Równoważenie: Przy ustawieniu organu na wyznaczoną długość in vivo, ustaw ciśnienie wlotowe i wylotowe na wartość ciśnienia stanu nieobciążonego. Pozostaw organ do ponownego równoważenia przez 15 minut. Po 15 minutach powoli obniż ciśnienie wlotowe i wylotowe z powrotem do 0 mmHg.
- Ponowna ocena konfiguracji stanu nieobciążonego: Doprowadź organ do długości stanu nieobciążonego i ponownie oszacuj długość stanu nieobciążonego. Zapisz długość stanu nieobciążonego i średnicę zewnętrzną przy ciśnieniu 0 mmHg, ciśnieniu stanu nieobciążonego oraz przy 1/3 ciśnienia maksymalnego. Wyzeruj siłę przy ciśnieniu stanu nieobciążonego. Średnica przy ciśnieniu stanu nieobciążonego jest średnicą in vivo.
UWAGA: Ponowne oszacowanie długości stanu nieobciążonego jest konieczne, ponieważ w miękkich tkankach biologicznych po kondycjonowaniu obserwowano wcześniej niewielkie odkształcenia plastyczne. Ta konfiguracja stanu nieobciążonego będzie wykorzystywana w sekcji 8. - Ultradźwięki: Wykonaj obrazowanie ultradźwiękowe w trybie B przy długości i ciśnieniu stanu nieobciążonego.
- Badanie zależności ciśnienie-średnica: Przy ustawieniu organu na -2% eksperymentalnie wyznaczonej długości in vivo i ciśnieniu 0 mmHg naciśnij Start. Zwiększ ciśnienie od 0 mmHg do ciśnienia maksymalnego i zmniejsz je z powrotem do 0 mmHg. Przetrzymaj krok 2-0 mmHg przez 20 sekund. Po powtórzeniu procesu łącznie 5 razy naciśnij przycisk Stop w interfejsie i zapisz plik.
UWAGA: Powtórz badanie dla eksperymentalnej długości in vivo oraz dla +2% eksperymentalnej długości in vivo. - Badanie zależności siła-długość: Ustaw ciśnienie na wartość nominalną i dostosuj organ do -2% długości in vivo. Rozciągnij organ do +2% długości in vivo i z powrotem do -2% długości in vivo z prędkością 10 µm/s. Po powtórzeniu procesu łącznie 3 razy zapisz dane. Powtórz tę procedurę dla 1/3 ciśnienia maksymalnego, 2/3 ciśnienia maksymalnego oraz przy maksymalnym ciśnieniu.
- Oblicz grubość stanu nieobciążonego z obrazów ultradźwiękowych w trybie B. Używając oprogramowania do obrazowania, narysuj linię wyznaczającą głębokość penetracji. Ustaw skalę zgodnie z długością linii (np. 2000 µm, jak pokazano na Ryc. 6B i 6D).
- Obliczenia grubości ściany: Za pomocą oprogramowania komputerowego obrysuj i zmierz średnicę wewnętrzną i zewnętrzną organu. Następnie narysuj i zmierz linię pomiędzy średnicami. Narysuj łącznie 25 linii transmuralnych. Wyciągnij średnią ze wszystkich punktów danych i powtórz proces łącznie 3 razy.
7. Sprzątanie
- Upewnij się, że ciśnienie wynosi 0 mmHg i urządzenie jest wyłączone. Zamknij główny wlot i wylot w obu zaworach trójdrożnych. Odessaj pozostały płyn z komory urządzenia do kaniulacji.
- Zdejmij narząd ze stolika i napełnij butelkę zbiornika wodą dejonizowaną. Za pomocą strzykawki przepłucz kaniulę wodą. Podłącz dreny w celu pominięcia kaniuli.
- Włącz ciśnienie i przepływ, ustaw ciśnienie wlotowe na 200 mmHg, ciśnienie wylotowe na 0 mmHg, gradient na 10 mmHg/s i pozwól na przepływ przez 5 minut. Pozostaw system włączony przy pustej butelce zbiornika i przepuszczaj powietrze przez 5 minut lub do czasu osuszenia linii.
8. Analiza danych
- W przypadku testu zależności średnicy od ciśnienia, zbierz dane od momentu, w którym ciśnienie zaczyna wzrastać od wartości minimalnej, aż do wartości maksymalnej. W przypadku testu zależności długości od siły, zbierz dane od punktu tuż poniżej maksymalnego szczytu siły, aż do momentu zaprzestania spadku siły.
- Otwórz plik danych dla każdego testu zależności średnicy od ciśnienia i wybierz zakładkę średniego ciśnienia. Przejdź do obszaru obciążania ostatniej krzywej, od 0 mmHg do ciśnienia maksymalnego, i przenieś dane do arkusza kalkulacyjnego. Wybierz ten sam obszar w zakładkach średnicy zewnętrznej, ciśnienia wlotowego, ciśnienia wylotowego, siły, temperatury, pH oraz przepływu, umieszczając każdy element w tym samym dokumencie.
- Otwórz dane dla każdego testu zależności długości od siły. Przejdź do obszaru obciążania krzywej, od -2% do +2%, i przeciągnij dane do arkusza kalkulacyjnego. Wybierz ten sam obszar dla pozostałych mierzonych zmiennych i umieść każdy element w tym samym arkuszu.
- W testach zależności średnicy od ciśnienia oraz długości od siły odejmij UP od wszystkich wartości ciśnienia.
- Uśrednij dane zależności średnicy od ciśnienia co 1 mmHg (np. 0+/- 0,5, 1+/-0,5, 2+/- 0,5).
- Wyznacz objętość nieobciążonego organu (V). Do wyznaczenia V można wykorzystać Równanie 1, przyjmując, że R02 to nieobciążony promień zewnętrzny zmierzony pod mikroskopem, L to nieobciążona długość, a H to nieobciążona grubość wyznaczona za pomocą USG. Wykorzystuje się założenie o nieściśliwości, co oznacza, że organ zachowuje objętość podczas poddawania go deformacjom.
UWAGA: Nieobciążoną długość mierzy się suwmiarką od szwu do szwu. Nieobciążoną średnicę mierzy się za pomocą mikroskopu, kamery i oprogramowania, a następnie oblicza promień (Rysunek 5). Nieobciążoną grubość oblicza się na podstawie obrazów USG (Rysunek 6).
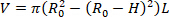 Równanie 1
- Przyjmując założenie o nieściśliwości, wykorzystaj objętość nieobciążoną, zdeformowany promień zewnętrzny (
 ) oraz długość (
 ), aby wyznaczyć zdeformowany promień wewnętrzny
 .
 Równanie 2
- Użyj Równań 3, 4 i 5, aby obliczyć odpowiednio każde z naprężeń. W równaniach 3-5 P definiuje się jako ciśnienie wewnątrzświatłowe, a Ft jako siłę mierzoną przez przetwornik.
 Równanie 3
 Równanie 4
 Równanie 5
- Przedstaw zależność ciśnienie-średnica, zależność siła-ciśnienie, zależność naprężenie obwodowe-rozciągnięcie obwodowe oraz wartości naprężenia osiowego i rozciągnięcia obwodowego (Rysunek 7, Rysunek 8). Wartości rozciągnięcia można obliczyć przy użyciu promienia środkowej części ściany. Obliczenia naprężeń obwodowych i osiowych znajdują się odpowiednio w Równaniach 6 i 7.
 Równanie 6
 Równanie 7
- Oblicz podatność w pobliżu fizjologicznego zakresu ciśnień oraz przy rozciągnięciu in vivo. Dolna granica ciśnienia (LPB) to 1 odchylenie standardowe poniżej średniego zmierzonego ciśnienia. Górna granica ciśnienia (UPB) to 1 odchylenie standardowe powyżej średniego zmierzonego ciśnienia9.
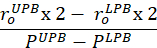
- Oblicz moduły styczne w celu określenia sztywności materiału. Wyznacz obliczone naprężenie obwodowe odpowiadające dolnej i górnej granicy ciśnienia. Dopasuj linię liniową do krzywej naprężenie obwodowe-rozciągnięcie obwodowe w wyznaczonym zakresie naprężeń przy długości in vivo. Oblicz nachylenie linii9.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Pomyślna analiza właściwości mechanicznych żeńskich narządów rozrodczych zależy od odpowiedniej dyssekcji, kaniulacji i testowania narządów. Niezbędne jest wypreparowanie rogów macicy wraz z pochwą bez żadnych uszkodzeń (Rysunek 1). W zależności od rodzaju narządu rozmiar kaniuli będzie się różnić (Rysunek 2). Kaniulacja musi być przeprowadzona w taki sposób, aby narząd nie przemieszczał się podczas eksperymentu, a jednocześnie aby nie uszkodzić jego ściany podczas proce...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Protokół przedstawiony w tym artykule przedstawia metodę określania właściwości mechanicznych mysiej pochwy i szyjki macicy. Właściwości mechaniczne analizowane w tym protokole obejmują zarówno stan tonu biernego, jak i podstawowego narządów. Stany tonu biernego i podstawowego są indukowane przez zmianę środowiska biochemicznego, w którym narząd jest zanurzony. W przypadku tego protokołu pożywki biorące udział w testach podstawowych zawierają wapń. Badanie tonu podstawowego pozwala na wyizolowanie mechanicznego wkładu ko...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Podziękowania
Praca została sfinansowana z grantu NSF CAREER award #1751050.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Cewnik 2F | Cewnik Millar | SPR-320 | do pomiaru ciśnienia szyjki macicy |
| 6-0 Szew | Fine Science Tools | 18020-60 | większe wiązania szwów |
| CaCl2 (bezwodny) | VWR | 97062-590 | HBSS stężenie: 140 mg / ml |
| CaCl2-2H20 | Fischer chemiczny | BDH9224-1KG | br/> Stężenie KRB: 3,68 g/L |
| Dekstroza (D-glukoza) | VWR | 101172-434 | HBSS stężenie: 1000 mg/mL Stężenie KRB: 19,8 g/L |
| Kleszcze Dumont #5/45 | Narzędzia do nauki pięknej | 11251-35 | Kleszcze zakrzywione |
| Dumont SS Narzędzia | do nauki o nauce | 11203-25 | kleszcze proste |
| Mikroskop Eclipse | Nikon | E200 | używany do obrazowania |
| Przepływomierz | Duński MyoTechnologies | 161FM | w aparacie badawczym |
| Przetwornik siły - 110P | Duński przetwornik siły MyoTechnologies | 100079 | |
| ImageJ | SciJava | ImageJ1 | służy do pomiaru objętości |
| Futerały na instrumenty | Fine Science Tools | 20830-00 | Obudowa do mocowania narzędzi preparacyjnych |
| KCl | Fisher Chemical | 97061-566 | Stężenie HBSS: 400 mg/ ml Stężenie KRB: 3,5 g/L |
| KH2PO4 | G-Biosciences | 71003-454 | HBSS stężenie: 60 mg/ ml |
| MgCl2 | VWR | 97064-150 | Stężenie KRB: 1,14 g/L |
| MgCl2-6H2O | VWR | BDH9244-500G | HBSS stężenie: 100 mg/ ml |
| MgSO4-7H20 | VWR | 97062-134 | HBSS stężenie: 48 mg/ ml |
| Mircosoft excel | Program Microsoft | 6278402 | używany do arkusza kalkulacyjnego |
| Na2HPO4 (dwuzasadowy bezwodny) | VWR | 97061-588 | Stężenie HBSS: 48 mg/mL Stężenie KRB: 1,44 g/L |
| NaCl | VWR | 97061-274 | HBSS stężenie: 8000 mg/mL KRB koncentracja: 70,1 g/L |
| NaHCO3 | VWR | 97062-460 | Stężenie HBSS: 350 mg / ml Stężenie KRB: 21,0 g/L |
| Systemy miografów ciśnieniowych | MyoTechnologies | 110P i 120CP | : program , urządzenie do kaniulacji, i jednostka sterująca |
| Przetwornik ciśnienia | Duński przetwornik ciśnienia MyoTechnologies | 100106 | |
| Student Dumont #5 Kleszcze | Narzędzia do nauki o naukach | 91150-20 | kleszcze proste |
| Nożyczki sprężynowe Student Vannas | Narzędzia do nauki o naprawie | 91500-09 | mikronożyczki |
| Barwnik tkankowy | Bradley Products | 1101-3 | Tusz do pomiaru rozciągliwości in vivo |
| Przetwornik ultradźwiękowy | FujiFilm Visual Sonics | LZ-550 | ; 256 elementów, częstotliwość środkowa 40 MHz |
| VEVO2100 | FujiFilm Visual Sonics | VS-20035 | ultradźwięki używane do obrazowania |
| Nożyczki Wagnera | Fine Science Tools | 14069-12 | większe nożyczki |
Bibliografia
- Capone, D., et al. Evaluating Residual Strain Throughout the Murine Female Reproductive System. Journal of Biomechanics. 82, 299-306 (2019).
- Danforth, D. The fibrous nature of the human cervix, and its relation to the isthmic segment in gravid and nongravid uteri. American Journal of Obstetrics and Gynecology. 53 (4), 541-560 (1947).
- Hughesdon, P. The fibromuscular structure of the cervix and its changes during pregnancy and labour. Journal of Obstetrics and Gynecology of the British Commonwealth. 59, 763-776 (1952).
- Bryman, I., Norstrom, A., Lindblo, B. Influence of neurohypophyseal hormones on human cervical smooth muscle cell contractility in vitro. Obstetrics and Gynecology. 75 (2), 240-243 (1990).
- Joy, V., et al. A New Paradigm for the Role of Smooth Muscle Cells in the Human Cervix. Obstetrics. 215 (4), e471-e478 (2016).
- Xu, X., Akgul, Y., Mahendroo, M., Jerschow, A. Ex vivo assessment of mouse cervical remodeling through pregnancy via Na (23) MRS. NMR Biomedical. 23 (23), 907-912 (2014).
- Leppert, P. Anatomy and Physiology of cervical ripening. Clinical Obstetrics and Gynecology. 43 (43), 433-439 (2000).
- Schlembach, D., et al. Cervical ripening and insufficiency: from biochemical and molecular studies to in vivo clinical examination. European Journal of Obstetrics, Gynecology, and Reproductive Biology. 144, S70-S79 (2000).
- Stoka, K., et al. Effects of Increased Arterial Stiffiness on Atherosclerotic Plaque Amounts. Journal of Biomechanical Engineering. 140 (5), (2018).
- Mohram, D., Heller, L. Ch. 7. Cardiovascular Physiology. , The McGraw-Hill Companies. (2006).
- Yoshida, K., et al. Quantitative Evaluation of Collagen Crosslinks and Corresponding Tensile Mechanical Properties in Mouse Cervical Tissue during Normal Pregnancy. PLoS One. 9, e112391(2014).
- Mahendroo, M. Cervical remodeling in term and preterm birth: insight from an animal model. Society for Reproduction and Fertility. 143 (4), 429-438 (2012).
- Elovitz, M., Miranlini, C. Can medroxyprogesterone acetate alter Toll-like receptor expression in a mouse model of intrauterine inflammation? American Journal of Obstetrics and Gynecology. 193 (3), 1149-1155 (2005).
- Ripperda, C., et al. Vaginal estrogen: a dual-edged sword in postoperative healing of the vaginal wall. North American Menopause Society. 24 (7), 838-849 (2017).
- Nelson, J., Felicio, P., Randall, K., Sims, C., Finch, E. A Longitudinal Study of Estrous Cyclicity in Aging C57/6J Mice: Cycle, Frequency, Length, and Vaginal Cytology. Biology of Reproduction. 27 (2), 327-339 (1982).
- Ferruzzi, J., Collins, M., Yeh, A., Humphrey, J. Mechanical assessment of elastin integrity in fibrillin-1-deficient carotid arteries: implications for Marfan Syndrome. Cardiovascular Research. 92 (2), 287-295 (2011).
- Mariko, B., et al. Fribrillin-1 genetic deficiency leads to pathological ageing of arteries in mice. The Journal of Pathology. 224 (1), 33-44 (2011).
- Rahn, D., Ruff, M., Brown, S., Tibbals, H., Word, R. Biomechanical Properties of The Vaginal Wall: Effect of Pregnancy, Elastic Fiber Deficiency, and Pelvic Organ Prolapse. American Urogynecological Society. 198 (5), (2009).
- Caulk, A., Nepiyushchikh, Z., Shaw, R., Dixon, B., Gleason, R. Quantification of the passive and active biaxial mechanical behavior and microstructural organization of rat thoracic ducts. Royal Society Interface. 12 (108), 20150280(2015).
- Amin, M., Le, V., Wagenseil, J. Mechanical Testing of Mouse Carotid Arteries: from Newborn to Adult. Journal of Visualized Experiments. (60), e3733(2012).
- Sokolis, D., Sassani, S., Kritharis, E., Tsangaris, S. Differential histomechanical response of carotid artery in relation to species and region: mathematical description accounting for elastin and collagen anisiotropy. Medical and Biological Engineering and Computing. 49 (8), 867-879 (2011).
- Kim, J., Baek, S. Circumferential variations of the mechanical behavior of the porcine thoracic aorta during the inflation test. Journal of Biomechanics. 44 (10), 1941-1947 (2011).
- Faury, G., et al. Developmental adaptation of the mouse cardiovascular system to elastin haploinsufficency. Journal of Clinical Investigation. 11 (9), 1419-1428 (2003).
- Naito, Y., et al. Beyond Burst Pressure: Initial Evaluation of the Natural History of the Biaxial Mechanical Properties of Tissue-Engineered Vascular Grafts in the Venous Circulation Using a Murine Model. Tissue Engineering. 20, 346-355 (2014).
- Sommer, G., et al. Multaxial mechanical response and constitutive modeling of esophageal tissues: Impact on esophageal tissue engineering. Acta Biomaterialia. 9 (12), 9379-9391 (2013).
- Sokolis, D., Orfanidis, I., Peroulis, M. Biomechanical testing and material characterization for the rat large intestine: regional dependence of material parameters. Physiological Measurement. 32 (12), 1969-1982 (2011).
- Martins, P., et al. Prediction of Nonlinear Elastic Behavior of Vaginal Tissue: Experimental Results and Model Formation. Computational Methods of Biomechanics and Biomedical Engineering. 13 (3), 317-337 (2010).
- Feola, A., et al. Deterioration in Biomechanical Properties of the Vagina Following Implantation of a High-stiffness Prolapse Mesh. BJOG: An International Journal of Obstetrics and Gynaecology. 120 (2), 224-232 (2012).
- Huntington, A., Rizzuto, E., Abramowitch, S., Prete, Z., De Vita, R. Anisotropy of the Passive and Active Rat Vagina Under Biaxial Loading. Annals of Biomedical Engineering. 47, 272-281 (2018).
- Tokar, S., Feola, A., Moalli, P., Abramowitch, S. Characterizing the Biaxial Mechanical Properties of Vaginal Maternal Adaptations During Pregnancy. ASME 2010 Summer Bioengineering Conference, Parts A and B. , 689-690 (2010).
- Feloa, A., et al. Impact of Pregnancy and Vaginal Delivery on the Passive and Active Mechanics of the Rat Vagina. Annals of Biomedical Engineering. 39 (1), 549-558 (2010).
- Baah-Dwomoh, A., Alperin, M., Cook, M., De Vita, R. Mechanical Analysis of the Uterosacral Ligament: Swine vs Human. Annual Biomedical Engineering. 46 (12), 2036-2047 (2018).
- Champlin, A. Determining the Stage of the Estrous Cycle in the Mouse by the Appearance. Biology of Reproduction. 8 (4), 491-494 (1973).
- Byers, S., Wiles, M., Dunn, S., Taft, R. Mouse Estrous Cycle Identification Tool and Images. PLoS One. 7 (4), e35538(2012).
- McLean, A. Performing Vaginal Lavage, Crystal Violet Staining and Vaginal Cytological Evaluation for Mouse Estrous Cycle Staging Identification. Journal of Visualized Experiments. 67, e4389(2012).
- Bugg, G., Riley, M., Johnston, T., Baker, P., Taggart, M. Hypoxic inhibition of human myometrial contractions in vitro: implications for the regulation of parturition. European Journal of Clinical Investigation. 36 (2), 133-140 (2006).
- Taggart, M., Wray, S. Hypoxia and smooth muscle function: key regulatory events during metabolic stress. Journal of Physiology. 509, 315-325 (1998).
- Yoo, K., et al. The effects of volatile anesthetics on spontaneous contractility of isolated human pregnant uterine muscle: a comparison among sevoflurane, desflurane, isoflurane, and halothane. Anesthesia and Analgesia. 103 (2), 443-447 (2006).
- de Souza, L., et al. Effects of redox disturbances on intentional contractile reactivity in rats fed with a hypercaloric diet. Oxidative Medicine and Cellular Longevity. , 6364821(2018).
- Jaue, D., Ma, Z., Lee, S. Cardiac muscarinic receptor function in rats with cirrhotic cardiomyopathy. Hepatology. 25, 1361-1365 (1997).
- Xu, Q., Shaffer, E. The potential site of impaired gallbladder contractility in an animal mode of cholesterol gallstone disease. Gastroenterology. 110 (1), 251-257 (1996).
- Rodriguez, U., et al. Effects of blast induced Neurotrauma on pressurized rodent middle cerebral arteries. Journal of Visualized Experimentals. (146), e58792(2019).
- Rubod, C., Boukerrou, M., Brieu, M., Dubois, P., Cosson, M. Biomechanical Properties of Vaginal Tissue Part 1: New Experimental Protocol. Journal of Urology. 178, 320-325 (2007).
- Robison, K., Conway, C., Desrosiers, L., Knoepp, L., Miller, K. Biaxial Mechanical Assessment of the Murine Vaginal Wall Using Extension-Inflation Testing. Journal of Biomechanical Engineering. 139 (10), 104504(2017).
- Van loon, P. Length-Force and Volume-Pressure Relationships of Arteries. Biorheology. 14 (4), 181-201 (1977).
- Fernandez, M., et al. Investigating the Mechanical Function of the Cervix During Pregnancy using Finite Element Models Derived from High Resolution 3D MRI. Computational Methods Biomechanical and Biomedical Engineering. 19 (4), 404-417 (2015).
- House, M., Socrate, S. The Cervix as a Biomechanical Structure. Ultrasound Obstetric Gynecology. 28 (6), 745-749 (2006).
- Martins, P., et al. Biomechanical Properties of Vaginal Tissue in Women with Pelvic Organ Prolapse. Gynecologic and Obstetrics Investigation. 75, 85-92 (2013).
- Rada, C., Pierce, S., Grotegut, C., England, S. Intrauterine Telemetry to Measure Mouse Contractile Pressure In vivo. Journal of Visualized Experiments. (98), e52541(2015).
- Lumsden, M. A., Baird, D. T. Intra-uterine pressure in dysmenorrhea. Acta Obstectricia at Gynecologica Scandinavica. 64 (2), 183-186 (1985).
- Milsom, I., Andersch, B., Sundell, G. The Effect of Flurbiprofen and Naproxen Sodium On Intra-Uterine Pressure and Menstrual Pain in Patients With Primary Dysmennorrhea. Acta Obstetricia et Gynecologica Scandinavica. 67 (8), 711-716 (1988).
- Park, K., et al. Vasculogenic female sexual dysfunction: the hemodynamic basis for vaginal engorgement insufficiency and clitoral erectile insufficiency. International Journal of Impotence Journal. 9 (1), 27-37 (1997).
- Bulletti, C., et al. Uterine Contractility During Menstrual Cycle. Human Reproduction. 15, 81-89 (2000).
- Kim, N. N., et al. Effects of Ovariectomy and Steroid Hormones on Vaginal Smooth Muscle Contractility. International Journal of Impotence Research. 16, 43-50 (2004).
- Giraldi, A., et al. Morphological and Functional Characterization of a Rat Vaginal Smooth Muscle Sphincter. International Journal of Impotence Research. 14, 271-282 (2002).
- Gleason, R., Gray, S. P., Wilson, E., Humphrey, J. A Multiaxial Computer-Controlled Organ Culture and Biomechanical Device for Mouse Carotid Arteries. Journal of Biomechanical Engineering. 126 (6), 787-795 (2005).
- Swartz, M., Tscumperlin, D., Kamm, R., Drazen, J. Mechanical Stress is Communicated Between Different Cell Types to Elicit Matrix Remodeling. Proceedings of the National Academy of Sciences of the United States of America. 98 (11), 6180-6185 (2001).
- Rachev, A. Remodeling of Arteries in Response to Changes in their Mechanical Environment. Biomechanics of Soft Tissue in Cardiovascular Systems. 441, 221-271 (2003).
- Lee, E. J., Holmes, J., Costa, K. Remodeling of Engineered Tissue Anisotropy in Response to Altered Loading Conditions. Annals of Biomedical Engineering. 36 (8), 1322-1334 (2008).
- Akintunde, A., et al. Effects of Elastase Digestion on the Murine Vaginal Wall Biaxial Mechanical Response. Journal of Biomechanical Engineering. 141 (2), 021011(2018).
- Griffin, M., Premakumar, Y., Seifalian, A., Butler, P., Szarko, M. Biomechanical Characterization of Human Soft Tissues Using Indentation and Tensile Testing. Journal of Visualized Experiments. (118), e54872(2016).
- Myers, K., Socrate, S., Paskaleva, A., House, M. A Study of the Anisotripy and Tension/Compression Behavior of Human Cervical Tissue. Journal of Biomechanical Engineering. 132 (2), 021003(2010).
- Murtada, S., Ferruzzi, J., Yanagisawa, H., Humphrey, J. Reduced Biaxial Contractility in the Descending Thoracic Aorta of Fibulin-5 Deficent Mice. Journal of Biomechanical Engineering. 138 (5), 051008(2016).
- Berkley, K., McAllister, S., Accius, B., Winnard, K. Endometriosis-induced vaginal hyperalgesia in the rat: effect of estropause, ovariectomy, and estradiol replacement. Pain. 132, s150-s159 (2007).
- van der Walt, I., Bø, K., Hanekom, S., Rienhardt, G. Ethnic Differences in pelvic floor muscle strength and endurance in South African women. International Urogynecology Journal. 25 (6), 799-805 (2014).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
