Ponieważ organizmy beztlenowe nie są w stanie rosnąć po ekspozycji na tlen, niezbędne jest stosowanie technik hodowli beztlenowej. W tym miejscu demonstrujemy prostą i skuteczną metodę uprawy mieszanej kultury pochodzącej z biogazowni, od przygotowania pożywki do ilościowego oznaczania gazu i lotnych kwasów tłuszczowych.
Artykuł metodologiczny
Pożywka Preparat do hodowli mikroorganizmów w warunkach ściśle beztlenowych/beztlenowych
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
W przeciwieństwie do organizmów tlenowych, mikroorganizmy czysto beztlenowe wymagają braku tlenu i zazwyczaj niskiego potencjału redoks do zainicjowania wzrostu. Ponieważ tlen jest wszechobecny w powietrzu, utrzymanie warunków wolnych odO2 na wszystkich etapach uprawy jest trudne, ale jest warunkiem wstępnym hodowli beztlenowej. Przedstawiony tutaj protokół pokazuje udaną uprawę beztlenowej kultury mieszanej pochodzącej z biogazowni przy użyciu prostej i niedrogiej metody. Podano dokładny opis całego procesu hodowli beztlenkowej, w tym przygotowanie pożywki, napełnianie kolb hodowlanych, suplementację wskaźnikiem redoks i środkami redukującymi w celu zapewnienia niskich potencjałów redoks, a także wymianę przestrzeni nad podłożem w celu utrzymania pożywki wolnej od tlenu. Ponadto przedstawiono szczegółowy przegląd aseptycznego zaszczepiania gazoszczelnych kolb surowicy (przy użyciu sterylnych strzykawek i igieł) oraz odpowiednich warunków inkubacji. Niniejszy protokół dodatkowo omawia pobieranie próbek gazów i cieczy w celu przeprowadzenia późniejszych analiz dotyczących składu gazu i stężeń lotnych kwasów tłuszczowych przy użyciu odpowiednio chromatografii gazowej (GC) i wysokosprawnej chromatografii cieczowej (HPLC) oraz obliczania uzysku biogazu i metanu z uwzględnieniem prawa gazu doskonałego.
Wprowadzenie
Na Ziemi tlen cząsteczkowy w znaczących stężeniach jest dostępny w obszarach mających bezpośredni kontakt z atmosferą lub w obecności tlenowych fototrofów. Środowiska, w których nie ma tlenu, nazywane są beztlenowcami. Jednak konwersja energii jest nadal możliwa w warunkach beztlenowych poprzez dwa różne procesy metaboliczne, fermentację i oddychanie beztlenowe1.
Podczas gdy organizmy poddawane oddychaniu tlenowemu używają tlenu jako końcowego akceptora elektronów, oddychanie beztlenowe wymaga alternatywnych akceptorów elektronów, takich jak azotany lub siarczany2. W tak zwanej "wieży elektronowej" pary redoks są zorganizowane zgodnie z ich potencjałem redoks, przy czym najbardziej ujemne znajdują się na górze (donory elektronów), a najsilniejsze czynniki utleniające o dodatnim potencjale redoks na dole (akceptory elektronów). Transfer elektronów między donorami i akceptorami prowadzi do zachowania energii poprzez tak zwany łańcuch oddechowy, a elektrony mogą być wychwytywane przez akceptory elektronów - aby pozostać w obrazie - na różnych piętrach wieży. W związku z tym, im większy spadek elektronów przez wieżę elektronową, tym więcej energii można zachować w danej reakcji. Dlatego oddychanie jest również możliwe w siedliskach beztlenowych, na przykład z parami redoks, w tym NO3-/NO2-, kwas fumarowy/kwas bursztynowy, SO32-/H2S, S°/H2S, Mn(IV)/Mn(II), Fe(III)/Fe(II)2,3. Po pierwsze, uzyskana energia jest zachowywana jako potencjał błonowy, który jest następnie wykorzystywany przez fosforylację transportu elektronów do syntezy adenozyno-trifosforanu (ATP) przez syntazy ATP związanych z błoną. W przeciwieństwie do oddychania tlenowego, ilość energii, którą można zachować dzięki oddychaniu beztlenowemu, może zostać radykalnie zmniejszona; Jednak wydajność energetyczna większości oddychania beztlenowego jest nadal wyższa w porównaniu z fermentacją, beztlenową ścieżką oszczędzania energii w siedliskach pozbawionych tlenu i innych końcowych akceptorów elektronów2.
Podczas fermentacji, bogate w energię, organiczne substraty są rozkładane na różne produkty fermentacji, które często definiują nazwę całego procesu, na przykład fermentacja alkoholowa. W przeciwieństwie do procesów oddychania, wytwarzanie ATP podczas fermentacji jest ograniczone do fosforylacji na poziomie substratu, podczas której grupa fosforanowa jest przenoszona do difosforanu adenozyny (ADP) z bogatego w energię fosforylowanego substratu2. Mikroorganizmy fermentujące odgrywają kluczową rolę w beztlenowej degradacji materii organicznej, ponieważ odgrywają kluczową rolę w rozkładzie substratu. Pierwotne produkty fermentacji, takie jak kwasy organiczne, alkohole, CO2 iH2, mogą być następnie wykorzystywane przez wtórne mikroorganizmy fermentacyjne do produkcji kwasu octowego, CO2 iH2. Przykłady produktów fermentacji obejmują kwas mlekowy, różne lotne kwasy tłuszczowe (kwas mrówkowy, octowy, propionowy, masłowy i walerianowy), n-butanol, 2,3-butandiol, aceton i etanol.
Hodowla mikroorganizmów w warunkach czysto beztlenowych wymaga zupełnie innych metod i sprzętu w porównaniu z hodowlą organizmów tlenowych. Podczas gdy organizmy tolerancyjne na tlen są często hodowane na szalkach agarowych, tak zwanych kulturach powierzchniowych, jest to - z kilkoma wyjątkami - prawie niemożliwe w przypadku mikroorganizmów ściśle beztlenowych. W związku z tym wzbogacanie mikroorganizmów ściśle beztlenowych odbywa się głównie w pożywkach płynnych przy użyciu naczyń hodowlanych uszczelnionych gazoszczelnymi przegrodami, które zapewniają atmosferę wolnej od tlenu4,6,7.
Obecny opis protokołu zapewni odpowiednie metody uprawy dla docelowych mikroorganizmów z mieszanej populacji pochodzącej z beztlenowej biogazowni. Izolacja i kultywacja czystych kultur jest jeszcze większym wyzwaniem, ale nie jest częścią tej pracy.
Tutaj pokazujemy procedurę hodowli beztlenowej społeczności mikrobiologicznej na podstawie badania dotyczącego tworzenia się kwasów fenylowych podczas beztlenowej fermentacji substratów białkowych8. Społeczność mikrobiologiczna składała się z członków ze wszystkich czterech faz fermentacji beztlenowej: hydrolizy, kwasogenezy, acetogenezy i metanogenezy. Zastosowano pożywkę z solą mineralną uzupełnioną źródłem węgla, wskaźnikiem redoks, roztworem witamin i pierwiastków śladowych oraz środkiem redukującym9. Pożywka została zmodyfikowana odpowiednimi białkowymi substratami prekursorowymi kwasu fenylowego8.
Protokół
1. Przygotowanie pożywki
- Przygotować roztwór zapasowy wskaźnika redoks (0,1 g rezauryny/100 mL roztworu wodnego).
- Przygotować roztwór witamin (Tabela 1).
- Przygotować roztwór pierwiastków śladowych (Tabela 2).
UWAGA: Kolejność dodawania jest istotna; należy zapoznać się z Tabelą 2 oraz odpowiednimi protokołami. - Przygotować roztwór zapasowy środka redukującego (60 g Na2S/L roztworu wodnego).
- Odważyć składniki pożywki (mineralna pożywka solna, Tabela 3) do odpowiedniej kolby (np. kolby laboratoryjnej o pojemności 1 L z nakrętką).
UWAGA: W zależności od konfiguracji eksperymentalnej konieczne może być dodanie oddzielnego źródła węgla. - Dodać połowę objętości wody destylowanej (Tabela 3) i rozpuścić składniki.
- Dodać 1 mL roztworu wskaźnika redoks zgodnie z Tabelą 3.
- Dodać roztwór witamin i pierwiastków śladowych zgodnie z Tabelą 3.
- Dostosować pH zgodnie z wymaganiami pożywki/organizmu określonymi w Tabeli 3.
UWAGA: Kolor wskaźnika redoks zależy od pH i jego dostosowanie może zająć pewien czas. - Dopełnić do końcowej objętości 1 L wodą destylowaną.
UWAGA: Roztwory witamin i pierwiastków śladowych można również dodać po autoklawowaniu, wprowadzając aseptycznie przefiltrowaną alikwot (roztwory rozcieńczone, wielkość porów filtra < 0,2 µm) do wcześniej zamkniętych i autoklawowanych kolb z serum. Podejście to wiąże się jednak z podwyższonym ryzykiem kontaminacji.
2. Napełnianie kolb hodowlanych
- Dokładnie oczyścić i wysuszyć kolby do surowic o pojemności 120 mL.
UWAGA: Kolby do surowic są dostępne w różnych pojemnościach (np. 20, 60, 120, 250 mL). - Dokładnie oczyścić i wysuszyć butylowe septa gumowe.
- Odważyć dodatkowe składniki pożywki (np. substraty prekursorów kwasu fenylowego) bezpośrednio do kolb hodowlanych.
UWAGA: Dodatkowe składniki zależą od ustawienia eksperymentalnego i postawionej hipotezy. - Napełnić kolby do surowic 50 mL pożywki.
3. Redukcja/usuwanie tlenu w fazie ciekłej
- Przygotować kąpiel wodną o temperaturze ok. 10° C.
- Umieścić napełnione kolby z serum w kąpieli wodnej i inkubować przez ok. 20-30 min, aby zmniejszyć rozpuszczalność O2 w fazie ciekłej.
- Natychmiast przepłukać przestrzeń nad cieczą gazem N2 lub alternatywnie innym gazem lub mieszaninami gazów, takimi jak N2/CO2.
OSTRZEŻENIE: Należy zadbać o odpowiednią wentylację pomieszczenia. - Zamknąć kolby septami z gumy butylowej i zabezpieczyć nakrętkami aluminiowymi.
UWAGA: Septy gumowe mogą lepiej przylegać do szyjki kolby po dodaniu kropli wody/pożywki podczas ich wkładania. - Do każdej kolby wypełnionej 50 mL pożywki dodać 0,1 mL środka redukującego (roztworu zapasu), aby dodatkowo obniżyć potencjał redoks (0,1 mL środka redukującego na 50 mL pożywki).
- Autoklawować przez 20 min w temperaturze 121 °C.
OSTRZEŻENIE: Należy użyć autoklawu certyfikowanego do sterylizacji zamkniętych naczyń. W przeciwnym razie nadciśnienie wynikające ze wzrostu temperatury może spowodować eksplozję kolb z serum.
4. Inokulacja medium
- Przygotowanie szczepionki z komory fermentacyjnej.
- Wlać 40 mL wody destylowanej do kolby i doprowadzić do wrzenia.
- Schłodzić wodę (< 30 °C), stale płukząc przestrzeń nad cieczą azotem N2.
- Dodać ok. 10 g osadu pochodzącego z komory fermentacyjnej.
UWAGA: Należy unikać nadmiernego kontaktu osadu z tlenem. - Zanotować dokładną masę dodanego osadu w celu precyzyjnego określenia stopnia rozcieńczenia.
- Wypełnić przestrzeń nad cieczą w kolbie azotem N2 i zamknąć ją za pomocą butylowej septy gumowej.
- Mieszać zawartość kolby przez 30 min przy 120 rpm.
- Pobrać 5 mL szczepionki za pomocą strzykawki z kaniulą i wstrzyknąć do przygotowanych kolb serum, zgodnie z opisem w krokach 1-3.
5. Inkubacja, pobieranie próbek i analiza
- Inkubować zaszczepione kolby z surowicą w temperaturze odpowiedniej dla danego eksperymentu.
UWAGA: Temperatura inkubacji zależy od układu eksperymentalnego i użytego inokulum.- Odprowadzić nadciśnienie powstałe w wyniku wzrostu temperatury za pomocą strzykawki i kaniuli, gdy ciecz w kolbach z surowicą wyrówna temperaturę do temperatury inkubacji (około 15–30 min, w zależności od temperatury inkubacji).
OSTROŻNIE: W zależności od zastosowanego podłoża, jego stężenia, temperatury, czasu inkubacji, rodzaju i stężenia inokulum, nadciśnienie w kolbach może wzrosnąć do > ciśnienie 2 bar, co może spowodować rozsadzenie kolb z surowicą. Dlatego konieczne jest monitorowanie nadciśnienia za pomocą manometru i następujące po tym odprowadzanie nadmiaru ciśnienia za pomocą kaniuli.
- Odprowadzić nadciśnienie powstałe w wyniku wzrostu temperatury za pomocą strzykawki i kaniuli, gdy ciecz w kolbach z surowicą wyrówna temperaturę do temperatury inkubacji (około 15–30 min, w zależności od temperatury inkubacji).
- Oceń produkcję i skład biogazu w czasie inkubacji.
UWAGA: Okres inkubacji może trwać od kilku dni do kilku tygodni.- Zarejestruj aktualne ciśnienie atmosferyczne.
- Przygotuj manometr i oceń ciśnienie w kolbach wynikające z aktywności drobnoustrojów.
- Wstrząsnąć kolbami.
- Usuń 1 ml gazu z przestrzeni nad próbką za pomocą strzykawki z kaniulą, a następnie zmierz H2, O2, CH4, i/lub CO2 stężenia za pomocą chromatografii gazowej.
UWAGA: W celu kwalifikacji i kwantyfikacji H2, O2, CH4, oraz CO2, do analizy wykorzystano chromatograf gazowy, stosując temperatury pracy wynoszące 160 °C (piec kolumnowy), 100 °C (mikrostrzykawka), oraz 180 °C (detektor przewodności cieplnej, TCD). N2 zastosowano jako gaz nośny. Szczegółowe informacje znajdują się w poprzednich badaniach10.
- Monitoruj stężenia lotnych nienasyconych kwasów tłuszczowych (VFA) oraz kwasów fenylowych. Do analizy VFA i kwasów fenylowych należy użyć systemu HPLC wyposażonego w detektor UV (przy 20 nm) pracującego z 5 mM H2SO4 jako fazy ruchomej. W celu zapoznania się ze szczegółami metody oraz dodatkowymi informacjami na temat przechowywania próbek prosimy o odniesienie się do poprzednich badań11.
UWAGA: Analiza VFA jest reprezentatywna dla wielu innych analiz fizykochemicznych lub ocen mikroskopowych. Ponadto, w ramach opisanego postępowania można zastosować metody biologii molekularnej ukierunkowane na oznaczenie liczebności określonych mikroorganizmów i/lub składu społeczności drobnoustrojów w danym punkcie eksperymentu.- Pobrać 1 ml cieczy za pomocą strzykawki z kaniulą.
UWAGA: Próbki można zamrozić (-20 °C) niezwłocznie po pobraniu i przeanalizowano na koniec eksperymentu11. - Wirować przy 15 0–20 00 x g g i przepuścić przez 0.2 µm filtry RC (z regenerowanej celulozy).
- Wstrzyknij 5-20 µL do systemu HPLC, a następnie przeanalizować w celu oznaczenia składu VFA oraz stężenia kwasów fenolowych.
- Pobrać 1 ml cieczy za pomocą strzykawki z kaniulą.
- Odpowietrz nadciśnienie z kolby za pomocą kanuli.
UWAGA: Po określeniu ciśnienia i składu gazów, a także pobraniu niezbędnej próbki, należy umieścić kolbę hodowlaną z powrotem w odpowiedniej temperaturze i nie spuszczać nadciśnienia, dopóki ciecz nie osiągnie temperatury inkubacji. - Obliczanie produkcji biogazu i metanu VCH4N biorąc pod uwagę prawo gazów doskonałych zgodnie z równaniem 1-3. Prosimy również o odniesienie się do Tabela 4.
Równanie 1: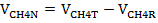
przez co
Równanie 2: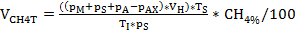
i
Równanie 3: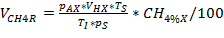
UWAGA: Do obliczenia całkowitej produkcji biogazu wykorzystano ilość CH4% oraz CH4%X w równaniach 2 i 3 należy ustawić na 10. NmL: znormalizowana objętość gazu w warunkach standardowych (0 °C, 1 atm), przy którym molowa objętość gazu wynosi 2,414 NmL/mmol.
Wyniki
Kolby hodowlane napełniono pożywką w warunkach beztlenowych zgodnie z opisanym powyżej protokołem, sprawdzono, czy mają odpowiedni kolor (Rysunek 1), a następnie wykorzystano je jako miniaturowe bioreaktory okresowe do prowadzenia fermentacji metanowej. Uzupełniono je substratami mogącymi powodować powstawanie kwasów fenylowych i inkubowano, wykorzystując osad z komory fermentacyjnej jako inokulum (Rysunek 2>). Tryptofan, tyrozynę i fenyloalaninę, a także złożone prekursory białkowe w postaci ekstraktu mięsnego i kazeiny, zastosowano odpowiednio w dwóch i trzech różnych stężeniach. Próby kontrolne przygotowano bez dodatkowej suplementacji substratem. Różne stężenia substratów miały na celu symulację różnych etapów przeciążenia reaktora. Kolby inkubowano w temperaturze 37 °C (warunki mezofilne) przez 4 tygodnie.
Produkcję i skład biogazu (H2, CH4, CO2) monitorowano regularnie za pomocą chromatografii gazowej (GC TCD)10 oraz poprzez ocenę ciśnienia w przestrzeni nad cieczą. Rysunek 3 przedstawia różnice w skumulowanej produkcji metanu pochodzącej z trawienia zastosowanych substratów w różnych stężeniach podczas 4 tygodni inkubacji beztlenowej. Ponadto metanogeny wizualizowano poprzez naświetlanie koenzymu F420, przenośnika elektronów w metanogenezie, który wykazuje niebiesko-zieloną fluorescencję z maksimum absorpcji przy 420 nm (Rysunek 4).
Równolegle z analizą gazów pobierano próbki do pomiaru stężenia VFA oraz kwasów fenylowych za pomocą HPLC1, które przechowywano w zamrożeniu do czasu dalszej obróbki. Rysunek 5 przedstawia wpływ różnych etapów przeciążenia, odzwierciedlony poprzez akumulację w próbkach silnie przeciążonych, zobrazowany na przykładzie octanu. Rysunek 6 przedstawia dynamikę stężeń octanu fenylowego w okresie inkubacji.
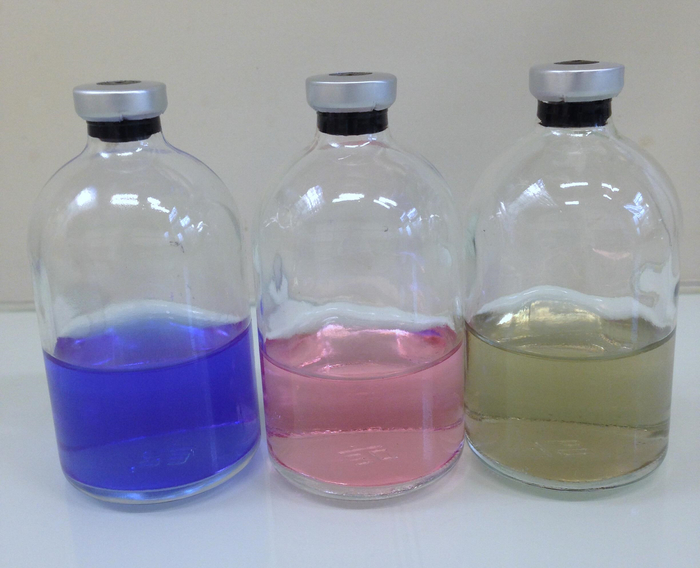
Rysunek 1: Wskaźnik redoks. Odpowiedni potencjał redoks w kolbach hodowlanych można kontrolować poprzez dodanie wskaźnika redoks. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
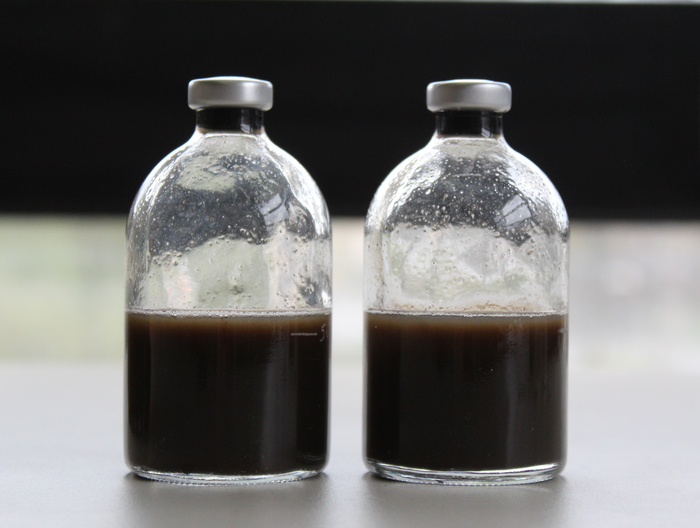
Rysunek 2: Miniaturowe bioreaktory okresowe. Miniaturowe bioreaktory okresowe przygotowane w kolbach hodowlanych o pojemności 120 ml do eksperymentów z fermentacją beztlenową. Kolby napełniono pożywką i zaszczepiono rozcieńczonym osadem z komory fermentacyjnej. Reaktory szczelnie zamknięto za pomocą korków z gumy butylowej i aluminiowych kapturków. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
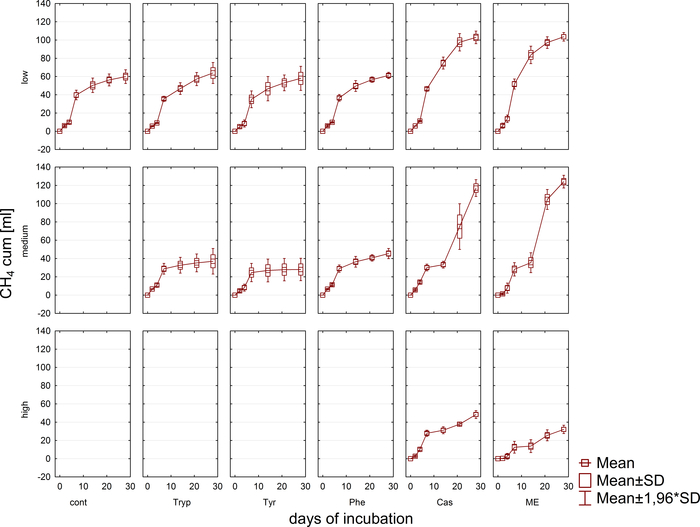
Rysunek 3: Produkcja metanu. Kumulatywna produkcja metanu podczas 28 dni inkubacji mezofilowej w reaktorach odzwierciedlających różne warunki przeciążenia (niskie, średnie, wysokie). Cont: kontrola; Tryp: tryptofan; Tyr: tyrozyna; Phe: fenyloalanina; ME: ekstrakt mięsny; Cas: kazeina. Jest to zmodyfikowana figura pochodząca z wcześniejszej badania8. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
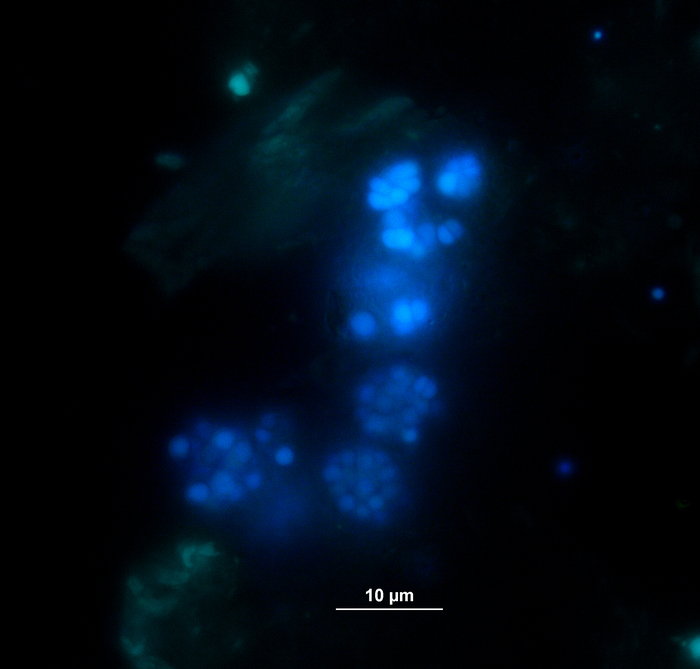
Rysunek 4: Fluorescencyjne metanogeny. Metanogeny emitują błękitne światło po pobudzeniu światłem UV. W tym przypadku metanogeny są przytwierdzone do cząstek roślinnych (jasnozielone). Próbki pobrano z reaktora okresowego, rozcieńczono do analizy mikroskopowej i poddano natychmiastowej analizie. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
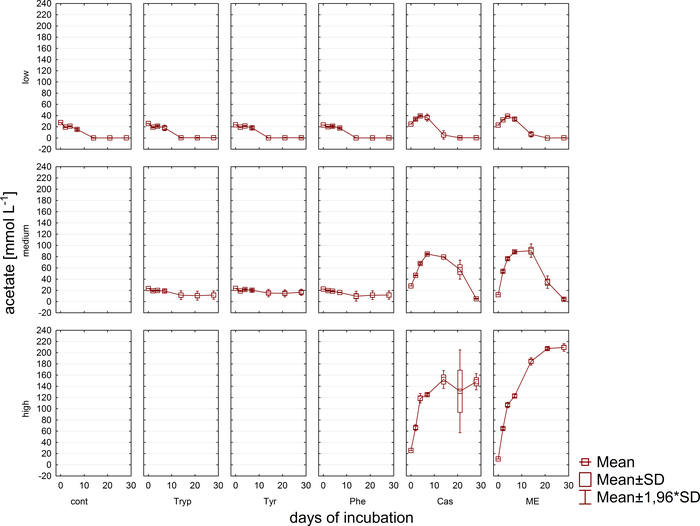
Rysunek 5: Stężenie octanu. Stężenie octanów podczas 28 dni inkubacji mezofilnej w reaktorach odzwierciedlających różne warunki przeciążenia (niskie, średnie, wysokie). Cont: kontrola; Tryp: tryptofan; Tyr: tyrozyna; Phe: fenyloalanina; ME: ekstrakt mięsny; Cas: kazeina. Jest to zmodyfikowany rysunek pochodzący z wcześniejszego badania.8. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej figury.
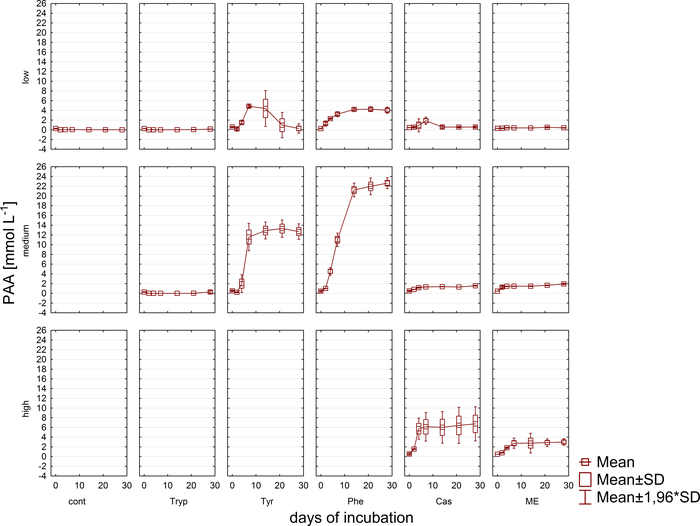
Rysunek 6: Stężenie fenylooctanu. Stężenie fenyloacetanu podczas 28 dni inkubacji mezofilnej w reaktorach odzwierciedlających różne warunki przeciążenia (niskie, średnie, wysokie). Cont: kontrola; Tryp: tryptofan; Tyr: tyrozyna; Phe: fenyloalanina; ME: ekstrakt mięsny; Cas: kazeina. Jest to zmodyfikowany rysunek pochodzący z wcześniejszej analizy.8. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 7: Reakcja z rezauryną. Niebieska rezazuryna ulega nieodwracalnej redukcji do rezorufiny (różowej), a następnie dalszej odwracalnej redukcji do bezbarwnej dihydrorezorufiny, zgodnie z opisem Uzarskiego i wsp.12. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
| Cyjanokobalamina | 0,050 g |
| kwas 4-aminobenzoesowy | 0,050 g |
| D-biotyna | 0,010 g |
| Kwas nikotynowy | 0,100 g |
| Pyridoksyna | 0,250 g |
| Kwas D-pantotenowy | 0,025 g |
| Chlorek tiaminy HCl | 0,18 g |
| Woda destylowana | 10 ml |
Tabela 1: Roztwór witamin.
| 25% (w/v) HCl | 10.0 mL |
| FeCl2 x 4 H2O | 1.50 g |
| ZnCl2 | 0.070 g |
| MnCl2 x 4 H2O | 0.10 g |
| H3BO3 | 0.06 g |
| CoCl2 x 6 H2O | 0.190 g |
| CuCl2 x 2 H2O | 0.002 g |
| NiCl2 x 6 H2O | 0.024 g |
| Na2MoO4 x 2 H2O | 0.036 g |
| Woda destylowana | 90.0 mL |
| Zalecenia dotyczące przygotowania | Dodać HCl i rozpuścić FeCl2, dodać 10 mL wody destylowanej, rozpuścić pozostałe składniki i dopełnić objętość do 10 mL. |
Tabela 2: Roztwór mikroelementów.
| NaCl | 1,0 g |
| MgCl22 x 6 H2O | 0,4 g |
| KH2PO4 | 0,2 g |
| KCl | 0,5 g |
| CaCl22 x 2 H2O | 0,15 g |
| L-cysteina | 0,5 g |
| Ekstrakt z drożdży | 1,0 g |
| Roztwór rezauryny | 1 ml |
| Roztwór witaminowy | 1 ml |
| Roztwór mikroelementów | 1 ml |
| Woda destylowana | 10 ml |
| pH | 7.2 |
Tabela 3: Minimalna pożywka solna.
| Zmienna | Jednostka | Opis |
| tY | [d] | Punkt czasowy pomiaru |
| TX | [d] | Punkt czasowy poprzedniego pomiaru |
| pM | [mbar] | Zmierzony nadciśnienie w czasie tY |
| pA | [mbar] | Ciśnienie otoczenia w czasie tY |
| pAX | [mbar] | Ciśnienie otoczenia w czasie tX |
| pS | [mbar] | Ciśnienie standardowe, 1013,25 mbar zgodnie z DIN 1343 |
| TI | [K] | Temperatura inkubacji |
| TS | [K] | Temperatura standardowa, 273,15 K (odpowiada 0° C) wg DIN 1343 |
| VH | [ml] | Objętość przestrzeni nad cieczą w czasie tY |
| VHX | [ml] | Objętość przestrzeni nad próbką w czasie tX |
| CH4% | [% obj.] | Stężenie metanu na podstawie pomiaru GC w czasie tY |
| Węgiel i wodór (lub grupa CH)4%X | [% obj.] | Stężenie metanu wyznaczone za pomocą pomiaru GC w czasie tX |
| VCH4T | [Nml] | Całkowita ilość metanu w butelce z surowicą w czasie tY |
| VCH4R | [Nml] | Ilość resztkowa metanu w przestrzeni nad próbką w czasie tX |
| VCH4N | [Nml] | Nowo wytworzony metan z tX do tY |
Tabela 4: Opis zmiennych w Równaniach 1-3.
Dyskusja
Najważniejszym i krytycznym etapem hodowli mikroorganizmów beztlenowych jest zapewnienie warunków beztlenowych w podłożach uprawowych i przestrzeni nad kolbami. Wskaźnik, taki jak rezazuryna, może być używany do pośredniego sprawdzania prawidłowego beztlenowego napełniania kolb. Rezazuryna jest powszechnie stosowanym barwnikiem redoks, ponieważ jest niedroga, nietoksyczna i już skuteczna w niskich dawkach i krótkich czasach inkubacji 12. Po włączeniu do pożywki niebieska rezazuryna najpierw przechodzi nieodwracalny etap redukcji do rezorufy, która jest różowa przy neutralnych wartościach pH. Ta pierwsza reakcja może wystąpić, gdy media są podgrzewane 13. Następnie rezorufina jest redukowana do bezbarwnej dihydrorezorufiny w odwracalnej reakcji wtórnej (ryc. 7)12. Układ redoks rezorufin/dihydrorezorufina staje się całkowicie bezbarwny przy standardowym potencjale utleniająco-redukcyjnym około Eh = -110 mV i zmienia kolor na różowy powyżej potencjału redoks -51 mV 13.
W celu dalszego zmniejszenia potencjału redoks, na przykład w celu ułatwienia wzrostu mikroorganizmów metanogennych, o których wiadomo, że wymagają mniej niż -200 mV14, można dodać roztwór Na2S. Alternatywnie powszechnie stosuje się cysteinę-HCl, tioglikolan sodu lub ditionian sodu. Jednak to, który środek redukujący jest odpowiedni do zastosowania, zależy od odpowiedniej konfiguracji eksperymentalnej i może wymagać szczególnej uwagi. Na przykład tioglikolan sodu wymaga aktywacji temperaturowej (np. przez autoklawowanie).
Dobrze zbilansowane konsorcjum mikrobiologiczne, składające się z różnych rodzajów bakterii i archeonów, oraz wydajnie działająca kaskada degradacji beztlenowej mogą być dalej oceniane poprzez określenie składu gazu w przestrzeni nadbrzeżnej w kolbach hodowlanych za pomocą chromatografii gazowej. W przypadku pracy ze związkami takimi jak kwasy fenylowe pochodzące z różnych prekursorów, ocena przestrzeni nad roztworem jest szybkim sposobem sprawdzenia procesu metanogenezy8. Stężenie CH4 w przestrzeni nad powierzchnią ok. 50-60% w kontrolach pod koniec okresu inkubacji wskazuje na pomyślne wykorzystanie zastosowanych składników odżywczych, a tym samym mineralizację materiału organicznego w warunkach beztlenowych. Teoretyczną produkcję metanu i przewidywane stężenia metanu podczas procesu mineralizacji można wyznaczyć ex ante zgodnie z równaniem Buswella-Boyle'a po elementarnej analizie substratu lub poprzez oszacowanie zawartości węglowodanów, białek i tłuszczów w podłożu. Zgodnie z VDI 4630 15 węglowodany mogą prowadzić do teoretycznej produkcji biogazu na poziomie 750 l kg-1 VSS (50% CH4 i 50% CO2 ), białka do 800 L kg-1 VSS (72% CH4 i 28 % CO2), a tłuszcze do 1 390 L kg-1 VSS (60% CH4 i 40% CO2 ).
Ponadto monitorowano powstawanie i ewentualną późniejszą degradację LKT i fenylowo-kwasów. Proces degradacji można ocenić, analizując stężenia LKT (np. octanu, propionianu) w różnych punktach czasowych. Nagromadzenie krótkołańcuchowych kwasów tłuszczowych, takich jak octan i/lub propionian, może wskazywać na zaburzenia w składzie zbiorowiska metanogennego i ogólne przeciążenie reaktora. Jednak dobrze zrównoważona kaskada degradacji mikrobiologicznej może poradzić sobie nawet z bardzo wysokimi stężeniami LKT i octanu9. Poza tym stosunek octanu do propionianu może dostarczyć dalszych informacji na temat ogólnego stanu reaktora16. Istnieje jednak wiele parametrów odpowiednich do monitorowania procesu, które należy dobrać zgodnie z zaproponowanymi hipotezami eksperymentalnymi. W niniejszym przykładzie zmiennymi docelowymi były stężenia kwasu fenylowego (ryc. 6).
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
To badanie zostało sfinansowane przez Austriacki Fundusz Naukowy (FWF): numery projektów P 29360 i P 29143. Publikacja była wspierana przez Publikationsfonds der Universität Innsbruck. Wielkie uznanie dla EIG.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| kolby hodowlane (120 mL, N20) | Ochs, Niemcy | 102046 | |
| buty gumowe septy (N20) | Ochs, Niemcy | 102049 | |
| kapsle aluminiowe (N20) | Ochs, Niemcy | 102050 | |
| N2 gaz | Messer, Austria | czystość 5.0 | |
| strzykawki + kaniule | różne | ||
| zaciskarki | Ochs, Niemcy | ||
| odtłuszczanie | Ochs, Niemcy | 102052 | |
| GC2010 | Shimadzu | ||
| Shin-carbon GC | kolumna Restek | chromatograficzna separacja H2, O2, CH4 i CO2 | |
| HPLC Promencja | Shimadzu | ||
| Fast Fruit Kolumna HPLC | Fenomenex | chromatograficzna separacja VFA, fenylowych kwasów, itd. |
Bibliografia
- Wiebe, W. J., et al. Anaerobic Respiration and Fermentation. The Ecology of a Salt Marsh. Pomeroy, L. R., Wiegert, R. G. , Springer New York. New York, NY. 137-159 (1981).
- Kim, B. H., Gadd, G. M. Anaerobic fermentation. Bacterial physiology and metabolism. Kim, B. H., Gadd, G. M. , Cambridge University Press. Cambridge. 252-297 (2008).
- Stolz, J. F., Oremland, R. S. Bacterial respiration of arsenic and selenium). FEMS Microbiology Reviews. 23 (5), 615-627 (1999).
- Lackner, N., Hintersonnleitner, A., Wagner, A. O., Illmer, P. Hydrogenotrophic Methanogenesis and Autotrophic Growth of Methanosarcina thermophila. Archaea. 2018 (5), 1-7 (2018).
- Mutschlechner, M., Praeg, N., Illmer, P. The ecological importance of grazing to methane fluxes and engaged microbial communities in alpine forest soils. FEMS Microbiology Ecology. , (2018).
- Prem, E. M., Reitschuler, C., Illmer, P. Livestock grazing on alpine soils causes changes in abiotic and biotic soil properties and thus in abundance and activity of microorganisms engaged in the methane cycle. European Journal of Soil Biology. 62, 22-29 (2014).
- Praeg, N., Wagner, A. O., Illmer, P. Effects of fertilisation, temperature and water content on microbial properties and methane production and methane oxidation in subalpine soils. European Journal of Soil Biology. 65, 96-106 (2014).
- Wagner, A. O., Prem, E. M., Markt, R., Kaufmann, R., Illmer, P. Formation of phenylacetic acid and phenylpropionic acid under different overload conditions during mesophilic and thermophilic anaerobic digestion. Biotechnology for Biofuels. 12 (1), 359(2019).
- Lins, P., Malin, C., Wagner, A. O., Illmer, P. Reduction of accumulated volatile fatty acids by an acetate-degrading enrichment culture. FEMS Microbiology Ecology. 71 (3), 469-478 (2010).
- Wagner, A. O., Hohlbrugger, P., Lins, P., Illmer, P. Effects of different nitrogen sources on the biogas production - a lab-scale investigation. Microbiological research. 167 (10), 630-636 (2012).
- Wagner, A. O., et al. Sample preparation, preservation, and storage for volatile fatty acid quantification in biogas plants. Engineering in Life Sciences. 17 (2), 132-139 (2017).
- Uzarski, J. S., DiVito, M. D., Wertheim, J. A., Miller, W. M. Essential design considerations for the resazurin reduction assay to noninvasively quantify cell expansion within perfused extracellular matrix scaffolds. Biomaterials. 129, 163-175 (2017).
- Costilow, R. N., Breznak, J. A., et al. Physicochemical Factors in Growth. Methods for General and Molecular Microbiology. Marzluf, G. A. , Third Edition, 309-329 (2007).
- Le Mer, J., Roger, P. Production, oxidation, emission and consumption of methane by soils: a review. European Journal of Soil Biology. 37 (1), 25-50 (2001).
- Verein deutscher Ingenieure VDI 4630: Fermentation of organic material. VDI Richtlinien. , (2006).
- Wagner, A. O., Reitschuler, C., Illmer, P. Effect of different acetate: Propionate ratios on the methanogenic community during thermophilic anaerobic digestion in batch experiments. Biochemical Engineering Journal. 90, 154-161 (2014).
Przedruki i uprawnienia
