Ten protokół przedstawia tworzenie modelu myszy do badania interakcji Malassezia-gospodarz w skórze. Opisuje hodowlę Malassezia in vitro, zakażenie mysiej skóry Malassezia oraz późniejszą analizę stanu zapalnego i obciążenia grzybiczego w tkance skórnej.
Artykuł metodologiczny
Zakażenie myszy Malassezia spp. w celu zbadania interakcji grzyb-gospodarz
W tym artykule
Podsumowanie
Streszczenie
Modele zwierzęce są kluczowe dla badań nad chorobami zakaźnymi. Stanowią one ważną podstawę do analizy pełnego spektrum interakcji, które zachodzą między drobnoustrojami a ich gospodarzem in vivo w sposób specyficzny dla tkanki. Grzyby chorobotwórcze są coraz częściej uznawane za poważne zagrożenie dla ludzi, a wykorzystanie takich modeli infekcji znacznie poprawiło naszą wiedzę na temat patogenności grzybów. Gatunki z rodzaju Malassezia są najliczniejszymi grzybami mikrobioty ludzkiej skóry, a także są związane z rozwojem ciężkich chorób zapalnych skóry, takich jak łojotokowe zapalenie skóry i atopowe zapalenie skóry. Jednak związek przyczynowy między Malassezia a patogenezą choroby pozostaje nieznany, co można przypisać słabej wiedzy na temat złożonej interakcji Malassezia z układem odpornościowym skóry. Protokół ten opisuje ustanowienie eksperymentalnego modelu mysiego, który umożliwia badanie interakcji Malassezia ze skórą ssaków in vivo. Przedstawiono w nim metodę hodowli Malassezia spp. w warunkach laboratoryjnych, sposób zakażenia skóry myszy Malassezia spp. oraz sposób oceny wyniku infekcji za pomocą analiz stanu zapalnego skóry i obciążenia grzybami. Opisany tutaj model działa u zwierząt w pełni immunokompetentnych i nie opiera się na wstępnym leczeniu zwierząt immunosupresyjnym lub antybiotykowym. Ponadto można go dostosować do praktycznie wszystkich genetycznie zmodyfikowanych szczepów myszy i można go łączyć z innymi modelami chorób skóry. Te cechy sprawiają, że ten model infekcji jest bardzo potężnym narzędziem do szczegółowego badania wrodzonej i adaptacyjnej odpowiedzi immunologicznej gospodarza przeciwko Malassezia w skórze in vivo.
Wprowadzenie
Skóra jest zasiedlona przez wiele różnych mikrobów. Stała ekspozycja skóry na mikrobiotę przyczynia się do kształtowania i edukowania układu odpornościowego gospodarza. Grzyby są coraz częściej uznawane za istotną część mikrobioty i pełnią ważną rolę w fizjologii i odporności gospodarza, podobnie jak bakterie i wirusy1. Gatunki z rodzaju Malassezia są zdecydowanie najliczniejszymi grzybami kolonizującymi skórę kręgowców stałocieplnych i stanowią ponad 90% mykobiomu ludzkiej skóry2,3. Do tej pory zidentyfikowano osiemnaście różnych gatunków Malassezia na podstawie ludzkiej i zwierzęcej skóry4.
Uważa się, że różne patologie skóry powstają, przynajmniej częściowo, w wyniku niezrównoważonego składu mikrobioty. Dysbioza może prowadzić do przerostu gatunków o potencjale chorobotwórczym, co prowadzi do infekcji oportunistycznych i chorób5. Konsekwentnie istnieje coraz więcej dowodów na to, że Malassezia, oprócz komensalnego stylu życia, przyczynia się do rozwoju różnych patologii skóry, począwszy od łupieżu i łupieżu pstrego po poważniejsze choroby zapalne, takie jak łojotokowe zapalenie skóry i atopowe zapalenie skóry4,6. Chociaż ustalono związek przyczynowy między Malassezia a łupieżem pstrym, patofizjologiczna rola grzyba w poważniejszych patologiach skóry pozostaje w dużej mierze nieznana.
Określenie roli Malassezia w homeostazie i chorobie skóry wymaga bardziej dogłębnej wiedzy na temat interakcji grzyba ze skórą i układem odpornościowym skóry. Warto zauważyć, że badania nad Malassezia są, w porównaniu z innymi ludzkimi patogenami grzybiczymi (np. Candida albicans lub Aspergillus fumigatus), wciąż w fazie raczkowania. Można to przypisać trudnościom w uprawie Malassezia w warunkach laboratoryjnych oraz brakowi odpowiednich modeli eksperymentalnych do badania grzyba w kontakcie z gospodarzem in vivo. Poprzednie eksperymenty z wyizolowanymi komórkami w hodowli wykazały szeroki zakres bezpośrednich i pośrednich interakcji między Malassezia a różnymi komórkami odpornościowymi i nieimmunologicznymi7. Jednak te eksperymenty in vitro tylko częściowo podsumowują sytuację złożonego środowiska skóry in vivo, w którym liczne zdarzenia komórkowe i molekularne zachodzą jednocześnie między grzybem a różnymi typami komórek.
Tutaj przedstawiamy protokół dla eksperymentalnego modelu infekcji skóry Malassezia u myszy, który niedawno założyliśmy, aby badać interakcję grzyb-gospodarz in vivo7. Obejmuje to procedury dotyczące (1) udanej hodowli Malassezia in vitro, (2) naskórkowego nakładania Malassezia na mysią skórę ucha oraz (3) szczegółów technicznych dotyczących analizy zapalenia skóry wywołanego przez Malassezia i obciążenia grzybiczego zakażonej skóry. Co ważne, model ten nie opiera się na immunosupresji (np. przez kortykosteroidy) ani leczeniu antybiotykami myszy przed zakażeniem, jak to jest praktykowane w innych mysich modelach infekcji grzybiczej8,9. To z kolei pozwala na badanie pełnego spektrum wrodzonej i nabytej odpowiedzi immunologicznej przeciwko Malassezia w skórze normalnej. Warto zauważyć, że wsobne myszy typu dzikiego trzymane w określonych warunkach wolnych od patogenów (SPF) nie są naturalnie skolonizowane przez Malassezia, a zatem ich narażenie na grzyba nie powoduje trwałej kolonizacji, ale jest usuwane z żywiciela w ciągu około 1,5 tygodnia. Model ten pozwala jednak na badanie mechanizmów inicjacji i regulacji odpowiedzi przeciwgrzybiczej gospodarza, co z kolei stanowi podstawę generowania pamięci immunologicznej. Model jest wszechstronny, ponieważ można go łatwo zastosować do szerokiej gamy genetycznie zmodyfikowanych szczepów myszy i można go łączyć z innymi istniejącymi modelami chorób skóry, takimi jak modele niedoboru bariery, w celu zbadania wpływu Malassezia na patologiczne i zapalne stany skóry7. W związku z tym opisany model eksperymentalnego zakażenia skóry Malassezia u myszy zapewnia wysoki stopień elastyczności w badaniu interakcji grzyba z układem odpornościowym skóry w kontekście homeostazy i choroby.
Ten protokół opisuje eksperymentalne zakażenie skóry myszy Malassezia spp. Ze względu na swój potencjał chorobotwórczy, Malassezia spp. są klasyfikowane jako patogeny BSL2 w niektórych krajach, w tym w Szwajcarii. Prosimy o zapoznanie się z lokalnymi wytycznymi i przestrzeganie przepisów lokalnych władz. Organizmy sklasyfikowane jako BSL2 powinny być obsługiwane przez przeszkolony personel w szafie bezpieczeństwa biologicznego (BSC) z certyfikatem BSL2. Odpady biologiczne zanieczyszczone organizmami sklasyfikowanymi jako BSL2, a także tusze myszy zakażonych takimi organizmami powinny być sterylizowane w autoklawie przed usunięciem. W przypadku eksperymentów na myszach należy dołożyć wszelkich starań, aby zminimalizować cierpienie i zapewnić najwyższe standardy etyczne i humanitarne zgodnie z zasadami 3R (replace, refine, reduce)10. Eksperymenty opisane w tym protokole przeprowadzono na M. pachydermatis (ATCC 14522), M. furfur (ATCC 14521) i M. sympodialis (ATCC 42132)7.
Protokół
Wszystkie procedury opisane w tym protokole zostały przeprowadzone zgodnie z rozporządzeniem Federalnego Urzędu ds. Środowiska (www.bafu.admin.ch) w sprawie postępowania z organizmami w systemach zamkniętych. Eksperymenty na myszach zostały przeprowadzone w ścisłej zgodności z wytycznymi szwajcarskiej ustawy o ochronie zwierząt i zostały przeprowadzone zgodnie z protokołami zatwierdzonymi przez Biuro Weterynaryjne Kantonu Zurych w Szwajcarii (numer licencji 168/2018).
1. Uprawa Malassezia w warunkach laboratoryjnych
UWAGA: Przechowuj wszystkie odczynniki i media używane do tego protokołu w temperaturze pokojowej (RT, 20 – 25 °C), chyba że zaznaczono inaczej, ponieważ niższa temperatura może hamować rozwój grzybów.
- Przygotuj płynną modyfikowaną pożywkę Dixon (mDixon) do wzrostu Malassezia. Aby przygotować 500 ml płynnej pożywki mDixon, rozpuść 18 g ekstraktu słodowego, 10 g suszonej żółci wołowej, 5 ml Tween-40, 3 g peptonu, 1 ml glicerolu i 1 ml kwasu oleinowego w 500 ml destylowanego H2O (dH2O). Dostosuj pożywkę do pH 6 za pomocą HCl i autoklawu. Przechowywać podłoże w temperaturze pokojowej.
- Przygotuj płytki agarowe mDixon, dodając 7,5 g agaru do 500 ml pożywki mDixon przed autoklawowaniem. Powoli schłodzić agar mDixon po autoklawowaniu za pomocą drążka kierowniczego i magnetycznej płyty grzewczej, aby uniknąć częściowego zestalenia pożywki podczas schładzania.
- Gdy agar ostygnie do 50 – 60 °C, przelej płyn na szalki Petriego w okapie z przepływem laminarnym i pozostaw do wyschnięcia w temperaturze pokojowej przez noc.
UWAGA: Płytki agarowe można przechowywać w temperaturze 4 °C przez kilka tygodni, jeśli są owinięte i trzymane do góry nogami, aby uniknąć parowania. - Uzyskać izolaty Malassezia i ożywić liofilizowane stada Malassezia zgodnie z instrukcjami uzyskanymi przez dostawcę.
- Zaszczepić 10 ml płynnej pożywki mDixona w sterylnej kolbie Erlenmeyera o pojemności 100 ml z ożywioną zawiesiną Malassezia zgodnie z instrukcjami otrzymanymi przez dostawcę. Inkubować kulturę w inkubatorze z wytrząsaniem w temperaturze 30 °C i 180 obr./min.
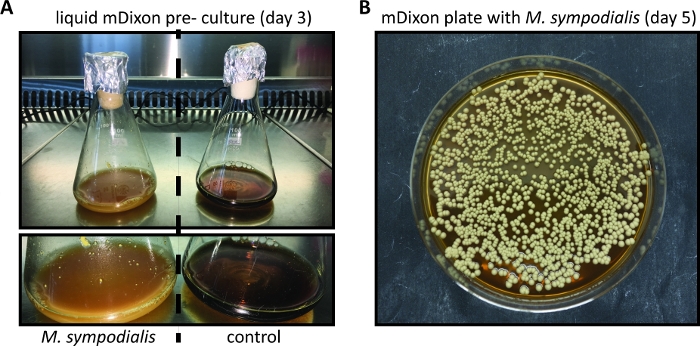
- Regularnie sprawdzaj wzrost kultury Malassezia, sprawdzając wygląd kremowego koloru i zmętnienia. Kinetyka wzrostu zależy od gatunku i szczepu Malassezia i może być szczególnie powolna, gdy Malassezia jest świeżo ożywiona z liofilizowanego bulionu. (Rysunek 1A).
- Przygotuj wywar glicerolowy, mieszając 3 części gęsto rosnącej kultury Malassezia w pożywce mDixon z 1 częścią sterylnego 99% glicerolu. Mieszaninę Malassezia/glicerol rozmieścić w sterylnych probówkach z nakrętką i przechowywać w temperaturze -80 °C.
- Do rozmnażania in vitro, płytkę Malassezia z płynnej kultury w mDixon lub z zamrożonego bulionu glicerolowego na płytkę agarową mDixon (doprowadzoną do temperatury suchej z 4 °C) za pomocą pętli inokulacyjnej.
UWAGA: Przed użyciem przenieść płytki agarowe mDixon do RT z 4 °C, ponieważ zimny agar mDixon hamuje rozwój grzybów. - Inkubować płytkę (płytki) agarowe z Malassezia do góry nogami w inkubatorze (niewstrząsającym) w temperaturze 30 °C. Regularnie sprawdzaj wzrost kolonii Malassezia.
UWAGA: Kolonie Malassezia na płytkach agarowych mDixon pojawiają się w ciągu 3 - 5 dni i są kremowo-matowe, gładkie z wypukłym uniesieniem (Rysunek 1B). - Przechowuj kolonie Malassezia na płytkach agarowych mDixon w temperaturze pokojowej przez ~ 2 tygodnie. Następnie przygotować nową płytkę agarową mDixon, rozpylając Malassezia z zamrożonego bulionu glicerynowego, jak opisano w ppkt 1.7.
2. Przygotowanie inokulum do eksperymentalnego zakażenia myszy Malassezia
- Zaszczepić 10 ml płynnej pożywki mDixona w sterylnej kolbie Erlenmeyera o pojemności 100 ml z 3 - 5 pojedynczymi koloniami Malassezia z płytki agarowej mDixona (patrz krok 1, Rysunek 1B).
- Inkubować kulturę Malassezia przez ~ 48 do 96 godzin w temperaturze 30 °C i 180 obr./min, aż kultura stanie się kremowa i mętna (Rysunek 1A).
UWAGA: Czas niezbędny do wzrostu Malassezia zależy od gatunku i szczepu Malassezia oraz ilości grzyba użytego do zaszczepienia. - Przenieść 2 ml kultury Malassezia do sterylnej probówki mikrowirówkowej o pojemności 2 ml i wirować przez 1 minutę przy 10 000 x g.
- Wyrzucić supernatant i przemyć osad, zawieszając go w 1 ml roztworu soli buforowanej fosforanem (PBS). Odwirować ponownie przez 1 minutę przy 10 000 x g.
- Po przepłukaniu zawiesić osad w 1 ml PBS przez energiczne pipetowanie i zmierzyć gęstość optyczną roztworu przy 600 nm (ODA600) za pomocą spektrometru. Rozcieńczyć zawiesinę Malassezia 20 – 50 x z PBS do pomiaru średnicy zewnętrznej, aby upewnić się, że odczyt wynosi od 0,1 do 1,
UWAGA: Gęstość 3-dniowej hodowli Malassezia na ogół waha się od 15 do 30 ODA600, w zależności od gatunku i szczepu Malassezia oraz od liczby komórek drożdży użytych do inokulacji kultury (krok 2.1). Malassezia ma tendencję do tworzenia agregatów, dlatego konieczne jest energiczne pipetowanie, aby zapewnić jednorodność zawiesiny. - Podać objętość zawiesiny Malassezia w PBS, która odpowiada gęstości 4 ODA600, do sterylnej probówki o pojemności 2 ml. Przygotować 1 probówkę na zwierzę, które ma być zakażone.
- Odwirować probówki zawierające Malassezia przez 1 minutę w temperaturze 10 000 x g.
- Odrzucić supernatant i zawiesić osad Malassezia w 200 μl rodzimej oliwy z oliwek (co odpowiada 2 komórkom drożdżyA600 OD / 100 μl oliwy z oliwek).
UWAGA: Stwierdzono, że oliwa z oliwek jest dobrym nośnikiem do zakażenia naskórka Malassezia, ponieważ Malassezia jest drożdżem lipofilowym i zależnym od lipidów. Oliwa z oliwek jest lepiej wchłaniana przez skórę niż PBS. Należy jednak pamiętać, że nie jest łatwo zawiesić Malassezię w oliwie z oliwek. Popraw zawiesinę Malassezia/oliwy z oliwek poprzez wirowanie. Zawiesinę należy utrzymywać w temperaturze pokojowej do czasu jej wykorzystania w celu zakażenia. - Przygotuj probówki z samą oliwą z oliwek do pozorowanego zakażenia zwierząt kontrolnych.
3. Zakażenie myszy Malassezia
- Zamów samice myszy C57BL/6 w wieku 6-8 tygodni i pozwól im zaaklimatyzować się w obiekcie dla zwierząt doświadczalnych przez co najmniej tydzień. Oblicz dla 3-5 myszy na grupę, w tym niezakażoną grupę kontrolną.
- Przygotuj sterylny koktajl znieczulający zawierający 1,3 mg/ml ksylazyny i 6,5 mg/ml ketaminy w PBS. 5 ml koktajlu znieczulającego wystarcza do znieczulenia 20 zwierząt. Dostosuj objętość koktajlu w zależności od liczby zwierząt, które mają być znieczulone.
- Znieczulić zwierzęta poprzez wstrzyknięcie dootrzewnowo 10 μl/g koktajlu znieczulającego (co odpowiada 65 mg ketaminy i 13 mg ksylazyny na kg masy ciała) i umieścić znieczulone zwierzęta na poduszce grzewczej w temperaturze 37 °C.
UWAGA: Przy wskazanej dawce zwierzęta zwykle pozostają znieczulone przez ~ 30 - 60 min.
- Znieczulić zwierzęta poprzez wstrzyknięcie dootrzewnowo 10 μl/g koktajlu znieczulającego (co odpowiada 65 mg ketaminy i 13 mg ksylazyny na kg masy ciała) i umieścić znieczulone zwierzęta na poduszce grzewczej w temperaturze 37 °C.
- Sprawdź odruchy, szczypiąc tylną stopę kleszczami, aby upewnić się, że zwierzęta są w pełni znieczulone.
- Nałóż krem pod oczy na oczy, aby zapobiec odwodnieniu podczas znieczulenia.
- Opcjonalnie zmierz grubość ucha w obu uszach za pomocą suwmiarki (zakres 0 - 5 mm). Zmierz dwa różne obszary każdego ucha i oblicz średnią grubość ucha na ucho.
UWAGA: Pomiar grubości ucha jest opcjonalny i zależy od pytania badawczego. Jeśli jednak grubość ucha jest używana jako odczyt stanu zapalnego skóry, konieczne jest zmierzenie podstawowej grubości ucha przed infekcją. (patrz krok 4). - Opcjonalnie należy przerwać barierę naskórkową skóry ucha grzbietowego poprzez łagodne zdzieranie taśmy: ręcznie nałóż mały kawałek taśmy na skórę i usuń go ponownie. Powtórz przez 5 kolejnych rund, używając świeżego kawałka taśmy dla każdej rundy.
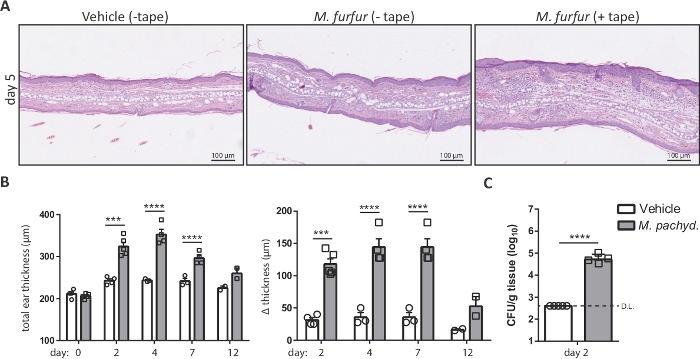
UWAGA: Malassezia wywołuje bardziej wyraźny stan zapalny skóry w skórze zaburzonej barierowo w porównaniu ze skórą niezakłóconą (Rysunek 2A)7. - Nanieść miejscowo 100 μl (2 ODA600) zawiesiny Malassezia/oliwy z oliwek na grzbietową stronę każdego ucha za pomocą sterylnej pipety. Należy uwzględnić grupę kontrolną zwierząt, które są poddawane wyłącznie działaniu oliwy z oliwek (grupa kontrolna traktowana podłożem).
UWAGA: Bezpośrednio przed aplikacją energicznie rozmieszać zawiesinę Malassezia/oliwa z oliwek, aby uzyskać jednorodną zawiesinę Malassezia. - Pozostaw znieczulone zwierzęta na poduszce grzewczej, aby uniknąć hipotermii, dopóki nie wykażą oznak powrotu do zdrowia (ruch wąsów, przyspieszone oddychanie itp.).
- Wstrzyknąć podskórnie 200 μl sterylnego i wstępnie podgrzanego 2% roztworu glukozy do fałdu karkowego, aby wspomóc ich metabolizm i nawodnienie.
UWAGA: Aby przygotować sterylny 2% roztwór glukozy, rozpuść 1 mg glukozy w 50 ml PBS i przefiltruj go za pomocą filtra 0,2 μm. Roztwór można przechowywać w temperaturze 4 °C. - Przenieś zwierzęta z powrotem do ich klatki.
4. Analiza zapalenia skóry wywołanego przez Malassezia
UWAGA: Ta procedura opisuje analizę obrzęku ucha wywołanego przez Malassezia podczas infekcji, który służy jako parametr stanu zapalnego skóry. Warunkiem wstępnym do analizy obrzęku ucha wywołanego przez grzyby jest zmierzenie wyjściowej grubości ucha przed usunięciem taśmy i/lub infekcją (krok 3.5).
- Przygotować komorę izofuliranową do krótkotrwałego znieczulenia zwierząt zakażonych Malassezią i kontrolnych.
- Przenoś jedno zwierzę na raz do komory i poczekaj, aż zwierzę zostanie w pełni znieczulone.
UWAGA: Oznaki prawidłowego znieczulenia obejmują całkowite rozluźnienie ciała, a także powolny i ciężki (boczny) oddech. Uważnie monitoruj znieczulenie, ponieważ długotrwałe narażenie na izofluran może być śmiertelne. - Wyjmij zwierzę z komory i umieść je na chusteczce.
- Zmierz grubość ucha (uszu) za pomocą suwmiarki (zakres 0 - 5 mm). Zmierz dwa różne obszary każdego ucha i oblicz średnią grubość na ucho (patrz krok 3.5).
- Przenieś zwierzę z powrotem do klatki.
UWAGA: Znieczulenie izofluranem jest bardzo krótkotrwałe, a zwierzęta wracają do zdrowia w ciągu ~ 30 s po wyjęciu z komory izofluranu. - Oblicz wzrost grubości ucha, odejmując średnią wyjściową grubość ucha, zmierzoną przed usunięciem taśmy i/lub zakażeniem, od średniej grubości ucha mierzonej w każdym punkcie czasowym po zakażeniu.
- Wykreśl obliczone wartości jako wzrost grubości ucha lub, alternatywnie, jako całkowitą grubość ucha w czasie dla każdego zwierzęcia lub grupy zwierząt (Rysunek 2B).
5. Analiza obciążenia grzybami w zakażonej skórze
- Przygotować sterylną probówkę do mikrowirówki o pojemności 2 ml dla każdego ucha, która ma zostać pobrana, zawierającą 0,5 ml sterylnego 0,05% NP40 wdH2Oi autoklawowaną stalową kulkę (średnica 5 mm).
- Zważ probówki za pomocą wagi precyzyjnej i zapisz dokładną masę.
- Poddać myszy eutanazji przez uduszenie CO2 .
- Wyjąć uszy u podstawy i przenieść do probówki zawierającej 0,5 ml sterylnego 0,05% NP40 w dH2O, zgodnie z opisem w krokach 5.1 - 5.2.
- Zważyć rurkę zawierającą tkankę ucha i obliczyć rzeczywistą masę każdej próbki, odejmując masę rurki bez narządu od masy rurki z narządem.
- Homogenizować tkankę ucha przez 6 minut przy 25 Hz za pomocą homogenizatora tkankowego. Upewnij się, że tkanka jest dobrze zhomogenizowana.
- Umieścić 100 μl każdej próbki (co odpowiada 1/5 każdego homogenatu, współczynnik rozcieńczenia = 5) na płytkach agarowych mDixon i inkubować płytki do góry nogami w inkubatorze o temperaturze 30°C.
UWAGA: Ilość posiewu homogenatu należy dostosować do oczekiwanego obciążenia grzybami. Upewnij się, że na płytce znajduje się wystarczająca ilość homogenatu, aby uzyskać co najmniej 10 i nie więcej niż 250 kolonii na płytkę, aby umożliwić łatwe wyliczenie. Opcjonalnie należy ułożyć na próbkę wiele płytek o różnych rozcieńczeniach homogenatu. - Regularnie sprawdzaj wzrost kolonii Malassezia.
UWAGA: Kolonie stają się widoczne zwykle po 2 - 3 dniach. Czas potrzebny do wzrostu kolonii Malassezia zależy od gatunku i szczepu Malassezia. - Policz kolonie na talerzu.
- Oblicz liczbę tkanki jtk/g, korzystając z następującego wzoru:
jtk/g tkanki = (liczba kolonii/płytka) x (współczynnik rozcieńczenia) / (masa próbki skóry w g).
UWAGA: Przybliżoną minimalną granicę wykrywalności można ocenić za pomocą następującego wzoru: minimalna granica wykrywalności = (1 kolonia/płytka) x (współczynnik rozcieńczenia) / (średnia waga wszystkich próbek skóry w g). - Obciążenia grzybami są zwykle wykreślane na skali logarytmicznej (Rysunek 2C).
Wyniki
In vitro hodowla Malassezia
W porównaniu do innych częściej stosowanych patogennych modeli grzybiczych, takich jak C. albicans czy A. fumigatus, Malassezia jest trudniejsza do hodowli in vitro. Wynika to z faktu, że Malassezia z powodu niezdolności do syntezy kwasów tłuszczowych polega na egzogennych źródłach lipidów w celu zaspokojenia swoich potrzeb odżywczych11. Pożywka mDixon jest odpowiednia do hodowli in vitro kilku gatunków Malassezia, w tym M. pachydermatis, M. furfur, M. sympodialis, M. slooffiae, M. globosa oraz M. yamatoensis7,12. Rycina 1 przedstawia reprezentatywne obrazy wzrostu M. sympodialis w płynnej pożywce mDixon oraz na agarze mDixon, zgodnie z opisem w kroku 1 i kroku 2.
Analiza stanu zapalnego skóry i obciążenia grzybiczego w zapaleniu skóry wywołanym przez Malassezia
Ekspozycja skóry ucha myszy, w której bariera została naruszona poprzez stripping taśmą przed zakażeniem, na Malassezia prowadzi do nasilenia stanu zapalnego skóry, charakteryzującego się hiperplazją naskórka i skóry właściwej oraz rozwojem obrzęku7. Kroki 4 i 5 opisują metody analizy obrzęku ucha wywołanego przez Malassezia oraz obciążenia grzybiczego skóry. Oba parametry stanowią kluczowe wskaźniki monitorowania przebiegu zakażenia. Rysunek 2A ilustruje wzrost grubości ucha, który można zaobserwować po ekspozycji skóry z naruszoną barierą na M. furfur w porównaniu do niezakłóconej skóry myszy WT C57BL/6. Rysunek 2B przedstawia reprezentatywny wykres podsumowujący wzrost grubości ucha w czasie. Rysunek 2C prezentuje obciążenie grzybicze w skórze ucha w 2. dniu po zakażeniu M. pachydermatis.
Rysunek 1: Hodowla Malassezia in vitro.
(A) Szczep M. sympodialis ATCC 42132 hodowany przez 3 dni w temperaturze 30 °C i przy 180 rpm w płynnym podłożu mDixon (po lewej) obok kontrolnej kolby Erlenmeyera zawierającej niezaszczepione podłoże mDixon (po prawej). (B) Kolonie szczepu M. sympodialis ATCC 42132 na agarze mDixon po 5 dniach inkubacji w temperaturze 30 °C. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
Rycina 2: Analiza infekcji skóry przez Malassezia na podstawie grubości ucha i obciążenia grzybiczego.
(A) Histologia przekrojów ucha pobranych od myszy C57BL/6, które leczono oliwą z oliwek (nośnik, lewo) lub zainfekowano szczepem M. furfur JPLK23 przez 5 dni (środek i prawo). Po prawej stronie skórę ucha poddano strippingowi przed infekcją. Przekroje barwiono hematoksyliną i eozyną (H&E). (B) Wykresy podsumowujące pokazujące wzrost grubości ucha w czasie u myszy C57BL/6 narażonych na Malassezia lub pozostawionych bez infekcji jako kontroli. Po lewej stronie przedstawiono bezwzględną grubość skóry ucha myszy narażonych na szczep M. pachydermatis ATCC 14522 lub leczonych nośnikiem w każdym punkcie czasowym; po prawej stronie pokazano wzrost grubości ucha we wskazanych punktach czasowych w stosunku do wartości wyjściowej w dniu 0. (C) Obciążenie grzybiczego w skórze myszy C57BL/6 zainfekowanych szczepem M. pachydermatis ATCC 14522 lub leczonych oliwą z oliwek jako kontrolą (nośnik). W obu przypadkach skórę poddano strippingowi. Każdy symbol na wykresach podsumowujących B i C reprezentuje jedno zwierzę. Istotność statystyczną różnic między grupami obliczono za pomocą jednoczynnikowej analizy wariancji ANOVA (B) lub testu t Studenta (C). ***p <0.001, ****p <0.0001, D.L.: granica wykrywalności Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Protokół ten opisuje zakażenie skóry powszechnie stosowanym wsobnym szczepem myszy C57BL/6 przez Malassezia spp. Dostosowanie tego protokołu do innych szczepów myszy o innym tle genetycznym (np. Balb/c) lub do genetycznie zmodyfikowanych szczepów myszy może wymagać dostosowania dawki infekcji, punktu czasowego analizy itp. Aby zapewnić odtwarzalność, grupy myszy powinny być zawsze w tym samym wieku i tej samej płci. Źródło pochodzenia myszy powinno być utrzymywane na stałym poziomie, ponieważ nawet niewielkie zmiany w tle genetycznym i różnice w mikrobiocie, które istnieją między dostawcami i mogą występować nawet między różnymi jednostkami w jednym obiekcie hodowlanym, mogą mieć nieprzewidywalny wpływ na przebieg zakażenia. Podczas tworzenia modelu zakażenia Malassezia opisanego w niniejszym protokole zaleca się przeprowadzenie badania pilotażowego w celu dokładnego monitorowania przebiegu infekcji, w tym zakresu kolonizacji, kinetyki usuwania grzybów oraz stopnia stanu zapalnego i patologii, które mogą zostać wywołane (np. jeśli skóra ucha jest naruszona barierowo przed zakażeniem) w celu określenia optymalnych warunków testu.
W celu zapewnienia odtwarzalności i wiarygodnego wykrycia różnic między grupami doświadczalnymi, liczba zwierząt wykorzystanych w danej grupie musi być obliczona na podstawie analizy statystycznej. Wielkość próby oblicza się na podstawie wielkości efektu, wskaźnika błędów i mocy, które uwzględniają różnice biologiczne i eksperymentalne (np. spowodowane zmiennością układu odpornościowego). Ze względów etycznych należy unikać wykorzystywania niepotrzebnie dużej liczby zwierząt. Jeśli chodzi o infekcję skóry Malassezia , nie zaleca się leczenia grzyba tylko jednego ucha i używania drugiego ucha jako kontroli w tej samej myszy, ponieważ myszy mogą rozprzestrzeniać grzyba na oba uszy podczas pielęgnacji. Jednak użycie 1/2 ucha do różnych odczytów metodologicznych, takich jak określenie obciążenia grzybami, izolacja komórek odpornościowych lub analiza histologiczna, jest często wystarczające i powoduje znaczne zmniejszenie liczby zwierząt wykorzystywanych do eksperymentów.
Do tej pory opisano 18 różnych gatunków Malassezia . Różnice między- i wewnątrzgatunkowe w obrębie rodzaju Malassezia mogą wpływać na interakcję z gospodarzem, czego dowiedzieliśmy się również z badań nad innymi grzybami chorobotwórczymi dla ludzi13. Różne gatunki i szczepy Malassezia różnią się pochodzeniem (np . M. pachydermatis jest najczęstszym gatunkiem izolowanym od zwierząt, podczas gdy M. restricta, M. globosa i M. sympodialis są najbardziej widocznymi członkami mikrobiomu grzybiczego skóry u ludzi ze zmiennym rozmieszczeniem tych gatunków w różnych obszarach skóry). Niektóre gatunki są związane z komensalizmem, podczas gdy inne uważa się za bardziej chorobotwórcze, chociaż szczegółowe dowody pozostają stosunkowo słabe. Co ważne, niektóre gatunki i odmiany są z natury trudniejsze w uprawie niż inne. W związku z tym decyzja o tym, który gatunek/szczep należy wykorzystać do infekcji, musi opierać się na pytaniu badawczym.
Eksperymentalne zakażenie skóry myszy niektórymi organizmami drobnoustrojami, takimi jak Candida albicans lub Staphylococcus aureus, wymaga przerwania bariery naskórkowej przed zakażeniem, np. za pomocą papieru ściernego 14,15,16. W przeciwieństwie do tego, opisany tutaj model infekcji Malassezia jest równie skuteczny z przerwaniem bariery i bez niego7. Stopień zapalenia wywołanego przez grzyba jest znacznie zwiększony, jeśli skóra zostanie zdjęta z taśmy przed infekcją7. W związku z tym to, czy skóra powinna być manipulowana przed zastosowaniem Malassezia, zależy od pytania badawczego. Istnieją różne modele przewlekłego i ostrego zapalenia skóry (np. modele nadwrażliwości typu opóźnionego (DTH) i nadwrażliwości kontaktowej (CHS)) oraz modele niedoboru bariery, które mogą być interesujące dla badania udziału drożdży komensalnych w patologiach skóry.
Myszy wsobne utrzymywane w określonych warunkach wolnych od patogenów (SPF) nie są (według naszej wiedzy) naturalnie skolonizowane Malassezia. W związku z tym eksperymentalne zastosowanie Malassezia na skórę ucha myszy stanowi pierwotne narażenie na grzyba, które wywołuje ostrą odpowiedź u gospodarza, co z kolei prowadzi do usunięcia grzybów w ciągu 1 - 2 tygodni7. Chociaż model opisany w tym protokole tylko częściowo odzwierciedla sytuację u immunokompetentnych ludzi lub innych organizmów gospodarza, które są trwale skolonizowane przez Malassezia, eksperymentalna infekcja daje szerokie okno możliwości zbadania odporności przeciwgrzybiczej oraz mechanizmów komórkowych i molekularnych, które leżą u podstaw tej odpowiedzi. Pozwala również na badanie różnic w reakcji na różne gatunki i szczepy Malassezia w różnych warunkach eksperymentalnych (np. z naruszeniem bariery skórnej i bez niej).
Badania nad interakcjami Malassezia - gospodarz były w przeszłości ograniczone do eksperymentów in vitro na izolowanych typach komórek w hodowlach (np. linie komórkowe keratynocytów, PBMC). Chociaż badania te rzuciły nieco światła na determinanty grzybów i gospodarza, które kształtują wzajemne oddziaływanie między Malassezia a gospodarzem17, nie pozwalają one na kompleksowe zrozumienie interakcji grzyb - gospodarz w złożonym środowisku skóry, które obejmuje wiele typów komórek, które są w ciągłej komunikacji, takich jak keratynocyty, fibroblasty i rezydujące w tkankach komórki odpornościowe, ale także populacje leukocytów, które infiltrują tkankę dopiero po kontakcie mikrobiologicznym ze skórą. Ta wielokomórkowa sieć nie może być w pełni odtworzona w modelach in vitro, nawet w przypadku najbardziej zaawansowanych systemów organoidowych. Tak więc eksperymentalne zakażenie myszy nadal stanowi złoty standard w badaniach nad immunologią i chorobami zakaźnymi, a dostępność opisanego tutaj modelu stanowi przełom w dziedzinie badań nad Malassezia . Co ważne, model ten opiera się na naskórkowym zastosowaniu Malassezia na niezakłóconą skórę ucha myszy i nie implikuje inokulacji grzyba przez wstrzyknięcie do tkanki, np. podskórnie lub dootrzewnowo,jak wykazały poprzednie badania, z których oba są bardziej odległe od sytuacji u naturalnie skolonizowanych gospodarzy.
Możliwość połączenia opisanego w tym protokole modelu infekcji Malassezia z innymi dostępnymi modelami myszy znacznie zwiększa zakres i elastyczność aplikacji. Te ostatnie obejmują różne modele określonych chorób skóry, takie jak model niedoboru bariery, który naśladuje ważne cechy atopowego zapalenia skóry, choroby związanej z Malassezia zarówno u ludzi, jak i psów. Co więcej, naskórkowe zakażenie skóry Malassezia można łatwo zastosować u myszy z wadami genetycznymi w genach gospodarza będących przedmiotem zainteresowania lub myszy, u których interesujący typ komórki jest genetycznie usunięty lub może być farmakologicznie zubożony (np. poprzez podawanie toksyny błoniczej myszom z ekspresją receptora toksyny błoniczej). Takie modele stanowią nieuniknione narzędzie do analizy odpowiedzi gospodarza na drobnoustroje komensalne i chorobotwórcze, w tym Malassezia, oraz do oceny roli tych genów i typu komórki w interakcji grzyb-gospodarz. Analizy interakcji skórnej Malassezia-gospodarz mogą być rozszerzone daleko poza to, co opisano w niniejszym protokole. Obejmują one analizy histologiczne (np. w celu określenia stopnia patologii skóry lub pogrubienia naskórka wywołanego przez grzyba), immunohistochemiczne lub barwienie immunofluorescencyjne skrawków tkanek przy użyciu przeciwciał skierowanych przeciwko markerom specyficznym dla typu komórki lub innym cząsteczkom będącym przedmiotem zainteresowania. Może również obejmować izolację komórek (np. podzbiorów leukocytów rezydujących w tkance lub naciekających tkanki) z zakażonej tkanki skórnej w celu dogłębnego zbadania polaryzacji, regulacji i dynamiki odpowiedzi immunologicznej na Malassezia .
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca była wspierana przez Uniwersytet w Zurychu, Szwajcaria.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Agar | Sigma-Aldrich | A1296-1KG | |
| Attane Isoflurane | Piramal | ||
| cabinet (BSC) Szybsza ultra bezpieczna | DASIT GROUP | TEC 5594 | BSL2 |
| Eppendorf | 5415D | kompatybilna z probówkami Eppendorf o pojemności 2 ml | |
| Suszona żółć wołowa | Sigma-Aldrich | 70168-100G | |
| Probówki Eppendorf (2 ml) | Eppendorf | 0030 120.094 | |
| Glukoza | Sigma-Aldrich | 49159-5KG | |
| Gylcerol (99 %) | Honeywell | 10314830 | |
| Poduszka grzewcza | 648048 | Eickenmeyer | |
| Hereaus B20 | Heraeus | 412047753 | Certyfikat BSL2 |
| Ketasol (100 mg) | Graeub AG | ||
| Płyta grzewcza Magentic MR Hei-Standard | Heidolph Instruments | 442-1355 | |
| Malassezia spp. | ATCC | 14522, 14521, 42132 | |
| Ekstrakt słodowy | Sigma-Aldrich | 70167-500G | |
| Multiply Biosphere Tubes (200 &mikro; l) | Sarstedt AG | 7084211 | Safelock |
| Rodzima oliwa z oliwek | - | komercja. dostępny | |
| Nonidet P40 | Axon Lab | A1694,0250 | |
| Oditest urządzenie pomiarowe | Kroeplin | S0247 | zakres 0-5 mm |
| Kwas oleinowy | Sigma-Aldrich | 75090-5ML | |
| Pepton | Oxoid | LP0037 | |
| Szalki Petriego | Sarstedt AG | 82.1473 | |
| Roztwór soli buforowany fosforanem (PBS, 1x) | Amimed/Bioconcept | 3-05F39 | |
| Rompun (2 %) | Bayer | KP0BFHR | |
| Inkubator z wytrząsaniem Spektrometr z certyfikatem Infors Minitron | Infors-BSL2 | ||
| Jenway | 20308 | pomiar gęstości optycznej przy 600nm | |
| Kuwety spektrometryczne | Greiner Bio-One | 613101 | |
| kulki ze stali nierdzewnej (5mm) | ABF | KU.5G80 1.3541 | |
| Strzykawki 1 ml Sub-Q | BD Bioscience | 305501 | |
| Tissue Lyzer II | Quiagen | 85300 | |
| Transpore Hipoalergiczna taśma | 3M | 1527-1 | |
| Tween 40 | Sigma-Aldrich | P1504-100ML | |
| Witamina A Retinoli Palmitas Krem pod oczy | BAUSCH & | Dostępny |
Bibliografia
- Iliev, I. D., Leonardi, I. Fungal dysbiosis: immunity and interactions at mucosal barriers. Nature Reviews Immunology. 17 (10), 635-646 (2017).
- Findley, K., et al. Topographic diversity of fungal and bacterial communities in human skin. Nature. 498 (7454), 367-370 (2013).
- Gemmer, C. M., DeAngelis, Y. M., Theelen, B., Boekhout, T., Dawson, T. L. Fast, noninvasive method for molecular detection and differentiation of Malassezia yeast species on human skin and application of the method to dandruff microbiology. Journal of Clinical Microbiology. 40 (9), 3350-3357 (2002).
- Theelen, B., et al. Malassezia ecology, pathophysiology, and treatment. Medical Mycology. 56, suppl_1 10-25 (2018).
- Williams, M. R., Gallo, R. L. The role of the skin microbiome in atopic dermatitis. Current Allergy and Asthma Reports. 15 (11), 65(2015).
- Malassezia and the Skin. , Springer. (2010).
- Sparber, F., et al. The Skin Commensal Yeast Malassezia Triggers a Type 17 Response that Coordinates Anti-fungal Immunity and Exacerbates Skin Inflammation. Cell Host Microbe. 25 (3), 389-403 (2019).
- Koh, A. Y. Murine models of Candida gastrointestinal colonization and dissemination. Eukaryotic Cell. 12 (11), 1416-1422 (2013).
- Solis, N. V., Filler, S. G. Mouse model of oropharyngeal candidiasis. Nature Protocols. 7 (4), 637-642 (2012).
- Russel, W. M. S., Burch, R. L. The Principles of Humane Experimental Technique. , Methuen & Co. London. (1959).
- Wu, G., et al. Genus-Wide Comparative Genomics of Malassezia Delineates Its Phylogeny, Physiology, and Niche Adaptation on Human Skin. PLoS Genetics. 11 (11), 1005614(2015).
- Leong, C., Buttafuoco, A., Glatz, M., Bosshard, P. P. Antifungal Susceptibility Testing of Malassezia spp. with an Optimized Colorimetric Broth Microdilution Method. Journal of Clinical Microbiology. 55 (6), 1883-1893 (2017).
- Schonherr, F. A., et al. The intraspecies diversity of C. albicans triggers qualitatively and temporally distinct host responses that determine the balance between commensalism and pathogenicity. Mucosal Immunology. 10 (5), 1335-1350 (2017).
- Igyarto, B. Z., et al. Skin-resident murine dendritic cell subsets promote distinct and opposing antigen-specific T helper cell responses. Immunity. 35 (2), 260-272 (2011).
- Liu, H., et al. Staphylococcus aureus Epicutaneous Exposure Drives Skin Inflammation via IL-36-Mediated T Cell Responses. Cell Host Microbe. 22 (5), 653-666 (2017).
- Nakagawa, S., et al. Staphylococcus aureus Virulent PSMalpha Peptides Induce Keratinocyte Alarmin Release to Orchestrate IL-17-Dependent Skin Inflammation. Cell Host Microbe. 22 (5), 667-677 (2017).
- Sparber, F., LeibundGut-Landmann, S. Host Responses to Malassezia spp. in the Mammalian Skin. Frontiers in Immunology. 8, 1614(2017).
- Yamasaki, S., et al. C-type lectin Mincle is an activating receptor for pathogenic fungus, Malassezia. Proceedings of the National Academy of Sciences of the United States of America. 106 (6), 1897-1902 (2009).
Przedruki i uprawnienia
