Opisano procedurę pomiaru szybkości i dokładności sprawności motorycznej szczurów w warunkach społecznych. Protokół umożliwia nam zbadanie wpływu samej obecności innych osób na szybkość i dokładność sprawności motorycznej w jednym eksperymencie.
Artykuł metodologiczny
Zadanie polegające na ocenie wpływu partnera na szybkość i dokładność sprawności motorycznej u szczurów
W tym artykule
Podsumowanie
Streszczenie
O ile nam wiadomo, żadne badanie nie badało wpływu samej obecności na dokładność wyników u zwierząt. Dlatego opracowaliśmy zadanie eksperymentalne do pomiaru sprawności motorycznej (szybkości i dokładności) szczurów w warunkach społecznych. Szczury zostały przeszkolone, aby biegać po pasie startowym i pociągać w dół dźwignię na końcu pasa startowego. W testach szczury wykonywały zadanie samotnie (pojedynczo) lub w obecności szczura konfederackiego poza dźwignią (para lub stan społeczny). Jako wskaźniki prędkości osiągów zmierzyliśmy czas potrzebny na rozpoczęcie biegu, przebiegnięcie przez pas startowy i pociągnięcie dźwigni w dół. Jako wskaźnik dokładności działania policzyliśmy liczbę prób, w których szczury mogły pociągnąć dźwignię w dół podczas pierwszej próby. Do analizy danych wykorzystano jednoczynnikowe i dwukierunkowe analizy wariancji z powtarzanymi pomiarami. To zadanie typu "biegnij i ciągnij" pozwoliło nam zbadać wpływ obecności innego przedstawiciela tego samego gatunku na szybkość i dokładność sprawności motorycznej w jednym eksperymencie. Wyniki pokazały, że szczury wykonywały zadanie szybciej, ale mniej dokładnie w sesjach w parach niż w pojedynczych sesjach. Protokół ten byłby ważnym modelem zwierzęcym do zbadania wpływu samej obecności na szybkość i dokładność sprawności motorycznej u szczurów.
Wprowadzenie
Wpływ warunków społecznych na czyjeś wyniki był badany u ludzi i zwierząt od dawna, ponieważ Allport1 określił "ułatwienie społeczne" jako "wzrost reakcji jedynie na widok lub dźwięk innych wykonujących ten sam ruch"2. Chociaż Allport1 nie rozróżniał sytuacji społecznej (współdziałanie lub sama obecność innej osoby), wykazano, że sama obecność innych osób wpływa na szybkość lub częstotliwość występów3,4,5,6. Dodatkowo, u zwierząt, sama obecność innych współplemieńców skutkuje wyższym wskaźnikiem odpowiedzi lub wyższą szybkością odpowiedzi podczas zadania naciśnięcia dźwigni u szczurów7,8 i wyższym wskaźnikiem odpowiedzi u małp rezusów podczas prostego zadania poznawczego9.
U ludzi wykazano, że sytuacje społeczne wpływają nie tylko na częstotliwość czy szybkość odpowiedzi, ale także na dokładność działania10. Opierając się na metaanalizie przeprowadzonej przez Bonda i Titus11, Strauss12 argumentował, że sytuacje stosowane w badaniach nad facylitacją społeczną będą miały różny efekt w zależności od cech zastosowanego zadania. W szczególności można się spodziewać spadku wydajności, gdy w badaniu wykorzystano zadanie, które stawiało wysokie wymagania dotyczące zdolności do precyzyjnej kontroli swojego ciała i wykonywania zadań z pewnym stopniem szybkości, co zwykle jest oceniane przez jego aspekty jakościowe (np. dokładność wykonania)13.
Z wyjątkiem kilku badań14,15, jednak większość badań nad facylitacją społeczną u zwierząt nie skupiała się na dokładności wykonania. Na przykład Takano i Ukezono16 badali wpływ samej obecności u szczurów za pomocą umiejętnego zadania sięgającego17. Wymagali od szczurów, aby odwróciły się, a następnie chwyciły granulkę nagrody na półce za pomocą przedniej kończyny. Autorzy podali tylko szybkość działania, pomimo faktu, że zadanie mogło dostarczyć wskaźnika dokładności wydajności. Z kolei Ogura i Matsushima14 zbadali wpływ współdziałania na dokładność dziobania, a także prędkość biegu u piskląt. Wynik pokazał, że dokładność dziobania była niższa, a prędkość biegu wyższa w sytuacji współdziałania niż w sytuacji pojedynczej.
Chociaż Ogura i Matsushima14 po raz pierwszy skupili się na jakościowym aspekcie działania, ich badanie dotyczyło efektu współdziałania. Większość warunków społecznych, włączając w to współdziałanie, nieuchronnie implikuje obecność kogoś innego. Aby zbadać efekt unikalny dla współdziałania, niezbędne jest oddzielenie wpływu samej obecności od wpływu współdziałania na działanie jednostki. Jednak w badaniu nie badano wpływu samej obecności. O ile nam wiadomo, żadne badanie nie badało wpływu samej obecności na dokładność wyników u zwierząt.
Zmodyfikowaliśmy zadanie użyte w badaniu Takano i Ukezono16, aby ocenić wpływ samej obecności na szybkość i dokładność występu. Metoda ta pozwala nam zbadać wpływ warunków społecznych, zwłaszcza samej obecności osobnika współgatunku, na dokładność i szybkość działania u szczurów w jednym eksperymencie.
Protokół
Niniejszy protokół eksperymentalny został zatwierdzony przez Komitet ds. Doświadczeń na Zwierzętach Uniwersytetu Doshisha.
UWAGA: Wszystkie sesje eksperymentalne należy przeprowadzać w okresie oświetlenia.
1. Zwierzęta
- Użyć 15 naiwnych eksperymentalnie samców szczurów albinosów szczepu Wistar o masie ciała 300−350 g. Umiścić je w indywidualnych klatkach w pomieszczeniu hodowlanym o kontrolowanej temperaturze i wilgotności (23 ± 2 °C, 70%) z dostępem do wody ad libitum. Utrzymać cykl światło/ciemność 12 h/12 h (okres oświetlenia rozpoczyna się o godzinie 8:00).
- Za pomocą randomizacji wyznaczyć 10 szczurów jako osobniki badane, a pozostałe jako szczury pomocnicze (konfederatów).
- Przez cały czas trwania eksperymentu utrzymywać masę ciała szczurów na poziomie 85−90% ich masy przy swobodnym dostępie do pokarmu poprzez ograniczanie podaży jedzenia.
UWAGA: Wyznaczenie szczurów pomocniczych służy zmniejszeniu liczby zwierząt wymaganych do przeprowadzenia jednego badania oraz skróceniu czasu jego realizacji.
2. Aparatura
UWAGA: Przegląd aparatury przedstawiono na Rysunku 1. Aparatura została opracowana i zmodyfikowana w odniesieniu do wcześniejszych badań16,17.
- Zbuduj przezroczystą akrylową skrzynię (19 cm x 110 cm x 20 cm) z centralną przegrodą (szerokość 5 cm) i zamontuj dwa gilotynowe drzwiczki. Umieść drzwiczki w odległości 15 cm od każdego końca skrzyni. Na przegrodzie zamontuj brzęczyk (400 Hz, 75 dB) oraz zainstaluj dozownik peletu do podawania nagrody (pellet 45 mg) do pojemnika z pokarmem po stronie zwierzęcia badanego.
- Zamontuj metalową dźwignię (uchwyt: φ3 mm, wysokość 5 cm) na półce wewnątrz centralnej przegrody, w której w każdej ścianie skierowanej w stronę bieżni znajduje się szczelina (szerokość 1,5 cm) (Rysunek 2), aby umożliwić szczurowi badanemu dostęp do dźwigni za pomocą przednich kończyn. Po stronie konfederata zamontuj jednak przezroczystą ściankę przed ścianą przegrody, która uniemożliwi konfederatowi dostęp do dźwigni.
- Pod dźwignią umieść przełącznik aktywujący dozownik, który jest naciskany podczas ruchu pociągania dźwigni przez szczury. Do dźwigni przywiąż odpowiednią długość jelita, która jest niezbędna do podciągania dźwigni przez eksperymentatora.
- Użyj Arduino Mega 2560 REV3 do sterowania gilotynowymi drzwiczkami, brzęczykiem i dozownikiem peletu oraz do odczytu wartości z czujników podczerwieni i przełącznika dozownika. Przygotuj kompresor powietrza (25 L) do obsługi cylindra pneumatycznego i otwierania gilotynowych drzwiczek.
- Umieść kamerę wideo na zewnątrz aparatury, w pobliżu przegrody, aby rejestrować z widoku bocznego czynność pociągania dźwigni przez szczury (60 klatek na sekundę [fps]). Użyj odpowiedniego oprogramowania do odtwarzania wideo, aby przeprowadzić analizę nagrania klatka po klatce.
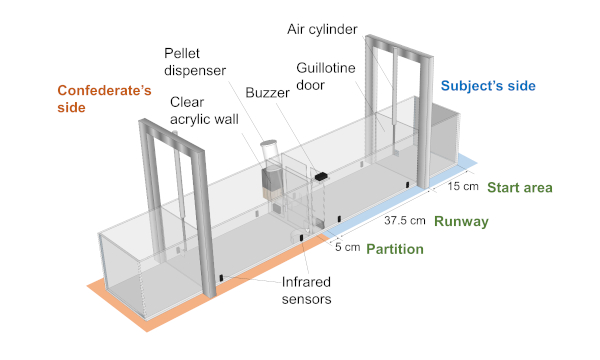
Rycina 1: Schemat aparatury użytej w tym protokole. Środkowa przegroda dzieli pudełko na dwa pola. Po każdej stronie pudełka znajdują się drzwi gilotynowe, które dzielą pole na obszar startowy i tor. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
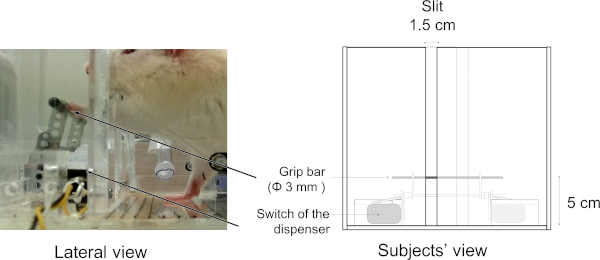
Rysunek 2: Środkowa przegroda aparatury. Szczury mogą chwycić drążek i pociągnąć dźwignię przez szczelinę w przegrodzie. Pod dźwignią znajduje się przełącznik dozownika peletu, a jedno pociągnięcie dźwigni skutkuje podaniem jednej granulki peletu. Rysunek zmodyfikowany na podstawie pracy Sekiguchi i Hata12. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
3. Procedura
- Obsługa i habituacja do pelletów nagrody
- Przed procedurami treningowymi eksperymentator powinien obsługiwać wszystkie szczury przez 10 min/dzień przez 3 dni.
- W ramach habituacji do pelletów nagrody, po obsłudze, należy podawać każdemu szczurowi 3 g pelletów nagrody przez 3 dni.
- Habituacja do aparatury
- Szczury badane
- Trzeciego dnia habituacji do pelletów nagrody, przed podaniem dziennej porcji pelletów, należy umieścić każdego szczura na 15 min w biegni po stronie badanego w aparaturze w celu habituacji, przy zamkniętych drzwiach gilotynowych.
- Szczury konfederaci
UWAGA: Przewidziane są dwie sesje habituacji.- Podczas pierwszej habituacji należy umieścić każdego szczura na 15 min w biegni po stronie konfederata w aparaturze w tym samym czasie, co w kroku 3.2.1.1.
- Podczas drugiej habituacji należy postąpić zgodnie z metodą opisaną w kroku 3.2.2.1 w dniu następującym po zakończeniu treningu sekwencji biegu i pociągania przez szczury badane (zob. sekcja 3.6).
UWAGA: Sesje habituacji dla szczurów konfederatów i badanych należy przeprowadzać oddzielnie, tzn. z jednym szczurem na raz. Nie wolno dopuścić do kontaktu szczurów w aparaturze aż do rozpoczęcia fazy testowej.
- Szczury badane
- Trening z dozownikiem
UWAGA: W przypadku szczurów badanych sesję treningu z dozownikiem należy przeprowadzić następnego dnia po habituacji do aparatury w następujący sposób. Jeśli szczury nie zjedzą wszystkich pelletów pokarmowych, sesję treningu z dozownikiem należy powtórzyć następnego dnia.- Umieścić jeden pellet nagrody w pojemniku z pokarmem po stronie konfederata, aby wykluczyć wpływ właściwości zapachowych pelletu, który konfederat zjada w fazie testowej (patrz sekcja 3.7).
- Umieścić szczura badanego w biegni po stronie badanego, przy zamkniętych drzwiach gilotynowych.
- Podać pellet nagrody do pojemnika z pokarmem 60 razy za pomocą dozownika pelletów w zmiennych odstępach czasu 30 s. Należy upewnić się, że szczur badany zjadł wszystkie podane pellety.
- Kształtowanie reakcji pociągania za dźwignię
UWAGA: Rycina 3 przedstawia schemat blokowy eksperymentu.- Umieścić jeden pellet nagrody w pojemniku z pokarmem po stronie badanego oraz po stronie konfederata. Nie należy umieszczać szczura konfederata w sesjach kształtowania.
- Umieścić szczura badanego w biegni po stronie badanego przy zamkniętych drzwiach gilotynowych. Następnie należy wytrenować szczury w pociąganiu dźwigni w dół. Zachowanie pociągania za dźwignię należy kształtować stopniowo, stosując następujące pięć kryteriów wzmocnienia (A-E): (A) Zbliżenie się do szczeliny. (B) Dotknięcie rączki uchwytu pyszczkiem lub przednimi kończynami szczura, przy uprzednim pociągnięciu dźwigni w dół po stronie badanego. (C) Dotknięcie rączki uchwytu, gdy dźwignia jest nachylona w stronę szczura (pod kątem 60°−30°). (D) Chwycenie i pociągnięcie rączki w stronę szczura w tych samych warunkach co w kryterium C. (E) Chwycenie i pociągnięcie rączki w stronę szczura, gdy dźwignia znajduje się w pozycji pionowej.
- Zakończyć codzienne sesje po podaniu 60 nagród lub po upływie 30 min. Gdy szczur zrealizuje kryterium E 40 razy w jednej sesji, faza kształtowania pociągania za dźwignię kończy się w danym dniu.
UWAGA: Prawie wszystkie szczury kończą codzienną sesję kształtowania w ciągu 20 min. Szczury rasy Wistar potrzebują około 3 dni na osiągnięcie kryterium E.
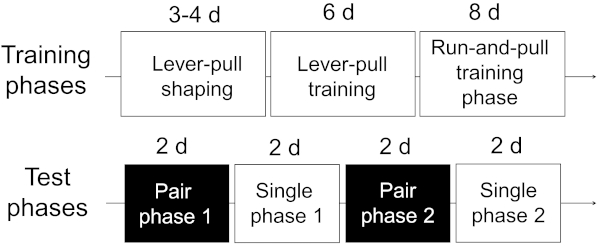
Rysunek 3: Schemat procedury eksperymentalnej. Szczury poddane badaniu przechodzą przez fazy treningowe i fazy testowe w podanej kolejności. Rysunek został zmodyfikowany na podstawie pracy Sekiguchi i Hata12. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
- Trening czynności pociągania za dźwignię
- Umieść szczura badanego w obszarze startowym. W sesjach treningowych nie umieszczaj szczura konfederata. Emituj sygnał dźwiękowy przez 5 s, a następnie otwórz drzwi. Gdy szczur badany pociągnie dźwignię w dół, podaj pelet spożywczy i pociągnij dźwignię w górę za pomocą przywiązanej do niej żyłki.
- Po pociągnięciu przez szczury dźwigni w dół 10 razy (pierwsze 3 dni fazy) lub 6 razy (ostatnie 3 dni fazy) i zjedzeniu wszystkich peletów nagrody, zamknij drzwi i przenieś zwierzęta do obszaru startowego ręką eksperymentatora.
- Po odstępie między próbami (ITI) wynoszącym 20 s powtórz kroki 3.5.1 i 3.5.2. Zakończ codzienne sesje, gdy każdy szczur zdobędzie 60 peletów.
UWAGA: Trening ten ma również na celu habituację szczurów do sygnału dźwiękowego i otwierania drzwi, ponieważ szczury linii Wistar początkowo zwykle wykazują reakcję zamarcia (freezing) w odpowiedzi na ruch drzwi. Codzienna sesja dla każdego szczura trwa około 15 min. Na tę fazę treningową potrzeba sześciu dni.
- Faza treningowa sekwencji biegu i pociągania
- Przeprowadź tę samą procedurę, co w kroku 3.5.1.
- Gdy szczury pociągną dźwignię w dół jeden raz i zjedzą pelet nagrody, zamknij drzwi i przenieś zwierzęta do obszaru startowego ręką eksperymentatora.
- Po ITI wynoszącym 20 s rozpocznij kolejną próbę (kroki 3.6.1 i 3.6.2). Zakończ codzienną sesję, gdy każdy szczur zdobędzie 30 peletów.
UWAGA: Codzienna sesja dla każdego szczura trwa około 20 min. Potrzeba około 10 dni, aby wyniki szczurów osiągnęły asymptotę.
- Fazy testowe
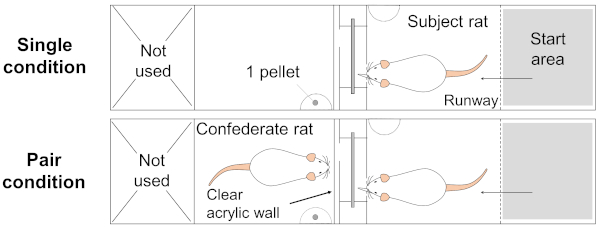
Rycina 4: Opis poszczególnych warunków testowych. W fazach pojedynczych szczur badany wykonywał zadanie samotnie. W fazach parzystych umieszczono szczura partnera w tunelu po przeciwnej stronie niż szczur badany. Przezroczysta ściana przed przegrodą uniemożliwia szczurowi partnerowi dostęp do dźwigni. Rycina została zmodyfikowana na podstawie pracy Sekiguchi i Hata12. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
UWAGA: Fazy testowe obejmują sesje w dwóch warunkach: pojedynczym lub w parach (Rysunek 4). W warunku pojedynczym szczury wykonują zadanie samotnie; oznacza to, że próby są identyczne z sesją treningową sekwencji biegu i pociągania (sekcja 3.6). W warunku w parach po przeciwnej stronie pudła znajduje się szczur konfederat. Szczur konfederat nie ma dostępu do dźwigni ze względu na przezroczystą akrylową ściankę przed przegrodą.
- Przeprowadź pojedynczą sesję, identyczną z sesjami w fazie treningowej dla sekwencji biegaj-ciągnij (sekcja 3.6). Zakończ sesję dzienną, gdy każdy szczur zdobędzie 30 peletów. Umieść jeden pelet nagrody w podajniku pokarmu po stronie szczura konfederata, szczególnie podczas sesji w warunku pojedynczym.
- W sesjach w parach podawaj pelet nagrody szczurowi konfederatowi podczas ITI szczura badanego, aby utrzymać konfederata w pobliżu przegrody.
4. Analiza danych
- Wskaźnik dokładności wykonania
- Nagraj filmy z ruchu pociągania dźwigni przez szczury, używając kamery wideo umieszczonej w pobliżu ścianki zewnętrznej aparatury. Po zakończeniu wszystkich sesji potwierdź ocenę poprzez analizę klatka po klatce nagrań wideo przy użyciu odpowiedniego oprogramowania do odtwarzania wideo.
- Oceń poprzez obserwację wizualną eksperymentatora podczas eksperymentu, czy ruch pociągania szczura w danej próbie był pierwszym trafnym uderzeniem (first-hit), czy nie.
UWAGA: Próba z pierwszym trafnym uderzeniem jest definiowana jako próba, w której szczury zdołały chwycić i pociągnąć w dół dźwignię podczas pierwszej próby kontaktu z dźwignią. - Oblicz wskaźniki pierwszych trafnych uderzeń dla każdego osobnika jako proporcję prób z pierwszym trafnym uderzeniem do wszystkich prób w każdej sesji (dla fazy treningowej biegania i pociągania) lub w każdej fazie (dla faz testowych) do wykorzystania w analizie.
- Wskaźniki szybkości wykonania
- Oblicz czas potrzebny na ukończenie próby na podstawie wartości przełącznika dozownika peletu: czas potrzebny na ukończenie próby = (czas naciśnięcia przełącznika) - (czas otwarcia drzwi). Następnie podziel czas potrzebny na ukończenie próby na trzy sekcje, korzystając z wartości z czujników podczerwieni (Rysunek 5).
UWAGA: Latencja startu (Rysunek 5a) jest definiowana jako czas od otwarcia drzwi do dotarcia szczura do pierwszego czujnika. Podobnie, czas biegu (Rysunek 5b) to czas od dotarcia do pierwszego czujnika do dotarcia do drugiego czujnika. Latencja pociągnięcia dźwigni (Rysunek 5c) to czas od dotarcia do drugiego czujnika do momentu naciśnięcia przełącznika dozownika. - Do analizy wykorzystaj wyłącznie czasy trwania prób z pierwszym trafnym uderzeniem. Oblicz wartości mediany dla każdego osobnika dla każdej sesji (sesji treningowych) i każdej fazy (faz testowych) do analizy.
- Oblicz czas potrzebny na ukończenie próby na podstawie wartości przełącznika dozownika peletu: czas potrzebny na ukończenie próby = (czas naciśnięcia przełącznika) - (czas otwarcia drzwi). Następnie podziel czas potrzebny na ukończenie próby na trzy sekcje, korzystając z wartości z czujników podczerwieni (Rysunek 5).
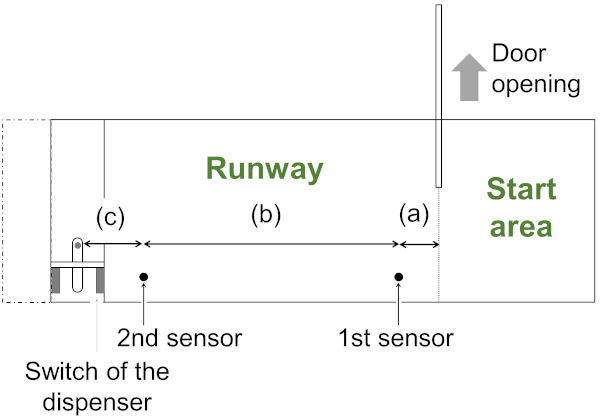
Rysunek 5: Pomiar wskaźników szybkości wykonania zadania. (a) Latencja startu: czas od otwarcia drzwi do dotarcia szczura do pierwszego czujnika. (b) Czas biegu: czas od dotarcia szczura do pierwszego czujnika do jego dotarcia do drugiego czujnika. (c) Latencja pociągnięcia dźwigni: czas od dotarcia szczura do drugiego czujnika do zakończenia reakcji pociągnięcia dźwigni. Rysunek zmodyfikowany na podstawie pracy Sekiguchi i Hata12. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
- Analiza statystyczna
- Dla wskaźników w fazie treningowej sekwencji „run-and-pull” należy przeprowadzić jednoczynnikową analizę wariancji z powtarzanymi pomiarami (ANOVA), przyjmując liczbę sesji jako czynnik wewnątrzobiektowy dla każdego wskaźnika.
- Dla wskaźników w fazie testowej należy przeprowadzić dwuczynnikową analizę wariancji z powtarzanymi pomiarami (ANOVA), przyjmując numer fazy (faza 1 lub 2) oraz warunek (para lub pojedynczo) jako czynniki wewnątrzobiektowe dla każdego wskaźnika w fazach testowych. Istotność statystyczną ustalono na poziomie α = 0.05.
Wyniki
Faza treningowa dla sekwencji biegu i pociągania
Rysunek 6 przedstawia średnie ± błąd standardowy średniej (SEM) wyników z fazy treningowej dla sekwencji biegu i ciągnięcia. Średni wskaźnik pierwszego trafienia (Rysunek 6A) stopniowo wzrastał podczas pierwszej połowy fazy treningowej, a następnie zatrzymał się na poziomie około 85%. Wyniki analizy ANOVA wykazały, że główny efekt liczby sesji był istotny (F(7,63) = 3.74, p = 0.002, η2G = 0.211). Porównania wielokrotne ujawniły brak istotnych różnic pomiędzy czterema ostatnimi sesjami (wszystkie wartości p > 0.60).
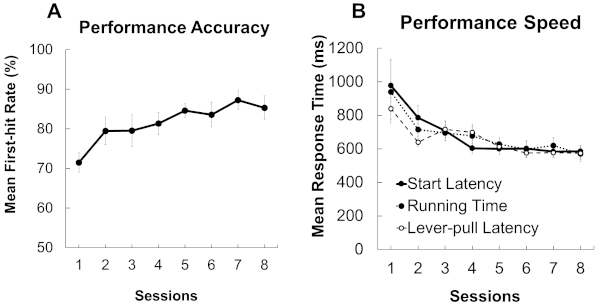
Rycina 6: Średnie wyniki ± SEM z sesji w fazie treningowej dla sekwencji biegaj-i-ciągnij (run-and-pull). (A) Wskaźnik dokładności wykonania. (B) Wskaźniki szybkości wykonania. Rycina została zmodyfikowana na podstawie pracy Sekiguchi i Hata12. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Analogicznie, wskaźniki szybkości wykonania zadania (Rysunek 6B; latencja startu, czas biegu oraz latencja pociągnięcia dźwigni) stale spadały podczas pierwszych czterech sesji, a wszystkie wartości ustabilizowały się na poziomie około 600 ms w trakcie czterech ostatnich sesji. Dla wszystkich wskaźników analiza ANOVA wykazała, że główne efekty liczby sesji były istotne (latencja startu: (F(7,63) = 6.21, p < 0.001, η2G = 0.279; czas biegu: (F(7,63) = 3.98, p = 0.001, η2G = 0.170; latencja pociągnięcia dźwigni: (F(7,63) = 11.85, p < 0.001, η2G = 0.350). Porównania wielokrotne między sesjami nie wykazały istotnych różnic w trakcie czterech ostatnich sesji dla wszystkich pomiarów (wszystkie wartości p > 0.12).
Rycina 7 przedstawia średnie wartości ± SEM uzyskane podczas sesji w fazie testowej. W odniesieniu do wskaźnika dokładności wykonania, wskaźnik pierwszego trafienia (Rycina 7A) w fazach par był niższy niż w fazach pojedynczych. Ponadto wskaźnik pierwszego trafienia w drugiej fazie był wyższy niż w pierwszej fazie w obu warunkach. Wyniki analizy ANOVA wykazały istotne główne efekty warunku (F(1,9) = 6.25, p = 0.034, η2G = 0.114) oraz faz (F(1,9) = 14.1, p = 0.005, η2G = 0.147), natomiast interakcja nie była istotna (F(1,9) = 0.15, p = 0.703, η2G = 0.002).
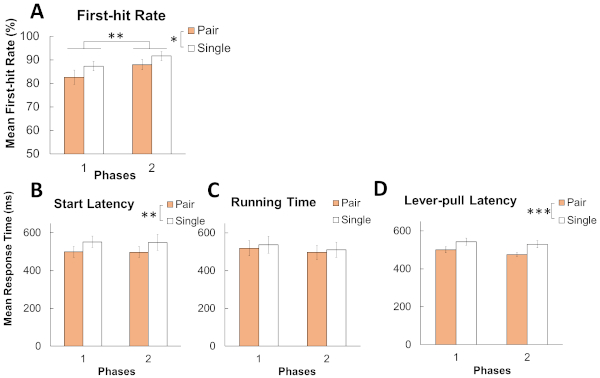
Rycina 7: Średnie wyniki ± SEM z sesji w fazie testowej. Wskaźnik dokładności wykonania (A: wskaźnik pierwszego trafienia) oraz wskaźniki szybkości wykonania (B: latencja startu, C: czas biegu oraz D: latencja pociągnięcia dźwigni). *** p < 0.001, ** p < 0.01, * p < 0.05. Rycina została zmodyfikowana na podstawie pracy Sekiguchi i Hata12. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
W odniesieniu do wskaźników szybkości wykonania, latencja startu w fazach parowych (Rycina 7B) była krótsza niż w fazach pojedynczych. Wyniki analizy ANOVA wykazały, że dla latencji startu istotny był jedynie główny efekt warunku (F(1,9) = 23.1, p = 0.001, η2G = 0.065), podczas gdy główny efekt faz oraz interakcja nie były istotne (fazy: F(1,9) = 0.03, p = 0.878, η2G < 0.001; interakcja: F(1,9) = 0.002, p = 0.970, η2G < 0.001). Podobnie różnica między warunkami została zaobserwowana dla latencji pociągnięcia dźwigni (Rycina 7D). Analogicznie jak w przypadku latencji startu, dla latencji pociągnięcia dźwigni ANOVA wykazała istotny główny efekt warunku (F(1,9) = 23.3, p = 0.001, η2G = 0.183). Nie stwierdzono istotnego głównego efektu faz (F(1,9) = 2.72, p = 0.133, η2G = 0.028) ani interakcji (F(1,9) = 1.07, p = 0.327, η2G = 0.002). W przypadku czasu biegu nie odnotowano istotnego efektu (Rycina 7C, warunek: F(1,9) = 3.03, p = 0.116, η2G = 0.004; fazy: F(1,9) = 4.46, p = 0.063, η2G = 0.010; interakcja: F(1,9) = 0.29, p = 0.602, η2G < 0.001).
Rysunek 1: Schemat aparatury użytej w niniejszym protokole. Centralna przegroda dzieli pudełko na dwa pola. Po każdej stronie pudełka znajdują się gilotynowe drzwiczki, które dzielą pole na obszar startowy i biegowy. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Rycina 2: Centralna przegroda aparatury. Szczury mogą chwycić drążek i pociągnąć dźwignię przez szczelinę w przegrodzie. Przełącznik dozownika peletu jest umieszczony pod dźwignią, a jedno pociągnięcie dźwigni skutkuje wydaniem jednej granulki peletu. Rycina została zmodyfikowana na podstawie pracy Sekiguchi i Hata12. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Rycina 3: Schemat blokowy procedury eksperymentalnej. Szczury poddawane są fazom treningowym i testowym w podanej kolejności. Rycina została zmodyfikowana na podstawie pracy Sekiguchi i Hata12. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Rycina 4: Opis poszczególnych warunków testowych. W fazach pojedynczych szczur badany wykonywał zadanie samodzielnie. W fazach parowych szczura konfederata umieszczono w korytarzu po przeciwnej stronie niż szczur badany. Przezroczysta ściana przed przegrodą uniemożliwia szczurowi konfederatowi dostęp do dźwigni. Rycina została zmodyfikowana na podstawie pracy Sekiguchi i Hata12. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Rycina 5: Pomiar wskaźników szybkości wykonania zadania. (a) Latencja startu: czas od otwarcia drzwiczek do dotarcia szczura do pierwszego czujnika. (b) Czas biegu: czas od dotarcia szczura do pierwszego czujnika do dotarcia do drugiego czujnika. (c) Latencja pociągnięcia dźwigni: czas od dotarcia szczura do drugiego czujnika do zakończenia reakcji pociągnięcia dźwigni. Rycina została zmodyfikowana na podstawie pracy Sekiguchi i Hata12. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Zadanie to pozwala nam ocenić wpływ samej obecności innych osób na szybkość i dokładność działania motorycznego. Rozmiary efektów przedstawione w niniejszym dokumencie byłyby wystarczająco duże. Przeliczyliśmy η2 (w tym eksperymencie nie było dużej różnicy między η2 a η 2G), a te wielkości efektu są uważane za średnie (η2 > 0,06) lub duże (η2 > 0,14) zgodnie z kryterium przedstawionym przez Cohena18. Z tego powodu uznaliśmy, że różnice zaobserwowane w tym badaniu są znaczące i wiarygodne. Wyniki eksperymentu były prawie zgodne z wynikami badań na ludziach 4,10 oraz wynikiem badania Ogury i Matsushimy14, w którym badano wpływ współdziałania na szybkość i dokładność biegania i dziobania piskląt. Chociaż badania nad facylitacją społeczną u ludzi badały wpływ warunków społecznych zarówno na szybkość, jak i dokładność zachowania, większość wcześniejszych badań na zwierzętach nie badała wpływu samej obecności na dokładność działania. Przedstawiony w niniejszym dokumencie protokół zapewnia lepszy model zwierzęcy do badania wpływu samej obecności na wydajność motoryczną.
Jako ograniczenie, różnica między współczynnikiem pierwszego trafienia w warunkach parowych i pojedynczych może być interpretowana jako efekt praktyki. Pomimo przypuszczalnie wystarczającego treningu, może być miejsce na poprawę wydajności szczurów. Nie było już żadnych zmian we wskaźnikach dokładności i szybkości wykonania w ostatnich czterech sesjach fazy treningowej dla sekwencji run-and-pull. Jednak w fazach testowych współczynnik pierwszych trafień stale wzrastał. Wzrost ten może być interpretowany jako efekt praktyki. Dodatkowo, ten eksperymentalny projekt (projekt A-B-A-B) nie może wykluczyć efektu praktyki z wpływu warunków. Przyszłe eksperymenty powinny (1) wykorzystywać projekt A-B-B-A lub inny odpowiedni projekt eksperymentalny, aby wykluczyć efekt praktyki, oraz (2) rozważyć wydłużenie fazy treningu dla sekwencji biegnij i ciągnij.
Protokół ten może być stosowany w badaniu z projektem międzyobiektowym, chociaż odpowiedź na pytania "Który projekt jest odpowiedni? W obrębie tematu lub między tematem?" byłoby rozpatrywane indywidualnie dla każdego przypadku. Ogólnie rzecz biorąc, badanie wykorzystujące projekt międzyobiektowy może wykluczyć efekt praktyki, który można zaobserwować w tym badaniu. Jednak projekt międzyosobowy wymaga większej liczby zwierząt i więcej czasu na jedno badanie (tj. w przypadku korzystania z protokołu opisanego w tym artykule, potrzeba 7-8 godzin dziennie, aby przetestować wszystkie szczury w ciągu 1 dnia przy użyciu jednego urządzenia). Badanie, w którym stosuje się projekt wewnątrzosobowy, może zmniejszyć liczbę zwierząt wymaganych i czas potrzebny na jedno badanie, ale eksperymentator musi kontrolować efekt praktyki. Czas i koszt powinny być dokładnie rozważone, zanim eksperymentator wybierze projekt eksperymentu.
Z niewielkimi modyfikacjami, zadanie to może być zastosowane do zbadania wpływu współdziałania lub facylitacji społecznej przez lustro10 i inne sytuacje społeczne, które badano u ludzi, na szybkość i dokładność wydajności szczurów. Aby zbadać efekt współdziałania, rozdziel dźwignię w środkowej przegrodzie na dwie dźwignie i ułóż dźwignie tak, aby każda dźwignia mogła być pociągnięta po jednej stronie pudełka. Aby zbadać efekt użycia lustra, zmień akrylową przezroczystą ścianę po stronie konfederata na lustro. W ten sam sposób można było zbadać efekt niewidzialnego konfederata za nieprzezroczystym murem. Przyszłe badania z wykorzystaniem tych modyfikacji przyczynią się do kompleksowego zrozumienia facylitacji społecznej poprzez wieloaspektowe porównanie sprawności motorycznej między gatunkami.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca była wspierana przez Grant-in-Aid for Scientific Research (KAKENHI) dla Y.S. (numer grantu: JP18J10733) od Japońskiego Towarzystwa Promocji Nauki.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 45 mg bezpyłowego granulatu precyzyjnego gryzoń, oczyszczony | Bio-Serv. | F0021 | |
| Arduino Mega 2560 REV3 | Arduino S.r.l. | Brak | |
| Dozownik granulek z podajnikiem (szczury) | Aparat Harvard | 76-0353 | |
| Power DVD 14 | CyberLink | Brak | Użyj odpowiedniego programu do odtwarzania wideo, który umożliwia odtwarzanie klatka po klatce. |
| Aparatura do zadań typu run-and-pull | Bio Medica Corp. | Przedmiot wykonany na zamówienie | Zestaw aparatury (skrzynki), sprężarki powietrza i urządzenia sterującego cylindrami pneumatycznymi, które odbiera dane wejściowe z Arduino. |
| Kamera wideo | JVC | GZ-R300 |
Bibliografia
- Allport, F. H. Social Psychology. , Houghton Mifflin. New York, NY. (1924).
- Guerin, B. Social Facilitation. , Cambridge University Press. Cambridge, UK. (1993).
- Zajonc, R. B. Social facilitation. Science. 149 (3681), 269-274 (1965).
- Markus, H. The effect of mere presence on social facilitation: an unobtrusive test. The Journal of Social Psychology. 14 (4), 389-397 (1978).
- Schmitt, B. H., Gilovich, T., Goore, N., Joseph, L. Mere presence and social facilitation: one more time. The Journal of Experimental Social Psychology. 22 (3), 242-248 (1986).
- Pinto, A., Oates, J., Grutter, A., Bshary, R. Cleaner wrasses Labroides dimidiatus are more cooperative in the presence of an audience. Current Biology. 21 (13), 1140-1144 (2011).
- Gipson, C. D., et al. Social facilitation of d-amphetamine self-administration in rats. Experimental and Clinical Psychopharmacology. 19 (6), 409-419 (2011).
- Levine, J. M., Zentall, T. R. Effect of a conspecific's presence on deprived rats' performance: social facilitation vs distraction/imitation. Animal Learning & Behavior. 2 (2), 119-122 (1974).
- Reynaud, A. J., Guedj, C., Hadj-Bouziane, F., Meunier, M., Monfardini, E. Social facilitation of cognition in Rhesus monkeys: audience vs. coaction. Frontiers in Behavioral Neuroscience. 9, 328(2015).
- Innes, J. M., Gordon, M. I. The effects of mere presence and a mirror on performance of a motor task. The Journal of Social Psychology. 125 (4), 479-484 (1985).
- Bond, C. F., Titus, L. J. Social facilitation: a meta-analysis of 241 studies. Psychological Bulletin. 94 (2), 265-292 (1983).
- Strauss, B. Social facilitation in motor tasks: a review of research and theory. Psychology of Sport and Exercise. 3 (3), 237-256 (2002).
- Sekiguchi, Y., Hata, T. Effects of the mere presence of conspecifics on the motor performance of rats: higher speed and lower accuracy. Behavioural Processes. 159, 1-8 (2019).
- Ogura, Y., Matsushima, T. Social facilitation revisited: increase in foraging efforts and synchronization of running in domestic chicks. Frontiers in Neuroscience. 5, 91(2011).
- Dorfman, A., Nielbo, K. L., Eilam, D. Traveling companions add complexity and hinder performance in the spatial behavior of rats. PLoS One. 11, e0146137(2016).
- Takano, Y., Ukezono, M. An experimental task to examine the mirror system in rats. Scientific Reports. 4, 6652(2014).
- Metz, G. A., Whishaw, I. Q. Skilled reaching an action pattern: stability in rat (Rattus norvegicus) grasping movements as a function of changing food pellet size. Behavioural Brain Research. 116 (2), 111-122 (2000).
- Cohen, J. Statistical Power Analysis for the Behavioral Sciences. , Second Edition, Erlbaum. Hillsdale, NJ. (1988).
Przedruki i uprawnienia
