Obecny jest tutaj szczegółowy protokół użycia zarodków danio pręgowanego Tg(vtg1: mCherry) do wykrywania efektów estrogenowych. Protokół obejmuje rozmnażanie ryb i leczenie zarodków, a także kładzie nacisk na wykrywanie, dokumentowanie i ocenę sygnałów fluorescencyjnych indukowanych przez związki zaburzające funkcjonowanie układu hormonalnego (EDC).
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Wykorzystanie zarodków zebry danio pręgowanego TG (Vtg1:mcherry) do testowania estrogennego działania związków zaburzających gospodarkę hormonalną
W tym artykule
Podsumowanie
Streszczenie
W środowisku jest wiele związków zaburzających funkcjonowanie układu hormonalnego (EDC), zwłaszcza substancji estrogenowych. Wykrycie tych substancji jest trudne ze względu na ich różnorodność chemiczną; W związku z tym stosuje się coraz więcej metod wykrywania efektów, takich jak organizmy biomonitorujące/bioindykujące wrażliwe na efekt estrogenowy. Te organizmy biomonitorujące obejmują kilka modeli ryb. Protokół ten obejmuje wykorzystanie linii transgenicznej Tg (vtg1: mCherry) danio pręgowanego jako organizmu do biomonitoringu, w tym rozmnażania ryb i leczenia zarodków, z naciskiem na wykrywanie, dokumentację i ocenę sygnałów fluorescencyjnych indukowanych przez EDC. Celem pracy jest wykazanie wykorzystania zarodków linii transgenicznej Tg(vtg1: mCherry) do wykrywania efektów estrogenowych. Praca ta dokumentuje zastosowanie transgenicznych zarodków danio pręgowanego Tg(vtg1: mCherry) do wykrywania efektów estrogenowych poprzez testowanie dwóch substancji estrogenowych, α- i β-zeralenolu. Opisany protokół jest jedynie podstawą do projektowania testów; Metoda badawcza może być zmieniana w zależności od punktów końcowych badania i próbek. Co więcej, można ją łączyć z innymi metodami testowania, ułatwiając w ten sposób przyszłe wykorzystanie linii transgenicznej.
Wprowadzenie
Istnieje znaczna liczba związków zaburzających gospodarkę hormonalną (EDC), które należą do najgroźniejszych substancji w naszym środowisku. Są to głównie związki estrognowe zanieczyszczające wodę z zasobów naturalnych. Różnorodność chemiczna substancji należących do tej grupy utrudnia badanie ich obecności, ponieważ do ich wykrywania wymagane są różne metody analityczne. Na podstawie struktury chemicznej bardzo trudno jest określić, czy dana substancja faktycznie może działać jak estrogen. Ponadto substancje te nigdy nie występują w środowisku w czystej formie, zatem na ich działanie mogą wpływać również inne związki1. Problem ten można rozwiązać za pomocą metod wykrywania efektów, takich jak wykorzystanie organizmów będących biomonitorami/bioindykatorami wykazującymi efekty estrognowe2,3,4,5.
W ostatnim czasie opracowano szereg systemów testowych opartych na liniach komórkowych6 oraz drożdżach2,3 w celu wykrywania efektów estrogennych. Jednakże systemy te zazwyczaj pozwalają jedynie na wykrycie wiązania substancji z receptorami estrogenowymi2,3. Ponadto nie są one w stanie modelować złożonych procesów fizjologicznych w organizmie ani wykrywać faz cyklu życiowego wrażliwych na hormony, co często prowadzi do błędnych wyników.
Wiadomo, że niektóre geny w organizmach żywych reagują w sposób wrażliwy na estrogen7. Wykrywanie produktów genowych metodami biologii molekularnej jest możliwe również na poziomie białek lub mRNA8,9, lecz zazwyczaj wiąże się z uśmierceniem zwierząt. Przepisy dotyczące ochrony zwierząt stały się bardziej rygorystyczne, co zwiększyło zapotrzebowanie na alternatywne systemy testowe, które minimalizują liczbę oraz cierpienie zwierząt wykorzystywanych w eksperymentach, lub na zastąpienie modelu zwierzęcego innym systemem modelowym10. Dzięki odkryciu białek fluorescencyjnych i stworzeniu linii biomarkerowych, technologie transgeniczne stanowią dobrą alternatywę11. Z wykorzystaniem tych linii można badać aktywację genu wrażliwego na estrogen in vivo.
Wśród kręgowców potencjał ryb w ocenie ryzyka środowiskowego jest wyjątkowy. Oferują one wiele zalet w porównaniu z modelami ssów: jako organizmy wodne są w stanie absorbować zanieczyszczenia całym ciałem, dają liczne potomstwo, a niektóre z ich gatunków charakteryzują się krótkim czasem generacji. Ich układ hormonalny oraz procesy fizjologiczne wykazują duże podobieństwo do innych kręgowców, a nawet ssaków, w tym ludzi12.
Znane są również szeregi genów służących do wykrywania efektów estrogennych u ryb. Najważniejsze z nich to receptory estrogenowe, aromataza-b, choriogenina-H oraz witellogenina (vtg)7,13. Niedawno stworzono również kilka linii biosensorów produkujących estrogeny na podstawie modeli ryb wykorzystywanych w laboratorium, takich jak zebrafish (Danio rerio)4,5,14,15,16,17. Główną zaletą zebrafish w tworzeniu linii biosensorów jest przezroczystość ciała embrionów i larw, dzięki czemu sygnał fluorescencyjnego reportera można łatwo badać in vivo bez uśmiercania zwierzęcia10. Poza ochroną zwierząt jest to również cenna cecha, ponieważ pozwala na badanie reakcji tego samego osobnika w różnych odstępach czasu podczas traktowania18.
W tych eksperymentach wykorzystano transgeniczną linię rybek danio pręgowanych z reporterem witellogeniny15. Konstrukt transgenu użyty do stworzenia Tg(vtg1:mCherry) posiada długi (3,4 kbp) naturalny promotor witellogeniny-1. Receptor estrogenowy (ER) jest białkiem wzmacniającym aktywowanym przez ligandy, reprezentującym superfamilię receptorów steroidowych/jądrowych. ER wiąże się z wysokim powinowactwem do specyficznych sekwencji DNA zwanych elementami odpowiedzi na estrogeny (EREs) i transaktywuje ekspresję genów w odpowiedzi na estradiol oraz inne substancje estrogenne, zatem większa liczba ERE w promotorze wywołuje silniejszą odpowiedź19. W regionie promotorowym konstruktu transgenu Tg(vtg1:mCherry) znajduje się 17 miejsc ERE, co ma na celu odtworzenie ekspresji natywnego genu vtg15. U dojrzałych płciowo samic obserwuje się ciągłą ekspresję sygnału fluorescencyjnego. Jednak u samców i zarodków ekspresja w wątrobie jest widoczna jedynie po podaniu substancji estrogennych (Rycina 1).

Rycina 1: Czerwony sygnał fluorescencyjny w wątrobie dorosłych danio pręgowanych oraz embrionów w 5 dpf z linii transgenicznej vtg1:mCherry po indukcji 17-ß-estradiolem (E2).U samic oraz u samców traktowanych E2 (ekspozycja 25 µg/L przez 48 h) widoczna jest silna fluorescencja wątroby, nawet przez pigmentowaną skórę. Brak sygnału fluorescencyjnego jest widoczny u nietraktowanego samca (A). Po indukcji E2 (ekspozycja 50 µg/L w czasie 0-120 hpf) czerwony sygnał fluorescencyjny w wątrobie embrionów w 5 dpf jest również obserwowalny, podczas gdy nie występuje on w embrionach kontrolnych (B). Podczas gdy sygnał fluorescencyjny jest stale obecny u dorosłych samic, do wykrywania efektów estrogennych nadają się przede wszystkim samce i embriony tej linii. (BF: pole jasne, mCherry: widok z czerwonym filtrem fluorescencyjnym, pojedyncze obrazy surowe, pasek skali A: 5 mm, pasek skali B: 250 µm) Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Podobnie jak endogenna witellogenina, reporter mCherry jest ekspresowany wyłącznie w wątrobie. Ponieważ witellogenina jest produkowana tylko w obecności estrogenu, w próbach kontrolnych nie występuje sygnał fluorescencyjny. Dzięki temu, że ekspresja zachodzi tylko w wątrobie, ocena wyników jest znacznie łatwiejsza15.
Czułość i użyteczność zarodków tej linii zostały zbadane w odniesieniu do różnych mieszanin związków estrogennych, a także próbek środowiskowych15,20, a w większości przypadków udokumentowano zależności dawka-odpowiedź (Rysunek 2). Jednak w przypadku substancji silnie toksycznych, głównie hepatotoksycznych (np. zearalenonu), w wątrobie traktowanych zarodków może być widoczny tylko bardzo słaby sygnał fluorescencyjny, a maksymalna intensywność wywołanego sygnału fluorescencyjnego może zostać osiągnięta w bardzo wąskim zakresie stężeń, co utrudnia ustalenie zależności dawka-efekt20.

Rycina 2: Wykres zależności odpowiedzi od dawki (A) oraz obrazy fluorescencyjne (mCherry) wątroby (B) poddanej działaniu 17-α-etynyestradiolu (EE2) u 5-dniowych larw vtg1:mCherry. Wyniki przedstawiono jako zintegrowaną gęstość obliczoną na podstawie natężenia sygnału i wielkości obszaru zajętego (±SEM, n = 60). Wartość 100% odnosi się do zaobserwowanego maksimum. Natężenie sygnału fluorescencyjnego wzrastało stopniowo wraz ze wzrostem stężenia. Pasek skali = 250 µm. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
W środowisku obecnych jest kilka substancji estrogennych, takich jak 17-β-estradiol (stężenie w środowisku: 0.1–5.1 ng/L)21, 17-α-etynyloestradiol (stężenie w środowisku: 0.16–0.2 µg/L)22, zearalenon (stężenie w środowisku: 0.095–0.22 µg/L)23 oraz bisfenol A (stężenie w środowisku: 0.45–17.2 mg/L)24. Podczas badania tych substancji w czystej postaci aktywnej przy użyciu zarodków transgenicznych mCherry, najniższe zaobserwowane stężenia wywołujące efekt (LOEC) w celu wykrycia sygnału fluorescencyjnego wynosiły 100 ng/L dla 17-ß-estradiolu, 1 ng/L dla 17-α-etynyloestradiolu, 100 ng/L dla zearalenonu oraz 1 mg/L dla bisfenolu A (ekspozycja przez 96–120 hpf), co jest wartością bardzo zbliżoną lub mieszczącą się w zakresie stężeń tych substancji w środowisku15. Linia transgeniczna Tg(vtg1:mCherry) może pomóc w wykrywaniu estrogenowości w próbkach ścieków po bezpośredniej ekspozycji. Linia ta wykazuje czułość porównywalną do powszechnie stosowanego testu estrogenowego z użyciem drożdży, czyli testu bioluminescencyjnego z użyciem drożdży (BLYES)15. Przy pomocy tej linii potwierdzono działanie ochronne beta-cyklodekstryn przeciwko toksyczności indukowanej zearalenonem z wykorzystaniem mieszanin chemicznych20.
W niedawnym raporcie zastosowanie linii transgenicznej in vivo zostało zademonstrowane przy użyciu dwóch estrogennych metabolitów zearalenonu (ZEA): α- i β-zearalenolu (α-ZOL i β-ZOL)25. Podstawowy protokół jest odpowiedni do badania efektów estrogennych kilku związków lub próbek środowiskowych na embrionach Tg(vtg1:mCherry).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Protokół dotyczący zwierząt został zatwierdzony zgodnie z węgierską ustawą o ochronie zwierząt, a wszystkie badania zostały ukończone przed momentem, w którym traktowane osobniki osiągnęłyby etap swobodnego karmienia.
1. Pobranie i obróbka zarodków
- Utrzymywać rybki danio Tg(vtg1:mCherry) w temperaturze 25,5 ± 0,5 °C, przy pH = 7 ± 0,2, przewodności między 525 ± 50 μS/m, poziomie tlenu ≥80% nasycenia oraz cyklu 14 h światła i 10 h ciemności.
- Napełnić zbiorniki do tarła wodą systemową i przygotować ryby do rozrodu po południu w dniu poprzedzającym zbiór jaj.
- Umieścić samca i samicę w zbiorniku i oddzielić je za pomocą przegrody.
- Usunąć przegrody ze zbiorników w momencie włączenia światła następnego ranka. Sprawdzać zbiorniki do tarła pod kątem obecności jaj co 15–20 min.
- Zebrać wszystkie embriony za pomocą sitka do herbaty lub gęsto tkanej drobnej siatki i połączyć je w jednej dużej szalce Petriego z buforem E3 (5 mM chlorku sodu, 0,17 mM chlorku potasu, 0,33 mM chlorku wapnia, 0,33 mM siarczanu magnezu) lub czystą wodą systemową.
- Umieścić embriony w inkubatorze ustawionym na 25,5 ± 0,5 °C.
- Po 1–1,5 h usunąć i odrzucić niezapłodnione lub nieprawidłowo dzielące się jaja za pomocą plastikowej pipety transferowej pod mikroskopem stereoskopowym.
UWAGA: Jaja niezapłodnione są nieprzezroczyste; jaja zapłodnione są przezroczyste. Aby rozpocząć traktowanie na późniejszym etapie rozwoju, należy zwrócić uwagę na prawidłowy rozwój osobników poddawanych badaniu. - Umieścić wybrane embriony w naczyniach do traktowania (np. w szalkach Petriego lub płytkach do hodowli tkankowej), które zostały wcześniej oznakowane i napełnione różnymi stężeniami substancji testowej.
- Inkubować embriony w temperaturze 25,5 ± 0,5 °C do końca eksperymentu.
UWAGA: Embriony mogą wykazywać znaczną indywidualną wrażliwość na różne związki estrogenowe, dlatego w celu prawidłowej oceny eksperymentu zaleca się użycie co najmniej 15 embrionów w co najmniej trzech powtórzeniach traktowania. Przy wyborze naczynia należy pamiętać, że rozwój jednego embrionu wymaga co najmniej 200 µL wody26. W tym eksperymencie embriony inkubowano do 120 hpf w temperaturze 25,5 ± 0,5 °C. - Odświeżyć roztwór testowy, jeśli jest to konieczne dla utrzymania stężenia traktowania. Zachować ostrożność podczas wymiany roztworu testowego, aby uniknąć uszkodzenia embrionów.
UWAGA: W trakcie eksperymentu można również badać śmiertelność lub objawy subletalne. Użyte stężenia powinny pozostać jak najstabilniejsze, aby uzyskać wiarygodne wyniki. Można to łatwo osiągnąć poprzez odświeżanie roztworów testowych. Częstotliwość odświeżania może się różnić w zależności od substancji testowej. Dlatego zaleca się sprawdzenie stężenia substancji testowej za pomocą pomiarów analitycznych w celu ustalenia częstotliwości wymiany roztworów.
2. Przygotowanie larw do fotografowania
- Wcześniej przygotuj 4% metylocelulozę z MS-222 (trikainometansulfonianem).
- Aby to zrobić, dodaj 4 mg/mL MS-222 do 100 mL wody dwukrotnej destylowanej do końcowego stężenia 0,168 mg/mL i schłodź roztwór do 4 ˚C. Następnie dodaj 4 g metylocelulozy. Mieszaj za pomocą mieszadła magnetycznego, a następnie pozostaw w 4 ˚C przez noc.
- Następnego dnia ponownie wymieszaj roztwór; powinien być on gotowy do użycia. Jeśli metyloceluloza nie rozpuściła się całkowicie, ponownie umieść roztwór w 4 ˚C i odczekaj kilka godzin.
- Za pomocą pipety Pasteura umieść 5-dniowe larwy w czarce Petriego o średnicy 5 cm dla każdej grupy zabiegowej.
- Usuń roztwór zabiegowy z larw za pomocą plastikowej pipety, a następnie napełnij czarkę Petriego 2 mL 0,02% roztworu anestetyka MS-222.
UWAGA: Znieczulenie zazwyczaj działa w czasie krótszym niż minuta. Larwy są znieczulone, jeśli nie odpływają w reakcji na dotyk. Przedawkowanie MS-222 może zabić larwy. - Wypełnij każde pole specjalnie zaprojektowanej 10 cm czarki Petriego 4% metylocelulozą z MS-222 (Rycina 3).
UWAGA: Dwa obszary kwadratowe o wymiarach 1,5 x 1,5 cm na dnie czarki Petriego przyklej za pomocą plastikowych płytek (wysokość 1 mm, szerokość 5 mm). W jednym kwadracie można umieścić obok siebie dwadzieścia larw. Zamiast specjalnie zaprojektowanej czarki Petriego można użyć innego naczynia z niską krawędzią do ustalenia pozycji embrionów.
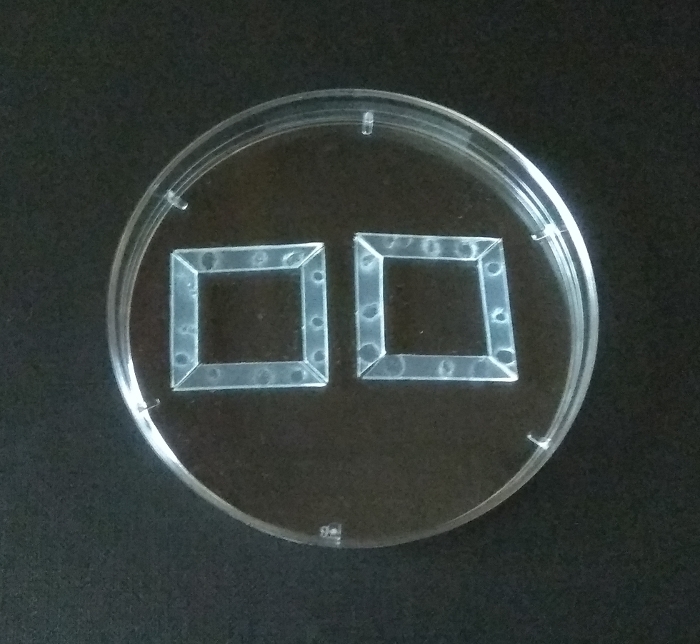
Rycina 3: Szalka Petri o średnicy 10 cm z przyklejonymi kwadratami z plastikowej folii o wymiarach 1,5 x 1,5 cm i grubości 1 mm, służące do przygotowania larw do fotografowania. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
- Przenieś znieczulone larwy do metylocelulozy z niewielką ilością wody w jednym z dwóch kwadratów. Z pierwszego kwadratu przenieś larwy do drugiego kwadratu.
UWAGA: Dzięki temu przeniesieniu 4% metyloceluloza używana do fotografowania nie zostanie rozcieńczona, a larwy nie będą się obracać podczas obrazowania. - W drugim kwadracie obróć i zorientuj larwy na lewym boku, a następnie delikatnie dociśnij je do dna celulozy za pomocą końcówki pipety do mikroładowania uciętej do 2 cm.
UWAGA: Nie należy używać innych końcówek pipet, ponieważ mogą one spowodować obrażenia larw.
3. Mikroskopia
UWAGA: Fotografia nie powoduje śmierci zwierząt. Zwierzęta można wybudzić, usuwając je z metylocelulozy i umieszczając w świeżej wodzie systemowej lub roztworze traktującym, dzięki czemu ten sam osobnik może być badany wielokrotnie w trakcie procesu traktowania.
- Aby ocenić sygnał wyrażonego reportera, wykonaj obrazowanie embrionów przy tym samym kadrze i ustawieniach.
UWAGA: Optymalne pozycjonowanie embrionów opisano w kroku 2.6. Zdjęcia do publikacji wykonano w opisanych warunkach. Pole jasne: powiększenie 60x, czas ekspozycji 6 ms, przysłona 100%, wzmocnienie (Gain): 1,1; zdjęcia fluorescencyjne: powiększenie 60x, czas ekspozycji 300 ms, przysłona: 100%, wzmocnienie (Gain): 1, filtr mCherry, źródło światła fluorescencyjnego: lampa halogenowa z rtęcią. Do wykonywania zdjęć użyto stereomikroskopu fluorescencyjnego, dedykowanej kamery oraz oprogramowania do mikroskopu. - Umieść szalkę Petriego na stoliku mikroskopu.
- Ustaw ostrość na wątrobę embrionu i wykonaj obraz w polu jasnym za pomocą odpowiedniego oprogramowania.
- Przełącz mikroskop na filtr mCherry i wykonaj obraz fluorescencyjny wątroby przy świetle fluorescencyjnym za pomocą odpowiedniego oprogramowania.
UWAGA: Wszystkie etapy obrazowania fluorescencyjnego należy przeprowadzać w ciemności. Nie zmieniaj powiększenia, ostrości ani pozycji embrionu pomiędzy wykonaniem obrazu w polu jasnym a obrazu fluorescencyjnego, co ułatwi późniejszą analizę zdjęć. - Powtarzaj kroki 3.3 i 3.4, aż do momentu wykonania obrazowania wszystkich embrionów biorących udział w eksperymencie.
4. Wyznaczanie gęstości zintegrowanej
UWAGA: Jednym z najlepszych wskaźników do porównywania siły sygnału fluorescencyjnego jest wartość gęstości zintegrowanej (tj. iloczyn pola i średniej wartości szarości). Jednym z najprostszych sposobów wyznaczenia gęstości zintegrowanej jest użycie programu ImageJ27. Program jest dostępny w internecie i może zostać zainstalowany na komputerze.
- Otwórz program ImageJ, a następnie prześlij obraz fluorescencyjny do analizy, przeciągając i upuszczając plik lub klikając Plik|Otwórz (File|Open).
- Kliknij Obraz|Kolor|Rozdziel (Image|Color|Split) kanały, aby rozdzielić obraz uzyskany za pomocą filtra fluorescencyjnego zgodnie z mapą kolorów RGB.
- Pracuj na spektrum obrazu z kanału czerwonego, a pozostałe kanały zamknij.
- Wyznacz w obrazie obszar eliptyczny o podobnej wielkości, aby fałszywe sygnały nie zakłócały oceny. Używając narzędzia Elipsa (Oval), obrysuj obszar wątroby tak dokładnie, jak to możliwe.
- Jeśli sygnał jest słaby, użyj obrazów z mikroskopii świetlnej (tj. pary obrazów w jasnym polu odpowiadającej obrazowi fluorescencyjnemu), aby ustalić położenie wątroby.
- Kliknij Analiza|Pomiar (Analyze|Measure), aby określić natężenie sygnału i wielkość objętego obszaru. Wartość gęstości zintegrowanej jest obliczana automatycznie przez oprogramowanie (kolumna IntDen w tabeli).
- Kontynuuj analizę, powtarzając kroki 4.1–4.6, aż do przeanalizowania wszystkich obrazów fluorescencyjnych wszystkich embrionów w grupie badawczej.
- Zapisz dane, a następnie przeanalizuj wartości gęstości zintegrowanej.
UWAGA: Podczas analizy zawsze wybieraj obszar o tej samej wielkości w obrazach. Wielkość analizowanego obszaru zależy od powiększenia, rozdzielczości obrazu, innych ustawień podczas wykonywania zdjęć itp. Analizę można przyspieszyć lub zwiększyć jej dokładność, korzystając z osobistych makr analitycznych. Na przykład makr można użyć, aby zapewnić, że wybrany obszar w badanych obrazach jest zawsze taki sam. Szczegółowe opisy tworzenia makr umożliwiających optymalną analizę obrazu w zależności od konkretnych ustawień zdjęć znajdują się na stronie internetowej programu ImageJ.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
W eksperymencie przedstawionym w niniejszym manuskrypcie badano efekty dwóch substancji estrogennych w pięciu stężeniach, rozpoczynając od zapłodnienia i trwając przez 5 dni, na embrionach danio pręgowanego Tg(vtg1:mCherry). Zbadaliśmy, czy pod wpływem tych substancji do końca czasu ekspozycji w wątrobie ryb pojawiły się sygnały fluorescencyjne oraz czy istniały różnice w estrogenności obu substancji. Wyniki oceniono na podstawie obrazów fluorescencyjnych oraz wartości gęstości zintegrowanej. Ogólnie obie substa...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Stosowanie biomonitorów/bioindykatorów do działania estrogenowego rozprzestrzenia się w badaniach toksykologicznych. Modele in vivo odgrywają znakomitą rolę, ponieważ w przeciwieństwie do testów in vitro nie tylko dostarczają informacji o odpowiedzi komórki lub receptora, ale także pozwalają na badanie złożonych procesów zachodzących w organizmie. Z danio pręgowanego wyprodukowano kilka linii transgenicznych do badania efektów estrogenowych, z których jedna Tg(vtg1:mCherry) została wykorzystana w tych badaniach....
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca była wspierana przez Narodowe Biuro Badań, Rozwoju i Innowacji (NKFIH) z Narodowego Funduszu Badań, Rozwoju i Innowacji (NKFIA); Umowa o dofinansowanie: NVKP_16-1-2016-0003, projekt EFOP-3.6.3-VEKOP-16-2017-00008 współfinansowany przez Unię Europejską oraz Program Doskonałości Tematycznej NKFIH-831-10/2019 Uniwersytetu Szent István, przyznany przez Ministerstwo Innowacji i Technologii.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 24-dołkowa płytka do hodowli tkankowej | Jet Biofil | TCP011024 | |
| Chlorek wapnia (CaCl2) | Reanal Laborvegyszer Ltd. | 16383-0-27-39 | |
| Oprogramowanie GraphPad Prism 6.01 | GraphPad Software Inc. | ||
| Oprogramowanie ImageJ | National Institutes of Health, USA | Oprogramowanie do publicznego dostępu, do pobrania z: http://imagej.nih.gov/ | |
| Oprogramowanie kalibrowane w pakiecie Leica Application Suite X | Leica Microsystems GmbH. | Użyliśmy oprogramowania opisanego w eksperymentach, ale każde oprogramowanie fotograficzne jest zgodne z testami | |
| mikroskopu stereoskopowego Leica M205 FA, aparatu Leica DFC 7000T | Leica Microsystems GmbH. | Użyliśmy sprzętu opisanego w doświadczeniach, ale każdy fluorescencyjny mikroskop stereoskopowy nadaje się do badań | |
| Siarczan magnezu (MgSO4) | Reanal Laborvegyszer Ltd. | 20342-0-27-38 | |
| mFiltr wiśniowy | Leica Microsystems GmbH. | ||
| Metyloceluloza | Sigma Aldrich Sp. z o.o. | ||
| Końcówka do pipet do mikroładowarek | Eppendorf GmbH. | ||
| Pipeta Pasteura | VWR International LLC. | 612-1684 | |
| Szalka Petriego | Jet Biofil | TCD000060 | |
| Chlorek potasu (KCl) | Reanal Laborvegyszer Ltd. | 18050-0-01-33 | |
| Chlorek sodu (NaCl) | Reanal Laborvegyszer Ltd. | 24640-0-01-38 | |
| Trikanosulfonian (MS-222) | Sigma Aldrich Ltd. | E10521 |
Bibliografia
- Sumpter, J. P. Endocrine Disrupters in the Aquatic Environment : An Overview. Acta Hydrochimica et Hydrobiologica. 33 (1), 9-16 (2005).
- Routledge, E. J., Sumpter, J. P. Estrogenic activity of surfactants and some of their degradation products assessed using a recombinant yeast screen. Environmental Toxicology and Chemistry. 15 (3), 241-248 (1996).
- Sanseverino, J., et al. Use of Saccharomyces cerevisiae BLYES Expressing Bacterial Bioluminescence for Rapid, Sensitive Detection of Estrogenic Compounds. Applied and Environmental Microbiology. 71 (8), 4455-4460 (2008).
- Fetter, E., et al. Effect-directed analysis for estrogenic compounds in a fluvial sediment sample using transgenic cyp19a1b-GFP zebrafish embryos. Aquatic Toxicology. 154, 221-229 (2014).
- Gorelick, D. A., Halpern, M. E. Visualization of estrogen receptor transcriptional activation in zebrafish. Endocrinology. 152 (7), 2690-2703 (2011).
- Rider, C. V., Hartig, P. C., Cardon, M. C., Wilson, V. S. Development of a competitive binding assay system with recombinant estrogen receptors from multiple species. Toxicology Letters. 184 (2), 85-89 (2009).
- Gunnarsson, L., Kristiansson, E., Förlin, L., Nerman, O., Larsson, J. Sensitive and robust gene expression changes in fish exposed to estrogen - a microarray approach. BMC Genomics. 8 (149), 1-9 (2007).
- Vander Ven, L. T. M., et al. Vitellogenin expression in zebrafish Danio rerio evaluation by histochemistry, immunohistochemistry, and in situ mRNA hybridisation. Aquatic Toxicology. 65 (1), 1-11 (2003).
- Bakos, K., et al. Developmental toxicity and estrogenic potency of zearalenone in zebrafish (Danio rerio). Aquatic Toxicology. 136-137, 13-21 (2013).
- Strähle, U., et al. Zebrafish embryos as an alternative to animal experiments - A commentary on the definition of the onset of protected life stages in animal welfare regulations. Reproductive Toxicology. 33 (2), 128-132 (2012).
- Tsang, M. Zebrafish : A Tool for Chemical Screens. Birth Defects Research, Part C. 90 (3), 185-192 (2010).
- Hill, A. J., Teraoka, H., Heideman, W., Peterson, R. E. Zebrafish as a model vertebrate for investigating chemical toxicity. Toxicological Sciences. 86 (1), 6-19 (2005).
- Lee, C., Na, J. G., Lee, K., Park, K. Choriogenin mRNA induction in male medaka, Oryzias latipes as a biomarker of endocrine disruption. Aquatic Toxicology. 61 (3-4), 233-241 (2002).
- Chen, H., et al. Generation of a fluorescent transgenic zebrafish for detection of environmental estrogens. Aquatic Toxicology. 96 (1), 53-61 (2010).
- Bakos, K., et al. Estrogen sensitive liver transgenic zebrafish (Danio rerio) line (Tg(vtg1:mCherry)) suitable for the direct detection of estrogenicity in environmental samples. Aquatic Toxicology. 208, 157-167 (2019).
- Abdelmoneim, A., Clark, C., Mukai, M. Fluorescent reporter zebrafish line for estrogenic compound screening generated using a CRISPR/Cas9-mediated knock-in system. Toxicological Sciences. 173 (2), 336-346 (2019).
- Tong, S. K., et al. A cyp19a1b-GFP (aromatase B) transgenic zebrafish line that expresses GFP in radial glial cells. Genesis. 47 (2), 67-73 (2009).
- Segner, H. Zebrafish (Danio rerio) as a model organism for investigating endocrine disruption. Comparative Biochemistry and Physiology, Part C: Toxicology and Pharmacology. 149 (2), 187-195 (2009).
- Klinge, C. M. Estrogen receptor interaction with estrogen response elements. Nucleic Acids Res. 29 (14), 2905-2919 (2001).
- Faisal, Z., et al. Protective effects of beta-cyclodextrins vs. zearalenone-induced toxicity in HeLa cells and Tg(vtg1:mCherry) zebrafish embryos. Chemosphere. 240, 1-11 (2020).
- Kolpin, D. W., et al. Pharmaceuticals, hormones, and other organic wastewater contaminants in U.S. streams, 1999-2000: A national reconnaissance. Environmental Science and Technology. 36 (6), 1202-1211 (2002).
- Kuch, H. M., Ballschmiter, K. Determination of endocrine-disrupting phenolic compounds and estrogens in surface and drinking water by HRGC-(NCI)-MS in the picogram per liter range. Environmental Science and Technology. 35 (15), 3201-3206 (2001).
- Lundgren, M. S., Novak, P. J. Quantification of phytoestrogens in industrial waste streams. Environmental Toxicology and Chemistry. 28 (11), 2318-2323 (2009).
- Masoner, J. R., Kolpin, D. W., Furlong, E. T., Cozzarelli, I. M., Gray, J. L. Landfill leachate as a mirror of today’s disposable society: Pharmaceuticals and other contaminants of emerging concern in final leachate from landfills in the conterminous United States. Environmental Toxicology and Chemistry. 35 (4), 906-918 (2016).
- Panel on Additives and Products or Substances used in Animal Feed (FEEDA). EFSA Statement on the establishment of guidelines for the assessment of additives from the functional group ‘substances for reduction of the contamination of feed by mycotoxins' 1 EFSA. EFSA Journal. 8 (7), 1-8 (2010).
- Braunbeck, T., et al. Towards an alternative for the acute fish LC(50) test in chemical assessment: the fish embryo toxicity test goes multi-species - an update. Altex. 22 (50), 87-102 (2005).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nature Methods. 9 (7), 671-675 (2012).
- Ober, E. A., Field, H. A., Stainier, D. Y. R. From endoderm formation to liver and pancreas development in zebrafish. Mechanisms of Development. 120 (1), 5-18 (2003).
- Tao, T., Peng, J. Liver development in zebrafish (Danio rerio). Journal of Genetics and Genomics. 36 (6), 325-334 (2009).
- Shier, W. T., Shier, A. C., Xie, W., Mirocha, C. J. Structure-activity relationships for human estrogenic activity in zearalenone mycotoxins. Toxicon. 39 (9), 1435-1438 (2001).
- Panel, E., Chain, F. Appropriateness to set a group health-based guidance value for zearalenone and its modified forms EFSA Panel on Contaminants in the Food Chain (CONTAM). EFSA Journal. 14, 4425(2016).
- Binder, E. M. Managing the risk of mycotoxins in modern feed production. Animal Feed Science and Technology. 133 (1-2), 149-166 (2007).
- Risa, A., Krifaton, C., Kukolya, J., Kriszt, B., Cserháti, M., Táncsics, A. Aflatoxin B1 and Zearalenone-Detoxifying Profile of Rhodococcus Type Strains. Current Microbiology. 75 (7), 907-917 (2018).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
