Ten protokół opisuje efektywną metodę elektroporacji do transfekcji czterech różnych jednostek organoidowych przewodu pokarmowego z większymi plazmidami (do zakresu 10 kB). Można go wykonać w ciągu jednego dnia i nie wymaga intensywnego przygotowania ani specjalnych, kosztownych elektroporacyjnych.
Artykuł metodologiczny
Uniwersalny i skuteczny protokół elektroporacji w inżynierii genetycznej organoidów przewodu pokarmowego
W tym artykule
Podsumowanie
Streszczenie
Elektroporacja to powszechna metoda transfekcji z różnymi rodzajami cząsteczek poprzez elektryczną przenikanie błony plazmatycznej. Wraz z rosnącym wykorzystaniem organoidów jako metody hodowli pierwotnego materiału pacjenta w ostatnich latach, potrzebne są wydajne metody transferu komponentów do inżynierii genetycznej w tym systemie hodowli 3D. Szczególnie w przypadku organoidów skuteczność manipulacji genetycznych zależy od udanej transfekcji. W związku z tym protokół ten został opracowany w celu ułatwienia elektroporacji organoidów i udowodnienia jego uniwersalnej funkcjonalności w różnych jednostkach. Ludzkie organoidy raka jelita grubego, trzustki, wątroby i żołądka zostały z powodzeniem elektroporowane za pomocą małych i dużych plazmidów w porównaniu. Na podstawie wektorów kodowania GFP wydajność transfekcji określono za pomocą FACS. Nie jest konieczne intensywne przygotowanie ogniw ani specjalne, kosztowne do elektroporacji, a protokół można wykonać w ciągu jednego dnia.
Wprowadzenie
W ostatnich latach opracowano nowatorski system hodowli komórek 3D, zwany organoidami, dla różnych normalnych i nowotworowych tkanek. Organoidy są funkcjonalnie i morfologicznie bardzo zbliżone do tkanki, z której pochodzą. Mogą być generowane z różnych gatunków, są łatwo rozszerzalne, stabilne genomowo i modyfikowalne genetycznie, co czyni je idealnym systemem modelowym do badań genetycznych1,2,3. Techniki inżynierii genetycznej, takie jak system CRISPR (Clustered Regularly Interspaced Short Palindromic Repeats)/Cas9, umożliwiają różnorodne manipulacje. Wybór klonów może być realizowany przez zdefiniowane warunki pożywki, na przykład przez wycofanie ligandu WNT dla klonów z nokautem APC (Adenomatosis Polyposis Coli)4,5. Alternatywnie, znaczniki wyboru muszą być wprowadzone przez homologiczną ukierunkowaną naprawę wektora docelowego6,7. Ze względu na fakt, że często konieczne jest wprowadzenie więcej niż jednego plazmidu, skuteczna transfekcja staje się kluczowym parametrem. Dodatkowo, aby zmniejszyć niespecyficzne efekty off-target, pożądana jest przejściowa ekspresja endonukleazy Cas98.
Elektroporacja to stosunkowo prosta metoda transfekcji komórek za pomocą DNA, RNA, białek lub innych makrocząsteczek. Za pomocą impulsów elektrycznych błona komórkowa staje się bardziej przepuszczalna i powoduje zwiększony pobór9. We wcześniej opublikowanym protokole elektroporacji organoidów okrężnicy osiągnięto 30% skuteczność z wektorem eksprymującym białko GFP (zielone białko fluorescencyjne) typu piggy-bac (7,4 kB) w czterodniowej procedurze10. Poniższy protokół został opracowany w celu ułatwienia skutecznej transfekcji nowotworowych lub zdrowych organoidów z dużymi plazmidami kodującymi pojedynczy przewodnik RNA (sgRNA) i sekwencję endonukleazy Cas9 (np. px458 jako wektor o 9,3 kb). Cały proces elektroporacji można przeprowadzić w ciągu jednego dnia, bez specjalnych do elektroporacji i z co najmniej porównywalną wydajnością między różnymi organoidami przewodu pokarmowego, a mianowicie organoidami gruczolakoraka przewodowego trzustki (PDAC), raka jelita grubego (CRC), raka dróg żółciowych (CCC) i raka żołądka (GC).
Protokół
Uzyskano zgodę na etykę od komisji etycznej Uniwersytetu Technicznego w Dreźnie (#EK451122014).
1. Hodowla organoidów i preparaty przed elektroporacją
- Ustanów organoidy przez trawienie tkankowe, jak opisano wcześniej, i rozwiń je za pomocą odpowiadającej im pożywki hodowlanej specyficznej dla jednostki w matrycy podstawowej (przegląd patrz Tabela 1 i Tabela materiałów)11,12,13,14,15,16,17.
UWAGA: W przypadku próbek tkanek ludzkich konieczna jest świadoma zgoda i zatwierdzenie badania przez komisję etyczną. - Wstępnie rozgrzej 48-dołkowe płytki w temperaturze 37 °C do wysiewu po elektroporacji.
- Przygotować pożywkę podstawową bez antybiotyków, jak również pożywkę do hodowli organoidów specyficzną dla danej jednostki bez antybiotyków (patrz Tabela 1), w tym 10 μM Y-27632 i 3 μM CHIR99021,
UWAGA: Odstawienie antybiotyków jest ważne w celu zmniejszenia skutków toksycznych. Y-27632 i CHIR99021 poprawić regenerację komórek10. - Przygotowanie organoidów (patrz Rysunek 1)
- Hodować 5 dołków organoidów na 48-dołkowej płytce na próbkę do elektroporacji w pożywce hodowlanej.
UWAGA: Należy stosować organoidy proliferacyjne (około 2-3 dni po ostatnim rozszczepieniu). - Przygotować 230 μl odczynnika dysocjacyjnego (patrz tabela materiałów), w tym 10 μM Y-27632 na studzienkę.
- Usunąć pożywkę hodowlaną z każdej studzienki i mechanicznie rozdzielić organoidy w 230 μl przygotowanej mieszaniny dysocjacyjnej. Zebrać 5 studzienek na próbkę do elektroporacji w jednej probówce o pojemności 15 ml.
- Mieszać przez wirowanie i inkubować przez 5-15 minut w temperaturze 37 °C, aż do powstania skupisk 10-15 komórek. Dlatego sprawdź dysocjację pod mikroskopem. Zatrzymaj trawienie, dodając podłoże podstawowe bez antybiotyków do 10 ml.
UWAGA: Ten krok jest bardzo ważny! Wydajność elektroporacji zostanie zmniejszona, gdy inkubacja będzie zbyt krótka, ale długie trawienie zmniejszy przeżywalność. - Wirować przy 450 x g przez 5 minut w temperaturze pokojowej, odrzucić supernatant i przemyć dwukrotnie 4 ml buforu do elektroporacji (patrz tabela materiałów).
- Hodować 5 dołków organoidów na 48-dołkowej płytce na próbkę do elektroporacji w pożywce hodowlanej.
2. Elektroporacja
UWAGA: Następujący protokół został opracowany dla elektroporatorów zdolnych do generowania fal prostokątnych oraz oddzielnych sekwencji impulsów poringowych i transferowych (zobacz Rysunek 2). Opcjonalnie wartości impedancji, a także napięcia, prądy i energie przenoszone do próbki mogą być mierzone jako kontrola dla powtarzalnych eksperymentów.
- Zawiesić osad organoidowy w 100 μl buforu do elektroporacji (patrz tabela materiałów) zawierającego 30 μg plazmidowego DNA.
UWAGA: Stężenie zastosowanego plazmidowego DNA powinno przekraczać 5 μg/μL dla optymalnego stężenia soli podczas procesu elektroporacji. Dlatego do przygotowania wektorów zaleca się endofree plasmid maxi kit (patrz tabela materiałów). Łącznie można użyć do 45 μg DNA bez działania cytotoksycznego. - Dozować kompletną mieszaninę DNA-organoid do kuwety elektroporacyjnej o szerokości szczeliny 2 mm bez wytwarzania pęcherzyków powietrza.
- Ustaw parametry elektroporacji zgodnie z Fujii i wsp.10 (patrz Tabela 2, Rysunek 2).
- Lekko wymieszaj komórki bez spieniania, stukając palcem w kuwetę. Umieść kuwetę w komorze kuwety.
- Naciśnij przycisk Ω elektroporatora i zanotuj wartość impedancji.
UWAGA: Impedancja między 30-40 Ω dała najlepsze wyniki. Ogólnie rzecz biorąc, powinien mieścić się w przedziale 30-55 Ω. Jeśli tak nie jest, należy sprawdzić następujące aspekty: szerokość szczeliny zastosowanej kuwety, połączenia kablowe elektroporatora, ewentualne pęcherzyki powietrza, prawidłowa objętość i stężenie soli w mieszaninie do elektroporacji. - Naciśnij przycisk Start, aby uruchomić program elektroporacji i kontrolować wyświetlane wartości prądów, napięć i energii.
UWAGA: Wartości mierzonych napięć, prądów i energii powinny odpowiadać ustawionym parametrom elektroporacji. W celu porównania powtarzających się eksperymentów pomocne może być zanotowanie tych danych. - Po elektroporacji natychmiast dodać 500 μl pożywki hodowlanej bez antybiotyków (z CHIR99021 i Y-27632; patrz krok 1.3). Mieszać, pipetując w górę i w dół, aby oddzielić białą pianę.
UWAGA: Biała piana pojawia się po procesie elektroporacji i przyłącza się do niej znaczna liczba ogniw. Tak więc dysocjacja jest bardzo ważna, aby nie tracić komórek. - Przenieść próbkę całkowicie z kuwety do nowej probówki o pojemności 15 ml za pomocą pipety należącej do kuwet do elektroporacji (patrz tabela materiałów). Zaleca się ponowne przepłukanie kuwety podłożem podstawowym w celu uzyskania pozostałych komórek.
- W celu regeneracji komórek inkubuj je przez 40 minut w temperaturze pokojowej.
3. Zasiewanie komórek
- Odwirować komórki o sile 450 x g przez 5 minut w temperaturze pokojowej i odrzucić supernatant.
- Zawiesić osad w 100 μl matrycy podstawowej i wysiać 20 μl kropli na wstępnie ogrzanej 48-dołkowej płytce (patrz krok 1.2). Inkubować przez 10 minut w temperaturze 37 °C w celu polimeryzacji i dodać 250 μl pożywki hodowlanej, którą uzupełnia się Y-27632 i CHIR99021 do następnego podziału wyhodowanych organoidów (około 5-7 dni).
4. Określanie efektywności transfekcji
UWAGA: Generalnie, zaleca się elektroportowanie wektora ze znacznikiem fluorescencji jako dodatkową kontrolę transfekcji. W zależności od wybranego markera i jego dojrzałości chromoforu, fluorescencja będzie widoczna w ciągu około 24-48 godzin po transfekcji18.
- Sprawdź fluorescencję pod mikroskopem po 24-48 godzinach w kontroli transfekcji (patrz Rysunek 4B).
- Skanowanie komórek aktywowanych fluorescencyjnie (FACS)
- Zbierz komórki analogicznie do kroku 1.4.2-1.4.4 i traw około 10-20 minut, aż pozostaną pojedyncze komórki. Dodać do 10 ml soli fizjologicznej buforowanej fosforanami (PBS).
- Wirować przy 450 x g przez 5 minut w temperaturze pokojowej i odrzucić supernatant.
- Opcjonalnie w celu rozróżnienia żywych komórek: Zawiesić osad w 1 ml soli fizjologicznej buforowanej fosforanami (PBS) i dodać odpowiednie przeciwciało (patrz tabela materiałów) lub jodek propidyny (PI). Mieszaj bardzo ostrożnie tylko przez stukanie i inkubuj przez 30 minut w temperaturze pokojowej w ciemności. Przemyć 10 ml PBS, odwirować i wyrzucić supernatant.
- Ponownie zawiesić osad komórkowy w 200 μl PBS i opcjonalnie przefiltrować zawiesinę przez sitko do komórek 100 μm do probówki FACS.
- Przeanalizuj komórki za pomocą maszyny FACS przy użyciu odpowiedniej strategii bramkowania (patrz Rysunek 3; Rysunek 4A) i określ efektywność transfekcji.
Wyniki
Organoidy czterech różnych typów nowotworów (CRC, CCC, PDAC, GC) poddano elektroporacji co najmniej 3 razy, stosując 30 µg małego plazmidu (pCMV-EGFP, 4,2 kb) lub dużego plazmidu (px458, 9,3 kb). Oba wektory zawierają kasetę GFP, co pozwala na określenie wydajności transfekcji 48 h po elektroporacji za pomocą cytometrii przepływowej. Aby analizować wyłącznie żywe komórki, przed skanowaniem przeprowadzono barwienie przeciwciałem life-death. Strategia bramkowania przedstawiona jest na Rysunku 3.
We wszystkich czterech typach organoidów plazmid o rozmiarze 4,2 kB został przetransfekowany z wyższą wydajnością w porównaniu do plazmidu większego (patrz Rycina 4). Najwyższą wydajność transfekcji małego plazmidu osiągnięto w organoidach PDAC, gdzie 92,1 ± 5,2 % komórek było dodatnich pod kątem GFP, podczas gdy duży plazmid został przetransfekowany z wydajnością 46,7 ± 3,7 % (średnia ± odchylenie standardowe, n = 3). W porównaniu do organoidów raka trzustki, większy plazmid został przetransfekowany wydajniej do organoidów CRC ze średnią wydajnością 53,4 ± 11,7 %, podczas gdy mały plazmid został przetransfekowany ze średnią wydajnością 84,3 ± 5,8 %. Najtrudniejszym do transfekcji typem były organoidy raka żołądka: w tym przypadku osiągnięto najniższą wydajność transfekcji zarówno dla dużego, jak i małego plazmidu (odpowiednio 32,3 ± 12,7 % i 74,1 ± 5,5 %). Organoidy CCC wykazały średnią wydajność transfekcji 83,0 ± 13,1 % dla małego plazmidu oraz 39,5 ± 10,4 % dla dużego plazmidu.
W ramach dowodu koncepcji, prawidłowe ludzkie organoidy żołądka poddano elektroporacji plazmidem px458_Conc2 kodującym Cas9, GFP oraz dwa sgRNA celujące w TP53. Wywołane przez Cas9 pęknięcia dwuniciowe w eksonie 8 zostały naprawione poprzez niehomologiczne łączenie końców (NHEJ), co doprowadziło do przesunięcia ramki odczytu i w konsekwencji do nokautu genu (patrz Supplementary Figure 1).
Tabela 1: Skład pożywek podstawowych, mieszanin trawiennych i pożywek hodowlanych. Kliknij tutaj, aby wyświetlić ten plik (kliknij prawym przyciskiem myszy, aby pobrać).

Tabela 2: Ustawienia elektroporacji zgodnie z Fujii et al.10.

Rycina 1: Schemat przygotowania do elektroporacji. W pierwszej kolejności organoidy należy zdysocjować do klastrów po 10-15 komórek i wypłukać antybiotyki. Po elektroporacji należy rozbić białą pianę. Komórki można wysiać po 40 min regeneracji w temperaturze pokojowej. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 2: Dwuetapowa elektroporacja. Dwa impulsy porujące o wyższym napięciu i krótkim czasie trwania (175 V i 157,5 V, każdy przez 5 ms, przerwa 50 ms, spadek napięcia 10%) prowadzą do powstania porów w błonach komórkowych. Następujące po nich impulsy transferowe dostarczają DNA do komórek: pięć dodatnich impulsów transferowych (20 V, 12 V, 7,2 V, 4,32 V i 2,592 V, każdy przez 50 ms, przerwa 50 ms, spadek napięcia 40%), a następnie pięć impulsów transferowych o odwróconej polaryzacji (20 V, 12 V, 7,2 V, 4,32 V i 2,592 V, każdy przez 50 ms, przerwa 50 ms, spadek napięcia 40%). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 3: Reprezentatywna strategia bramkowania przedstawiona dla organoidów CCC. Wszystkie elektroporowane organoidy poddano analizie cytometrii przepływowej 48 h po elektroporacji. Jako kontrole negatywne wykorzystano komórki elektroporowane bez plazmidowego DNA. Bramki ustawiono w następujący sposób: (A) bramkowanie pod kątem kształtu komórek, (B,C) bramkowanie dla pojedynczych komórek (eliminacja dubletów), (D) bramkowanie dla komórek żywych (barwionych przeciwciałem przeciwko komórkom apoptotycznym) oraz (E,F) końcowe bramkowanie dla komórek wykazujących ekspresję eGFP (kanał FITC). FSC = forward scatter; SSC = side scatter. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 4: Wydajność elektroporacji czterech rodzajów organoidów. (A) Analiza FACS (n = 34, przedstawiono średnie odchylenie standardowe oraz każdą pojedynczą wartość) i (B) porównanie wizualne za pomocą mikroskopu fluorescencyjnego. Pasek skali = 1,000 µm. BF = pole jasne; CCC = cholangiocarcinoma; CRC = rak jelita grubego; GC = rak żołądka; PDAC = gruczolakorak przewodowy trzustki. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina uzupełniająca 1: Przykładowy knockout z wykorzystaniem systemu CRISPR/Cas9 w obrębie TP53 w normalnych ludzkich organoidach żołądka.wektor px458_Conc2 (patrz Tabela materiałów) sklonowano poprzez połączenie wektora konkatemeru 2 gRNA, otrzymanego w ramach darowizny od Bon-Kyoung Koo19z px45820co skutkuje otrzymaniem plazmidu kodującego dwa sgRNA, Cas9 oraz GFP. Dwa sgRNA celujące w TP53 wprowadzono do wektora px458_Conc2 za pomocą klonowania Golden Gate (analogicznie do metody Andersson-Rolf et al.19). 10 µg plazmidowego DNA poddano elektroporacji w ludzkich prawidłowych organoidach żołądka (A). Klony wyselekcjonowano poprzez podanie Nutlin3 (B) oraz TP53 nokaut potwierdzono za pomocą klonowania TOPO TA oraz sekwencjonowania alleli, co przedstawiono tutaj na przykładzie jednego klonu (C). sgRNA są podkreślone w sekwencji referencyjnej. Pasek skali = 200 µmBF = pole jasne. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Protokół ten zawiera szczegółowe instrukcje dotyczące wydajnej, szybkiej i łatwej do wykonania elektroporacji różnych jednostek organoidowych. Oprócz prezentowanych organoidów nowotworowych z PDAC, CRC, CCC i GC, działa z powodzeniem również w przypadku organoidów pochodzących ze zdrowych tkanek. Protokół można wykonać w ciągu jednego dnia. W opublikowanych protokołach transfekcji organoidów cała procedura trwała cztery dni, w tym dwa dni przygotowań z różnymi rodzajami pożywek uprawowych10,21. W naszym protokole nie jest wymagana żadna specjalna obróbka wstępna. Poprzez przemywanie buforem do elektroporacji przed elektroporacją wypłukano składniki antybiotykowe pożywki i uzyskano dostosowanie stężeń soli fizjologicznej w celu uzyskania optymalnych wartości impedancji. Niemniej jednak, aby elektroporacja była skuteczna, należy wziąć pod uwagę kilka krytycznych aspektów:
Komórek
W protokole elektroporacji Fujii i wsp.10 zaleca się dysocjację organoidów na pojedyncze komórki i przefiltrowanie ich przez sitko komórkowe o średnicy 20 μm. W naszych rękach trawienie do pojedynczych komórek silnie zmniejsza przeżywalność komórek. Jak zasugerowano w Merenda i wsp.21, zdysocjowaliśmy również organoidy na klastry 10-15 komórek i nie mogliśmy określić zmniejszonej wydajności w porównaniu z dysocjacją pojedynczych komórek. Po elektroporacji bardzo ważnym krokiem jest dysocjacja białej piany, aby żadne przyczepione komórki nie zostały utracone.
W przypadku hodowli komórek 2D wykazano, że czas regeneracji po elektroporacji od 10 minut do 40 minut zwiększa przeżywalność i wydajność transfekcji, zwłaszcza dużych plazmidów22. W eksperymentach testowych to samo można udokumentować w przypadku organoidów, co prowadzi do etapu inkubacji trwającego 40 minut po elektroporacji w tym protokole. Aby zwiększyć regenerację po elektroporacji, hodowaliśmy je z inhibitorem kinazy białkowej Rho (ROCK) Y-27632 przez pięć do siedmiu dni23. Podobnie, dodatkowa suplementacja inhibitora kinazy syntazy glikogenu 3 (GSK3) CHIR99021 ma na celu pomóc pojedynczym komórkom w odzyskaniu10.
Ustawienia
Jedną z zalet zastosowanego elektroporatora jest to, że impedancję można zmierzyć przed elektroporacją w optymalnych warunkach. Według producenta wartości impedancji powinny wynosić 30-55 Ω. W naszych rękach wartości impedancji 30-40 Ω wykazały optymalną wydajność. We wstępnym eksperymencie różne napięcia i wartości długości impulsu poringowego były zmieniane, aby znaleźć optymalną proporcję wydajności do przeżywalności. Podsumowując, możemy potwierdzić opisane wartości Fujii i wsp.10 w różnych opisywanych tutaj jednostkach.
DNA
Wpływ różnych ilości DNA badano we wstępnych eksperymentach do 45 μg DNA na próbkę. Nie wykryto żadnych skutków cytotoksycznych. Efektywność transfekcji zwiększano w sposób zależny od dawki przy nasyceniu > 30 μg. Tak więc w końcowym protokole użyliśmy 30 μg na próbkę, ale oczywiście można ją zwiększyć (np. do elektroporacji większej liczby plazmidów równolegle). Dodatkowo bardzo ważna wydaje się być czystość i stężenie DNA. Stężenie przekraczające 5 μg/μl wykazało optymalną skuteczność transfekcji.
Zgodnie z oczekiwaniami, plazmid o pojemności 9,3 kB może być transfekowany z mniejszą wydajnością niż mniejszy plazmid o pojemności 4,2 kB (patrz rysunek 4). Przewiduje się, że zastosowanie plazmidów o pojemności jeszcze większej niż 10 kB jeszcze bardziej zmniejszy wydajność. Dla przyszłych zastosowań interesujące może być przetestowanie DNA w minikręgu jako wektora, ponieważ te nośniki genów nie mają bakteryjnego szkieletu plazmidu, co czynije mniejszymi. Powinno to skutkować zwiększoną wydajnością transfekcji. Co więcej, w przypadku manipulacji organoidami opartych na CRISPR, bezpośrednia elektroporacja sgRNA związanych z Cas9 jako kompleks rybonukleoproteinowy (RNP) może być alternatywą lub dodatkiem25.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Dziękujemy Juliane Fohgrub, Ann-Christin Meinecke i Maxowi Heidukowi za doskonałą pomoc techniczną. Finansowanie zostało zapewnione przez Deutsche Krebshilfe (nr 111350 i 70112925), Sander Stiftung (nr 2014.104.1), Hector Stiftung (nr M65.2) oraz Unię Europejską (nr ERC 639050).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Do zakładania i hodowli pożywki | |||
| [Leu15] Gastrin | Sigma-Aldrich | G9145 | |
| A83-01 | Tocris Bioscience | 2939 | |
| Advanced DMEM/F-12 | Invitrogen | 12634010 | |
| B27 | Invitrogen | 17504044 | |
| B27 Suplement, bez witaminy A | Thermo Fisher Scientific | 12587010 | |
| CHIR99021 | Stemgent | 04-0004 | |
| Kolagenaza II | Life Technologies | 17101-015 | |
| Kolagenaza XI | Sigma-Aldrich | C9407-100MG | |
| Kolagenaza D | Roche | 11088866001 | |
| Dispase II | Roche | 4942078001 | |
| Dnaza I | Sigma-Aldrich | D5319 | |
| D-sorbitol | Roth | 6213.1 | |
| Dithiothreitol | Thermo Scientific | 1859330 | |
| EDTA | Roth | 8040 | |
| Forskolin | Tocris Bioscience | 1099 | |
| Glutamax | Life Technologies | 35050061 | |
| Hepes | Thermo Fisher Scientific | 15630106 | |
| hFGF-10 | Preprotech | 100-26 | |
| KCl | Sigma-Aldrich | P9541 | |
| KH2PO4 | Roth | 3904.2 | |
| Matrigel | Corning | 356231 | matryca piwniczna |
| mEGF | Invitrogen | PMG8043 | |
| N2 | Invitrogen | 17502048 | |
| NaCl | Roth | 3957.1 | |
| Na2HPO4 | Roth | K300.2 | |
| N-Acetyl-L-Cystein | Sigma-Aldrich | A9165 | |
| Nicotinamid | Sigma-Aldrich | N0636 | |
| Noggin | podłoże wytwarzany z komórek HEK293 (Hek293-mNoggin-Fc) | ||
| PBS | Gibco | 14190169 | |
| Penicylina Streptomycyna | Life Technologies | 15140122 | |
| Primocin | InvivoGen | ant-pm-1 | |
| Prostaglandyna E2 | Tocris Bioscience | 2296 | |
| Rekombinowany ludzki HGF | Preprotech | 100-39H | |
| Rspondin | n.a.n.a.Kondycjonowane | podłoże wytwarzane z komórek HEK293 (HA-Rspo1-Fc-293T) | |
| SB202190 | Sigma-Aldrich | S7067 | |
| Sacharoza | VWR | 27,480,294 | |
| TrypLE Express | Gibco | 12604021 | Odczynnik dysocjacyjny |
| Wnt3A | podłoże produkowane z komórek L-Wnt3a (od Sylvia Boj) | ||
| Y-27632 | Sigma-Aldrich | Y0503 | |
| Materiały eksploatacyjne | |||
| Cell Sitko 100 µ m | Falcon | 352360 | |
| 48-dołkowa płytka | Corning | 3548 | |
| Nepa Kuwety do elektroporacji 2mm z pipetami | Nepa Gene Co., Ltd. | EC-002S | |
| Probówki 15 ml | Greiner | 188271 | |
| Probówki 15 ml o niskim stopniu wiązania | Eppendorf | 30122208 | Probówki do przygotowania FACS |
| < mocny>Sprzęt | |||
| Electroporator Nepa21 | Nepa Gene Co., Ltd. | n.a.EVOS | |
| FL Auto | Invitrogen | AMAFD1000 | Mikroskop fluorescencyjny |
| LSRFortessa | BD Bioscience | 647800E6 | FACS |
| strong>Odczynniki i plazmidy | |||
| Żywy/martwy zestaw do barwienia niebieskich martwych komórek | Invitrogen | L34962 | Zawiera przeciwciało do barwienia żywych/martwych do analizy |
| EndoFree Plasmid Maxi Kit | Qiagen | 12362 | |
| Nutlin-3 | Selleckchem | S1061/07 | |
| Opti-MEM | Gibco | 31985047 | Bufor do elektroporacji |
| 2 wektory konkategorów gRNA | AddGene | 84879 | |
| pCMV-EGFP | Nepa Gene Co., Ltd. | n.a.px458 | |
| plazmid | AddGene | 48138 | kodujący plazmid sgRNA i Cas9 |
| px458_Conc2 plazmid | AddGene | 134449 | plazmid px458 zawierający 2x promotory U6 dla dwóch różnych sgRNA |
| sgRNA_hTP53_1a | Eurofins Genomics | n.a. | 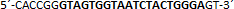 |
| sgRNA_hTP53_1b | Eurofins Genomics | n.a. | 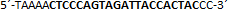 |
| sgRNA_hTP53_2a | Eurofins Genomics | n.a. | 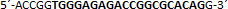 |
| sgRNA_hTP53_2b | Eurofins Genomics | n.a. | 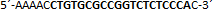 |
Bibliografia
- Huch, M., et al. Long-term culture of genome-stable bipotent stem cells from adult human liver. Cell. 160 (1-2), 299-312 (2015).
- Werner, K., Weitz, J., Stange, D. E. Organoids as Model Systems for Gastrointestinal Diseases: Tissue Engineering Meets Genetic Engineering. Current Pathobiology Reports. 4 (1), 1-9 (2016).
- Olayanju, A., Jones, L., Greco, K., Goldring, C. E., Ansari, T. Application of porcine gastrointestinal organoid units as a potential in vitro tool for drug discovery and development. Journal of applied toxicology. 39 (1), 4-15 (2019).
- Drost, J., et al. Sequential cancer mutations in cultured human intestinal stem cells. Nature. 521 (7550), 43-47 (2015).
- Matano, M., et al. Modeling colorectal cancer using CRISPR-Cas9-mediated engineering of human intestinal organoids. Nature Medicine. 21 (3), 256-262 (2015).
- Schwank, G., et al. Functional repair of CFTR by CRISPR/Cas9 in intestinal stem cell organoids of cystic fibrosis patients. Cell Stem Cell. 13 (6), 653-658 (2013).
- Drost, J., et al. Use of CRISPR-modified human stem cell organoids to study the origin of mutational signatures in cancer. Science. 358 (6360), 234-238 (2017).
- Zhang, X. H., Tee, L. Y., Wang, X. G., Huang, Q. S., Yang, S. H. Off-target Effects in CRISPR/Cas9-mediated Genome Engineering. Molecular Therapy Nucleic Acids. 4, e264(2015).
- Tsong, T. Y. Electroporation of cell membranes. Biophysical journal. 60 (2), 297-306 (1991).
- Fujii, M., Matano, M., Nanki, K., Sato, T. Efficient genetic engineering of human intestinal organoids using electroporation. Nature Protocols. 10 (10), 1474-1485 (2015).
- Sato, T., et al. Long-term expansion of epithelial organoids from human colon, adenoma, adenocarcinoma, and Barrett's epithelium. Gastroenterology. 141 (5), 1762-1772 (2011).
- Bartfeld, S., et al. In vitro expansion of human gastric epithelial stem cells and their responses to bacterial infection. Gastroenterology. 148 (1), 126-136 (2015).
- Boj, S. F., et al. Organoid models of human and mouse ductal pancreatic cancer. Cell. 160 (1-2), 324-338 (2015).
- Broutier, L., et al. Culture and establishment of self-renewing human and mouse adult liver and pancreas 3D organoids and their genetic manipulation. Nature Protocols. 11 (9), 1724-1743 (2016).
- Broutier, L., et al. Human primary liver cancer-derived organoid cultures for disease modeling and drug screening. Nature Medicine. 23 (12), 1424-1435 (2017).
- Hennig, A., et al. CFTR Expression Analysis for Subtyping of Human Pancreatic Cancer Organoids. Stem Cells Int. 2019, 1024614(2019).
- Seidlitz, T., et al. Human gastric cancer modelling using organoids. Gut. 68 (2), 207-217 (2019).
- Stepanenko, O. V., Verkhusha, V. V., Kuznetsova, I. M., Uversky, V. N., Turoverov, K. K. Fluorescent proteins as biomarkers and biosensors: throwing color lights on molecular and cellular processes. Current protein & peptide science. 9 (4), 338-369 (2008).
- Andersson-Rolf, A., et al. Simultaneous paralogue knockout using a CRISPR-concatemer in mouse small intestinal organoids. Dev Biol. 420 (2), 271-277 (2016).
- Ran, F. A., et al. Genome engineering using the CRISPR-Cas9 system. Nature Protocols. 8, 2281(2013).
- Merenda, A., et al. A Protocol for Multiple Gene Knockout in Mouse Small Intestinal Organoids Using a CRISPR-concatemer. Journal of Visualized Experiments. (125), (2017).
- Lesueur, L. L., Mir, L. M., Andre, F. M. Overcoming the Specific Toxicity of Large Plasmids Electrotransfer in Primary Cells In Vitro. Molecular Therapy Nucleic Acids. 5, e291(2016).
- Watanabe, K., et al. A ROCK inhibitor permits survival of dissociated human embryonic stem cells. Nature Biotechnology. 25 (6), 681-686 (2007).
- Darquet, A. M., Cameron, B., Wils, P., Scherman, D., Crouzet, J. A new DNA vehicle for nonviral gene delivery: supercoiled minicircle. Gene Therapy. 4 (12), 1341-1349 (1997).
- Jacobi, A. M., et al. Simplified CRISPR tools for efficient genome editing and streamlined protocols for their delivery into mammalian cells and mouse zygotes. Methods. 121-122, 16-28 (2017).
Przedruki i uprawnienia
