Celem tego artykułu jest dostarczenie ustandaryzowanego podejścia do indukowania różnicowania ludzkich komórek progenitorowych wątroby od pluripotencjalnych komórek macierzystych. Opracowanie tej procedury z gotowymi do użycia preparatami pożywek oferuje użytkownikowi łatwy system do generowania ludzkich komórek wątroby do badań biomedycznych i translacji.
Artykuł metodologiczny
Specyfikacja progenitorów wątroby z pluripotencjalnych komórek macierzystych przy użyciu zdefiniowanego systemu różnicowania
W tym artykule
Podsumowanie
Streszczenie
Choroba wątroby to nasilający się globalny problem zdrowotny. Chociaż przeszczep wątroby jest skutecznym sposobem terapii, śmiertelność pacjentów wzrosła z powodu niedoboru dostępności narządów od dawców. Niedobór narządów wpływa również na rutynowe zaopatrzenie w ludzkie hepatocyty do badań podstawowych i klinicznych. Dlatego rozwój odnawialnych źródeł komórek progenitorowych ludzkiej wątroby jest pożądany i jest celem tego badania. Aby móc skutecznie generować i wykorzystywać ludzkie komórki progenitorowe wątroby na dużą skalę, opracowano powtarzalny system różnicowania progenitorów wątroby. Protokół ten wspomaga eksperymentalną odtwarzalność między użytkownikami w różnych formatach kultur komórkowych i umożliwia różnicowanie przy użyciu zarówno ludzkich linii embrionalnych, jak i indukowanych pluripotencjalnych komórek macierzystych. Są to istotne zalety w porównaniu z obecnymi systemami różnicowania, które usprawnią badania podstawowe i mogą utorować drogę do rozwoju produktów klinicznych.
Wprowadzenie
Choroba wątroby stanowi globalne wyzwanie zdrowotne, powodując około 2 milionów zgonów rocznie na całym świecie1. Chociaż istnieje wiele systemów modelowych do badania chorób wątroby i interwencji klinicznej, rutynowe stosowanie systemów opartych na komórkach jest ograniczone przez istotne wady (przegląd patrz Szkolnicka et al.2). Zaawansowana hodowla ludzkich pluripotencjalnych komórek macierzystych (hPSC) i metody różnicowania komórek somatycznych stanowią obiecujące technologie do opracowania narzędzi do podstawowych badań biomedycznych i odnawialnych źródeł zróżnicowanych komórek dla kliniki3,4.
Do tej pory opracowano wiele protokołów różnicowania komórek hepatocytów (HLC)5,6,7,8. Protokoły te próbują odtworzyć aspekty rozwoju ludzkiej wątroby przy użyciu kombinacji małych cząsteczek i czynników wzrostu9,10. Większość protokołów składa się z etapowego procesu różnicowania, w którym hPSC są przygotowywane do ostatecznej endodermy, a następnie specyfikacja progenitora wątroby11,12,13, a kończąc na specyfikacji HLC. HLC wytwarzane przez te protokoły wykazują mieszaninę fenotypów płodu i dorosłych. Obejmuje to ekspresję alfa fetoproteiny (AFP), takiej jak markery hepatocytów, takie jak HNF4α i albumina (ALB), a także zdolność metabolizowania leków14,15,16. Między laboratoriami zróżnicowanie HLC może się różnić; Dlatego konieczne jest opracowanie ustandaryzowanych protokołów. Umożliwi to naukowcom skuteczne generowanie i stosowanie HLC pochodzących z komórek macierzystych na dużą skalę do badań podstawowych i klinicznych.
Opracowano system różnicowania progenitorów wątroby, który może być stosowany zarówno do ludzkich linii embrionalnych, jak i indukowanych pluripotencjalnych komórek macierzystych, korzystając z łatwych do naśladowania wytycznych. Procedura ta pozwala uzyskać jednorodne populacje komórek progenitorowych wątroby w różnych formatach kultur, od kolb do hodowli komórkowych po płytki 96-dołkowe. Poniżej znajduje się protokół produkcji komórek progenitorowych wątroby pochodzących z komórek macierzystych w formatach 24 i 96 dołków.
Gęstość komórek użyta w protokole przedstawionym poniżej jest określona dla jednej studzienki odpowiednio na płytce 24 i 96-dołkowej (patrz Tabela 1). Optymalizacja początkowej liczby komórek jest wymagana dla różnych formatów płytek do hodowli komórkowych i linii komórkowych. Sugerowana początkowa gęstość komórek do optymalizacji protokołu to 2 x 10⁵ komórek/cm2. W celu optymalizacji gęstości można przetestować kilka gęstości komórek, dodając ± 50 000 komórek/cm2 na raz.
Protokół
1. Utrzymanie ludzkich pluripotencjalnych komórek macierzystych (hPSC) na lamininie-521
- Utrzymuj ludzkie komórki pluripotencjalne (hPSC) w temperaturze 37 °C i 5% CO2 w 6-dołkowej płytce na lamininie-521 (LN-521). Codziennie karmić komórki 2 ml pożywki podtrzymującej komórki macierzyste (tj. pożywki mTeSR1) na dołek na płytce 6-dołkowej do wybranego dnia wysiewu w celu różnicowania (dzień 0).
- Upewnij się, że pożądana konfluencja komórek wynosi 70–80% przed pobraniem komórek.
2. Preparat wielodołkowy Laminin-521 i wysiew hPSC dla różnicowania
UWAGA: Dla hPSC, które nie są utrzymywane na LN-521 (np. matrigel lub fibronektyna), podziel hPSC na LN-521 i posiew na 1 tydzień przed pasażowaniem i wywołaniem różnicowania, aby poprawić wydajność procesu15,17,18.
- Przygotowanie płytki pokrytej laminą
- Rozmrażać fiolkę z rekombinowanym LN-521 (100 μg/ml) w temperaturze 4 °C przez 2 godziny lub przez noc.
- Przygotować roztwór o stężeniu 8 μg/ml, rozcieńczając rozmrożony LN-521 w lodowatym 1x DPBS z Ca2+/Mg2+.
- Dodać 0,25 ml roztworu LN-521 o stężeniu 8 μg/ml do każdego dołka na płytce 24-dołkowej lub 0,05 ml na każdej studzience na płytce 96-dołkowej. Delikatnie kołysz płytką z boku na bok, aby równomiernie pokryć studzienki roztworem LN-521.
UWAGA: W przypadku formatu płytki 96-dołkowej dozowanie objętościowe, wysiewanie komórek i zmiany pożywki można przeprowadzić za pomocą półautomatycznego rurociągu. Aby uzyskać szczegółowe informacje, zobacz Meseguer-Ripolles et al.19. - Płytki powlekane LN-521 należy uszczelnić półprzezroczystą, elastyczną folią i przechowywać w temperaturze 4 °C przez noc przed użyciem.
UWAGA: Płytki powlekane LN-521 mogą być używane do 2 tygodni przy przechowywaniu w temperaturze 4 °C. Należy unikać suszenia studzienek pokrytych lamininą.
- W dniu wysiewu komórek rozgrzać wstępnie powleczone płytki w inkubatorze do hodowli komórkowych w temperaturze 37 °C przez 30–60 minut.
- Zassać roztwór LN-521.
UWAGA: Unikaj bezpośredniego kontaktu aspiratora z dnem studzienki, aby zapobiec uszkodzeniu powłoki LN-521. - Dozować 0,5 ml pożywki podtrzymującej komórki macierzyste ze świeżo uzupełnionym inhibitorem 10 μM kinazy związanej z Rho (ROCK) Y27632 do każdego dołka na płytce 24-dołkowej lub 0,05 ml do każdego dołka na płytce 96-dołkowej. Umieść płytkę w inkubatorze, aż będzie gotowa do wysiewu komórek.
- W zaplanowanym dniu wysiewu (dzień 0) i przy zbiegowisku hPSC między 70–80%, zaznacz wszelkie obszary spontanicznego różnicowania na dnie studzienek płytki 6-dołkowej.
UWAGA: Spontaniczne różnicowanie można uwidocznić za pomocą dużej zmiany wielkości komórki i/lub obecności różnych morfologii komórek za pomocą mikroskopii z kontrastem fazowym. - Odessać i wyrzucić zaznaczone obszary różnicowania i zużytą pożywkę z dołków. Umyj każdą studzienkę 1 ml DPBS bez Ca2+/Mg2+ w temperaturze pokojowej (RT).
- Dodać 1 ml bezenzymatycznego odczynnika dysocjacyjnego (patrz tabela materiałów) do każdego dołka i inkubować w temperaturze 37 °C przez 8–10 minut, aż komórki w widoczny sposób oderwą się od płytki.
- Użyj skrobaka do komórek, aby delikatnie odłączyć komórki od studzienek. Odpipetować zawartość każdej studzienki w górę i w dół 2–4 razy za pomocą pipety P1000, aby uzyskać zawiesinę jednokomórkową. Dla każdej linii komórkowej połącz komórki ze wszystkich studzienek konserwacyjnych w sterylnej probówce o pojemności 50 ml.
- Umyj dobrze każdy opróżniony 1 ml pożywki do konserwacji komórek macierzystych. Dodaj popłuczyny do odpowiedniej probówki zawierającej zebrane komórki z odpowiedniej linii komórkowej.
- Dla każdej linii komórkowej należy wykonać trzy żywotne zliczenia komórek na zbiorczych próbkach. Oblicz średnią liczbę żywych komórek (żywe komórki/ml) dla każdej linii komórkowej.
- Odwirować próbki zbiorcze o masie 250 x g przez 5 minut w temperaturze pokojowej. Odessać supernatant, a następnie ponownie zawiesić osad komórkowy w 1–3 ml pożywki do konserwacji komórek macierzystych RT, świeżo uzupełnionej inhibitorem 10 μM ROCK Y27632.
- Dla każdej linii komórkowej obliczyć liczbę komórek potrzebną na liczbę studzienek przygotowanych w kroku 2.4 (patrz Tabela 1). Ponownie zawiesić wymaganą liczbę komórek za pomocą pożywki podtrzymującej komórki macierzyste świeżo uzupełnionej inhibitorem 10 μM ROCK Y27632.
- Dodać obliczoną objętość (objętości) do dołków przygotowanych i wstępnie pokrytych płytek z kroku 2.4 bez usuwania dodanej wcześniej objętości. Całkowita objętość na dołek wyniesie 1 ml dla płytki 24-dołkowej i 0,1 ml dla płytki 96-dołkowej. Delikatnie kołysz płytkami z boku na bok oraz w przód iw tył, aby zapewnić równomierne rozproszenie komórek w całej studzience.
UWAGA: Równomierne rozmieszczenie komórek w studzience ma kluczowe znaczenie dla zapewnienia jednorodnego wysiewu komórek i pomyślnego różnicowania. - Umieść płytki z nasionami w inkubatorze i natychmiast delikatnie kołysz płytkami z nasionami w przód i w tył oraz z boku na bok, aby równomiernie rozprowadzić komórki i utrzymać kultury w temperaturze 37 °C i 5% CO2 .
3. Różnicowanie hPSC od komórek progenitorowych wątroby na lamininie-521
- Przygotuj pożywkę do ostatecznej indukcji endodermy (etap 1) przy użyciu pożywki Endoderm Basal Medium uzupełnionej odpowiednimi dodatkami.
- W dniu 0 rozmrozić butelkę Endoderm Basal Medium przez noc w temperaturze 4 °C.
- Przygotuj Stage 1 Medium 1 (do użycia w dniu 1) w razie potrzeby.
- Rozmrażanie Suplement MR i Suplement CJ na lodzie.
- Rozcieńczyć suplement MR i suplement CJ 1:100 w podłożu podstawowym endodermy.
- Przygotuj Stage 1 Medium 2 do użycia w dniach 2-4 w zależności od potrzeb.
- Rozcieńczyć suplement CJ 1:100 w podłożu podstawowym endodermy.
- Przygotować pożywkę do późniejszego różnicowania komórek progenitorowych wątroby (etap 2) przy użyciu pożywki progenitorowej wątroby.
- W 4 dniu rozmrozić butelkę z pożywką Hepatic Progenitor Medium przez noc w temperaturze 4 °C.
UWAGA: W tym eksperymencie użyto 1% penicyliny/streptomycyny (końcowe stężenia odpowiednio 100 IU/ml i 100 μg/ml). Antybiotyki nie są wymagane; Stosowanie antybiotyków zależy od uznania użytkownika.
- W 4 dniu rozmrozić butelkę z pożywką Hepatic Progenitor Medium przez noc w temperaturze 4 °C.
- W 1. dniu różnicowania należy usunąć zużytą pożywkę do konserwacji komórek macierzystych z 10 μM pożywką ROCKi Y-27632 z dołków i zastąpić 0,5 ml kompletnej pożywki etapu 1 na dołek płytki 24-dołkowej i 0,1 ml na studzienkę płytki 96-dołkowej.
- W dniach 2, 3 i 4 usuń zużyte podłoże i nakarm każdą studzienkę 0,5 ml pożywki etapu 1 2 na dołek dla płytki 24-dołkowej lub 0,1 ml na studzienkę na płytkę 96-dołkową.
- W 5 dniu napraw studzienki w celu ostatecznej analizy różnicowania endodermy za pomocą immunocytochemii. W przypadku pozostałych studzienek usuń zużyte podłoże i nakarm każdą studzienkę 0,5 ml pożywki różnicującej progenitory wątroby na dołek w przypadku płytki 24-dołkowej lub 0,1 ml na studzienkę w przypadku płytki 96-dołkowej. Odśwież pożywkę ponownie w dniach 6, 7 i 9.
- W dniu 10 należy pobrać studzienki w celu analizy różnicowania progenitorów wątroby lub przystąpić do dalszego różnicowania komórek podobnych do hepatocytów.
UWAGA: W tym momencie próbki utrwalono za pomocą 4% paraformaldehydu (PFA) do analizy immunocytochemicznej lub pobrano supernatant do testu ELISA, a komórki pobrano do oceny ilościowej białka.
4. Charakterystyka kultur różnicowania progenitorów wątroby generowanych z hPSC na lamininie-521
- W 5 dniu wykryj ekspresję ostatecznych markerów specyficznych dla endodermy za pomocą barwienia immunologicznego.
- W 10 dniu wykryj ekspresję markerów specyficznych dla komórek progenitorowych wątroby za pomocą barwienia immunologicznego.
- W dniu 10 zmierz wydzielanie AFP i ALB za pomocą testu ELISA za pomocą zestawu zgodnie z instrukcjami producenta i znormalizuj zawartość białka na mg zgodnie z testem białkowym kwasu bicinchoninowego (BCA).
- Oceń zmienność progenitorową wątroby płytki 96-dołkowej, określając ilościowo procent komórek HNF4α dodatnich na dołek.
5. Immunocytochemia i akwizycja obrazów
- W 5 i 10 dniu różnicowania przemyć komórki 3x 1x DPBS, 0,5 ml na dołek na płytkę 24-dołkową i 0,1 ml na studzienkę na płytkę 96-dołkową. Inkubować płytkę, delikatnie wstrząsając przez 2–5 minut w temperaturze RT.
UWAGA: Stosować DPSB bez Ca2 + / Mg2 + do immunocytochemii. - Utrwal komórki 4% paraformaldehydem (PFA) w temperaturze pokojowej przez 15-30 minut, dodając 0,3 ml PFA na dołek dla płytki 24-dołkowej i 0,1 ml na studzienkę na płytkę 96-dołkową.
- Umyj 3x 1x DPBS zgodnie z opisem w kroku 5.1.
- Przeniknąć błonę za pomocą PBST przy użyciu 0,1% Tween, 1x DPBS i inkubować przez 20 minut w temperaturze pokojowej, dodając 0,3 ml PBST na studzienkę 24-dołkowej płytki i 0,1 ml na studzienkę 96-dołkowej.
- Wykonać blok białkowy poprzez inkubację komórek z 10% BSA w PBST przez 1 godzinę, dodając 0,3 ml BSA na dołek płytki 24-dołkowej i 0,1 ml BSA na dołek płytki 96-dołkowej, delikatnie wstrząsając za pomocą wytrząsarki do płytek.
- Po zablokowaniu białka zastąpić roztwór blokujący pierwszorzędowym przeciwciałem rozcieńczonym w 1% BSA w PBST i inkubować w temperaturze 4 °C, delikatnie wstrząsając przez noc.
UWAGA: Nie myć między blokiem białkowym a dodatkiem przeciwciał. - Po 24 godzinach przemyć studzienki 3x PBST.
- Dodać przeciwciało drugorzędowe w 1% BSA w PBST. Inkubować 1 godzinę w temperaturze pokojowej w ciemności, delikatnie potrząsając.
- Po wtórnej inkubacji przeciwciał umyć studzienki 3x 1x DPBS i dozować barwnik Hoechst zgodnie z instrukcjami producenta przez 10 minut w temperaturze pokojowej w ciemności, delikatnie wstrząsając.
- Umyj 3x z 1x DPBS. Płytki są teraz gotowe do obrazowania.
UWAGA: Przechowywać płytki w temperaturze 4 °C w ciemności do czasu wykonania obrazu. - Zobrazuj płytkę wielodołkową za pomocą mikroskopu obrazowego o wysokiej zawartości po immunohistochemii. Zaleca się uzyskanie obrazu kilku pól widzenia, aby uzyskać wierne odwzorowanie studni. Ekspresję różnych markerów oceniano za pomocą analizy segmentacji komórek przy użyciu komercyjnego oprogramowania (patrz tabela materiałów) (Rysunek 1).
UWAGA: Segmentację komórek można również przeprowadzić za pomocą oprogramowania do analizy obrazu typu open source, takiego jak CellProfiler lub Fiji20,21.
Wyniki
Różnicowanie progenitorów wątroby z linii hESC (H9) oraz hiPSC (P106) przeprowadzono zgodnie z etapowym protokołem opisanym na Rysunku 2. Przed rozpoczęciem różnicowania pluripotencjalne komórki macierzyste wysiano jako pojedyncze komórki na płytki pokryte LN-521. Konfluencja komórek jest kluczowa dla uzyskania stabilnego i powtarzalnego różnicowania. Po osiągnięciu odpowiedniej konfluencji (Rysunek 2) rozpoczęto proces różnicowania. W 5. dniu oceniono specyfikację endeodermy definitywnej poprzez ekspresję Sox17. W obu liniach komórkowych odnotowano wysoką ekspresję Sox17, przy czym odsetek komórek Sox17-dodatnich wyniósł odpowiednio 80% ± 0,5% i 87,8% ± 0,5% SEM dla H9 i P106 (Rysunek 3). W 10. dniu progenitorzy wątroby wykazywali morfologię przypominającą brukową (Rysunek 2). Dodatkowo specyfikację progenitorów wątroby oceniono pod kątem ekspresji HNF4α, AFP, ALB i cytokeratyny-19 (CK19), a także sekrecji białek AFP i ALB10,15,22 (Rysunek 4). Kultury progenitorów wątroby H9 i P106 wykazywały ekspresję płodowych markerów wątrobowych, takich jak HNF4α (91% ± 0,5% i 90% ± 0,2%), AFP (89,7% ± 1,8% i 86% ± 1,2%) oraz CK19 (78,5% ± 3,2% i 83,6 ± 1,8%) (Rysunek 4). Sekrecję AFP wykryto w 10. dniu w obu liniach komórkowych (32,4 ± 1,6 i 47,8 ± 5,9 ng/mL/mg/24 h) (Rysunek 5). Syntezę albuminy zaobserwowano na niższym poziomie (30,7% ± 1,8% i 27,2% ± 1,1%) (Rysunek 4), a metodą ELISA nie została ona wykryta (Rysunek 5).
Protokół umożliwił standaryzowaną produkcję progenitorów wątroby w płytkach od 24 do 96 dołków. Zastosowano półautomatyczną linię technologiczną w celu wytworzenia płytek 96-dołkowych z progenitorami wątroby z linii komórkowych H9 i P106, zgodnie z wcześniejszym opisem17. Zmienność liczby komórek oraz wydajność różnicowania progenitorów wątroby oceniono poprzez kwantyfikację ekspresji HNF4α. Segmentację komórek przeprowadzono w celu kwantyfikacji białka za pomocą immunofluorescencji z wykorzystaniem urządzenia do obrazowania wysokotreściowego (Rycina 1). W 10. dniu progenitorzy wątroby nie wykazywali istotnej zmienności w obrębie rzędów, przy czym w każdym dołku odnotowano >94% komórek HNF4α-dodatnich dla linii H9 oraz 97% komórek HNF4α-dodatnich dla linii P106 (Rycina 6).
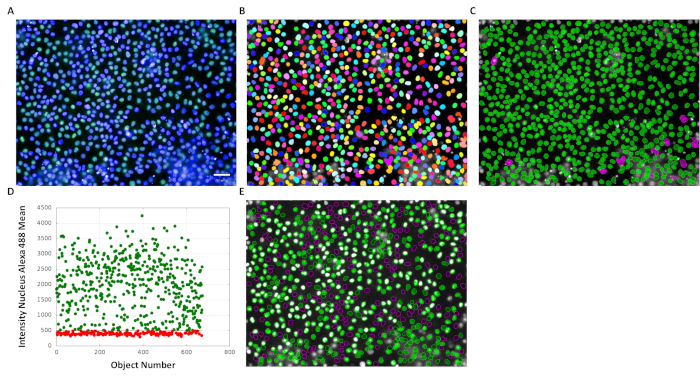
Rysunek 1: Przegląd procedury segmentacji komórek. (A) Wykorzystanie obrazu oryginalnego, (B) użycie barwienia jąder do segmentacji jąder komórkowych. (C) Przeprowadzono etap kontroli jakości segmentacji jąder w oparciu o kształt i rozmiar, aby przeprowadzić analizę ilościową tylko wyraźnie wysegmentowanych jąder. (D) Następnie dokonano ilościowego oznaczenia jąder wykazujących pozytywne barwienie na HNF4α. (E) Na koniec zastosowano próg oparty na intensywności w celu identyfikacji komórek wykazujących ekspresję HNF4α. Na panelach C i E zielone jądra reprezentują wybrane komórki, a jądra w kolorze magenta wskazują komórki odrzucone. Pasek skali = 50 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
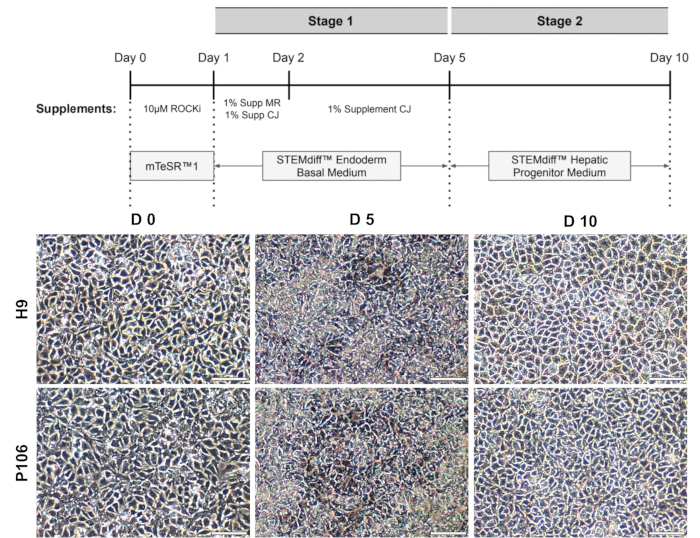
Rysunek 2: Różnicowanie hPSC w progenitorowe komórki wątroby. (A) Schematyczny przebieg protokołu różnicowania progenitorowych komórek wątroby. (B) Reprezentatywne obrazy ukazujące zmiany morfologiczne podczas różnicowania. W dniu 0 (D0) hPSC tworzyły zwartą monowarstwę komórek. Następnie, w dniu 5 (D5), hPSC zostały przekształcone w ostateczną endodermę. Kolejnym etapem było różnicowanie w progenitorowe komórki wątroby w dniu 10 (D10). Progenitory wątrobowe wykazywały morfologię komórek przypominającą brukowanie. Pasek skali = 75 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
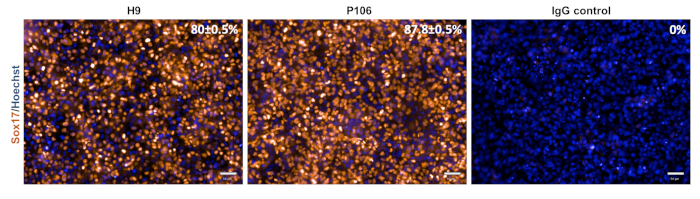
Rycina 3: Charakterystyka specyfikacji definitywnej endodermy. W dniu 5. komórki zabarwiono pod kątem Sox17, markerem definitywnej endodermy. Procent komórek dodatnich dla Sox17 wyniósł 80 ± 0.5% dla linii H9 oraz 87.8 ± 0.5% dla linii P106. Ilościowe określenie procentowe oparto na 10 oddzielnych studzienkach z 6 polami widzenia na studzienkę. Dane przedstawiono jako średnia ± SEM. Pasek skali = 50 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
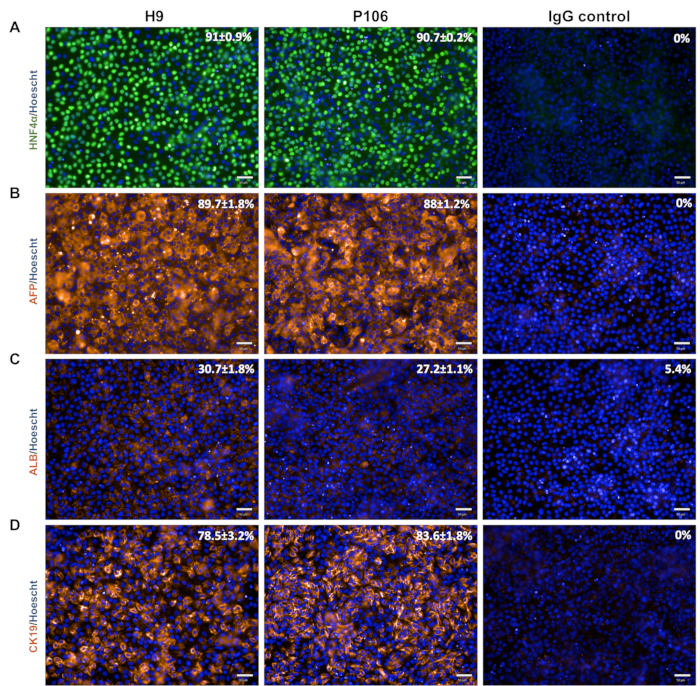
Rycina 4: Charakterystyka progenitorów wątrobowych. W 10. dniu progenitorów wątrobowych zabarwiono na markery wątrobowe (A) HNF4α, (B) AFP oraz (C) ALB. Dla linii H9 odsetek komórek dodatnich wynosił odpowiednio 91% ± 0,4%, 89,7% ± 1,8% i 30,7% ± 1,8% dla HNF4α, AFP i ALB. Dla linii P106 odsetek komórek dodatnich wynosił odpowiednio 90% ± 0,2%, 86% +/- 1,2% i 27,2% ± 1,1% dla HNF4α, AFP i ALB. (D) Potencjał linii cholangiocytów oceniono za pomocą ekspresji CK19; progenitorzy wątrobowi pochodzące z linii H9 wykazywali 78,5% ± 3,2% komórek CK19-dodatnich, natomiast dla progenitorów wątrobowych P106 zaobserwowano 83,6% ± 1,8% komórek CK19-dodatnich. Barwienie immunoglobuliną G (IgG) posłużyło jako kontrola barwienia. Ilościowe określenie odsetka oparto na 10 oddzielnych dołkach z 6 polami widzenia na dołek. Dane przedstawiono jako średnia ± SEM. Pasek skali = 50 µm. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
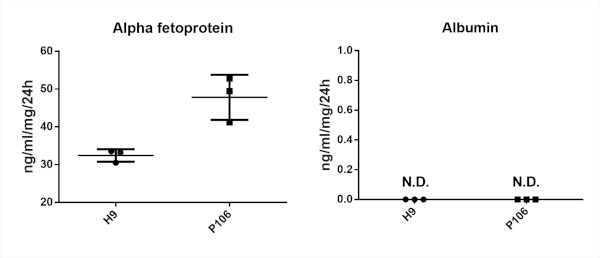
Rycina 5: Analiza sekrecji białek progenitorów wątroby. Analizę sekrecji alfa-fetoproteiny (AFP) i albuminy (ALB) przeprowadzono w hodowlach progenitorów wątroby w 10. dniu dla linii H9 i P109. Dane reprezentują trzy powtórzenia biologiczne, a słupki błędu przedstawiają SD. Ilość wydzielonych białek określono w 24 h pożywce hodowlanej jako nanogramy wydzielonego białka na mL na mg białka, n = 3; ND = nie wykryto. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
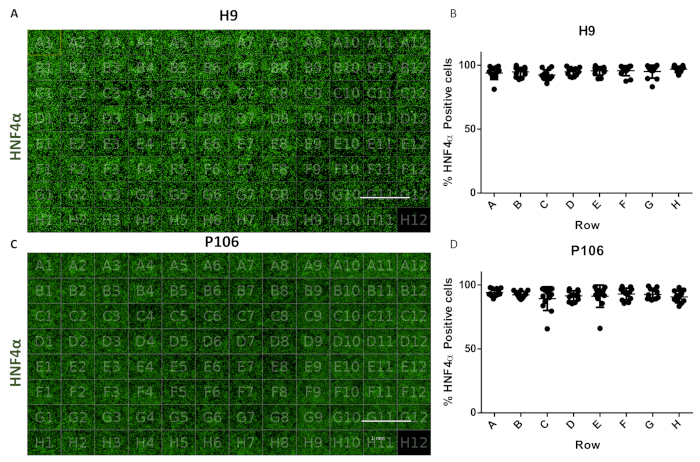
Rysunek 6: Ocena zmienności między studzienkami w płytce 96-dołkowej. (A) Wizualizacja widoku płytki 96-dołkowej z progenitorami wątroby pochodzącymi z linii H9, barwionymi na HNF4α. (B) Ilościowe określenie liczby komórek dodatnich na HNF4α. Średnia liczba komórek na studzienkę w rzędach, obliczona na podstawie sześciu pól widzenia na studzienkę. Średnia liczba komórek w całej płytce wynosiła 94,81% ± 0,22 SEM komórek dodatnich na HNF4α na studzienkę. Nie zaobserwowano statystycznie istotnych różnic między studzienkami. (C) Wizualizacja widoku płytki 96-dołkowej z progenitorami wątroby pochodzącymi z linii P106, barwionymi na HNF4α. (D) Ilościowe określenie liczby komórek dodatnich na HNF4α. Średnia liczba komórek na studzienkę w rzędach, obliczona na podstawie sześciu pól widzenia na studzienkę. Średnia liczba komórek w całej płytce wynosiła 97,7% ± 0,57 SEM komórek dodatnich na HNF4α na studzienkę. Nie zaobserwowano statystycznie istotnych różnic między rzędami. Studzienka H12 posłużyła jako kontrola barwienia immunoglobuliną G (IgG). Pasek skali = 1 mm. Zastosowano jednoczynnikową analizę wariancji ANOVA z testami post-hoc Tukeya. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Format płytki | Powierzchnia (cm2) | Liczba komórek na cm2 | Całkowita liczba komórek na dołek | Objętość dozowania (mL) | Stężenie komórek (komórki/ml) |
| płytka 24-dołkowa | 1.9 | 210526 | 400000 | 0.5 | 800000 |
| płytka 96-dołkowa | 0.32 | 187500 | 60000 | 0.05 | 1200000 |
Tabela 1: Zalecana gęstość komórek dla różnych formatów płytek dla linii komórkowych hPSC użytych w tym protokole.
Dyskusja
Generowanie na dużą skalę ludzkich komórek progenitorowych wątroby z pluripotencjalnych komórek macierzystych może stanowić obiecującą alternatywę dla materiału pochodzącego ze zwłok. Standaryzacja i odtwarzalność protokołów mają kluczowe znaczenie dla zapewnienia translacji technologii i wpływu na badania biomedyczne. Aby rozwiązać ten problem, wcześniejsze prace koncentrowały się na opracowaniu protokołu stopniowego różnicowania między hESC i iPSC przy użyciu zdefiniowanych dodatków i matryc 15,23,24,25,26,27,28. W ten sposób poprawiono fenotyp i odtwarzalność hepatocytów, co pozwoliło na częściową automatyzację procesu różnicowania19. Prezentowany system jest wzmocniony przez jego połączenie z gotowymi pożywkami do hodowli komórkowych i łatwym systemem różnicowania hepatocytów.
Wcześniej gęstość komórek pluripotencjalnych przed rozpoczęciem protokołu różnicowania była podkreślana jako kluczowa zmienna w celu osiągnięcia jednorodnej populacji komórek progenitorowych wątroby26. Korzystając z tej bardziej wyrafinowanej procedury, możliwe jest stopniowe generowanie dużej liczby komórek progenitorowych wątroby pochodzących z komórek macierzystych przy użyciu zakresu początkowych gęstości komórek (Tabela 1). W 5 dniu ostateczna indukcja endodermy została zwalidowana przez barwienie Sox17 (ryc. 3). Skuteczne i solidne różnicowanie w ostateczną endodermę osiągnięto zarówno przy użyciu testowanych linii ESC, jak i iPSC, z ponad 80% ekspresją Sox17 (ryc. 3). W dniu 10 przodkowie wątroby wykazywali jednolitą morfologię przypominającą bruk, a markery komórek macierzystych wątroby były znacznie wzbogacone zarówno dla AFP, jak i HNF4α (>86%, Figura 4). Dzięki połączeniu technologii ręcznych i półautomatycznych możliwe było przeprowadzenie różnicowania w wielu formatach płyt19.
W obecnej formie różnicowanie komórek nadaje się do eksperymentów opartych na in vitro . Jednak przed zastosowaniem klinicznym prawdopodobnie wymagane będzie wzbogacenie komórek, aby zapewnić przygotowanie jednorodnej populacji komórek progenitorowych wątroby do porodu.
Podsumowując, opisany tutaj protokół zapewnia tej dziedzinie ustandaryzowane podejście do produkcji komórek progenitorowych wątroby na dużą skalę. Przyszłe prace będą koncentrować się na produkcji nowego podłoża do późniejszego różnicowania, dojrzewania i konserwacji HLC.
Oświadczenia
David C. Hay jest współzałożycielem i udziałowcem Stemnovate Ltd. Pozostali autorzy zaświadczają, że nie mają konfliktu interesów w odniesieniu do tematyki lub materiałów omawianych w tym artykule.
Podziękowania
Badanie to zostało wsparte nagrodami od MRC Doctoral Training Partnership (MR/K501293/1), UK Instrumentative Medicine Platform (MRC MR/L022974/1 i MR/K026666/1), Biura Głównego Naukowca (TCS/16/37).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| DPBS z wapniem i magnezem | ThermoFisher | 14040133 | |
| Delikatny odczynnik do dysocjacji komórek | STEMCELL Technologies | 7174 | |
| Hoechst 33342 Odczynnik Ready Flow | thermofisher | R37165 | |
| Ludzka rekombinowana Laminina 521 | BioLamina | LN521-02 | |
| Albumina ludzka w surowicy Diagnostyka | ELISA Alpha1190 | ||
| Alfa Fetoproteina w surowicy ludzkiej Diagnostyka ELISA | Alpha | 500 | |
| mTeSR1 medium | STEMCELL Technologies | 5850 | |
| System obrazowania operetki o wysokiej zawartości | PerkinElmer | HH12000000 | |
| PBS, bez wapnia, bez magnezu | ThermoFisher | 14190250 | |
| Penicylina-Streptomycyna (10 000 U/mL) | Życie Technologie | Inhibitor | |
| rho (ROCK) Y27632 | Sigma-Aldrich | Y0503-1MG | |
| STEMdiff Definitive Endoderm Suplement CJ | STEMCELL Technologie | ||
| STEMdiff Definitive Endoderm Technologie | STEMCELL | ||
| Endoderma STEMdiff Endoderma Basal Medium | STEMCELL Technologie | ||
| STEMdiff Hepatic Progenitor Medium | STEMCELL Technologies | ||
| TWEEN 20 | Sigma-Aldrich | P9416 | |
| Przeciwciała | |||
| Albumin | Sigma-Aldrich | A6684 | 1:200 (mysz) |
| Alfa-fetoproteina | Sigma-Aldrich | A8452 | 1:400 (mysz) |
| HNF-4& alfa; | Santa Cruz | sc-8987 | 1:400 (królik) |
| IgG | DAKO | 1:400 | |
| Sox17 | R& D Systems, Inc. | AF1924 | 1:200 (Koza) |
| Software | |||
| Columbus System przechowywania i analizy danych obrazowych | PerkinElmer |
Bibliografia
- Asrani, S. K., Devarbhavi, H., Eaton, J., Kamath, P. S. Burden of liver diseases in the world. Journal of Hepatology. 70 (1), 151-171 (2019).
- Szkolnicka, D., Hay, D. C. Concise Review: Advances in Generating Hepatocytes from Pluripotent Stem Cells for Translational Medicine. Stem Cells Dayton Ohio. 34 (6), 1421-1426 (2016).
- Heslop, J. A., Duncan, S. A. The Use of Human Pluripotent Stem Cells for Modeling Liver Development and Disease. Hepatology. 69 (3), 1306-1316 (2019).
- Alwahsh, S. M., Rashidi, H., Hay, D. C. Liver cell therapy: is this the end of the beginning. Cell and Molecular Life Sciences. 75 (8), 1307-1324 (2018).
- Hay, D. C., et al. Efficient differentiation of hepatocytes from human embryonic stem cells exhibiting markers recapitulating liver development in vivo. Stem Cells Dayton Ohio. 26 (4), 894-902 (2008).
- Si-Tayeb, K., et al. Highly efficient generation of human hepatocyte-like cells from induced pluripotent stem cells. Hepatology. 51 (1), 297-305 (2010).
- Hannan, N. R. F., Segeritz, C. -P., Touboul, T., Vallier, L. Production of hepatocyte-like cells from human pluripotent stem cells. Nature Protocols. 8 (2), 430-437 (2013).
- Basma, H., et al. Differentiation and transplantation of human embryonic stem cell-derived hepatocytes. Gastroenterology. 136 (3), 990-999 (2009).
- Meseguer-Ripolles, J., Khetani, S. R., Blanco, J. G., Iredale, M., Hay, D. C. Pluripotent Stem Cell-Derived Human Tissue: Platforms to Evaluate Drug Metabolism and Safety. The AAPS Journal. 20 (1), 20(2017).
- Si-Tayeb, K., Lemaigre, F. P., Duncan, S. A. Organogenesis and development of the liver. Developmental Cell. 18 (2), 175-189 (2010).
- D'Amour, K. A., et al. Efficient differentiation of human embryonic stem cells to definitive endoderm. Nature Biotechnology. 23 (12), 1534-1541 (2005).
- Shin, D., et al. Bmp and Fgf signaling are essential for liver specification in zebrafish. Development Cambridge England. 134 (11), 2041-2050 (2007).
- DeLaForest, A., et al. HNF4A is essential for specification of hepatic progenitors from human pluripotent stem cells. Development Cambridge England. 138 (19), 4143-4153 (2011).
- Baxter, M., et al. Phenotypic and functional analyses show stem cell-derived hepatocyte-like cells better mimic fetal rather than adult hepatocytes. Journal of Hepatology. 62 (3), 581-589 (2015).
- Cameron, K., et al. Recombinant Laminins Drive the Differentiation and Self-Organization of hESC-Derived Hepatocytes. Stem Cell Reports. 5 (6), 1250-1262 (2015).
- Szkolnicka, D., et al. Reducing Hepatocyte Injury and Necrosis in Response to Paracetamol Using Noncoding RNAs. Stem Cells Translational Medicine. 5 (6), 764-772 (2016).
- Domogatskaya, A., Rodin, S., Boutaud, A., Tryggvason, K. Laminin-511 but Not -332, -111, or -411 Enables Mouse Embryonic Stem Cell Self-Renewal In Vitro. Stem Cells. 26 (11), 2800-2809 (2008).
- Kanninen, L. K., et al. Laminin-511 and laminin-521-based matrices for efficient hepatic specification of human pluripotent stem cells. Biomaterials. 103, 86-100 (2016).
- Meseguer-Ripolles, J., Lucendo-Villarin, B., Wang, Y., Hay, D. C. Semi-automated Production of Hepatocyte Like Cells from Pluripotent Stem Cells. Journal of Visualized Experiments. (137), e57995(2018).
- Carpenter, A. E., et al. CellProfiler: image analysis software for identifying and quantifying cell phenotypes. Genome Biology. 7, 100(2006).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nature Methods. 9 (7), 676-682 (2012).
- Raven, A., et al. Cholangiocytes act as Facultative Liver Stem Cells during Impaired Hepatocyte Regeneration. Nature. 547 (7663), 350-354 (2017).
- Hay, D. C., et al. Unbiased screening of polymer libraries to define novel substrates for functional hepatocytes with inducible drug metabolism. Stem Cell Research. 6 (2), 92-102 (2011).
- Medine, C. N., et al. Developing High-Fidelity Hepatotoxicity Models from Pluripotent Stem Cells. Stem Cells Translational Medicine. 2 (7), 505-509 (2013).
- Szkolnicka, D., et al. Accurate prediction of drug-induced liver injury using stem cell-derived populations. Stem Cells Translational Medicine. 3 (2), 141-148 (2014).
- Wang, Y., et al. Defined and Scalable Generation of Hepatocyte-like Cells from Human Pluripotent Stem Cells. Journal of Visualized Experiments. (121), e55355(2017).
- Villarin, B. L., et al. Polymer Supported Directed Differentiation Reveals a Unique Gene Signature Predicting Stable Hepatocyte Performance. Advanced Healthcare Materials. 4 (12), 1820-1825 (2015).
- Wang, Y., et al. Multiomics Analyses of HNF4α Protein Domain Function during Human Pluripotent Stem Cell Differentiation. iScience. 16, 206-217 (2019).
Przedruki i uprawnienia
