Aby wykorzystać Caenorhabditis elegans (C. elegans) w badaniach omiki, potrzebna jest metoda generowania dużych populacji robaków, gdzie pojedyncza próbka może być mierzona na różnych platformach do analiz porównawczych. Przedstawiono tutaj metodę hodowli populacji C. elegans na płytkach hodowlowych na dużą skalę (LSCP) oraz dokumentowania wzrostu populacji.
Artykuł metodologiczny
Kultura i analiza populacji dużoskalowych o mieszanym stadium Caenorhabditis elegans
W tym artykule
Podsumowanie
Streszczenie
Caenorhabditis elegans (C. elegans) był i pozostaje cennym organizmem modelowym do badania biologii rozwojowej, starzenia, neurobiologii i genetyki. Obszerny dorobek badań nad C. elegans czyni go idealnym kandydatem do integracji z badaniami nad dużymi populacjami całego organizmu, aby rozłożyć złożone składniki biologiczne i ich relacje z innym organizmem. Aby wykorzystać C. elegans w badaniach kolaboracyjnych -omics, potrzebna jest metoda generowania dużych populacji zwierząt, gdzie pojedyncza próba może być podzielona i analizowana na różnych platformach do analiz porównawczych.
Przedstawiono tutaj metodę hodowli i zbierania obfitej populacji C. elegans w stadiu mieszanym na dużej skali płyty hodowlanej (LSCP) oraz późniejsze dane fenotypowe. Ten pipeline dostarcza wystarczającą liczbę zwierząt do zbierania danych fenotypowych i populacyjnych, wraz z danymi potrzebnymi do eksperymentów -omiki (tj. genomika, transkryptomika, proteomika i metabolomika). Ponadto metoda LSCP wymaga minimalnej manipulacji samych zwierząt, krótszego czasu przygotowania użytkownika, zapewnia ścisłą kontrolę środowiskową oraz zapewnia spójne traktowanie każdej próbki przez cały czas badania, co zapewnia ogólną powtarzalność. Na koniec przedstawiono metody dokumentowania wielkości populacji i rozkładu populacji stadij życiowych C. elegans w danym LSCP.
Wprowadzenie
C. elegans to mały, wolno żyjący nicieniec, występujący na całym świecie w różnorodnychnaturalnych siedliskach. Jego względna łatwość wzrostu, szybki czas generowania, system rozrodczy i przezroczyste ciało czynią go potężnym organizmem modelowym, szeroko badanym w biologii rozwoju, starzeniu, neurobiologii i genetyce 2,3. Obszerne badania nad C. elegans czynią go idealnym kandydatem do wykorzystania w badaniach -omiki do kompleksowego powiązania fenotypów ze złożonymi komponentami biologicznymi i ich relacjami w danym organizmie.
Aby wykorzystać C. elegans w badaniach współpracujących -omics, potrzebna jest metoda generowania dużych populacji zwierząt w mieszanym stadium, gdzie pojedyncza próba może być podzielona i wykorzystana na różnych platformach i instrumentach do analiz porównawczych. Stworzenie potoku do wygenerowania takiej próbki wymaga doskonałej świadomości diety, środowiska, stresu, struktury populacji oraz obsługi i zbierania próbek. Dlatego kluczowe jest zintegrowanie standardowych i powtarzalnych warunków hodowlanych w dużych rurociągach. W badaniach C. elegans stosuje się dwie tradycyjne metody hodowli robaków – agarowe szalki Petriego oraz płynną kulturę4.
Historycznie, gdy potrzebne są duże ilości C. elegans, uprawia się je w hodowli płynnej4. Etapy związane z generowaniem dużej populacji robaków w hodowli płynnej wymagają wielu kroków obsługi, które często obejmują synchronizację wybielacza do pęknięcia skórek dorosłych grawidnych dorosłych, uwalnianie zarodków w celu osiągnięcia pożądanej wielkości populacji. Jednak gdy stosuje się synchronizację wybielacza, wzrost populacji zależy od początkowej wielkości spisu, co wpływa na późniejszy wzrost i liczbę ludności. Ponadto szczepy C. elegans różnią się pod względem wrażliwości skórek, czasu ekspozycji oraz reakcji stresowej na synchronizację wybielaczu, co utrudnia badanie wielu szczepów naraz 5,6,7,8,9.
Dodatkowo, wzrost robaków w hodowli płynnej wymaga kilku etapów transferu, ponieważ często zaleca się wyhodowanie tylko jednego pokolenia robaków przed zbiorem, gdyż przeludnienie może łatwo dojść do przeludnienia przy uprawie przez kilka pokoleń i prowadzić do powstawania dauerów mimo obecności pożywienia. Powstawanie dauerów zachodzi poprzez małe cząsteczki sygnalizacyjne, takie jak ascarozydy, często nazywane "feromonami dauera"11,12,13,14, które są uwalniane do płynnego medium i wpływają na wzrost populacji. Ponadto wzrost dużych populacji robaków w hodowli ciekłej prowadzi do nadmiernego gromadzenia się bakterii w hodowli, co utrudnia się, gdy potrzebna jest czysta próbka do dalszych testów fenotypowych. Wreszcie, gdy hodowla płynna ulega skażeniu, trudniej ją utrzymać, ponieważ zarodniki grzybów lub komórki bakteryjne łatwo rozpraszają się w podłożu15.
Drugą tradycyjną metodą uprawy C. elegans są naczynia z agaru Petriego. Dostępne komercyjnie szalki Petriego pozwalają łatwo hodować wiele pokoleń robaków mieszanych bez gwałtownych efektów przeludnienia i wysokiego powstawania dauerów, jak w kulturach ciekłych. Jednak wadą wzrostu robaków na tradycyjnych agarowych szalkach Petriego jest to, że największa komercyjnie dostępna szalka Petriego nie daje dużych populacji dżdżownic w badaniu -omics bez dodania kroku synchronizacji wybielacza. Podsumowując, hodowla populacji mieszanych stadij C. elegans na szalkach Petriego agaru jest bardziej odpowiednia do zbierania danych -omicznych, ale potrzebowaliśmy metody generowania bardzo dużych populacji bez hodowli ciekłą.
Przedstawiamy tutaj metodę hodowli i zbierania dużych populacji C. elegans w mieszanym stadium na płytkach hodowli na dużą skalę (LSCP). Pobieranie próbek w tym procesie daje wystarczającą ilość próbek do zebrania danych fenotypowych i populacyjnych, a także wszelkich danych potrzebnych do eksperymentów -omiki (tj. genomiki, transkryptomiki, proteomiki i metabolomiki). Ponadto metoda LSCP wymaga minimalnej manipulacji zwierzętami, krótszego czasu przygotowania użytkownika, zapewnia ścisłą kontrolę środowiskową oraz zapewnia spójne traktowanie każdej próbki przez cały okres badania, co zapewnia ogólną powtarzalność.
Protokół
1. Sterylizacja LSCP i sprzętu
- Przygotuj szklane LSCP przez mycie ręczne, następnie mycie naczynia i następnie autoklawowanie, aby upewnić się, że szkło jest wolne od zanieczyszczeń przed rozpoczęciem eksperymentu. Przechowuj autoklawowane LSCP w czystym, suchym miejscu do momentu użycia.
UWAGA: Upewnij się, że LSCP są bezpieczne do zmywarki i autoklawu. Upewnij się, że pokrywki LSCP są nadające się do mycia w zmywarce. - Przygotuj pokrywki LSCP przez mycie ręczne, a następnie zmywaj naczynia. Przechowuj pokrywki LSCP w czystej pojemnicy do czasu potrzeby.
- W dniu przygotowania Nematode Growth Media Agarose (NGMA) przetrzyj pokrywki LSCP roztworem 10% wybielacza dwukrotnie, a następnie 70% etanolem. Po przetarciu pokrywkami LSCP 10% wybielacza i 70% etanolem, trzymaj pokrywki LSCP w czystej pojemnicy w laminarnym okapu, gdzie będzie przygotowywany NGMA.
2. Przygotowanie podłoża wzrostu nicieni agarozy (NGMA)
- Przygotuj NGMA, łącząc następujące odczynniki z autoklawowaną kolbą Erlenmeyera o pojemności 2 l z batakiem mieszającym na płycie mieszającej: 2,5 g peptonu, 3 g NaCl, 7 g agarozy, 10 g agaru i 975 ml sterylnej wody16. Upewnij się, że całkowita objętość wynosi 1 L. Przyklej foliową kapsułkę do kolby.
UWAGA: Kroki przygotowawcze do NGMA, opisane tutaj, zapewnią wystarczającą ilość materiału na 2,5 LSCP. Protokół można dostosować do wymaganej wielkości partii LSCP w danym eksperymencie. - Autoklawowanie na cyklu ciekłym w temperaturze 121 °C i 21 p.s.i. przez 45 minut.
- Włącz kąpiel wodną i ustaw na 50 °C. Przenieś autoklawowany NGMA do kąpieli wodnej, aby ostygła do 50 °C.
- Przynieś 2-litrową kolbkę Erlenmeyera NGMA do okapu lub wyczyszczonego miejsca i postaw na mieszance. Użyj termometru, aby śledzić temperaturę NGMA.
- Po osiągnięciu stężenia NGMA 50 °C, dodaj następujące składniki w podanej kolejności sterylną jednorazową pipetą wewnątrz okapu lub czystej przestrzeni: 25 mL 1 M KH2PO4 (bufor fosforanu K), 1 mL cholesterolu (5 mg/mL w etanolu), 1 mL 1 M CaCl2, 1 mL 1 M MgSO4, 1 mL nystatyny (10 mg/mL) i 1 mL streptomycyny (100 mg/mL)16.
- Wlej 400 mL NGMA do sterylnego szklanego LSCP, o głębokości około 1,3 cm, pozwól LSCP stwardnieć na płaskiej powierzchni w okapu i umieść pokrywę z folią autoklawową z powrotem na LSCP.
- Po zastygnięciu agaru usuń folię, załóż czystą, szczelną pokrywkę na LSCP i przenieś do 4 °C do przechowywania. Przechowuj NGMA w LSCP w temperaturze 4 °C do momentu użycia i użyj w ciągu 5 dni.
3. Generowanie pokarmu dla E. coli dla NGMA na LSCP
- Aby wygenerować stabilne źródło pożywienia, generuj partie HT115 (DE3) E. coli przy użyciu koncepcji uśredniania małych partii zgodnej z centralnym twierdzeniemgranicznym 17. Przechowywać w temperaturze -80 °C. W razie potrzeby wycofaj zapas(y) bakterii E. coli z -80 °C do rozmrozu18.
UWAGA: W tym protokole zasoby bakteryjne E. coli były hodowane w bioreaktorze. Na końcu wzrostu hodowli hodowla była rozcieńczona w stosunku 1:50, a zmierzony OD600 wynosił 0,4. W ten sposób kultura miała efektywny OD600 z 20. Bakterie były peletowane, ważone i ponownie zawieszane w pożywce K w stężeniu 0,5 g/mL (masa mokra), przelane do 2 mL aliquotów i zamrażone19 mL.
4. Trawnik bakteryjny na NGMA
- Przed rozłożeniem bakteryjnego trawnika należy wyprowadzić LSCP NGMA z 4 °C do temperatury pokojowej (RT) na kilka godzin, aby cała LSCP mogła osiągnąć RT.
- Potrzebne wyciągnięcie zapasu bakteryjnego E. coli z temperatury -80 °C dorozmrozu 18.
- Rozcieńcz materiał(y) bakteryjne E. coli 2 mL bezpłodnego K-medium, aby uzyskać 0,5 g E. coli w 4 mL według NGMA LSCP. Ostrożnie pipetuj 4 mL E. coli w środku NGMA LSCP.
- Użyj sterylnego rozsiewacza, aby rozprzestrzenić bakterie w prostokąt, pozostawiając około 3,8 cm miejsca wokół krawędzi NGMA E. coli wolnego od nich.
- Zostaw NGMA LSCP z E. coli w masce i włączonym wentylatorem przez godzinę, aby zawieszenie E. coli całkowicie wyschło.
- Gdy bakteryjny trawnik wyschnie, mocno przykryj pokrywkę i przechowuj w temperaturze 4 °C do momentu użycia.
5. Robaki kawałkowe w celu zmniejszenia stresu i zmienności wieku w zależności od próbek
- Robaki paskowe z zamrożonego podłoża robaków do świeżo zasianej płyty o długości 6 cm4. Ta płyta będzie służyć jako "główna część talerza".
UWAGA: Chunking to optymalna metoda przenoszenia robaków z homozygotycznego szczepu20. Jeśli szczep jest heterozygoty lub wymaga podtrzymywania przez skubanie i kopulację, chunking nie jest zalecany. Częstotliwość chunkingu może wymagać optymalizacji w zależności od używanych genotypów robaków, temperatury wybranej do wzrostu oraz dalszych kroków. - Gdy płytka główna jest pełna zdrowych dorosłych osobników grawidujących (około 3 dni) i z dużą ilością trawnika E. coli , stosuj się do standardowych wytycznych dotyczących kawałków C. elegans , opisanych w WormBook, aby uzyskać łącznie cztery płyty kawałków4.
- Wszystkie płyty kawałków przechowuj w pomieszczeniu o kontrolowanej temperaturze (CT) w temperaturze 20 °C, chyba że zakreślono inaczej dla wzrostu.
UWAGA: Jeśli użytkownicy tego protokołu nie mają dostępu do pomieszczenia CT, jak opisano tutaj, zaleca się użycie małego inkubatora, w którym można kontrolować temperaturę, lub wyznaczonego pomieszczenia, gdzie warunki środowiskowe można kontrolować w miarę możliwości. Jeśli żadna z tych alternatywnych opcji nie jest dostępna, należy zauważyć, że różnice w przyrostu próby mogą być większe. - Gdy w czwartej płycie zaobserwuje się wiele grawidnych dorosłych osobników, przejdź do kroku 6.
6. Spot blaaching gravid adult adult na LSCP
UWAGA: Ta technika wybielania służy do eliminacji większości zanieczyszczeń i rozpuszczania skórki u hermafrodytów, uwalniając zarodki z dorosłego robaka. Roztwór wybielacza wsiąka w NGMA przed wykluciem się zarodków.
- Wyprowadź LSCP na RT na kilka godzin przed wypatrzeniem robaków bielących.
- Przygotuj stosunek 7:2:1 ddH2O : wybielacz : 5 M NaOH. Zrób ten roztwór zasadowego podchlorynu świeży tuż przed użyciem.
UWAGA: Stosuj ten sam zapas wybielacza i NaOH przez cały czas trwania eksperymentu, aby uniknąć efektu wybielacza w partii. Wybielacz stosowany w tym protokole zawierał podchloryn sodu w stężeniu 5-10%. - Zapal palnik Bunsena i zapal wypal wypal robaka przed dalszą jazdą. Nabierz świeżą E. coli na sterylny rozgarnięty z krawędzi bakteryjnego trawnika na LSCP.
- Wybierz jednego dorosłego osobnika z czwartego kawałka do wybielania punktowego.
- Pipetą włóż 5 μL roztworu zasadowego podchlorynu do jednego rogu LSCP, z dala od trawnika E. coli .
- Umieść zerwanego dorosłego osobnika w 5 μl roztworu zasadowego podchlorynu. Ukłuj nicienie, aby rozbić skórkę i uwolnić jaja.
- Powtórz kroki 6,4–6,6, co daje łącznie 4 razy i równomiernie rozmieszczaj 5 dorosłych osobników z E. coli . Wybierz wszystkie 5 dorosłych osobników grawidnych z tej samej 4. płyty, aby mieć pewność, że do danej próbki zostaną dodane niemal genetycznie izogeniczne osobniki.
- Załóż pokrywę z powrotem na LSCP.
- Powtarzaj kroki dla wszystkich LSCP.
7. Wzrost robaków w pomieszczeniu w kontrolowanej temperaturze (CT)
- Po wybielaniu punktowym załóż pokrywkę szczelnie na LSCP i umieść w pomieszczeniu CT ustawionym na 20 °C z stałym przepływem powietrza i fotoperiodem 12L:12D (12 godzin światła i 12 godzin ciemności).
- Zwróć uwagę na czas i miejsce umieszczenia próbki w sali tomografii.
UWAGA: Pozycja w pomieszczeniu powinna być zawsze dokumentowana, aby zarejestrować wszelkie różnice środowiskowe, które próbki mogą napotkać podczas uprawy. Gdy próbka znajduje się w gabinecie tomografii, powinna pozostać na wyznaczonym miejscu niezakłócona. Nie otwieraj pokrywki LSCP w sali tomografii, aby zmniejszyć ryzyko zanieczyszczenia. - Zabierz LSCP pod mikroskop, poza salą tomografii, aby obserwować wzrost i gęstość populacji.
UWAGA: Każdy szczep i próbka C. elegans różnią się wzrostem, dlatego uważnie obserwuj próbki. Zaleca się niezakłócanie wzrostu LSCP podczas pobytu w sali tomografii, natomiast LSCP były transportowane poza salę tomografii komputerowej, a pokrywki otwierano co 2 dni, aby monitorować wzrost próbki. Zdejmowanie szczelnych pokrywek LSCP co 2 dni pozwala również na przepływO2 do LSCP. - Przed zbiorem upewnij się, że LSCP jest pełne dużej populacji robaków. Skorzystaj z następujących kryteriów, aby zdecydować, czy LSCP jest gotowy do odbioru.
- Upewnij się, że LSCP jest pełne grawidujących dorosłych robaków.
- Upewnij się, że płytka zawiera dużą populację ( czyli robaki pokrywają całą powierzchnię agaru).
- Upewnij się, że na powierzchni agaru nie znajduje się wiele jaj (czyli maksymalna liczba dżdżownic powinna się wykluć).
- Upewnij się, że na płytkach pozostało minimalne lub wcale E. coli , co wskazuje, że robaki mogłyby zgłodnić i wygenerować larwy dauerów, jeśli pozostaną na płytce przez kolejne dwa dni.
UWAGA: Chociaż większość LSCP jest gotowa do zbioru w ciągu 10 do 20 dni, w zależności od szczepu i próbki, należy regularnie sprawdzać każdy LSCP po ustanowieniu tego protokołu, aby określić normalne czasy pobrania.
- Między kontaktem z LSCP czyść rękawice i powierzchnię 70% etanolem, aby uniknąć zanieczyszczenia krzyżowego między szczepami.
8. Pobieranie próbki LSCP
- Włącz i pozwól wirówce ostygnąć do 4 °C przed pobraniem próbek.
- Przygotuj trzy stożkowe probówki po 50 mL z 50 mL roztworu M9 na każdy LSCP do pobrania.
- Oznacz jedną stożkową probówkę 15 mL na każdy LSCP.
UWAGA: Wszystkie etapy wirowania wykonuje się w stożkowej rurce o pojemności 15 mL, ponieważ robaki dobrze się w nich rozpylają. - Wlej 50 mL roztworu M9 (z jednej stożkowej probówki 50 mL w kroku 8.2) na powierzchnię LSCP i okrąż, aby upewnić się, że M9 pokrywa całą powierzchnię NGMA.
- Gdy M9 leży na powierzchni LSCP, nałóż sterylną pipetę serologiczną M9.
UWAGA: Poprzez zagruntowanie sterylnej pipety serologicznej M9 zapewnia się mniej robaków przyklejających się do wnętrza pipety plastikowej, zapobiegając utracie próbki. - Przechyl LSCP tak, aby M9 i populacja robaków zebrały się w jednym rogu LSCP.
UWAGA: Mieszanka roztworu M9 i robaków z LSCP będzie nazywana "zawiesiną ślimakową" w kolejnych etapach strumieniowych. - Używając pipety serologicznej z zapełnioną wodą z automatycznym pipetem, zawieszono pipetę w kształcie robaka i umieściło ją w oryginalnej stożkowej rurce o pojemności 50 mL. Po zebraniu 50 ml zawiesziny robaków umieść stożkową rurkę na dźwigni, aby rozbić grudki bakterii i zanieczyszczenia.
- Powtarzam kroki 8.4 - 8.7, pobierając 150 ml zawiesiny ślimakowej na LSCP.
- Przelej 15 mL zawiesiny ślimakowej z jednej z trzech stożkowych rurek o pojemności 50 mL, wlewając je do oznaczonej 15 mL stożkowej rurki odłożonej w kroku 8.3. Wiruj stożkową rurkę o pojemności 15 mL w dawce 884 x g przez 1 minutę w temperaturze 4 °C. Większość robaków rozpyla się na dnie rurki.
- Zdejmij z nadmiaru nadmuch, upewniając się, że nie ruszasz granulatu robaka.
- Kontynuuj dodawanie około 13 mL zawieszenia ślimakowego do tej samej 15 mL stożkowej rury, powtarzając kroki 8.9 i 8.10, aż zużywa się całe 150 mL zawieszenia ślimakowego. Odwróć rurkę i przemieszaj granulki między wirowaniami, aby zmyć i zachwycić jak najwięcej bakterii i zanieczyszczeń.
UWAGA: Na tym etapie zawartość wszystkich trzech stożkowych lamp o pojemności 50 mL jest skraplana w jednej probówce 15 mL. - Dodaj 10 mL czystego M9 do stożkowej rurki o pojemności 15 ml i pomieszaj granulaty robaków przez odwrócenie. Wiruj stożkową rurkę o pojemności 15 mL w dawce 884 x g przez 1 minutę w temperaturze 4 °C. Saspiruj supernatant, uważnie uważnie nie zakłócając granulki robaka. Powtórz dwa razy.
UWAGA: Jeśli w próbce znajduje się duża ilość zanieczyszczeń lub bakterii, powtarzaj krok 8.12, aż próbka będzie czysta. - Gdy próbka jest czysta, dodaj ddH2O do pelletu dżdżownic, co daje łącznie 10 mL ddH2O i robaków. Porusz granulatkę robaka, odwracając ją. Przejdź szybko do kroku 9.1, ponieważ robaki muszą pozostać w ddH2O przez 5 minut lub krócej, aby uniknąć stresu osmotycznego.
UWAGA: Zawieszanie pelletów robaków w ddH2Ojest preferowanym rozpuszczalnikiem dla kolejnych etapów -omics. Robaki mogą być zawieszone w innych rozpuszczalnikach lub buforach, jeśli są one zgodne z danym eksperymentalnym procesem.
9. Szacunkowanie wielkości populacji
UWAGA: Przejdź szybko przez kroki 9.1–9.7. Mieszanina ddH2 Oi robaków z kroku 8.13 nazywana jest "próbką robaka" w kolejnych etapach.
- Przed pipetowaniem próbki robaka należy stosować końcówkę do stosowania z M9, aby zapobiec przyklejaniu się robaków do wnętrza plastikowej pipety, zapobiegając utracie próbki i zmniejszając wahania liczebności.
- Weź 100 μL aliquot próbki robaka i rozcieńcz ją do 900 μL M9. Dobrze wymieszaj i zrób rozcieńczenie seryjne (1:10, 1:100, 1:1000). Powtórz ten krok dwa razy, aby uzyskać łącznie trzy zestawy replikacji aliquotów.
UWAGA: Robaki pipetujące mogą powodować dużą zmienność w liczbie populacji próbek. Upewnij się, że próbka robaka jest jednorodna przed pipetowaniem pożądanej ilości aliquotu. - Ustaw stożkową rurkę 15 mL na dźwigni, aby kontynuować przenoszenie kultury podczas liczenia aliquotów.
- Upewnij się, że próbka robaka jest dobrze wymieszana i jednorodna. Pipetować 5 μL z próbki robaka w skali 1:10, wysypać na szkiełko mikroskopowe i liczyć liczbę robaków. Jeśli ta liczba jest mniejsza niż około 50 robaków, to również uwzględnij rozcieńczenia 1:100 i 1:1000. Jeśli jest więcej niż 50, przejdź do następnego rozcieńczenia szeregowego.
UWAGA: Jeśli nie da się dokładnie policzyć zbyt wielu robaków, użyj następnego rozcieńczenia szeregowego do liczenia. - Policz każdą aliquotę replikacji każdego rozcieńczenia 3x. Na koniec liczenia, dla większości kultur, udokumentowanych jest łącznie 9 liczeń (czyli 3 liczenia dla każdego powtórzenia aliquotu).
- Uśrednij liczbę rozcieńczeń, aby określić szacowaną wielkość populacji próbki robaka. Te liczby rozcieńczeń określają objętość próbki robaka potrzebną do stworzenia pożądanego rozmiaru aliquotu dla kroków -omiki.
UWAGA: W tym eksperymencie wygenerowano aliquoty około 200 000 robaków o mieszanym stadium. Dodatkowo, do sortowania w dużym cytometrze przepływu cząstek (opisanym w kroku 10) przeznaczono jedną aliquotę około 50 000 robaków mieszanych stopni. - Po rozszczepieniu próbki robaka na odpowiednie aliquoty, szybko zamroz w ciekłym azocie i przechowuj próbkę w temperaturze -80 °C.
UWAGA: Nie zamrażaj aliquotu przeznaczonego do cytometrii przepływu dużych cząstek.
10. (Opcjonalnie) Przygotowanie próbki do cytometrii przepływu dużych cząstek
UWAGA: Kroki 10, 11 i 12 to preferowana przez autorów metoda rejestrowania wzrostu próby (tj. wielkości populacji i rozkładu populacji na etapach cyklu życiowego C. elegans ) oraz określenia sukcesu hodowli. Użytkownicy tego protokołu mogą zastąpić opcjonalne kroki 10, 11 i 12 własnymi wskaźnikami sukcesu wzrostu. Kroki 10, 11 i 12 są opisane tutaj z dwóch powodów; po pierwsze, aby użytkownicy korzystający ze sprzętu w Krokach 10, 11 i 12 mogli powtórzyć te kroki, a po drugie, aby pokazać potwierdzenie tej metody wzrostu. Krok 9 powyżej daje dobre oszacowanie całkowitej liczby robaków do określenia wielkości aliquotów, a krok 10 to bardziej ilościowa metrika do oszacowania liczby i rozkładu populacji dżdżownic w danej próbce.
- Zwiększ aliquot około 50 000 robaków mieszanych (odłożonych w kroku 9.6) do 10 mL objętości całkowitej w roztworze M9.
- Przygotować roztwór składający się z 1 mg/mL E. coli i rozcieńczenia 1:50 z czerwonych fluorescencjowych mikrosfer19.
- Dodaj 200 μL tego roztworu do 10 mL robaków mieszanego stopnia w M9 i inkubuj podczas kołysania przez 20 minut.
- Po 20 minutach wiruj stożkową rurkę o pojemności 15 mL w 884 x g przez 1 minutę w 4 °C.
- Zdejmij z nadmiaru nadmuch, upewniając się, że nie ruszasz granulatu robaka.
- Dwukrotnie przemyj pellet z robakami roztworem M9, aby wyeliminować nadmiar bakterii i czerwone fluorescencyjne mikrosfery.
- Dodaj 5 ml M9 do pelletu dżdżowniczego i upewnij się, że osad wygląda czysto. Jeśli granulat jest czysty, dodaj 5 ml M9 z 50 mM azydu sodu, aby zarówno wyprostować, jak i zabić robaki, dla dokładnego liczenia i rozmiarowania21.
- Dokumentuj czas i datę dodania azydu sodu do próbki.
- Odłóż próbkę na kołyskę do czasu uzyskania cytometrii przepływu dużych cząstek.
UWAGA: Azyd sodu jest znany z wpływu na fizjologię nicieni (czyli długość ciała, metabolizm i termotolerancję). Dlatego ważne jest, aby zauważyć, że robaki czasowe są narażone na działanie azyku sodu, ponieważ wiele z tych efektów fizjologicznych występuje w ciągu22 minut. Ze względu na znane fizjologiczne efekty azydu sodu na robaki, takie leczenie wpłynie na jakość obrazów w dalszej części i powinno być rozważone.
11. (Opcjonalnie) Dokumentowanie rozmieszczenia populacji i przygotowanie płytki 384-dołkowej do obrazowania
UWAGA: Krok 11 wykorzystuje cytometr przepływu dużych cząstek (LPFC). W tym protokole zakłada się podstawową wiedzę LPFC. Inne metody mogą być zastępowane dokumentowaniem wzrostu i rozkładu populacji próbek. Opisane tutaj kroki dotyczą użytkowników, którzy planują użyć LPFC w swoim pipeline23.
- Włącz, wyczyść i zagruntować LPFC, pozwól laserom się nagrzać przez godzinę przed sortowaniem próbek.
- Po ogrzaniu lasera otwórz profil "Histogram" i skaluj do Czasu Lotu (TOF) 2050.
- Dodaj obszar pasków do "Histogramu" obejmujący zakres TOF do 100. Pierwszy obszar barowy obejmuje TOF na poziomie 50-150.
- Kontynuuj tworzenie obszarów z dwudziestoma paskami, każdy obejmujący zakres TOF 100. Te regiony będą obejmować cały zakres TOF od 50 do 2050 roku. Zobacz Tabelę Uzupełniającą 1 , aby poznać dokładne obszary ograniczone do wykorzystania w całym rozkładzie TOF.
- Zachowaj ten zestaw Histogramów jako "Eksperyment" do wykorzystania w przyszłych rozgrywkach LPFC.
- Wybierz skalibrowaną płytkę 384-dołkową lub skalibruj instrument do płytki 384-dołkowej do podawania obiektów.
- Po umieszczeniu w skalibrowanym szablonie płyty z 384 dołkami ustaw szablon tak, aby wydał 20 obiektów z bramkami do czterech dołków (cztery techniczne repliki każdego obszaru bramkowego) dla każdego z 20 obszarów kresków utworzonych podczas kroków 11.3-4. Zobacz Tabelę Uzupełniającą 2 , aby zobaczyć przykładowy rozmieszczenie jak podawać robaki do płytki z 384 dołkami.
- Przełóż próbkę ze kroku 10,9 do stożkowej probówki o pojemności 50 mL i dodaj dodatkowy roztwór M9, aby uzyskać około 40 ml całkowitej objętości.
- Rozpocznij automatyczne sortowanie próbki zgodnie z parametrami ustalonymi w kroku 11.7, jednocześnie mieszając próbkę, aby zapobiec osiadaniu, i jednocześnie wydawanie obiektów z próbki na skalibrowaną płytkę z 384 dołkami.
UWAGA: Upewnij się, że przepływ LPFC pracuje w zakresie 15-20 obiektów na sekundę i określ brak podwójnych do sortowania. - Po posortowaniu całej próbki i podaniu maksymalnej liczby obszarów zamkniętych do płytki z 384 dołkami, należy zdejmować próbkę z LPFC i czyścić urządzenie.
UWAGA: Gdy dotarte są do większych regionów TOF, może być trudno kontynuować napełnianie płyty z 384 odwiertami ze względu na niską liczbę zdarzeń w tym regionie. Wypełnij jak najwięcej obszarów zamkniętych, aby jak najlepiej określić, gdzie znajdują się stadia życia C. elegans w rozkładzie LPFC, zanim skończy się próbka. - Umieść folię uszczelniającą na płytce z 384 dołkami aż do uzyskania obrazu.
UWAGA: Płyta obrazowa jak najszybciej po sortowaniu, ponieważ próbki są traktowane azykiemsodu 22. Czerwone fluorescencyjne mikrosfery można zobaczyć w zebranych plikach danych LPFC (czyli dane PH Red w wyjściowym pliku tekstowym) na podstawie poziomu czerwonej fluorescencji emitowanej w każdym posortowanym obiekcie, co pomaga zidentyfikować, które obiekty to żywe robaki, martwe robaki, dauery lub śmieci24.
12. (Opcjonalnie) Obrazowanie płytki 384-dołkowy
UWAGA: Krok 12 wykorzystuje mikroskop mikrokonfokalny odczytujący płytki. Podstawowa wiedza na temat mikroskopu mikrokonfokalnego jest zakładana w tym protokole. Inne metody mogą być zastępowane dokumentowaniem wzrostu i rozkładu populacji próbek.
- Używam mikroskopu mikrokonfokalnego z mikroskopem mikro-konfokalnym odczytującym płytki i soczewką 20x.
- Otwórz zakładkę "Cel i Kamera" i ustaw tryb "10x Plan ApoLambda".
- Otwórz zakładkę "Camera Binning" i ustaw na "2".
- Otwórz zakładkę "Miejsca do odwiedzenia na płytce" i ustaw "4" miejsc na dołek oraz "nakładające się miejsca 10%", aby później zszyć obrazy.
- Otwórz zakładkę "Długość fali" i ustaw na "Brightfield 1".
- Otwórz zakładkę "Illumination" i ustaw "Światło przepuszczone, jasna próbka".
- Umieść płytkę z 384 dołkami w mikroskopie i ustaw "Stos Z" na "Obliczaj przesunięcie" i znajdź właściwą płaszczyznę ogniskową dla próbek na płycie z 384 dołkami.
- Przeprowadź płytkę z 384 dołkami na mikroskopie mikrokonfokalnym, zbierając cztery obrazy na dołek.
- Zmontuj cztery obrazy razem, aby stworzyć jeden obraz na studnię.
Wyniki
Wzrost C. elegans przy użyciu metody LSCP daje średnio około 2,4 miliona robaków mieszanego stadium na próbkę w ciągu 12,2 dnia. Wzrost C. elegans przy użyciu metody LSCP pozwala użytkownikom generować duże populacje C. elegans w mieszanym stadium przy minimalnym manipulowaniu i manipulacji zwierzętami, co jest idealne dla dużych badań -omiki (Rysunek 1). Gdy LSCP jest pełen dorosłych robaków, osiągnie dużą populację i pozostanie minimalna ilość bakterii, użytkownicy mogą zbierać i oszacować wielkość populacji. Ten punkt może również służyć jako kontrola jakości, oceniając, czy populacja jest wystarczająca do wykorzystania w potoku -omics (Rysunek 2). Dynamika populacji zależy od samego szczepu, jego zachowania (np. odmiany kopiące miały tendencję do mniejszej regeneracji robaków) oraz sukcesu wzrostu (czyli zanieczyszczenia). Metoda LSCP została przetestowana na 15 szczepach C. elegans zawierających mieszaninę mutantów Caenorhabditis Genetics Center (CGC) oraz dzikich szczepów Caenorhabditis elegans (CeNDR) z zasobów naturalnych (CeNDR). Genotypy szczepów opisano w Tabeli Uzupełniającej 3.
Metoda LSCP dała liczebność populacji od około 94 500 do 9 290 000. Średnia wielkość populacji w obrębie referencyjnego szczepu PD1074 i między szczepami wynosiła około 2,4 miliona robaków (Rysunek 3). Nie stwierdzono istotnych różnic w szacowanych wielkościach populacji między szczepami C. elegans w średnim okresie średnio 12,2 dni wzrostu LSCP (Rysunek 4). LSCP PD1074 potrzebowały od 10 do 14 dni, aby osiągnąć pełną populację w stadium mieszanym. Średni czas wzrostu PD1074 wynosił 10 dni. Najwolniej rosnący szczep rósł maksymalnie 20 dni, a najszybciej rozwijający się szczep przez minimum 10 dni (Rysunek 4).
Dlatego dzięki tej metodzie LSCP użytkownicy mogą łatwo integrować nowe interesujące się szczepy w badaniu, mając niewielką wiedzę o czasach rozwoju i doświadczeniach z przeszłości. Należy zauważyć, że szczepy i fenotypy, które muszą być utrzymywane przez skubanie, mają wady płodności, są heterozygotyczne lub mają wady wzrostowe, mogą nie działać dobrze w tym procesie.
Cytometria przepływu dużych cząstek oraz obrazowanie próbek pozwalają użytkownikom dokumentować rozkład populacji. Do pomiaru skutecznego wzrostu populacji można wykorzystać szeroką gamę platform.
Dla powtarzalnych pomiarów -omiki ważne jest hodowanie spójnych kultur. Metrykami powtarzalności hodowli są liczba robaków oraz spójny rozkład wielkości dla danego szczepu. Pokazujemy rozkład próbek dla referencyjnego szczepu PD1074 – wariantu oryginalnego szczepu N2 Bristol, wykorzystując obrazy LPFC23,26 oraz mikroskopem mikrokonfokalnym jako wskaźniki sukcesu wzrostu. Ponieważ robaki były mierzone od stadium L1 przez dorosłego osobnika grawidacyjnego według rozkładu LPFC (rysunek 5), późniejszych obrazów (rysunek 6) oraz zmienności w rozmieszczeniu populacji między próbkami (rysunek 7), widać, że ten kanał generował populację C. elegans w mieszanym stadium.
Aby bliżej przyjrzeć się rozkładowi populacji naszych próbek mieszanych stopni, przyjrzeliśmy się rozkładowi 35 PD1074 LSCP, analizując procent robaków znajdujących się w każdym regionie na całym rozkładzie Time of Flight (TOF) (czyli długości ciała) (Rysunek 7A,B).
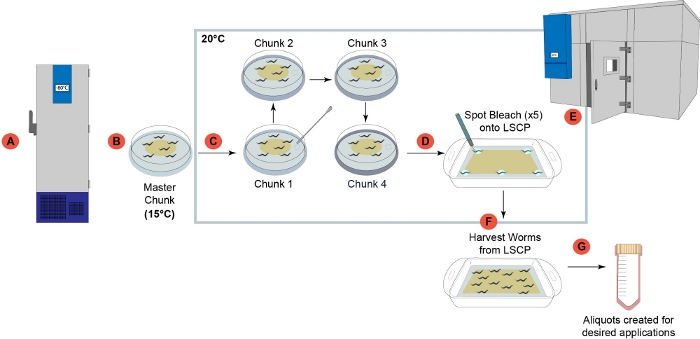
Rysunek 1: Przegląd pipeline'u wzrostu robaka LSCP. (A) Po otrzymaniu do laboratorium wszystkie szczepy były przygotowywane i zamrażane do długoterminowego przechowywania w temperaturze -80 °C2. (B) Przygotowywano płytę "master chunk" z zamrożonego materiału robaczkowego i przechowywano w temperaturze 15 °C, aby używać nie dłużej niż miesiąc. (C) Każda próbka przechodziła przez cztery kolejne etapy chunkingu, aby zmniejszyć stres pokoleniowy przed wzrostem na LSCP. (D) 5 osobników grawidnych dorosłych zostało wybranych z płytki "chunk 4" o wymiarach 6 cm w kroku (D) i wybielonych w miejscach na pięciu wybranych obszarach LSCP. (E) LSCP umieszczono w pomieszczeniu o kontrolowanej temperaturze i uprawiano w temperaturze 20 °C, aż LSCP wypełniło się dorosłymi robakami, osiągnęło dużą populację i pozostało minimalnie bakterii. (F) Populacja robaków była zbierana i zbierana na etapach w dół rzeki. (G) Aliquoty zostały utworzone z LSCP i zamrażone na bieżąco dla dalszych zastosowań. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
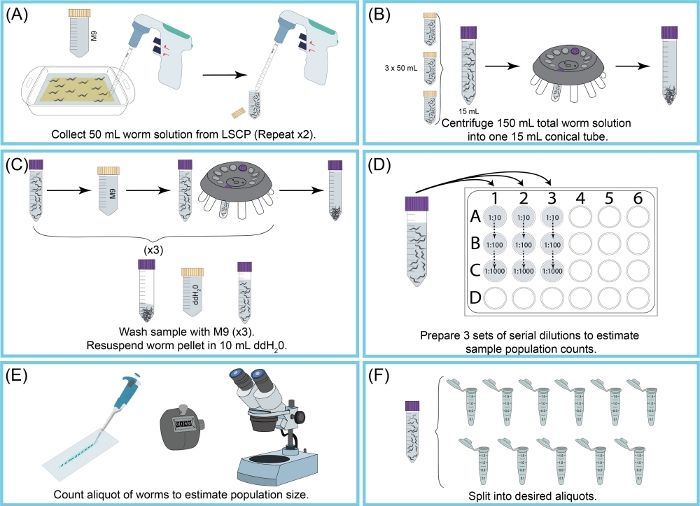
Rysunek 2: Przegląd zbiorów LSCP i szacowanie wielkości populacji. (A) 50 mL M9 zostało użytych do zmycia robaków z powierzchni NGMA. Zawieszenie ślimakowe było podłączane do stożkowej rury o pojemności 50 mL. Krok (A) powtarzano dwukrotnie. (B) 15 mL zawieszenia ślimakowego zostało wlane do nowej stożkowej rury o pojemności 15 mL. Robaki były rozpylane przez wirowanie. Odpadki M9+ zostały odciągnięte bez zakłócania granulek robaków. Krok (B) powtarzano, aż zebrano wszystkie 150 ml zawieszenia ślimakowego. (C) Granulat robaka był myty i wirowany trzykrotnie M9, aby wyeliminować pozostałe zanieczyszczenia. Po oczyszczeniu próbki pellet robaka został ponownie zawieszony w 10 mL ddH2O. (D) Przeprowadzono seryjne rozcieńczanie próbki w celu oszacowania wielkości populacji robaków. Wykorzystano czynniki rozcieńczenia, które pozwalały na dokładne liczenie robaków. Stosowane współczynniki rozcieńczenia zmieniały się w zależności od wielkości populacji LSCP. (E) Po wybraniu czynnika rozcieńczenia wszystkie robaki ze wszystkich trzech aliquotowych replik tego rozcieńczenia były podsuwane pipetą na czyste szkiełko, a robaki liczono pod mikroskopem rozcinającym. (F) Próbka została podzielona na alikwoty o odpowiedniej wielkości. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
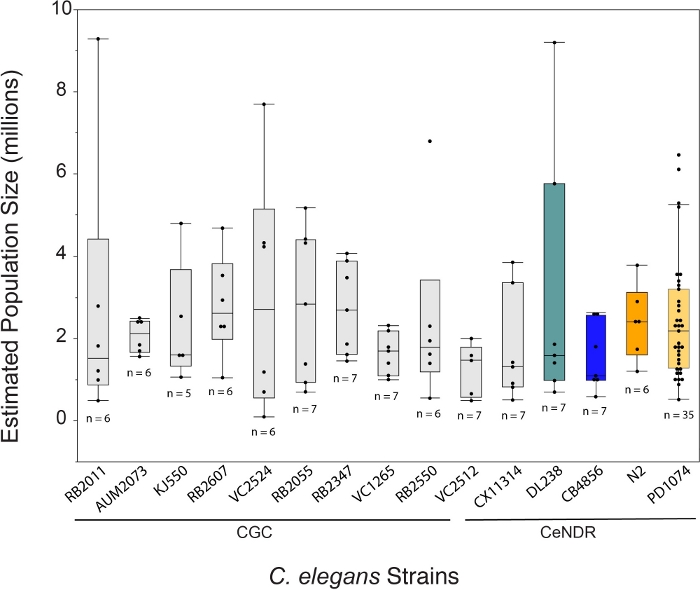
Rysunek 3: Metoda LSCP wygenerowała średnio populację 2,4 miliona robaków o mieszanym stadium. LSCP daje najmniejsze przyrosty populacji około 94 500, a największe około 9 290 000. Średnia wielkość populacji wszystkich szczepów wynosiła 2,4 miliona robaków. Paski pod nazwami szczepów C. elegans wskazują, czy szczep jest mutantem CGC, czy naturalnym izolatem CeNDR. Dla każdego szczepu wyświetlany jest rozmiar próbki LSCP. Przeprowadzono porównania dla wszystkich par za pomocą testu HSD Tukeya. Nie zaobserwowano istotnych różnic między szacowanymi wielkością populacji w szczepach C. elegans (F(14 108) = 0,7, p = 0,77). Kolorowe paski wskazują standardowe kolorowe wyświetlacze dla odpowiedniej reprezentacji szczepu C. elegans . Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
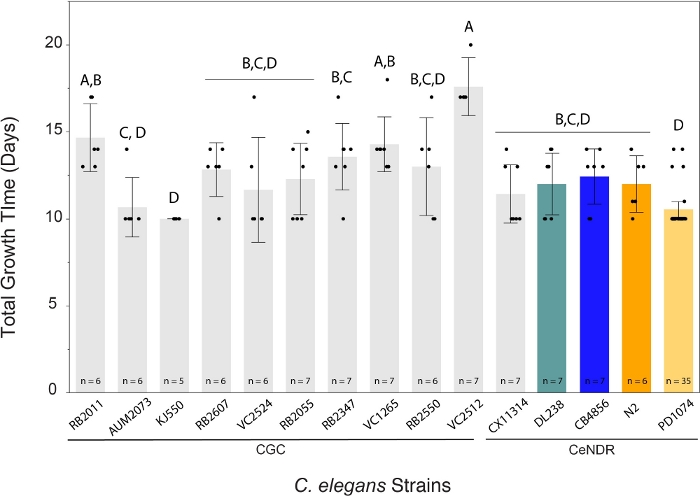
Rysunek 4: Metoda LSCP wygenerowała duże populacje dżdżownic w mieszanym stadium w ciągu 10–20 dni. Dana populacja C. elegans LSCP rosła, aż próbka była pełna dorosłych robaków, osiągnęła dużą populację i pozostała minimalna ilość bakteryjnego trawnika. LSCP potrzebowały od 10 do 20 dni, aby osiągnąć pełną populację stadia mieszanego, w zależności od szczepu. Średni czas wzrostu między szczepami wynosił 12,2 dnia. Dla każdego szczepu wyświetlany jest rozmiar próbki LSCP. Każdy pasek błędu był konstruowany z 1 odchyleniem standardowym od średniej. Poziomy niepołączone tą samą literą są znacząco różne. Porównania dla wszystkich par według testu HSD Tukeya. Istotną różnicę stwierdzono w ilości potrzebnego czasu wzrostu na LSCP między szczepami C. elegans (F(14 108) = 8,8, s. < 0,0001*). Kolorowe paski wskazują standardowe kolorowe wyświetlacze dla odpowiedniej reprezentacji szczepu C. elegans . Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
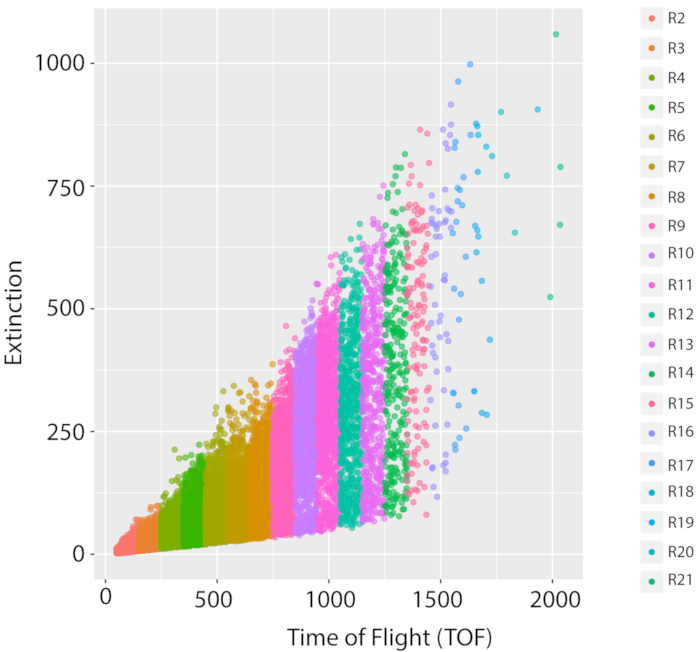
Rysunek 5: Mieszany pomiar populacji i wzrostu referencyjnego szczepu typu dzikiego, PD1074. Reprezentatywny rozkład LPFC jednego wzrostu LSCP dzikiego rodzaju referencyjnego, wariantu oryginalnego szczepu N2 Bristol (PD1074), dokumentuje rozkład wielkości i liczbę zdarzeń populacji mieszanego stadium. Oś x pokazuje długość (Czas lotu, TOF) posortowanych robaków. Oś y pokazuje gęstość optyczną (optyczne wygaszanie, EXT) sortowanych robaków. Każdy punkt danych to robak udokumentowany w próbce. Każdy region TOF używany do analizy obrazu jest wyświetlany w innym kolorze. Utworzono dwadzieścia regionów TOF (R2 – R21) w zakresie od TOF 50 do 2050. Szczegóły dotyczące każdego regionu TOF można znaleźć w Tabeli Uzupełniającej 1. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
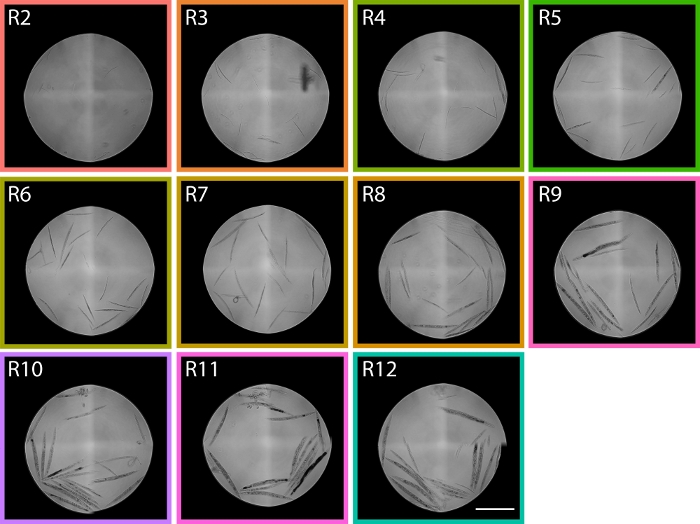
Rysunek 6: Obrazy robaków posortowanych z regionów TOF w zakresie od R2 do R12 pokazują rozkład LPFC PD1074. W regionie R2 można zidentyfikować robaki L1, a w regionie R9 głównie grawidacyjne dorosłe osobniki, obejmujące dwa ekstremalne larwalne rozwojowe, dając nam przybliżone obszary w rozkładzie cytometru przepływowego, gdzie oczekiwane są stadia rozkładu. Pasek skali oznacza 1 mm. Reprezentatywne obrazy pochodzą z rozkładu LPFC pokazanego na Rysunku 5, a kolorowe ramki odpowiadają regionom z Rysunku 5. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
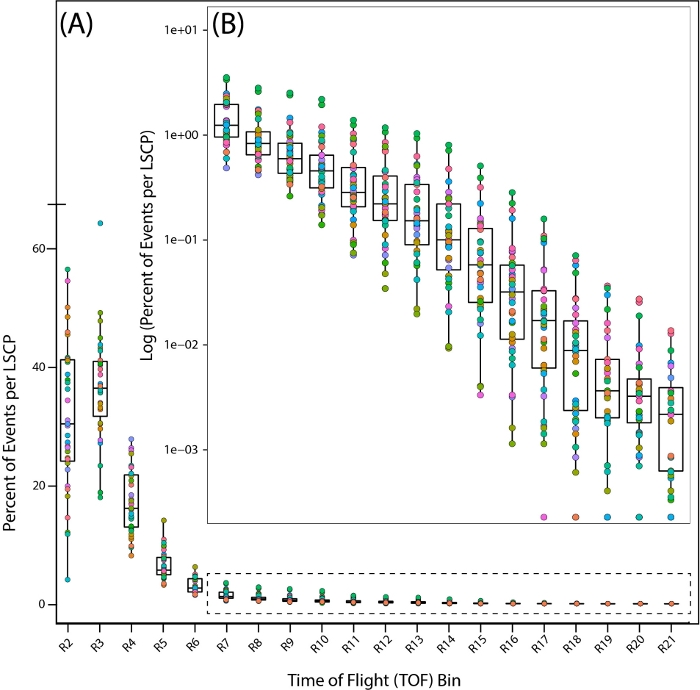
Rysunek 7: Rozkład populacji w regionach czasu lotu (TOF) w referencyjnym szczepie typu dzikiego, PD1074. Rozmieszczenie robaków w całym regionie TOF pokazuje obszary, w których występowały robaki. Każdy PD1074 LSCP jest reprezentowany jako indywidualny kolor. (A) Oś x pokazuje dwadzieścia regionów TOF (R2 – R21) obserwowanych i zliczonych dla LSCP, pokazując cały rozkład rozmiarów. Oś y pokazuje procent robaków z danego LSCP, które miały rozmiar ciała mieściący się w danym obszarze TOF. (B) Ponieważ mniejsza część populacji robaków mieści się między regionami R7-R21, w celu pokazania rozkładu populacji wykonano log procentowy liczby robaków należących do każdego regionu. Oś x wyświetla obszary TOF R7-R21. Oś y pokazuje log procentowy udziału robaków z danego LSCP, które miały rozmiar ciała mieściący się w danym obszarze TOF. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
Rysunek uzupełniający 1: Średnia dzienna temperatura (°C) warunków wzrostu, w których LSCP był uprawiany i traktowany. Zgłoszone temperatury w pomieszczeniu o kontrolowanej temperaturze (CT) były dokumentowane i zbierane przez sześć miesięcy wzrostu i pobierania próbek. Średnia dzienna temperatura jest tutaj podana. Nie zaobserwowano istotnych różnic między temperaturą, w jakiej LCSP rosła w trakcie trwania projektu (F(5,24) = 2,59, p = 0,0524). Cała różnica temperatur nie przekraczała 0,003 °C przez sześć miesięcy wzrostu i generowania próbki. Kliknij tutaj, aby pobrać tę figurkę.
Tabela uzupełniająca 1: Obszary z bramkami TOF używane do sortowania robaków na płytki z 384 dołkami do obrazowania. Regiony wykluczone zostały stworzone, aby obejmować TOF 100 na całym obszarze TOF od 50 do 2050 roku. Strefy zamknięte można zmieniać i optymalizować pod kątem potrzeb. Każdy region TOF używany do analizy obrazu jest wyświetlany w innym kolorze. Kliknij tutaj, aby pobrać tę tabelę.
Tabela uzupełniająca 2: szablon płyty 384-dołkowy regionów TOF oraz układ replikacji. Każda próbka była sortowana na płytce z 384 dołkami do obrazowania. Dla każdego regionu wybranego do sortowania stworzono cztery repliki. Strefy zamknięte można zmieniać i optymalizować pod kątem potrzeb. Zobacz Tabelę Uzupełniającą 1, aby przedstawić konkretne obszary ograniczone utworzone i używane w tym protokole. Każdy region TOF używany do analizy obrazu jest wyświetlany w innym kolorze. Kliknij tutaj, aby pobrać tę tabelę.
Tabela uzupełniająca 3: Szczepy C. elegans stosowane w tym protokole zawierają mieszaninę szczepów CGC i CeNDR. Szczep, genotyp, źródło szczepu oraz szczegóły opisane są w tej tabeli. Kliknij tutaj, aby pobrać tę tabelę.
Dyskusja
Jako LSCP można używać różnych naczyń. W tym protokole używano standardowej szklanej formy do pieczenia. Używane LSPC miały wymiary zewnętrzne 35,56 x 20,32 cm, wewnętrzne 27,94 x 17,78 cm oraz około 4,45 cm głębokości i wyposażone w pokrywę z zamocowaną pokrywą. W związku z tym ilość bakterii użytych tutaj została zoptymalizowana dla LSCP o powyższych wymiarach, aby uzyskać dużą populację robaków o mieszanym stadium. Objętość i stężenie bakterii można dostosować do potrzeb eksperymentalnych.
Zanieczyszczenie pleśnią, grzybami lub innymi źródłami bakteryjnymi może wystąpić na każdym etapie metody LSCP, dlatego należy obchodzić się z próbkami z ostrożnością. Przed rozpoczęciem jakiegokolwiek etapu protokołu upewnij się, że przestrzeń robocza jest oczyszczona 70% etanolem i 10% wybielaczem. Jeśli jest to możliwe, potraktuj używane miejsca światłem UV przez 30 minut i włącz filtr HEPA 30 minut przed rozpoczęciem każdego kroku.
Uprawiając LSCP w kontrolowanych warunkach (czyli w pomieszczeniu CT ustawionym na 20 °C), użytkownik może łatwiej śledzić wzrost próbki i dokumentować potencjalne skażenie. Jeśli powierzchnia LSCP ulega skażeniu, albo wytnij zanieczyszczenie, gdy to możliwe, i pozwól próbce dalej rosnąć, albo wyrzuć ją, jeśli nie da się kontrolować skażenia. Konieczne jest szybkie zwalczanie skażeń, aby ograniczyć niepożądany wzrost i upewnić się, że nie wypiera ono robaków o zasoby.
Ta metoda jest przeznaczona dla tych, którzy chcą uprawiać na dużą skalę kultury mieszanej populacji C. elegans. Chociaż możliwe jest hodowanie zsynchronizowanych populacji robaków na LSCP, tak jak na komercyjnie dostępnych szalkach Petriego i w ciekłej kulturze, autorzy nie testowali tej opcji. Dodatkowo, jeśli użytkownicy chcą wyhodować średnio ponad około 2,4 miliona robaków w danej próbie, zaleca się inną metodę4. Sukces wzrostu zależy od rodzaju szczepu przetwarzanego w rurociągu. Autorzy zdołali z powodzeniem wyhodować populacje około 2,4 miliona robaków w co najmniej pięciu biologicznych replikacjach 15 szczepów C. elegans , co wskazuje, że metoda ta jest solidna.
Przed rozpoczęciem eksperymentu należy zauważyć, że wiek i stan zdrowia danego robaka mogą wpływać na płodność i czas wzrostu populacji. Upewnij się, że robaki są utrzymywane w zdrowych warunkach i minimalnym stresie przed użyciem w tym rurociągu. Zakłada się, że próbki stocku zostały stworzone, zamrożone i przechowywane w temperaturze -80 °C, aby zmniejszyć dryf genetyczny w czasie.
W zależności od potrzeb danego eksperymentu, liczba dorosłych dorosłych na LSCP może się zmieniać. Zmiana liczby dorosłych osobników na LSCP w stanie początkowym wpłynąć na tempo wzrostu, a tym samym czas na podział. Do nasienia każdego LSCP używa się pięciu grawidnych dorosłych osobników z następujących powodów: (1) potrzebny był prosty, szybki i efektywny sposób na jednoczesne zasiewanie wielu szczepów C. elegans na LSCP oraz (2) zmniejszenie różnic wieku między wyselekcjonowanymi dorosłymi, które mogłyby prowadzić do heterogeniczności wzrostu.
Ta metoda pozwala użytkownikowi na zbieranie dużych populacji robaków przy obecności wszystkich etapów cyklu życia. Przy obecnych dostępnych metodach pobieranie dużych próbek C. elegans wymaga synchronizacji wybielacza, aby uzyskać pożądaną liczbę robaków do dalszych prac. Dzięki temu podejściu można teraz hodować tyle robaków, ile było to możliwe wcześniej w fermentorach lub dużych kulturach cieczy, bez trudności związanych z synchronizacją wybielacza i wieloma etapami obróbki. Nasz protokół pozwala efektywnie celować w interesujące szczepy, poświęcać minimalny czas obsługi na wzrost samej próbki oraz izolować stadia robaków lub populacji w razie potrzeby w potokach downstream.
LPFC był wykorzystywany jako narzędzie do dokumentowania rozkładu i wielkości populacji w danym LSCP. Używany LPFC to system ciągłego przepływu, który analizuje, sortuje i rozsypuje robaki na podstawie ich rozmiaru (TOF) i gęstości optycznej. Gdy dany robak przechodzi przez komórkę przepływową, osiowy detektor strat światła rejestruje ilość światła sygnałowego blokowanego przez laser półprzewodnikowy o średnicy 488 nm na czas przejścia przez ni, dając użytkownikowi poziom TOF oraz gęstość optyczną robaka. Optyka i detektory zbierania fluorescencji mogą być również wykorzystywane do maksymalizacji czułości i zbierania fluorescencji na każdej próbce. Parametry zbioru LPFC będą się różnić w zależności od instrumentu. Użytkownicy mogą korzystać z różnych platform do rejestrowania rozmiaru robaka i nie są ograniczeni do korzystania z tego protokołu, jeśli LPFC nie jest dostępny.
Autorzy wykorzystują próbki hodowane metodą opisaną tutaj, aby zidentyfikować nieznane metabolity w różnych szczepach C. elegans za pomocą chromatografii cieczowej – spektrometrii mas, spektroskopii NMR oraz sekwencjonowania RNA. Autorzy planują kontynuować stosowanie tej metody do hodowli próbek w tym potoku z różnymi szczepami C. elegans , ponieważ nowe interesujące szczepy można łatwo przetwarzać za pomocą tego potoku.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Dziękujemy członkom Edison Lab za pomocne dyskusje i opinie dotyczące tego manuskryptu; w szczególności B.M. Garcię. Niektóre szczepy zostały dostarczone przez CGC, finansowane przez NIH Office of Research Infrastructure Programs (P40 OD010440), oraz CeNDR, które jest finansowane przez NSF Living Collections CSBR 1930382. Prace te były wspierane grantem od NIH (U2CES030167).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 10 mL sterylnych pipet serologicznych | VWR | 89130-898 | |
| Końcówki pipety 10 ul | VWR | 89079-438 | |
| Końcówki pipety 100 ul | VWR | 89079-442 | |
| Cylindr z podziałem 1000 mL | VWR | 10124-380 | |
| Końcówki pipety 1000 ul | VWR | 89079-488 | |
| Stożkowe lampy o pojemności 15 mL | VWR | 89039-668 | |
| Etanol 190 proof | VWR | 89125-166 | |
| Kolba Erlenmeyera z szerokim szyjką 2 L | VWR | 75804-654 | |
| Stożkowe lampy o pojemności 50 mL | VWR | 75874-294 | |
| Agar | Sigma | 05040-100G | |
| Agarose | Sigma | A9539-500G | |
| System aspiracji płynu BVC Control G | Vacuubrand | ||
| Chlorek wapnia | Sigma | 449709-10G | |
| Cholesterol | Sigma | C3045-25G | |
| Clorox Bleach | VWR | 89414-502 | |
| Pokój z kontrolą temperatury Conviron | Conviron | https://www.conviron.com/environmental-rooms | |
| Corning Low Volume 384 Well Black z przezroczystym płaskim dnem mikropłytą z polistyrenem TC impregnowanym | VWR | 89089-866 | |
| Fisher Scientific Accuspin 3R | Fisher | ||
| Płytka z płaskim dnem z 24 dołami | VWR | 29443-952 | |
| Honeywell True HEPA Purifier 465 stóp kwadratowych. | Home Depot | 204390560 | |
| HT115 E. coli (DE3) | CGC | HT115(DE3) | https://cgc.umn.edu/strain/HT115(DE3) |
| Kimwipes | VWR | 470224-038 | |
| Płytka hodowli dużej skali (LSCP) | Pyrex | 1090948 | Szklana naczynka Pyrex o pojemności 2 litrów z czerwoną pokrywką |
| Siarczan magnezu | Sigma | C86677-25G | |
| MgSO4 | VWR | 97062-998 | |
| Szkiełka proste mikroskopowe | VWR | 16004-422 | |
| Filtr miliporowy | Millipore | 1.11727.2500 | |
| Urządzenia molekularne ImageXpress | Urządzenia molekularne | Numer modelu: IXMConfocal | https://www.moleculardevices.com/products/cellular-imaging-systems/high-content-imaging/imagexpress-micro-confocal#gref , Autorzy używali oprogramowania MetaXpress w wersji 6.5.4.532 |
| Nystatyna (10mg/mL) | Sigma | N6261-25MU | |
| Peptone | Sigma | P7750-100G | |
| Szalki Petriego (6 cm) | VWR | 25384-092 | |
| Kontroler pipety | VWR | 613-4180 | |
| Chlorek potasu | Fisher | P217-3 | |
| Monozasada fosforanu potasu | VWR | 0781-500G | |
| Wodorotlenek potassu | Fisher | P250-500 | |
| Czerwone Mikrosfery Fluroscent | Nauki polinaukowe | 19507-5 | |
| Chlorek sodu | Sigma | 746398-500G | |
| Wodorotlenek sodu | Fisher | 111357 | |
| Fosforan sodu bezwodny | Fisher | BP332-500 | |
| Standardowy zestaw pipety Gilsona | Gilson | FA10002M, FA10004M, FA10006M | |
| Streptomycyna (100 mg/mL) | Sigma | S6501-25G | |
| Union Biometrica COPAS BioSorter | Union Biometrica | https://www.unionbio.com/biosorter/ , autorzy używali: Flow Pilot w wersji 1.6.1.3. |
Bibliografia
- Félix, M. A., Braendle, C. The natural history of Caenorhabditis elegans. Current Biology. 20 (22), 965-969 (2010).
- Corsi, A. K. A Transparent window into biology: A primer on Caenorhabditis elegans. WormBook. , 1-31 (2015).
- Brenner, S. The genetics of behaviour. British Medical Bulletin. 29 (3), 269-271 (1973).
- Stiernagle, T. Maintenance of C. elegans. WormBook: The Online Review of C. elegans Biology. , https://www.ncbi.nlm.nih.gov/books/NBK19649/ (2006).
- Xiong, H., Pears, C., Woollard, A. An enhanced C. elegans based platform for toxicity assessment. Scientific Reports. 7 (1), 9839(2017).
- Loer, C. M., et al. Cuticle integrity and biogenic amine synthesis in Caenorhabditis elegans require the cofactor tetrahydrobiopterin (BH4). Genetics. 200 (1), 237-253 (2015).
- Li, Y., Paik, Y. K. A potential role for fatty acid biosynthesis genes during molting and cuticle formation in Caenorhabditis elegans. BMB Reports. 44 (4), 285-290 (2011).
- Meli, V. S., Osuna, B., Ruvkun, G., Frand, A. R. MLT-10 Defines a Family of DUF644 and Proline-rich Repeat Proteins Involved in the Molting Cycle of Caenorhabditis elegans. Molecular Biology of the Cell. 21 (10), 1648-1661 (2010).
- Fritz, J. A., Behm, C. A. CUTI-1: A novel tetraspan protein involved in C. elegans CUTicle formation and epithelial integrity. PloS One. 4 (4), 5117(2009).
- Golden, J., Riddle, D. A pheromone influences larval development in the nematode Caenorhabditis elegans. Science. 218 (4572), 578-580 (1982).
- Jeong, P. Y., et al. Chemical structure and biological activity of the Caenorhabditis elegans dauer-inducing pheromone. Nature. 433 (7025), 541-545 (2005).
- Srinivasan, J., et al. A blend of small molecules regulates both mating and development in Caenorhabditis elegans. Nature. 454 (7208), 1115-1118 (2008).
- Kaplan, F., et al. Ascaroside Expression in Caenorhabditis elegans Is Strongly Dependent on Diet and Developmental Stage. PLoS One. 6 (3), 17804(2011).
- Golden, J., Riddle, D. A pheromone influences larval development in the nematode Caenorhabditis elegans. Science. 218 (4572), 578-580 (1982).
- Çelen, İ, Doh, J. H., Sabanayagam, C. R. Effects of liquid cultivation on gene expression and phenotype of C. elegans. BMC Genomics. 19 (1), 562(2018).
- Andersen, E. C., Bloom, J. S., Gerke, J. P., Kruglyak, L. A Variant in the Neuropeptide Receptor npr-1 is a Major Determinant of Caenorhabditis elegans Growth and Physiology. PLoS Genetics. 10 (2), 1004156(2014).
- Rosenblatt, M. A central limit theorem and a strong mixing condition. Proceedings of the National Academy of Sciences. 42 (1), 43-47 (1956).
- Boyd, W. A., Smith, M. V., Freedman, J. H. Caenorhabditis elegans as a model in developmental toxicology. Methods in Molecular Biology. 889, 15-24 (2012).
- Nika, L., Gibson, T., Konkus, R., Karp, X. Fluorescent Beads Are a Versatile Tool for Staging Caenorhabditis elegans in Different Life Histories. Genes, Genomes, Genetics. 6 (7), 1923-1933 (2016).
- Stiernagle, T. Maintenance of C. elegans. , Available from: http://www.wormbook.org/chapters/www_strainmaintain/strainmaintain.html (2020).
- Denver, D. R., Morris, K., Streelman, J. T., Kim, S. K., Lynch, M., Thomas, W. K. The transcriptional consequences of mutation and natural selection in Caenorhabditis elegans. Nature Genetics. 37 (5), 544-548 (2005).
- Massie, M. R., Lapoczka, E. M., Boggs, K. D., Stine, K. E., White, G. E. Exposure to the metabolic inhibitor sodium azide induces stress protein expression and thermotolerance in the nematode Caenorhabditis elegans. Cell Stress & Chaperones. 8 (1), 1-7 (2003).
- Kevin, S., Pulak, R. Techniques for Analysis, Sorting, and Dispensing of C. elegans on the COPAS Flow-Sorting System. C. elegans. Methods in Molecular Biology. Strange, K. 351, Humana Press. 275-286 (2006).
- Lee, D., et al. Selection and gene flow shape niche-associated variation in pheromone response. Nature Ecology & Evolution. 3 (10), 1455-1463 (2019).
- Cook, D. E., Zdraljevic, S., Roberts, J. P., Andersen, E. C. CeNDR, the Caenorhabditis elegans natural diversity resource. Nucleic Acids Research. 45, 650-657 (2016).
- Nika, L., Gibson, T., Konkus, R., Karp, X. Fluorescent Beads Are a Versatile Tool for Staging Caenorhabditis elegans in Different Life Histories. Genes, Genomes, Genetics. 6 (7), 1923-1933 (2016).
Przedruki i uprawnienia
