Ten artykuł przedstawia metody hodowli miocytów serca o różnych kształtach, które reprezentują różne patologie, oraz sortowania tych przylegających miocytów serca na podstawie ich morfologii na poziomie pojedynczej komórki. Proponowana platforma zapewnia nowatorskie podejście do wysokoprzepustowych badań przesiewowych i badań przesiewowych leków w kierunku różnych rodzajów niewydolności serca.
Artykuł metodologiczny
Podejście do badania transkryptomiki zależnej od kształtu na poziomie pojedynczej komórki
W tym artykule
Podsumowanie
Streszczenie
Różne rodzaje przerostu mięśnia sercowego były związane ze zwiększoną objętością miocytów serca (CM), wraz ze zmianami w morfologii CM. Podczas gdy wpływ objętości komórek na ekspresję genów jest dobrze znany, wpływ kształtu komórki nie jest dobrze poznany. W artykule opisano metodę, która została zaprojektowana w celu systematycznej analizy wpływu morfologii CM na ekspresję genów. Szczegółowo opisano w nim opracowanie nowatorskiej strategii pułapki pojedynczych komórek, po której następuje sekwencjonowanie mRNA pojedynczych komórek. Zaprojektowano również mikrowzorzysty chip, który zawiera 3000 prostokątnych mikrowzorów fibronektyny. Umożliwia to hodowlę CM w różnych proporcjach długości do szerokości (AR), odpowiadających różnym typom niewydolności serca (HF). W artykule opisano również protokół, który został opracowany w celu wychwytywania pojedynczych komórek z ich wzorca za pomocą półautomatycznego mikropipetowania komórek i indywidualnego wstrzykiwania ich do oddzielnego buforu do lizy. Umożliwiło to profilowanie transkryptomów pojedynczych CM o zdefiniowanych morfotypach geometrycznych i scharakteryzowanie ich zgodnie z szeregiem normalnych lub patologicznych stanów: kardiomiopatia przerostowa (HCM) lub kardiomiopatia następcza/koncentryczna kontra rozstrzeniowa (DCM) lub obciążenie wstępne/ekscentryczne. Podsumowując, w artykule przedstawiono metody hodowli CM o różnych kształtach, które reprezentują różne patologie, oraz sortowania tych przylegających CM na podstawie ich morfologii na poziomie pojedynczej komórki. Proponowana platforma zapewnia nowatorskie podejście do wysokoprzepustowych badań przesiewowych w kierunku różnych rodzajów niewydolności serca.
Wprowadzenie
Według Światowej Organizacji Zdrowia, choroby układu krążenia (CVD) są główną przyczyną zachorowalności i śmiertelności na całym świecie. Choroby układu krążenia dramatycznie wpływają na jakość życia ludzi i mają ogromny wpływ społeczno-ekonomiczny. Kardiomiopatie takie jak HCM i DCM są pierwotnymi zaburzeniami mięśnia sercowego, a główne przyczyny niewydolności serca są związane z wysoką zachorowalnością i śmiertelnością. Istnieje wiele przyczyn niewydolności serca, w tym skutki środowiskowe, takie jak infekcje i narażenie na toksyny lub niektóre leki8. HF może być również spowodowany predyspozycjami genetycznymi, a konkretnie mutacjami9. Uważa się, że zmiany w składzie genetycznym, które wpływają na cząsteczki macierzy zewnątrzkomórkowej (ECM), integryny lub białka cytoszkieletu, mogą być odpowiedzialne za upośledzenie mechanosensacji i różne rodzaje chorób serca10.
Główną cechą HCM jest niewyjaśniony przerost lewej komory11, a czasami prawej komory12, co często objawia się dominującym zajęciem przegrody międzykomorowej. HCM charakteryzuje się również dysfunkcją rozkurczową oraz nieładem i zwłóknieniem miocytów13. W większości przypadków na aparat skurczowy serca wpływają mutacje w białkach sarkomerowych, co prowadzi do zwiększonej kurczliwości miocytów14. Natomiast DCM charakteryzuje się poszerzeniem jednej lub obu komór i ma etiologię rodzinną w 30% do 50% przypadków15. DCM wpływa na szeroki zakres funkcji komórkowych, prowadząc do upośledzenia skurczu miocytów, śmierci komórek i naprawy zwłóknienia16.
Genetyka wykazała, że pewne rodzaje mutacji zmuszają pojedyncze CM do przyjęcia określonych cech kształtu podczas HCM3, a mianowicie komórek w kształcie kwadratu o długości AR o długości do szerokości, która jest prawie równa 1:14 (AR1). To samo dotyczy DCM, z wydłużonymi komórkami z AR prawie równym 11:1 (AR11). Ponadto niewydolność serca może być spowodowana zwiększonym obciążeniem następczym (np. w nadciśnieniu). W takich przypadkach wymagania hemodynamiczne zmuszają CM do przyjmowania kwadratowych kształtów, zgodnie z prawem Laplace'a, a AR zmienia się z 7:15 (AR7) na 1:16,7. HF może być również spowodowany wzrostem napięcia wstępnego (np. w warunkach, które prowadzą do przeciążenia woluminu). Kiedy tak się dzieje, ograniczenia biofizyczne zmuszają CM do wydłużenia, a AR zmienia się z 7:1 na 11:1.
Aktywność sygnalizacyjna na błonach zależy od globalnych parametrów geometrii komórki, takich jak AR komórki, rozmiar, powierzchnia błony i krzywizna błony18. Kiedy nowonarodzone szczury CM zostały posiane na podłożach, które były wzorzyste tak, aby ograniczać komórki w określonej długości i szerokości AR, wykazały najlepszą funkcję kurczliwości, gdy proporcje były podobne do komórek w zdrowym dorosłym sercu. W przeciwieństwie do tego, wypadły słabo, gdy proporcje były podobne do miocytów w niewydolnych sercach19. We wczesnych stadiach przerostu komórki stają się szersze, co znajduje odzwierciedlenie we wzroście pola przekroju poprzecznego. HF występuje w późniejszych stadiach hipertrofii, a komórki zazwyczaj wydają się wydłużone. Dlatego nie jest zaskakujące, że szczurze modele przewlekłej przerostu in vivo wykazały wzrost długości miocytów lewej komory o około 30%20, ale dorosłe CM z transgenicznego modelu myszy, które były ostro leczone bodźcami przerostowymi in vitro, wykazywały podobny wzrost szerokości komórek21.
Sekwencjonowanie RNA pojedynczej komórki, które pozwala na precyzyjną analizę transkryptomu pojedynczych komórek, obecnie rewolucjonizuje zrozumienie biologii komórki. Technologia ta była preferowaną metodą, jeśli chodzi o odpowiedź na pytanie, w jaki sposób kształty poszczególnych komórek wpływają na ekspresję genów. Porównaliśmy pojedyncze komórki o różnych kształtach, w szczególności z AR 1:1, 7:1 lub 11:1. Dokonano tego poprzez zasianie CM komór noworodków szczurów na specjalnie zaprojektowanym chipie wypełnionym mikrowzorcami pokrytymi fibronektyną2 ze zdefiniowanymi AR 1:1, 7:1 lub 11:1. Mikrowzory zostały wykonane przy użyciu technologii fotolitografii. Mikrowzory zostały pokryte fibronektyną, otoczoną cytofobiczną powierzchnią. W związku z tym CM będą dołączać, rozprzestrzeniać i wychwytywać zdefiniowany AR mikrowzorów, rosnąc wyłącznie na podłożu fibronektyny, unikając obszaru cytofobicznego. Mikrowzory nie są w dobrze ukształtowanym formacie. Zamiast tego poziom fibronektyny znajduje się dokładnie na tej samej wysokości, co otaczający obszar cytofobiczny. Zapewniło to warunki podobne do wzrostu komórek na szalce Petriego, ponieważ nie ma naprężeń ze strony otaczających ścian. Ponadto powierzchnia mikrowzorów z różnymi AR jest równa.
Były dwa szczególnie ważne aspekty projektu eksperymentalnego, które doprowadziły do użycia sekwencjonowania RNA pojedynczej komórki zamiast sekwencjonowania masowego RNA. Po pierwsze, tylko kilka procent mikrowzorów może być zajętych przez pojedynczą komórkę. Po drugie, czasami pojedyncza komórka nie zajmuje w pełni powierzchni mikrowzoru. Pojedyncze komórki, które całkowicie pokrywają powierzchnię mikrowzoru, muszą zostać wybrane do analizy RNA pojedynczej komórki. Ponieważ tylko podgrupa posianych komórek na chipie spełniała oba kryteria, nie było możliwe po prostu trypsynizowanie całego chipa i zebranie wszystkich komórek do masowego sekwencjonowania RNA. Zakwalifikowane komórki musiały być wybierane indywidualnie za pomocą półautomatycznego kompletatora komórek.
Obecnie nie wiadomo, czy kształt CM sam w sobie ma intrafunkcjonalny wpływ na syncytium mięśnia sercowego. Głównym celem metod zaproponowanych w tym artykule było opracowanie nowatorskiej platformy do zbadania, czy kształt komórki sam w sobie ma wpływ na transkryptom17. Chociaż badania in vitro różnią się od badań in vivo, celem tego badania było zbadanie wpływu różnych kształtów komórek na ekspresję genów, mając na uwadze, że porównywanie komórek o różnych kształtach in vivo jest niezwykle wymagające. Eksperymenty te zostały zainspirowane przez Kuo et al.19, którzy zastosowali podobne podejście i poinformowali, że zaobserwowali zmiany parametrów fizjologicznych spowodowane zmianami w kształcie komórki.
Protokół
Wszystkie procedury dotyczące zwierząt były zgodne z regulaminem komisji etyki zwierząt Karolinska Institutet, Sztokholm, Szwecja.
1. Układ chipów z mikrowzorzyskiem
- Użyj specjalnie zaprojektowanego chipa (Tabela materiałów) (Rysunek 1A): szkiełko nakrywkowe o wymiarach 19,5 mm x 19,5 mm z aktywowanymi mikrowzorami, wydrukowane metodą fotolitografii na szkle borokrzemianowym.
UWAGA: Te mikrowzory są otoczone obszarem cytofobicznym. Dlatego zasiana komórka może przyczepić się i rosnąć tylko na jednym z tych mikrowzorców i uchwycić AR tego mikrowzorca. Chip jest podzielony na trzy strefy, a każda strefa składa się z mikrowzorów z określonym AR. Układ chipów jest pokazany w Rysunek 1B. Geometrię zdefiniowanych AR przedstawiono w tabeli 1. Powiększone obrazy fluorescencyjne przedstawiające różne kształty mikrowzorów fibronektyny są pokazane na dolnych obrazach w Rysunek 1B.
2. Powlekanie mikrowzorów na wiórach
- Przygotuj 2x roztwór białka otoczkowego dla każdego chipsa, dodając 80 μg fibronektyny do 2 ml soli fizjologicznej buforowanej fosforanami (PBS-/-).
- Przenieś wiór na szalkę Petriego Greinera o średnicy 35 mm i natychmiast dodaj 2 ml PBS-/-. Następnie dodaj 2 ml 2x roztworu białka otoczkowego.
- Inkubować frytki w temperaturze pokojowej przez 2 godziny.
- Przemyć roztwór powlekający, kolejno rozcieńczając go PBS-/-. Powierzchnia wióra powinna być zawsze mokra. Następnie zastąpić PBS 2 ml pożywki galwacyjnej i inkubować w temperaturze 37 °C aż do wysiewu komórek.
3. Izolacja CM
- Przygotować pożywkę galwaniczną, uzupełniając DMEM:M199 (4:1) 10% surowicą końską, 4% płodową surowicą bydlęcą, 2% HEPES (1 M) i 1% penicyliną/streptomycyną (10 000 U/ml)22.
- Wypreparuj tkankę z lewej komory 2-dniowych nowonarodzonych serc szczurów i przenieś do 10 cm naczynia zawierającego PBS. Pokrój tkankę na około 1 mm3 kawałki.
- Przenieś pobraną tkankę do probówki z rotorem-nasadką, wyposażonej w rotor w nasadce do dysocjacji tkanek (Tabela materiałów). Pozwól tkance się uspokoić, a następnie ostrożnie usuń supernatant.
- Dodać 2,5 ml mieszaniny enzymów 1 i 2, przygotowanej przy użyciu zestawu do dysocjacji serca noworodka (tabela materiałów), do probówki C i szczelnie zamknąć nakrętkę.
- Włóż rurkę nasadki wirnika na tuleję dysocjatora, wyposażoną w grzałki (Rysunek 2A i B) (Tabela materiałów). Uruchom program inkubacyjny 37C_mr_NHDK_1 (Rysunek 2C), który trwa około godziny.
- Podczas trwania programu inkubacji należy przygotować bufor PEB zawierający 2 mM EDTA i 0,5% albuminy surowicy bydlęcej (BSA) w PBS, pH 7,2 i utrzymywać go w temperaturze 4 °C.
- Po zakończeniu programu inkubacji odłącz rurkę z pokrywą wirnika (Rysunek 2D) i dodaj 7,5 ml wstępnie podgrzanego podłoża galwanicznego.
- Zawiesić próbkę i przefiltrować zawiesinę komórek za pomocą sitka o wielkości 70 μm.
- Umyj sitko kolejnymi 3 ml środka galwanicznego.
- Odwirować zawiesinę komórkową o sile 600 x g przez 5 minut. Całkowicie odessać supernatant.
- Zawiesić osad komórkowy w 60 μl zimnego buforu PEB.
- Dodaj 20 μl koktajlu izolacyjnego kardiomiocytów noworodków (tabela materiałów), zawierającego kulki o rozmiarach mikronów, które są ukierunkowane na osoby inne niż CM.
- Dodać 20 μl kulek przeciw czerwonym krwinkom (tabela materiałów).
- Wymieszać zawiesinę i inkubować w temperaturze 4 °C przez 15 minut.
- Dodać 400 μL buforu PEB.
- Nałóż zawiesinę ogniw na kolumnę LD (Tabela Materiałów), która została włożona pionowo do stojaka magnetycznego i dobrze umyta buforem PEB.
- Zebrać nieoznakowane komórki i przemyć kolumnę 0,5 ml buforu PEB.
- Dodać 8 ml pożywki galwanicznej i przenieść zawiesinę komórek do niepowlekanej kolby hodowlanej o długości 75cm2 i inkubować w temperaturze 37 °C przez 1,5 godziny. Pozostałe organizmy niebędące CM zaczną przylegać do niepowlekanej hodowli komórkowej, a zawiesina komórek zostanie wzbogacona przez populację CM.
4. Wzorzyste CM
UWAGA: Porównaliśmy pojedyncze CM z AR 1:1, 7:1 lub 11:1. Odbywa się to poprzez wysiew izolowanych CM noworodków szczurów na specjalnie zaprojektowanym chipie wypełnionym mikrowzorami pokrytymi fibronektyną ze zdefiniowanymi AR 1:1, 7:1 lub 11:1. Mikrowzory zostały pokryte fibronektyną, otoczoną cytofobiczną powierzchnią. W związku z tym CM będą dołączać, rozprzestrzeniać i wychwytywać zdefiniowane AR mikrowzorców, rosnąc wyłącznie na substracie fibronektyny. Ułóż wzorzec izolowanych CM zgodnie z poniższymi krokami.
- Przenieść zawiesinę komórek do probówki o pojemności 15 ml, policzyć komórki i rozcieńczyć do stężenia 100 000 komórek na ml, dodając odpowiednią pożywkę galwaniczną.
- Dodać 2 ml zawiesiny komórek na chip, który został już zanurzony w 2 ml ciepłego podłoża galwanicznego wewnątrz szalki Petriego Greinera o średnicy 35 mm.
- Inkubować szalkę w temperaturze 37 °C z 5% CO2 , aby CM mogły przyczepić się do mikrowzorów pokrytych fibronektyną i umożliwić każdemu CM uzyskanie AR mikrowzoru substratu.
- Po 18 godzinach sprawdź chip. Jeśli większość komórek jest przyczepiona, odłącz i usuń zanieczyszczenia i martwe komórki, które są przyczepione do wzorzystej komórki. W tym celu należy usunąć podłoże galwaniczne i delikatnie dodawać kroplami PBS-/-, zaczynając od środka chipa, a następnie przesuwając się w kierunku boków. Powtórz 2 razy.
- Odessać PBS świeżą pożywką podtrzymującą, uzupełniając DMEM: M199 (4: 1) 4% surowicą końską, 4% płodową surowicą bydlęcą, 2% HEPES (1 M) i 1% penicyliną / streptomycyną (10 000 U / ml).
5. Wybieranie zwolenników CM
UWAGA: Po okresie hodowli trwającym 72 godziny, wzorzyste pojedyncze CM są wybierane z ich mikrowzorów fibronektyny za pomocą półautomatycznego pickera komórek (Tabela Materiałów) (Rysunek 3). Selektor komórek wykorzystuje software23 do sterowania zmotoryzowanym etapem (Rysunek 3A). Szklana mikrokapilara o grubości 70 μm (ryc. 3B) służy do pobierania i wstrzykiwania wzorzystych CM noworodków szczurów. Picker komórek sortuje przylegające komórki, wytwarzając próżnię i wstrzykując komórki poprzez wywieranie nacisku. Podciśnienie w strzykawce numer 1 jest stosowane poprzez pociągnięcie strzykawki za pomocą pompy strzykawkowej (Rysunek 3C). Ciśnienie hydrostatyczne opiera się na grawitacji i jest indukowane przez umieszczenie strzykawki nr 2 w odległości 87 cm nad biurkiem mikroskopu. Strzykawki 1 i 2 są odpowiednio połączone za pomocą rurek PTFE z zaworami 1 i 2, które są wbudowane w jednostkę sterującą (Rysunek 3D). Rurki PTFE są całkowicie wypełnione wodą wolną od RNaz. Pobrana pojedyncza komórka jest następnie wstrzykiwana do probówki reakcji łańcuchowej polimerazy (PCR), zawierającej 3,55 μl buforu do lizy.
- Po okresie hodowli wynoszącym 72 godziny usuń stare podłoże i delikatnie przepłucz powierzchnię wiórów ciepłym DPBS-/-.
- Trzymaj naczynie płasko i delikatnie odessaj stare podłoże pipetą o pojemności 1000 μl z jednej strony naczynia. Upewnij się, że chip pozostaje mokry przez cały czas.
- Dodaj 2 ml DPBS-/- delikatnie i kroplami, odłącz większość martwych komórek, które są przyczepione do komórek wzorzystych, zaczynając od środka chipa, a następnie przesuwając się na jego boki.
- Zassaj większość DPBS, aby usunąć jak najwięcej oderwanych pływających komórek, zaczynając od środka chipa, a następnie przesuwając się na boki.
- Powtórz kroki 5.1.2 i 5.1.3 jeszcze raz.
- Użyj kątowych kleszczy, aby chwycić krawędź wióra i natychmiast przenieś go na nową, sterylną szalkę Petriego Greinera o średnicy 35 mm, aby zmniejszyć liczbę pływających komórek podczas pobierania.
- Natychmiast dodaj 1,5 ml DPBS-/-, aby chip nie wysechł.
- Dodaj 1,5 μl Vibrant Dye Cycle green, aby uwidocznić jądra żywych komórek.
- Umieść wiór na środku szalki Petriego Greinera za pomocą końcówki kleszczy.
- Umieść komorę (tabelę materiałów) na chipie. Komora przymocuje chip do dna naczynia, nie blokując dostępu do wzorów komórek.
- Zamontuj szalkę Petriego Greinera na uchwycie szalki stopnia pobierania komórek i włóż nasadkę magnetyczną.
- Skalibrować automatyczne wstrzyknięcie.
- Zlokalizuj krzyż nitkowy, który jest wygrawerowany na stoliku z napędem w środku obrazu w oknie podglądu na żywo.
- Skoncentruj się na celowniku i wybierz przycisk Kalibracja automatycznego wstrzykiwania w oknie Skanowanie i sortowanie.
- Zastąp DPBS-/- 1,5 ml DPBS/trypsyny-/- (1:1), gdy naczynie jest na scenie, aby poluzować komórki z fibronektyny, aby można było użyć płynnej próżni do pobrania komórek.
- Zeskanuj cały chip za pomocą zakładki Skanowanie w oknie Skanowanie i sortowanie. Znajdź lewy górny róg chipa w polu view i kliknij Uzyskaj aktualną pozycję mikroskopu w lewym górnym rogu.
- Następnie przesuń zmotoryzowany stage do prawego dolnego rogu chipa. Ustaw ostrość mikroskopu i kliknij Uzyskaj aktualną pozycję mikroskopu w prawym dolnym rogu.
- Kliknij przycisk Ustaw najostrzejszą płaszczyznę i w wyskakującym oknie kliknij Przejdź do prawego górnego rogu. Ustaw ostrość mikroskopu i kliknij Idź w lewym dolnym rogu i ustaw ostrość. Po zakończeniu kliknij przycisk Zakończ i rozpocznij skanowanie.
- Po zakończeniu skanowania przejdź do zakładki Analiza i wybierz pojedyncze komórki, które spełniają kryteria badania.
- Upewnij się, że szklana mikrokapilara znajduje się pośrodku podglądu na żywo mikroskopu.
- Steruj pompą strzykawkową za pomocą okna Pompa w oprogramowaniu. Stwórz próżnię, pobierając 4 ml z 50 ml strzykawki numer 1 o średnicy 27 mm.
- Na karcie Sortowanie
- Ustaw parametry wtrysku zaworów. Obliczono, że objętość iniekcji, która dostarczyła pobraną pojedynczą komórkę, wynosiła 1 μl, jeśli zawór 2 był otwarty na 120 milisekund, a następnie zawór 1 otwarty na 20 milisekund po upływie 200 milisekund. Ze względu na elastyczność rurek otwórz zawór 1, aby zatrzymać wtryskiwanie przepływu.
- Ustaw parametry pobierania zaworów. Obliczono, że jeśli zawór 1 był otwarty na 20 milisekund, a następnie zawór 2 był otwarty na 10 milisekund, po upływie 10 milisekund można podnieść większość wzorzystych komórek. Dzieje się tak, ponieważ ich wiązania fibronektyny zostały poluzowane po leczeniu trypsyną.
- Kliknij przycisk Oblicz ścieżkę. Oprogramowanie oblicza najszybszą ścieżkę od komórki do komórki, aby pobrać i wstrzyknąć wybrane komórki w całym chipie.
- Ustaw ostrość mikroskopu na wzorzystej komórce na powierzchni chipa.
- Za pomocą joysticka ostrożnie przesuń mikrokapilę w dół, tak aby uzyskać najostrzejszy obraz końcówki mikrokapilary bez dotykania komórki.
- Kliknij przycisk Set (Ustaw) w sekcji Offset (Przesunięcie mikropipety). Pojawi się nowe okno pokazujące przekrój mikrokapilarny. Kliknij dokładny środek kapilary. Oprogramowanie zarejestruje następnie przesunięcie końcówki kapilary we współrzędnych x, y i z.
- Uruchom sortowanie za pomocą przycisku Rozpocznij sortowanie.
Wyniki
Tkankę wycięto z lewej komory serc noworodków szczura w 2. dniu życia i rozdzielono na pojedyncze komórki. Następnie wzbogacone CM wysiano na chip zawierający wzory fibronektyny o różnych AR. Po 72 godzinach hodowli medium zastąpiono roztworem Vibrant Dye Cycle green w DPBS-/- w rozcieńczeniu 1:1000 na 2 min, aby zwizualizować jądra żywych komórek. Następnie komórki potraktowano DPBS-/-/trypsyną (1:1), aby poluzować ich wiązanie z fibronektyną, co umożliwiło zastosowanie próżni fluidycznej w celu ułatwienia pobierania komórek. Jednocześnie cały chip przeskanowano przy powiększeniu 10x, używając mikroskopu odwróconego połączonego z systemem do pobierania komórek. Czynność tę wykonano przed zaokrągleniem się komórek w wyniku działania trypsyny. Na podstawie obrazu skanowanego wybrano odpowiednie komórki i zapisano ich współrzędne w oprogramowaniu do pobierania komórek. Wybierano tylko te mikro wzory, które zawierały jedną jednojądrową komórkę i tylko wtedy, gdy komórka całkowicie pokrywała swój mikrowzór fibronektyny. Sorter komórek pobierał wybrane komórki jedna po drugiej, a każda pomyślnie pobrana pojedyncza komórka była natychmiast wstrzykiwana do oddzielnej probówki PCR i umieszczana na stoliku mikroskopu. Każda probówka PCR zawierała 3,55 µL buforu lizującego (Tabela 2). Proces sortowania, który rozpoczął się od usunięcia medium, zakończył się w ciągu 40 minut. Syntezę komplementarnego kwasu dezoksyrybonukleinowego (cDNA), preamplifikację PCR oraz oczyszczanie przeprowadzono na lizowanych pojedynczych komórkach zgodnie z protokołem Smart-Seq224 (Tabela 3). Jakość oczyszczonego cDNA sprawdzono za pomocą automatycznego analizatora elektroforetycznego. Elektroferogram preamplifikowanego cDNA jednej pobranej pojedynczej komórki przedstawiono na Rysunku 4. Biblioteki RNA-Seq przygotowano zgodnie z protokołem Smart-Seq224.
Aby zaobserwować strukturę sarkomerów w uporządkowanych kardiomiocytach (CM), kardiomiocyty te barwiono przeciwciałem przeciwko α-aktininie sarkomerowej. W celu przeprowadzenia barwienia wtórnego komórki inkubowano z przeciwciałem Donkey Anti-Mouse IgG Alexa Fluor 488 w rozcieńczeniu 1:800 przez 1 godzinę w temperaturze pokojowej. Jądra komórkowe barwiono DAPI w stężeniu 1 µg/mL. Obrazy immunofluorescencyjne pozyskano za pomocą odwróconego mikroskopu konfokalnego, używając obiektywu imersyjnego olejowego 63x (NA 1,4) (Rycina 5).
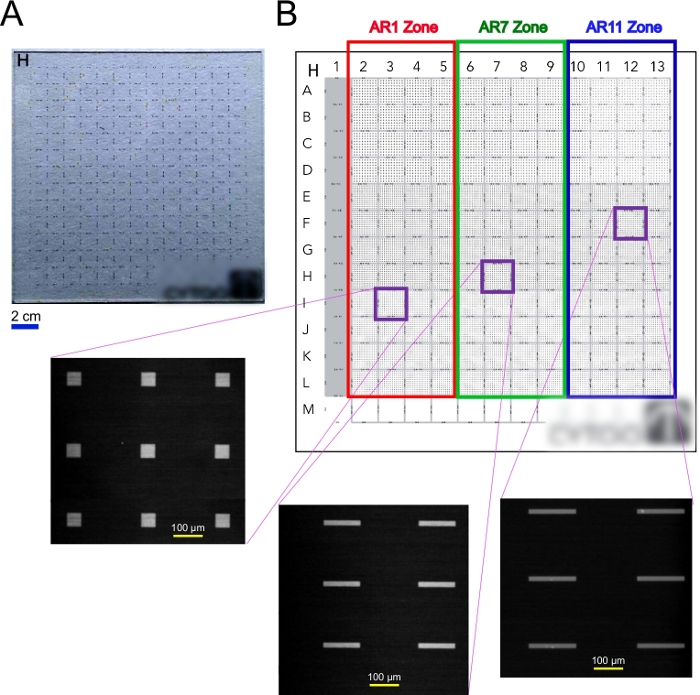
Rycina 1: Układ chipa z mikrowzorami fibronektyny.
(A) Obraz chipa wykonanego na specjalne zamówienie. Chip stanowi szkiełko podstawowe o wymiarach 19,5 mm x 19,5 mm z mikrowzorami fibronektyny, naniesionymi metodą fotolitografii na szkło borokrzemianowe. (B) Układ chipa. Chip jest podzielony na trzy strefy, a każda strefa składa się z mikrowzorów fibronektyny o określonym AR. W powiększeniu dla każdej strefy przedstawiono obrazy fluorescencyjne różnych kształtów mikrowzorów fibronektyny. Rycina ta została zmodyfikowana na podstawie „supplementary material 1” autorstwa Haftbaradaran Esfahani i wsp.2, wykorzystana na podstawie http://creativecommons.org/licenses/by/4.0/ . Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
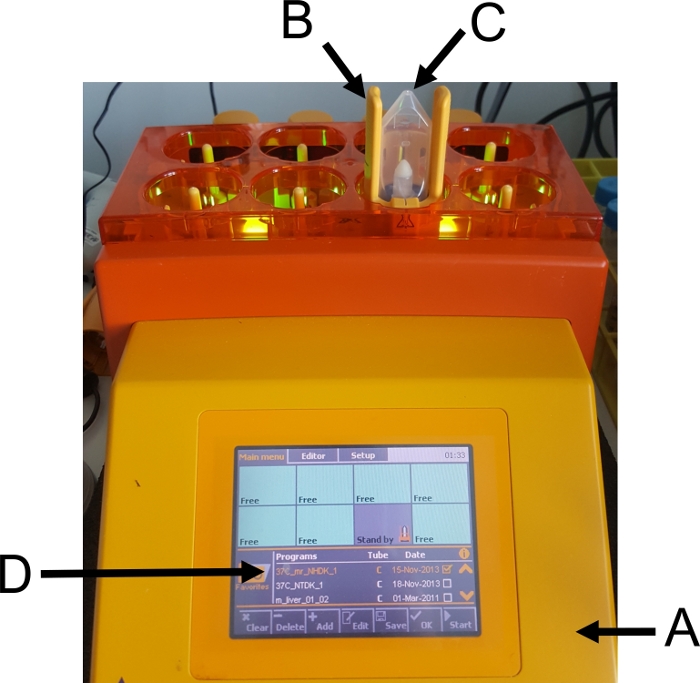
Rycina 2: Aparatura dysocjatora wyposażonego w grzałki.
(A) Cały instrument do dysocjacji wykorzystywany do w pełni zautomatyzowanej dysocjacji lewych komór serca 2-dniowych noworodków szczura. (B) Jednostka grzewcza. (C) Probówka z nakrętką rotorową. (D) Gotowe programy dla w pełni zautomatyzowanego procesu dysocjacji tkanek. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
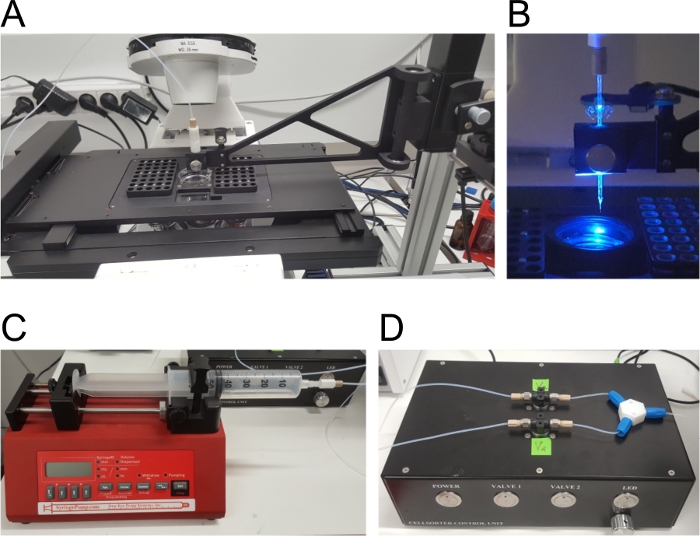
Rysunek 3: Aparatura do pobierania pojedynczych komórek (cell picker).
(A) Powiększony widok zmotoryzowanego stolika urządzenia do pobierania komórek. Na stoliku znajduje się uchwyt na szalkę Petriego, 80 otworów na 10 pasków PCR oraz otwór na celownik kalibracyjny. (B) Powiększony widok szklanej mikrokapilary. (C) Pompa strzykawkowa. (D) Jednostka sterująca, która kontroluje czas otwarcia i zamknięcia zaworów 1 i 2, zamontowanych wewnątrz jednostki sterującej. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
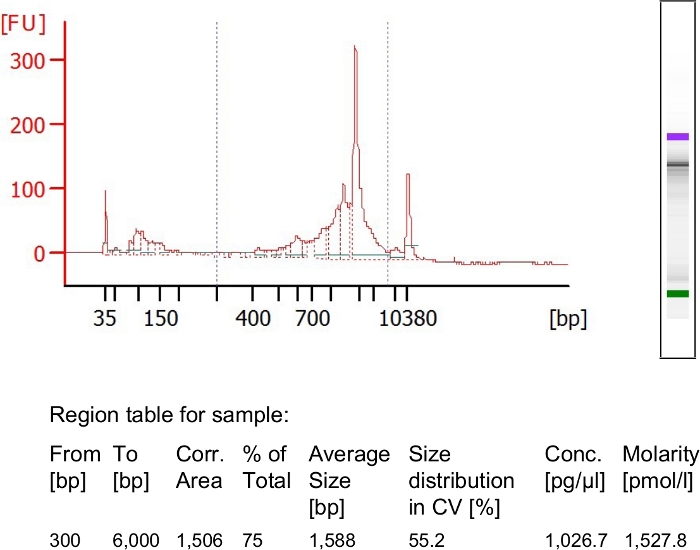
Rysunek 4: Elektroferogram cDNA po wstępnej amplifikacji z jednej wyselekcjonowanej pojedynczej komórki.
W celu uzyskania 15 µL oczyszczonego cDNA o stężeniu 1 ng/µL zastosowano 19 cykli PCR wstępnej amplifikacji. Na wykresie densytometrycznym przypominającym żel widoczny jest wyraźny prążek, który odpowiada piki przy 1852 bp na elektroferogramie. Średnia wielkość fragmentów wynosi 1588 bp. Ponadto niewielka ilość fragmentów krótszych niż 300 bp świadczy o dobrej jakości biblioteki cDNA. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
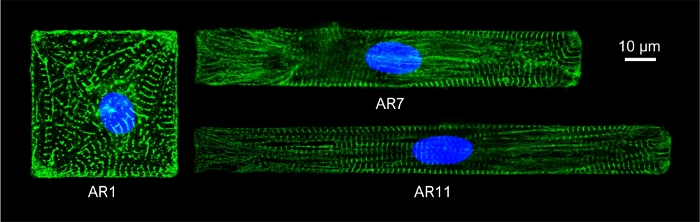
Rysunek 5: Barwienie immunofluorescencyjne struktury sarkomerowej α-actininy (zielony) oraz jąder komórkowych (niebieski) w ułożonych w wzory CM o różnych AR.**
Chromatynę barwiono DAPI. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Morfotyp | AR | Długość (µm) | Szerokość (µm) | obszar fibronektyny (µm2) |
| AR1 | 1:1 | 47 | 47 | 2209 |
| AR7 | 7:1 | 126 | 18 | 2268 |
| AR11 | 11:1 | 155 | 14 | 2170 |
Tabela 1: Geometria wzorcowanych CM.**
| Komponent | Objętość (µL) |
| Woda wolna od nukleaz | 0.65 |
| (0,4% obj./obj.) Triton X-100 | 1.8 |
| mieszanina dNTP (25 mM) | 0.8 |
| inhibitor RNazy (40 U µL-1) | 0.1 |
| Oligo-dT30oligonukleotydy VN (100 µM) | 0.1 |
| Mieszanina RNA do kontroli zewnętrznej ERCC (2,5 x 10⁵ rozcieńczenie) | 0.1 |
| Wstrzyknięta pojedyncza komórka | 1 |
| Objętość całkowita | 4.55 |
Tabela 2: Własny bufor do lizy pojedynczych komórek.
| Komponent | Objętość (µL) |
| bufor do pierwszej nici Superscript II (5x) | 2 |
| DTT (100 mM) | 0.5 |
| Betaina (5 M) | 2 |
| MgCl22 (1 M) | 0.1 |
| inhibitor RNazy (40 U µL-1) | 0.25 |
| odwrotna transkryptaza Superscript II (200 U µL-1) | 0.5 |
| TSO (100 µM) | 0.1 |
| Objętość całkowita | 5.45 |
Tabela 3: Mieszanina do odwrotnej transkrypcji (RT) dla jednej reakcji RT w celu syntezy pierwszej nici cDNA z lizatu pojedynczego CM.
Dyskusja
W badaniu tym wykorzystano sekwencjonowanie RNA pojedynczej komórki, które jest nowatorską i potężną technologią, która może wykryć transkryptom pojedynczych komórek. Połączono to z innowacyjnym podejściem do hodowli pojedynczych CM, tak aby przyjmowały one różne AR, które w przeciwnym razie można by zaobserwować tylko in vivo.
Badanie miało pewne ograniczenia. Na przykład CM noworodków musiały być używane do generowania różnych morfotypów, ponieważ wyjątkowo trudno jest wyhodować wystarczającą liczbę ważnych CM dorosłych przez 72 godziny w określonych kształtach. Co więcej, CM hodowano przez 72 godziny ex vivo, co mogło mieć wpływ na wzorzec ekspresji genów. Hodowla ta była jednak konieczna, aby komórki mogły tworzyć określone morfotypy. Co więcej, do sortowania wybrano tylko pojedyncze komórki, które były monojądrowane i w pełni pokrywały mikrowzór fibronektyny. Wzorzyste komórki na każdym chipie muszą zostać posortowane tylko w jednej rundzie sortowania. Ostatecznie około 50 komórek, czyli około jednej trzeciej wybranych komórek, zostało pomyślnie pobranych z każdego chipa. Istnieją dwa powody, które ograniczyły liczbę pomyślnie wybranych komórek. Po pierwsze, niektóre komórki były zbyt mocno związane ze wzorcem fibronektyny, a przepływ wychwytu nie był wystarczająco silny, aby skutecznie je podnieść. Po drugie, ze względu na leczenie trypsyną, przyczepienie między niektórymi komórkami a fibronektyną stało się zbyt luźne. W związku z tym komórki te zostały wypchnięte z ich mikrowzorców fibronektyny, gdy zbliżyła się do nich mikrokapilara i nie zostały podniesione. Autorzy nie twierdzą, że ta konfiguracja jest taka sama jak środowisko in vivo, ale okazała się realnym podejściem do odpowiedzi na pytanie badawcze.
Proponowana metoda ma zastosowanie do różnych typów ogniw (np. w przypadku hiPS-CM). Jednak następujące czynniki powinny zostać zoptymalizowane w celu zbadania innych typów komórek. Do powlekania mikrowzorów należy użyć odpowiednich cząsteczek adhezji ECM do mocowania określonego typu komórki. Geometria mikrowzorów powinna być modyfikowana w zależności od pytania badawczego i typu komórki. Okres hodowli może być modyfikowany w zależności od pytania badawczego. Odczynnik do odklejania i czas jego inkubacji powinny być zoptymalizowane dokładnie pod kątem badanego typu komórki. Na przykład, Accutase może być stosowany zamiast TryplE do odłączania embrionalnych i neuronalnych komórek macierzystych. Parametry czasu otwarcia zaworów powinny być dokładnie analizowane, aby pomyślnie, ale delikatnie wybierać komórki. Podsumowując, opracowaliśmy nowatorską platformę do badania kształtu komórek, która może stanowić cenne źródło informacji dla naukowców w tej dziedzinie. W tym kontekście zaprojektowaliśmy podejście eksperymentalne, które naśladowało charakterystyczne kształty in vitro narzucone na CM in vivo przez ograniczenia hemodynamiczne, aby zidentyfikować wzajemne oddziaływanie między architekturą komórkową a ekspresją genów. Informujemy również o opracowaniu nowej platformy do badania HF in vitro i identyfikacji kształtu komórki jako silnego determinanta ekspresji genów. Jest to nowatorska obserwacja o dalekosiężnych implikacjach dla biologii i medycyny.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 2100 Bioanalyzer Instrument | Agilent Technologies | G2939BA | Automatyczny analizator elektroforetyczny |
| Mikrogranulki przeciw czerwonym krwinkom | Miltenyi Biotec | 130-109-681 | |
| Mikroskop Axio Observer | Zeiss | Z1 | Mikroskop odwrócony |
| Roztwór betainy (5 M) | Sigma-Aldrich, MERCK | B0300 | |
| CellSorter | CELLSORTER | https://www.singlecellpicker.com/ | Cell picker |
| CYTOOchamber | CYTOO | 30-010 | Specjalnie zaprojektowany chip |
| CYTOOchip | CYTOO | 10-950-00-18 | Komora |
| DMEM | Thermo Fisher Scientific | 31966-021 | wysoka glukoza, GlutaMAX Suplement |
| dNTP mix (25 mM) | Thermo Fisher Scientific | R1122 | |
| Donkey Anti-Mouse IgG Alexa Fluor 488 | Abcam PLC | ab150105 | |
| DTT (100 mM) | Thermo Fisher Scientific | 18064071 | |
| ERCC RNA Spike-In Mix | Thermo Fisher Scientific | 4456740 | |
| Płodowa surowica bydlęca | Thermo Fisher Scientific | 10082-147 | |
| Fibronektyna | Sigma-Aldrich, MERCK | F4759 | |
| gentleMACS C Tube | Miltenyi Biotec | 130-093-237 | Rurka rotora-nasadka |
| gentleMACS Octo Disocator z grzałkami | Miltenyi Biotec | 130-096-427 | Dysocjator z grzałką |
| Greiner CELLSTAR szalka Petriego | Sigma-Aldrich, MERCK | P6987 | |
| HEPES (1 M) | Thermo Fisher Scientific | 15630-056 | |
| Serum dla koni | Sigma-Aldrich, MERCK | H0146 | |
| Kolumna LD | Miltenyi Biotec | 130-042-901 | |
| Medium 199 | Thermo Fisher Scientific | 31150-022 | |
| NE-1000 pompa strzykawkowa | New Era Pump Systems | NE-1000 | Pompa strzykawkowa |
| Koktajl izolacyjny kardiomiocytów noworodków, szczur | Miltenyi Biotec | 130-105-420 | |
| Zestaw do dysocjacji serca noworodka, mysz i szczur | Miltenyi Biotec | 130-098-373 | |
| Oligonukleotydy oligo-dT30VN | Technologia IDT | 5′ – AAGCAGTGGTATCAACGCAGAGTACT30VN-3′ | |
| Inhibitor RNAzy (40 U &mikro; L-1) | Clontech | 2313A | |
| sarkomer &alfa;-aktynina | Sigma-Aldrich, MERCK | EA-53 | |
| SP8 | konfokalny | Leica Microsystems | SP8 |
| Indeks górny II bufor pierwszej nici (5x) | Thermo Fisher Scientific | 18064071 | |
| Indeks górny II odwrotna transkryptaza (200 U &mikro; L-1) | Thermo Fisher Scientific | 18064071 | |
| Triton X-100 | Sigma-Aldrich, MERCK | T9284 | |
| Enzym TryplE Express, bez czerwieni fenolowej | Thermo Fisher Scientific | 12604013 | |
| TSO (100 &mikro; M) | QIAGEN | 5′-AAGCAGTGGTATCAACGCAGAGTACATrGrG+G-3′ | |
| Vibrant Dye Cycle zielony | Thermo Fisher Scientific | V35004 |
Bibliografia
- Heineke, J., Molkentin, J. D. Regulation of cardiac hypertrophy by intracellular signalling pathways. Nature Reviews Molecular Cell Biology. 7 (8), 589-600 (2006).
- Haftbaradaran Esfahani, P., et al. Cell shape determines gene expression: cardiomyocyte morphotypic transcriptomes. Basic Research in Cardiology. 115 (1), 7(2019).
- Kontrogianni-Konstantopoulos, A., Benian, G., Granzier, H. Advances in Muscle Physiology and Pathophysiology 2011. Journal of Biomedicine and Biotechnology. 2012, 930836(2012).
- Hill, J. A., Olson, E. N. Cardiac plasticity. New England Journal of Medicine. 358 (13), 1370-1380 (2008).
- Bray, M. A., Sheehy, S. P., Parker, K. K. Sarcomere alignment is regulated by myocyte shape. Cell Motility and the Cytoskeleton. 65 (8), 641-651 (2008).
- Benjamin, I. J., Schneider, M. D. Learning from failure: congestive heart failure in the postgenomic age. Journal of Clinical Investigation. 115 (3), 495-499 (2005).
- Opie, L. H., Commerford, P. J., Gersh, B. J., Pfeffer, M. A. Controversies in ventricular remodelling. Lancet. 367 (9507), 356-367 (2006).
- Braunwald, E. Cardiomyopathies: An Overview. Circulation Research. 121 (7), 711-721 (2017).
- Knoll, R., et al. The cardiac mechanical stretch sensor machinery involves a Z disc complex that is defective in a subset of human dilated cardiomyopathy. Cell. 111 (7), 943-955 (2002).
- Frangogiannis, N. G. The Extracellular Matrix in Ischemic and Nonischemic Heart Failure. Circulation Research. 125 (1), 117-146 (2019).
- Marian, A. J., Braunwald, E. Hypertrophic Cardiomyopathy: Genetics, Pathogenesis, Clinical Manifestations, Diagnosis, and Therapy. Circulation Research. 121 (7), 749-770 (2017).
- Mozaffarian, D., Caldwell, J. H. Right ventricular involvement in hypertrophic cardiomyopathy: a case report and literature review. Clinical Cardiology. 24 (1), 2-8 (2001).
- Olsson, M. C., Palmer, B. M., Stauffer, B. L., Leinwand, L. A., Moore, R. L. Morphological and functional alterations in ventricular myocytes from male transgenic mice with hypertrophic cardiomyopathy. Circulation Research. 94 (2), 201-207 (2004).
- Toepfer, C. N., et al. Hypertrophic cardiomyopathy mutations in MYBPC3 dysregulate myosin. Science Translational Medicine. 11 (476), (2019).
- McKenna, W. J., Maron, B. J., Thiene, G. Classification, Epidemiology, and Global Burden of Cardiomyopathies. Circulation Research. 121 (7), 722-730 (2017).
- Schultheiss, H. P., et al. Dilated cardiomyopathy. Nature Reviews Disease Primers. 5 (1), 32(2019).
- Knoll, R. A role for membrane shape and information processing in cardiac physiology. Pflugers Arch. 467 (1), 167-173 (2015).
- Rangamani, P., et al. Decoding information in cell shape. Cell. 154 (6), 1356-1369 (2013).
- Kuo, P. L., et al. Myocyte shape regulates lateral registry of sarcomeres and contractility. American Journal of Pathology. 181 (6), 2030-2037 (2012).
- Gerdes, A. M., Onodera, T., Wang, X., McCune, S. A. Myocyte remodeling during the progression to failure in rats with hypertension. Hypertension. 28 (4), 609-614 (1996).
- Kehat, I., et al. Extracellular signal-regulated kinases 1 and 2 regulate the balance between eccentric and concentric cardiac growth. Circulation Research. 108 (2), 176-183 (2011).
- Sreejit, P., Kumar, S., Verma, R. S. An improved protocol for primary culture of cardiomyocyte from neonatal mice. In Vitro Cellular & Developmental Biology - Animal. 44 (3-4), 45-50 (2008).
- Kornyei, Z., et al. Cell sorting in a Petri dish controlled by computer vision. Scientific Reports. 3, 1088(2013).
- Picelli, S., et al. Full-length RNA-seq from single cells using Smart-seq2. Nature Protocols. 9 (1), 171-181 (2014).
- Schmick, M., Bastiaens, P. I. H. The interdependence of membrane shape and cellular signal processing. Cell. 156 (6), 1132-1138 (2014).
Przedruki i uprawnienia
