Ten artykuł opisuje protokół do manipulowania celami molekularnymi w korze mózgowej za pomocą wirusów związanych z adenowirusami oraz do monitorowania efektów tej manipulacji podczas czuwania i snu za pomocą zapisów elektrokortykograficznych.
Artykuł metodologiczny
Zapis elektrokortykograficzny obszarów kory mózgowej manipulowanych za pomocą wirusa związanego z adenowirusem skierowanym przeciwko kofilinie u myszy
W tym artykule
Podsumowanie
Streszczenie
Wykorzystanie zapisów elektrokortykograficznych (ECoG) u gryzoni jest istotne dla badań nad snem i dla badania szerokiego zakresu schorzeń neurologicznych. Wirusy związane z adenowirusami (AAV) są coraz częściej wykorzystywane do lepszego zrozumienia obwodów mózgowych i ich funkcji. Manipulacja za pośrednictwem AAV określonych populacji komórek i/lub precyzyjnych składników molekularnych była niezwykle przydatna do identyfikacji nowych obwodów/cząsteczek regulujących sen i kluczowych białek przyczyniających się do niekorzystnych skutków utraty snu. Na przykład hamowanie aktywności nitkowatego białka odcinającego aktynę, kofiliny, za pomocą AAV zapobiega zaburzeniom pamięci wywołanym brakiem snu. W tym miejscu opisano protokół, który łączy manipulację funkcją kofiliny w obszarze kory mózgowej z rejestracją aktywności ECoG w celu zbadania, czy korowa kofilina moduluje sygnały ECoG czuwania i snu. Iniekcja AAV jest wykonywana podczas tego samego zabiegu chirurgicznego, co implantacja elektrod ECoG i elektrod elektromiograficznych (EMG) u dorosłych samców i samic myszy. Myszy są znieczulane, a ich głowy są golone. Po oczyszczeniu skóry i nacięciu określa się współrzędne stereotaktyczne kory ruchowej i w tym miejscu przekłuwa się czaszkę. Kaniula wypełniona AAV eksprymującym kofilinęS3D, nieaktywną formę kofiliny, jest powoli umieszczana w tkance korowej. Po infuzji AAV pokryte złotem (elektrody ECoG) są wkręcane przez czaszkę i cementowane do czaszki za pomocą złotych drutów wprowadzanych w mięśnie szyi (elektrody EMG). Zwierzętom pozostawia się trzy tygodnie na dojście do siebie i zapewnienie wystarczającej ekspresji kofilinyS3D. Zakażony obszar i typ komórki są weryfikowane za pomocą immunohistochemii, a ECoG jest analizowane za pomocą wizualnej identyfikacji stanów czujności i analizy spektralnej. Podsumowując, to połączone podejście metodologiczne pozwala na zbadanie precyzyjnego udziału składników molekularnych regulujących morfologię i łączność neuronów w regulacji zsynchronizowanej aktywności kory mózgowej podczas czuwania i snu.
Wprowadzenie
Zapisy elektroencefalograficzne (lub ogólnie elektrokortykograficzne [ECoG] u gryzoni) i elektromiograficzne (EMG) są szeroko stosowane w badaniach nad snem, a także szerzej w neurobiologii, neurologii i psychiatrii. W połączeniu te sygnały elektrofizjologiczne pozwalają na identyfikację stanów czujności, a następnie kwantyfikację czasu trwania stanu i składu spektralnego, zarówno u ludzi, jak i gryzoni1,2,3,4. Taka kwantyfikacja była przydatna do zrozumienia, w jaki sposób sen jest modyfikowany w stanach patologicznych, takich jak choroby neurodegeneracyjne i modele5,6,7 lub przez modyfikację genetyczną8,9. Na przykład wykazano, że nokaut (KO) różnych genów związanych z komunikacją neuronalną zmienia czas czuwania i snu zarówno u myszy, jak i muszki owocowej10,11,12,13. Aby poradzić sobie z potencjalną kompensacją rozwojową wynikającą z badania KO całego ciała u gryzoni i umożliwić dokładniejszą kontrolę manipulacji genetycznych, skutecznym sposobem manipulowania ekspresją genów jest użycie wirusów związanych z adenowirusami (AAV). Manipulacja genetyczna za pośrednictwem AAV może być wykorzystana do obniżenia lub zwiększenia danego celu molekularnego i ograniczenia manipulacji do określonej populacji komórek przy użyciu różnych typów promotorów14. AAV są również szeroko stosowane jako metoda dostarczania w klastrach z regularnymi odstępami między krótkimi powtórzeniami palindromicznymi (CRISPR)/Cas9 technology15,16. Metodologie te pozwalają na lepszą czasową i przestrzenną kontrolę manipulacji genetycznej, która jest na ogół związana z ekspresją reportera pozwalającą na ilościowe określenie zakażonego obszaru za pomocą immunofluorescencji.
AAV reprezentują również główny wektor do specyficznych dla typów komórek manipulacji aktywnością neuronalną poprzez optogenetykę i chemogenetykę17,18,19, które były szeroko stosowane w ostatnich badaniach nad chorobami neurodegeneracyjnymi, zachowaniem, funkcjami poznawczymi i snem20,21,22. W badaniach nad snem zastosowanie optogenetyki do aktywacji lub hamowania niektórych obszarów mózgu, takich jak podstawa przodomózgowia, podwzgórze i nakrywka podboczno-wonna, było przydatne do określenia ich roli w kontroli pobudzenia, snu wolnofalowego (znanego również jako sen bez szybkich ruchów gałek ocznych), snu paradoksalnego (lub snu z szybkimi ruchami gałek ocznych) i katapleksji23, 24,25. Co więcej, manipulacje za pośrednictwem AAV pomogły wyjaśnić ważne obwody regulujące sen i cząsteczki przyczyniające się do niekorzystnych skutków utraty snu26,27,28. Na przykład jednym z białek, które wykazuje związek z zaburzeniami pamięci wywołanymi brakiem snu, jest cofilin29,30. Białko to jest nitkowatym białkiem odcinającym aktynę, które uczestniczy w reorganizacji filamentów aktyny poprzez fizyczne wiązanie się z aktyną i promowanie rozkładu włókien w sposób dynamiczny31. Wykazano, że hamowanie aktywności kofiliny przy użyciu podejścia za pośrednictwem AAV zapobiega utracie kręgosłupa, a także plastyczności synaptycznej i deficytom pamięci wywołanym brakiem snu u myszy29. Podsumowując, badania te podkreślają przydatność i znaczenie manipulacji za pośrednictwem AAV w celu zrozumienia regulacji snu i konsekwencji braku snu u gryzoni.
Tutaj opisany jest protokół, który łączy implantację i rejestrację elektrod ECoG i EMG z manipulacją funkcji kofiliny w obszarze kory mózgowej myszy typu dzikiego (WT) za pomocą AAV. Dokładniej, AAV (serotyp 9) wyrażający sekwencję kodującą fosfomimetyczną formę mysiej kofiliny (kofilinyS3D), czyniąc ją nieaktywną32,33, jest wstrzykiwany do kory ruchowej (M1 i M2). Elektroda ECoG jest wszczepiana bezpośrednio w miejsce wstrzyknięcia, aby zapewnić rejestrację zsynchronizowanej aktywności korowej zakażonych komórek. Zapis ECoG/EMG jest prowadzony przez 24 godziny w niezakłóconych warunkach trzy tygodnie po zabiegu, aby umożliwić powrót do zdrowia, adaptację i wysoką ekspresjękofiliny S3D. Zapis jest następnie wykorzystywany do identyfikacji stanów czujności i analizy spektralnej ECoG, zgodnie z opisem w poprzednich badaniach11,34. Ta metodologia może w szczególności ujawnić, w jaki sposób korowa kofilina moduluje sygnały ECoG czuwania i snu u myszy. To połączenie zapisów elektrofizjologicznych i manipulacji genetycznej za pośrednictwem AAV jest szczególnie istotne dla badania ról różnych elementów molekularnych w określonych funkcjach mózgu i może być zastosowane do korowych (i podkorowych) obszarów mózgu będących przedmiotem zainteresowania u WT i genetycznie zmodyfikowanych myszy obu płci, a nawet innych gatunków.
Protokół
Wszystkie metody zostały zatwierdzone przez Comité d'éthique de l'expérimentation animale Recherche CIUSSS-NIM i są zgodne z wytycznymi Kanadyjskiej Rady ds. Opieki nad Zwierzętami. Zapoznaj się z tabelą materiałów, aby zapoznać się z odczynnikami, sprzętem i materiałami użytymi w tym protokole.
1. Przygotowanie do operacji
- Przygotowanie elektrod ECoG i EMG
- Dla każdego zwierzęcia przygotuj trzy elektrody ECoG: za pomocą lutownicy umieść małą kroplę lutowia bezołowiowego na nakrętce pokrytej złotem i złoty drut o długości 4 mm i średnicy 0,2 mm (nieizolowany) na górze nakrętki za pomocą lutu bezołowiowego (Rysunek 1A). Przygotuj 2 elektrody ze złotym drutem prosto do góry i jedną pod kątem 45° od pionu.
- Dla każdego zwierzęcia przygotuj dwie elektrody EMG: przytnij jeden złoty drut o średnicy 0,2 mm na długość 1,5 cm, a drugi na 2 cm. Zawiń oba druty, aby obejmowały krzywiznę czaszki aż do mięśni szyi, zachowując prosty koniec, który zostanie przylutowany do złącza (Rysunek 1B).
- Dla każdego zwierzęcia przygotuj jedno złącze: użyj złącza 6-kanałowego (5 mm x 8 mm x 8 mm + 3 mm metalowe kołki) i dodaj lut bezołowiowy do 5 z 6 metalowych kołków (pomijając jeden środkowy pin; Rysunek 1C). Zakryj górną część złącza taśmą, aby uniknąć zaśmiecenia lub infiltracji wody.
- Przygotowanie AAV i pompy strzykawkowej
- Przygotować testowy AAV (tutaj AAV 9-CaMKIIα0,4-kofilinS3D-HA) i/lub kontrolny AAV (tutaj AAV9-CaMKIIα0,4-eGFP) poprzez rozcieńczenie podstawowych mieszanin AAV (w tym przypadku AAV w roztworze soli fizjologicznej buforowanej fosforanami zawierającej niejonowy środek powierzchniowo czynny [0,001%]) sterylnym roztworem soli fizjologicznej w celu uzyskania pożądanego miana wirusa (zwykle 1012-13 kopii genomu [GC]/ml) i wymaganej objętości dla liczby myszy, które mają być leczone.
UWAGA: Wstrzyknięta objętość 1 μl na obszar kory mózgowej na mysz wymaga przygotowania 2 μl. - Przymocuj jedną strzykawkę o pojemności 10 μl do pompy strzykawkowej i napełnij ją wodą destylowaną.
- Napełnij jedną probówkę PE50 o długości około 60 cm wodą destylowaną za pomocą strzykawki o pojemności 1 ml i igły 21 G. Co ważne, po napełnieniu należy pozostawić igłę i strzykawkę 21G na miejscu. Połączyć rurkę PE50 z pompą strzykawkową; pozostawić igłę/strzykawkę 21 G na jednym końcu probówki PE50, a drugi koniec podłączyć do strzykawki o pojemności 10 μl.
- Po przymocowaniu probówki do strzykawki o pojemności 10 μl wyjmij igłę z drugiego końca i naciśnij tłok strzykawki o pojemności 10 μl, aby wypełnić wodą szczelinę pozostawioną przez igłę.
UWAGA: Upewnij się, że nie ma pęcherzyków powietrza i że rurka jest całkowicie wypełniona wodą. - Zainstaluj kaniulę 28 G na końcu rurki, z której została usunięta igła. Wciśnij wodę do kaniuli za pomocą strzykawki o pojemności 10 μl, aby całkowicie ją napełnić. Przymocuj kaniulę mocno do ramienia stereotaktycznego.
- Przygotować testowy AAV (tutaj AAV 9-CaMKIIα0,4-kofilinS3D-HA) i/lub kontrolny AAV (tutaj AAV9-CaMKIIα0,4-eGFP) poprzez rozcieńczenie podstawowych mieszanin AAV (w tym przypadku AAV w roztworze soli fizjologicznej buforowanej fosforanami zawierającej niejonowy środek powierzchniowo czynny [0,001%]) sterylnym roztworem soli fizjologicznej w celu uzyskania pożądanego miana wirusa (zwykle 1012-13 kopii genomu [GC]/ml) i wymaganej objętości dla liczby myszy, które mają być leczone.
- Przygotowanie zwierząt
UWAGA: Samce i samice myszy C57BL6/J w wieku ~12 tygodni były wcześniej przystosowane przez co najmniej 2 tygodnie do trzymania w indywidualnych klatkach i do 12-godzinnego cyklu światła:12-godzinnego ciemnego z ad libitum jedzeniem i wodą oraz dostępem do drewnianej kostki.- Ostrożnie zważyć myszy i wstrzyknąć dootrzewnowo mieszaninę ketaminy/ksylazyny (120/10 mg/kg) w celu znieczulenia. Odczekaj około 10 minut na głębokie znieczulenie.
- Ogol włosy od tyłu uszu do przodu głowy między oczami za pomocą trymera do włosów.
UWAGA: Bądź bardzo ostrożny, aby nie przycinać wąsów (chroń wąsy palcem podczas golenia), ponieważ przycinanie wąsów zmieni bodźce sensoryczne i aktywność ECoG35,36. - Dodaj obfitą kroplę maści okulistycznej na każde oko, aby zapobiec odwodnieniu. Podczas zabiegu regularnie sprawdzaj głębokość znieczulenia, ściskając palec u nogi od tylnej łapy. Podaj myszy 0,5-1,5% izofluranu, aby zapewnić głębokie znieczulenie, jeśli pojawi się odruch szczypania palców u stóp.
2. Dokorowe wstrzyknięcie AAV za pomocą pompy strzykawkowej
UWAGA: Wykonaj wszystkie poniższe kroki za pomocą wysterylizowanych narzędzi i w czystym środowisku. Użyj 70% etanolu do dalszego mycia wysterylizowanych narzędzi i do mycia elektrod przygotowanych w punkcie 1.1, a także kotwiących (niepokrytych złotem) przed rozpoczęciem operacji.
- Ostrożnie przymocuj głowę myszy do aparatu stereotaktycznego za pomocą pasków nausznych.
UWAGA: Upewnij się, że głowa nie porusza się na boki. - Delikatnie wyciągnij język zwierzęcia z ust, aby uniknąć uduszenia, i przymocuj nos myszy za pomocą adaptera stereotaktycznego.
UWAGA: Podczas zabiegu należy często monitorować oddech. - Wysterylizuj ogolony obszar głowy 70% etanolem i przytrzymując skórę bardzo cienkimi kleszczami Graefe, przetnij skórę od podstawy uszu do poziomu oczu nożyczkami do tkanek. Użyj czterech zacisków chirurgicznych, aby rozciągnąć skórę i odsłonić czaszkę (po dwa z każdej strony nacięcia; patrz Rysunek 1D).
- Podrap powierzchnię czaszki ostrą końcówką nożyczek: unikając szwów kostnych, usuń okostną i utwórz nakładające się smugi w dwóch lub więcej kierunkach. Usuń fragmenty kości i osusz czaszkę 70% etanolem.
UWAGA: Zadrapania i smugi pomogą uczynić montaż nagrania bardziej wytrzymałym, poprawiając przyleganie cementu do czaszki (patrz poniżej). - Z kaniulą przymocowaną do ramienia stereotaktycznego, zidentyfikuj lokalizację bregmy (tj. przecięcie szwów koronalnych i strzałkowych czaszki; Rysunek 1D) i lambda (tj. przecięcie szwu strzałkowego czaszki z linią prostą łączącą lewy i prawy szew lambdoidalny; Rysunek 1D) i zanotuj stereotaktyczne współrzędne każdego z nich. Jeśli różnica między współrzędnymi z (osią pionową) bregmy i lambdy jest większa niż 0,3 mm, wyreguluj wysokość noska za pomocą adaptera stereotaktycznego, aż pozycja z bregmy i lambda zostaną wyrównane.
- Zaznacz długopisem położenie kaniuli na czaszce w tych współrzędnych (kora ruchowa): 1,5 mm bocznie w prawo do linii środkowej i 1,5 mm przed bregmą. Ostrożnie przekłuć czaszkę w miejscu kaniuli wiertłem 0,7 mm w kierunku prostopadłym do powierzchni czaszki (wyrównanym z osią pionową). Przekłutą czaszkę umyć sterylną bawełnianą końcówką nasączoną 10% roztworem prowidonu i jodu.
- Załaduj kaniulę pęcherzykiem powietrza o pojemności 1 μl, pociągając tłok strzykawki o pojemności 10 μl do tyłu o 1 μl. Załaduj testowy AAV (tutaj AAV 9-CaMKIIα0,4-CofilinS3D-HA) lub kontrolny AAV (tutaj AAV9-CaMKIIα0,4-eGFP) do kaniuli uprzednio załadowanej pęcherzykiem powietrza: Wymieszać AAV, powoli pipetując w górę i w dół, odpipetować 1,7 μl na sterylną szalkę Petriego i odessać 1,5 μl roztworu do kaniuli, powoli pociągając za tłok strzykawki o pojemności 10 μl. Zaznaczyć położenie pęcherzyka powietrza na probówce PE50, aby umożliwić śledzenie wstrzyknięcia.
- Dopasuj kaniulę do otworu w czaszce, aby pionowa pozycja kaniuli sięgała do górnej krawędzi czaszki (tj. powierzchni czaszki). Od powierzchni czaszki powoli opuść kaniulę o 1,5 mm (aby dotrzeć 1,5 mm poniżej powierzchni czaszki i warstwy V kory ruchowej).
UWAGA: Bądź bardzo ostrożny, aby nie obniżyć kaniuli zbyt mocno, aby uniknąć niepotrzebnego uszkodzenia tkanki mózgowej. - Uruchomić pompę strzykawkową, aby wstrzyknąć 1 μl AAV w ciągu 40 minut (prędkość: 0,025 μl/min, aby zminimalizować uszkodzenie tkanek). Śledź wtrysk na rurze PE50 wraz z ruchem pęcherzyka powietrza i w razie potrzeby dokonaj regulacji.
- Po zakończeniu wstrzykiwania pozostaw kaniulę na miejscu na 5 minut, aby zapewnić wystarczającą dyfuzję i uniknąć przepływu wstecznego. Następnie powoli i ostrożnie podnieś ramię stereotaktyczne, aby usunąć kaniulę z kory.
3. Implantacja elektrody ECoG/EMG
- Używając prostych kleszczyków Kelly'ego, powoli wkręć jedną elektrodę ECoG (z prostym złotym drutem) w oś pionową (pod tym samym kątem, pod którym otwór został przebity) w otworze, w którym wstrzyknięto AAV. Pozostaw co najmniej 2.5 mm na zewnątrz czaszki, aby zminimalizować uszkodzenie opony twardej i kory mózgowej (tj. na przybliżoną głębokość 1.1 mm od powierzchni czaszki; Rysunek 1D).
- Zaznacz długopisem położenie tylnej elektrody ECoG i elektrody odniesienia na czaszce w następujących współrzędnych: elektroda tylna (kora wzrokowa) 1,5 mm bocznie w prawo do linii środkowej i 1,5 mm przed lambdą, elektroda referencyjna (kora somatosensoryczna) 2,6 mm bocznie w prawo do linii środkowej i 0,7 mm tylna do bregma. Zaznacz również położenie trzech konserwacyjnych (działających jako kotwice między czaszką a cementem dentystycznym w celu zestalenia montażu głowy) na lewej półkuli bez określonych współrzędnych, ale jak najdalej od siebie i od elektrod ECoG.
- Ostrożnie przebij czaszkę w zaznaczonym miejscu pozostałych elektrod i kotwiących wiertłem 0,7 mm. Przebić w kierunku prostopadłym do powierzchni czaszki dla każdej (tj. oś pionowa dla elektrody tylnej, ale pod kątem od osi pionowej dla innych miejsc). Umyj przekłutą czaszkę 10% roztworem prowidonu i jodu, a przed wkręceniem zatkaj otwory małymi, zwiniętymi kawałkami delikatnych wycieraczek roboczych, aby zapobiec krwawieniu i zanieczyszczeniu.
- Za pomocą prostych kleszczyków Kelly'ego przykręć konserwacyjne w lewej półkuli, a następnie przykręć dwie ostatnie elektrody w prawej półkuli. Upewnij się, że wkręcasz pod tym samym kątem, pod jakim otwory zostały przebite i aby pozostawić co najmniej 2,5 mm każdej poza czaszką (Rysunek 1D).
UWAGA: Aby zmaksymalizować solidność końcowego montażu i jakość sygnałów elektrofizjologicznych, należy uważać, aby nie dotknąć żadnej podczas montażu następnej. - Umieść kilka małych kropel cementu dentystycznego na środku pierścieniowatej przestrzeni wewnątrz. Włóż zakrzywiony koniec jednej elektrody EMG (przygotowanej w kroku 1.1.2) na około 1-2 mm w mięśniach szyi, przytrzymując zakrzywioną kończynę za pomocą kleszczy Dumont #5 i unosząc skórę nad mięśniami za pomocą bardzo cienkich kleszczy Graefe. Następnie umieść zakrzywioną stronę i kolanko elektrody w cemencie dentystycznym; powtórzyć dla drugiej elektrody EMG.
UWAGA: Prosty koniec dłuższej elektrody EMG powinien być wyrównany z przednią elektrodą ECoG, a krótszy koniec elektrody EMG z tylną elektrodą ECoG. Upewnij się, że dwie elektrody EMG nie stykają się ze sobą ani ze żadną ze. - Zakryj oczy myszy i przyłóż światło na 3-5 minut, aby pomóc w zestaleniu cementu. Gdy elektrody EMG mocno się trzymają, przykryj podstawę elektrod ECoG i podstawę kotwiących cementem dentystycznym, aby utworzyć kontur w kształcie korony. Zakryj oczy myszy i przyłóż światło na 3-5 minut, aby pomóc w zastygnięciu cementu.
UWAGA: Nie nakładaj cementu na kończyny elektrod ECoG i EMG (złoty drut, który zostanie przylutowany do złącza) ani na skórę. - Wypełnij środek montażu wcześniej zmieszanym cementem akrylowym. Podczas krzepnięcia cementu zdejmij cztery zaciski chirurgiczne przytrzymujące skórę (i natychmiast umyj je delikatnymi wycieraczkami zadaniowymi).
UWAGA: Nie nakładaj cementu na kończyny elektrod ECoG i EMG (złoty drut, który zostanie przylutowany do złącza) ani na skórę. - Zszyj skórę z tyłu i z przodu montażu tak, aby czaszka nie była odsłonięta (ale unikaj zbyt dużego rozciągania skóry) za pomocą igły do szycia (13 mm 3/8 c) i syntetycznej wchłanialnej żyłki.
- Przytrzymaj złącze nad montażem za pomocą zakrzywionych kleszczyków i ostrożnie wyrównaj złoty drut elektrod ze stykami złącza. końcówki elektrody do styków złącza za pomocą lutownicy.
UWAGA: Postępuj szybko, aby uniknąć przegrzania i uszkodzenia tkanki korowej. Upewnij się, że każda elektroda dobrze styka się z odpowiednim stykiem złącza i że elektrody nie są ze sobą połączone. - Wyjmij mysz z ramki stereotaktycznej. Pustą przestrzeń między złączem a głowicą zakryć wcześniej zmieszanym cementem akrylowym, zakrywając wszystkie połączenia między elektrodami a stykami złącza.
UWAGA: Unikaj infiltracji cementu wewnątrz złącza, trzymając mysz ze złączem nad głową (głowa prosto, nie pochylona). - Zważ mysz i umieść ją w czystej klatce (najlepiej wyposażonej w pokrywę bez siatki) na poduszce grzewczej (indywidualna obudowa, aby uniknąć uszkodzenia montażu głowicy). Należy regularnie monitorować zwierzę i podawać 0,1 mg/kg buprenorfiny podskórnie po przebudzeniu i 12 godzin później, jeśli zwierzę wykazuje oznaki bólu (np. nieprawidłowa postawa, zmrużone oczy).
UWAGA: Przyrost masy ciała w stosunku do masy ciała sprzed operacji nie powinien przekraczać 1,5 g.
4. Nagrania
- Myszy domowe pojedynczo, aby uniknąć uszkodzenia montażu głowicy w wyniku wzajemnej pielęgnacji oraz uszkodzenia i splątania do nagrywania.
UWAGA: W przypadku tego protokołu myszy trzymano ad libitum z dostępem ad libitum do pożywienia, wody i drewnianej kostki, a następnie prowadzono codzienne monitorowanie. - Podłącz myszy do nagrywających 2 tygodnie po zabiegu, aby dostosować je do warunków okablowania.
- Nagrywaj sygnały ECoG/EMG przez 24 godziny (lub dłużej/krócej w zależności od pytań badawczych).
UWAGA: Nagrywanie sygnału ECoG/EMG odbywało się za pomocą, złącza obrotowego (umożliwiającego obracanie), 36-kanałowego urządzenia do noszenia na ciele oraz wzmacniacza, który był podłączony do komputera. Sygnały są próbkowane z częstotliwością 256 Hz (lub większą w zależności od pytań badawczych) i rejestrowane za pomocą komercyjnego oprogramowania (patrz tabela materiałów). Aby zapewnić wystarczającą ekspresję wirusa, eksperymenty należy przeprowadzić co najmniej 3 tygodnie po wstrzyknięciu AAV, jak opisano wcześniej29,37. - Po nagraniu należy złożyć myszy w ofierze przez zwichnięcie szyjki macicy (lub innymi metodami w zależności od protokołu barwienia immunologicznego) i pobrać mózg do barwienia immunologicznego.
Wyniki
Po rejestracjach elektrofizjologicznych wykorzystuje się immunofluorescencję do wyznaczenia obszaru zainfekowanego wtryskiem AAV oraz do walidacji ekspresji cofilinS3D (Rycina 2). Immunobarwienie można przeprowadzić metodą podobną do opisanej wcześniej29,37,38,39. AAV wykazuje ekspresję nieaktywnej formy kofiliny połączonej z tagiem hemaglutyniny (HA) (cofilinS3D-HA), która jest wykrywana metodą immunofluorescencji przy użyciu przeciwciała anty-HA i przeciwciała wtórnego (Alexa Fluor 488). Zainfekowane neurony pobudzające (w tym przypadku ukierunkowane za pomocą promotora kinazy białkowej II alfa zależnej od wapnia/kalmoduliny [CamKIIα], kontrolującego ekspresję transgenu zawartego w AAV) są barwione przeciwciałem anty-HA. O udanej infekcji świadczy barwienie neuronów w korze ruchowej wokół miejsca wstrzyknięcia (Rycina 2A,B). W tym reprezentatywnym przykładzie kora mózgowa drugiej półkuli nie wykazała żadnego zauważalnego barwienia. Niemniej jednak, biorąc pod uwagę, że neurony pobudzające mogą wysyłać projekcje do odległych obszarów mózgu, barwienie w półkuli przeciwległej nie musi oznaczać nieudanej iniekcji. Większe powiększenie zainfekowanego obszaru wykazało barwienie ciał komórkowych i projekcji, potwierdzając, że zainfekowane zostały tylko określone komórki w docelowym obszarze kory (Rycina 2C).
Można również przeprowadzić barwienie współistniejące z markerami neuronów pobudzających (np. pęcherzykowym transporterem glutaminianu 1, CaMKIIα), aby potwierdzić specyficzność typu komórek. Alternatywnie, w przypadku celowania w te komórki przy użyciu różnych promotorów, można zastosować barwienie współistniejące z markerami neuronów hamujących lub astrocytów. Barwienie współistniejące cofilinS3D-HA i CaMKIIα wykonano również u tego samego zwierzęcia w obszarze położonym bardziej tylnie względem miejsca wstrzyknięcia, który nadal wykazywał barwienie anty-HA w korze ruchowej (Rysunek 2D). Obraz tego obszaru przy większym powiększeniu pokazuje komórki wyraźnie wykazujące ekspresję cofilinS3D-HA (Alexa Fluor 488, Rysunek 2E) i CaMKIIα (Alexa Fluor 568, Rysunek 2F). Nałożenie barwienia cofilinS3D-HA i CaMKIIα ujawnia, że większość (jeśli nie wszystkie) komórek zabarwionych na cofilinS3D-HA jest również pozytywna pod kątem CaMKIIα (Rysunek 2G). Obserwacja ta potwierdza specyficzność infekcji dla neuronów pobudzających.
Aby ocenić wpływ manipulacji kofiliną na aktywność ECoG, sygnały ECoG i EMG są wykorzystywane do wizualnej identyfikacji stanów czuwania (czuwanie, sen wolnofalowy, sen paradoksalny). Procedurę tę przeprowadza się w 4-sekundowych epokach ze względu na szybkie zmiany stanu czuwania u myszy2, a w tym przypadku dla pełnego 24-godzinnego zapisu. Standardowe analizy obejmują obliczenie architektury snu oraz zmiennych analizy spektralnej, zgodnie z metodami zastosowanymi wcześniej dla różnych zbiorów danych11,12,13,28,34. W szczególności analiza spektralna sygnału ECoG dla różnych stanów pozwoli na określenie składu i jakości tych stanów. Aby wyeliminować różnice, które mogłyby wynikać na przykład z różnej głębokości implantacji elektrod, dane analizy spektralnej można wyrazić w stosunku do całkowitej mocy wszystkich stanów danego zwierzęcia (Rysunek 3A). Ze względu na bardzo niską amplitudę względną aktywności ECoG w wyższych częstotliwościach, względne widma mocy dla czuwania, snu wolnofalowego i snu paradoksalnego zostały poddane transformacji logarytmicznej, aby lepiej zwizualizować i jednocześnie porównać aktywność w niskich i wysokich częstotliwościach. Analiza ta wskazuje na specyficzne dla danego stanu różnice w aktywności spektralnej w warunkach inaktywacji kofiliny (Rysunek 3B). Bardziej precyzyjnie, te wstępne wyniki obejmujące myszy samce i samice wskazują, że inaktywacja kofiliny znacząco zwiększa moc spektralną w częstotliwościach szybkich (14-30 Hz) podczas czuwania oraz w częstotliwościach wolnych (1-4 Hz) podczas snu paradoksalnego, pozostawiając aktywność ECoG podczas snu wolnofalowego w głównej mierze bez zmian. Dodatkowo inaktywacja kofiliny wydaje się zwiększać zmienność aktywności ECoG między osobnikami (co jest szczególnie widoczne na słupkach błędów dla stanu czuwania na Rysunku 3B).
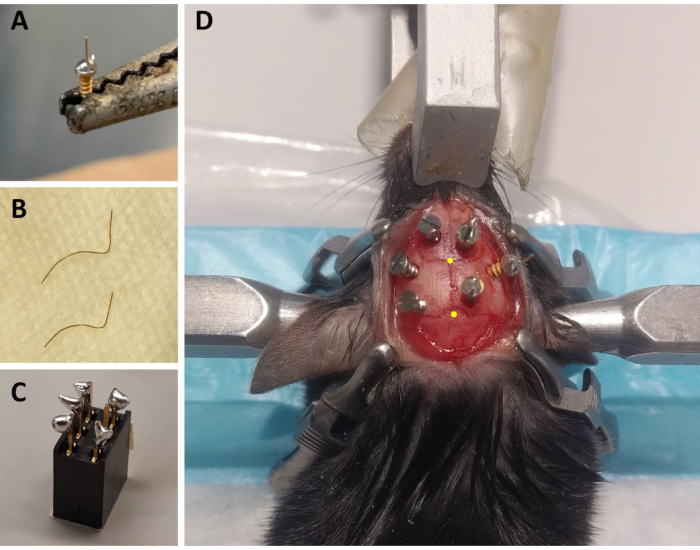
Rysunek 1: Przygotowanie komponentów zestawu ECoG/EMG oraz reprezentatywny przykład rozmieszczenia elektrod ECoG. (A) Elektroda ECoG: złoty drut (nieizolowany) o długości 4 mm i średnicy 0,2 mm jest lutowany bezołowiowym spoiwem do łba pozłacanej śruby (średnica łba 1,9 mm, średnica zewnętrzna gwintu 1,14 mm, całkowita długość 3,6 mm). (B) Elektrody EMG: dwa złote druty (1,5 i 2 cm) są wygięte, aby dopasować się do krzywizny czaszki aż do mięśni szyi, a drugi koniec pozostaje prosty w celu przylutowania do złącza. (C) Złącze 6-kanałowe: bezołowiowe spoiwo lutownicze jest nakładane na 5 z 6 metalowych pinów (z pominięciem jednego w środku) złącza (5 mm x 8 mm x 8 mm + 3 mm metalowe piny). Górna część złącza jest zaklejona taśmą, aby zapobiec przenikaniu zanieczyszczeń/wody. (D) Przykład rozmieszczenia trzech śrub mocujących na czaszce lewej półkuli oraz trzech elektrod ECoG (w tym elektrody referencyjnej) na prawej półkuli. Dokładne współrzędne stereotaktyczne elektrod ECoG są wskazane w krokach 2.6 i 3.2 i zostały obliczone zgodnie z położeniem bregma i lambda (oznaczonych żółtymi kropkami). Skróty: ECoG = elektrokortykografia; EMG = elektromiografia. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
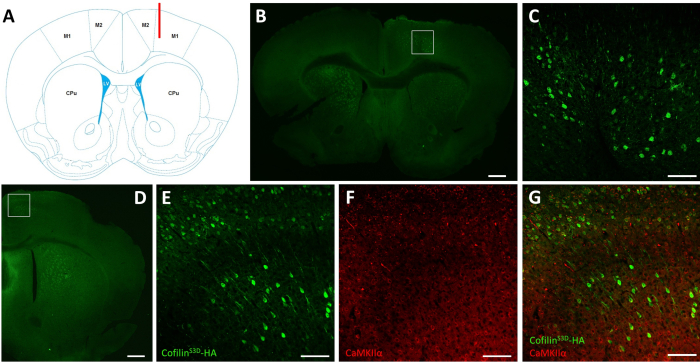
Rysunek 2: Reprezentatywne barwienie immunohistoriczne w celu określenia obszaru zainfekowanego AAV oraz typu komórek. (A) Schematyczne przedstawienie miejsca wstrzyknięcia dla przekroju czołowego zaprezentowanego w panelu B. Pozycja znajduje się 1,1 mm przed punktem bregma, a kaniula (zaznaczona na czerwono) była skierowana do warstwy V prawej pierwotnej kory ruchowej (M1). Przedstawienie zmodyfikowane na podstawie pracy Franklina i Paxinosa40. (B) Barwienie immunohistoryczne HA w celu wykrycia ekspresji cofilinS3D-HA w neuronach, pokazane dla przekroju czołowego całego mózgu znajdującego się około 1,1 mm przed punktem bregma. Obszar zainfekowany lokalizuje się głównie w warstwach V i VI (warstwy podziarniste) prawej pierwotnej i wtórnej kory ruchowej (M1 i M2). Pasek skali = 500 µm. Kwadrat reprezentuje obszar pokazany w C. (C) Powiększenie obszaru zainfekowanego pokazujące barwienie zainfekowanych komórek i potwierdzające ekspresję cofilinS3D-HA w głębszych warstwach kory ruchowej. Pasek skali = 100 µm. (D) Podwójne barwienie immunohistoryczne HA i CaMKIIα w celu oceny swoistości typu komórek, pokazane dla przekroju czołowego prawej półkuli znajdującego się około 0,5 mm przed punktem bregma, a zatem za miejscem wstrzyknięcia (ta sama mysz, co w panelach B i C). Obszar zainfekowany lokalizuje się w korach ruchowych (M1 i głównie M2). Pasek skali = 500 µm. Kwadrat reprezentuje obszar pokazany w E, F i G. (E) Powiększenie obszaru zainfekowanego pokazujące barwienie zainfekowanych komórek i potwierdzające ekspresję cofilinS3D-HA. Pasek skali = 100 µm. (F) Powiększenie obszaru zainfekowanego pokazujące barwienie komórek CaMKIIα-dodatnich. Pasek skali = 100 µm. (G) Powiększenie obszaru zainfekowanego pokazujące współoznaczenie cofilinS3D-HA i CaMKIIα, potwierdzające, że zainfekowane komórki są CaMKIIα-dodatnie. Pasek skali = 100 µm. Skróty: AAV = wirus towarzyszący adenowirusom; M1 = pierwotna kora ruchowa; M2 = wtórna kora ruchowa; CPu = jądro caudate putamen (prążkowie); LV = komora boczna; HA = hemaglutynina; CamKIIα = wapń/kalmodulina-zależna kinaza białkowa II alfa. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
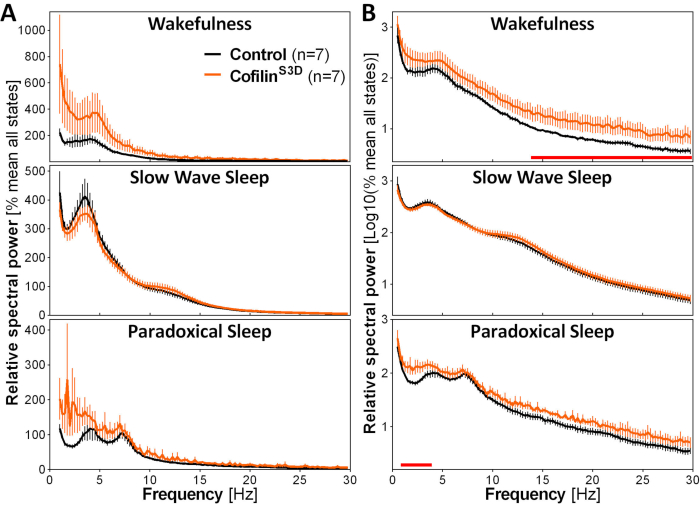
Rysunek 3Reprezentatywne widma mocy dla stanu czuwania, snu wolnofalowego oraz snu paradoksalnego, uzyskane po wirusowej manipulacji funkcją kofiliny. Myszy samce (n = 5 na grupę) i samice (n = 2 na grupę) po wstrzyknięciu AAV9-CaMKIIα0.4-kofilinaS3D-HA (miano wirusa 2,58 × 10¹³ GC/ml) lub z kontrolnym AAV (AAV9-CaMKIIα0.4-eGFP 1,25 × 10¹³ GC/ml; połowa miana testowego, aby skontrolować wzmocniony sygnał tej kontrolnej AAV) w warstwie V kory ruchowej rejestrowano przez 24 h, a sygnał elektrokortykograficzny poddano analizie spektralnej (szybka transformata Fouriera w celu obliczenia mocy spektralnej w zakresie od 0,5 do 30 Hz z rozdzielczością 0,25 Hz). (A) Widma mocy podczas trzech stanów czuwania wyrażone w stosunku do całkowitej mocy wszystkich stanów. (B) Względne widma mocy poddane transformacji logarytmicznej w celu dokładniejszego przedstawienia różnic między grupami w zakresie wyższych częstotliwości. Supresja aktywności kofiliny w korze ruchowej z wykorzystaniem AAV9-CaMKIIα0,4-kofilinaS3D-HA znacząco zwiększa aktywność elektrokortykograficzną w zakresie beta (14–30 Hz) podczas czuwania oraz w zakresie delta (1–4 Hz) podczas snu paradoksalnego w porównaniu z wstrzyknięciami kontrolnymi (czerwone linie nad osiami x wskazują test Mann-Whitneya U-test mocy pasma częstotliwości p < 0,05). Skróty: AAV = wirus towarzyszący adenowirusom; GC = kopie genomu; HA = hemaglutynina; CamKIIα = kinaza białkowa II alfa zależna od wapnia/kalmoduliny; eGFP = ulepszone zielone białko fluorescencyjne. Kliknij tutaj, aby wyświetlić większą wersję tej figury.
Dyskusja
Protokół ten opisuje precyzyjną i prostą metodę monitorowania aktywności ECoG i EMG podczas manipulacji celami molekularnymi za pomocą AAV. W celu odpowiedniego porównania między grupami zdecydowanie zaleca się, aby zawsze planować zabiegi chirurgiczne (wstrzyknięcie AAV i implantacja elektrody) tego samego dnia dla zwierząt testowych i kontrolnych oraz jednocześnie rejestrować ich sygnały elektrofizjologiczne. Aby uzyskać podobną ekspresję wirusa między zwierzętami badanymi i kontrolnymi, pożądane jest wstrzyknięcie tego samego miana wirusa. W omawianym przypadku miano wirusa w grupie kontrolnej AAV zostało zmniejszone do połowy testowego AAV, aby zapewnić podobną ekspresję wirusa. Eksperymentatorzy powinni być bardzo ostrożni z pomiarami współrzędnych stereotaktycznych, aby zapewnić niską zmienność między zwierzętami w celowaniu w obszar mózgu/warstwę korową. Dodatkowo, biorąc pod uwagę, że głębokość wstrzyknięcia jest obliczana na podstawie powierzchni czaszki, a grubość czaszki zmienia się w zależności od wieku i płci, umieszczenie kaniuli powinno być zawsze weryfikowane za pomocą histologii poprotokolarnej lub immunohistochemii (np. Ryc. 2), aby zapewnić odpowiednie umiejscowienie/głębokość wstrzyknięcia, a współrzędne stereotaktyczne należy w razie potrzeby dostosować. Przez cały 40-minutowy wtrysk AAV bardzo ważne jest monitorowanie prędkości wstrzykiwania, aby szybko wykryć i skorygować potencjalne problemy, takie jak zablokowanie pompy. Niektóre etapy eksperymentu są również niezbędne do uzyskania optymalnych sygnałów elektrofizjologicznych. Na przykład nie należy przekręcać elektrody podczas implantacji elektrody; powinny wystawać z czaszki na co najmniej 2,5 mm, aby zminimalizować uszkodzenie kory mózgowej i powstanie blizny glejowej. Następnie niezwykle ważne jest również, aby i) unikać nakładania cementu na końce elektrod, ii) zapewnić szybkie przylutowanie elektrod do złącza oraz iii) upewnić się, że nie ma kontaktu między elektrodami.
Przedstawiona tutaj procedura zapisu ECoG i EMG jest niezwykle dobrze znana, prosta i szeroko stosowana do monitorowania czuwania i snu u myszy 2,11,13,34. Ciągłe zapisy ECoG i EMG mogą być wykonywane przez kilka kolejnych dni (a nawet tygodni) i generują bardzo bogaty zbiór danych, który można wykorzystać do wykonania kilku linii analizy obejmujących zmienne związane z ilością czuwania i snu oraz architekturą 2,11,12 (np. czas spędzony w różnych stanach na okresy światła i ciemności, liczba epizodów każdego stanu, 24-godzinny rozkład snu), zawartość spektralna czuwania i snu34,41 (np. moc w różnych pasmach częstotliwości [podobnie jak na rysunku 3], aktywność bez skali) oraz charakterystyka poszczególnych fal 42,43,44 (np. amplituda i nachylenie fal wolnofalowych). W połączeniu z manipulacjami molekularnymi za pośrednictwem AAV, dodatkową zaletą jest uniknięcie potencjalnej kompensacji rozwojowej, która może wystąpić u zwierząt transgenicznych. Przy odrobinie wprawy cała procedura, łącznie z 40-minutowym wstrzyknięciem AAV, może być wykonana w około 90 minut. Śmiertelność powinna być (bardzo) niska, ponieważ operacja jest minimalnie inwazyjna.
Jednoczesne wykorzystanie zapisu ECoG/EMG i ukierunkowanej manipulacji za pomocą AAV oferuje szereg innych zalet i zastosowań. Na przykład precyzja celowania stereotaktycznego, gdy jest odpowiednio wykonana, jest bardzo wysoka i powtarzalna i jest przydatna do określenia specyficznej roli danego regionu mózgu (i/lub typu komórki lub elementu molekularnego w regionie) w regulacji snu lub innych procesów fizjologicznych. W ten sposób można łatwo namierzyć kilka różnych obszarów kory mózgowej za pomocą adaptacji obecnego protokołu. Co więcej, manipulacje celami za pomocą AAV mogą być kierowane do obszaru korowego/podkorowego innego niż miejsca rejestracji ECoG. W takich przypadkach otwór w zadziorach do wstrzyknięcia AAV może być zakryty małym szklanym szkiełkiem nakrywkowym przymocowanym za pomocą cementu dentystycznego (lub wosku kostnego). W celu zwiększenia swoistości, konstrukcja AAV często zawiera promotor, który umożliwia celowaną infekcję precyzyjnego typukomórki 14. Promotor CamKIIα został użyty w niniejszym protokole do specyficznego celowania w pobudzające komórki piramidowe 14,29,45 kory ruchowej. Strategia ta umożliwiła inaktywację kofiliny (przy użyciu kofilinyS3D)32,33 w neuronach pobudzających kory ruchowej i obserwację specyficznych dla stanu zmian w aktywności ECoG (ryc. 3). Aby ocenić skuteczność infekcji/transdukcji, przyszli użytkownicy protokołu mogli połączyć przedstawiony protokół AAV-ECoG z jednym z kobarwienia za pomocą immunofluorescencji i wykorzystać obrazy o dużym powiększeniu do obliczenia liczby komórek wykazujących podwójne znakowanie z całkowitej liczby komórek wykazujących pojedyncze znakowanie celu (w tym przypadku neurony eksprymujące CaMKIIα). W niedawnym badaniu metoda AAV-ECoG podobna do opisanej tutaj została użyta do nadekspresji białka 1 związanego z zespołem upośledzenia umysłowego (FXR1) we wszystkich neuronach kory ruchowej przy użyciu AAV zawierającego promotor synapsyny i ujawniła wpływ tej manipulacji na rozkład stanu czujności i zawartość spektralną28. Odkrycia te ilustrują, w jaki sposób manipulowanie daną cząsteczką w docelowym regionie mózgu za pomocą AAV może ujawnić role w regulacji określonych parametrów czuwania/snu.
Ograniczeniem opisanego protokołu jest niewielkie uszkodzenie tkanki mózgowej występujące po założeniu kaniuli przed wykonaniem iniekcji AAV, któremu może również towarzyszyć reakcja zapalna. Może to być szczególnie niepokojące podczas wykonywania iniekcji AAV w obszarach podkorowych i zawsze powinno być zwalczane poprzez stosowanie odpowiednich kontroli. Alternatywnie, po obecnym protokole można by przeprowadzić kwantyfikację reaktywnej glejozy i/lub aktywacji mikrogleju (np. za pomocą immunofluorescencji) w celu zapewnienia podobnych poziomów w grupach kontrolnych i testowych, a tym samym na odczycie ECoG. Drugie ograniczenie dotyczy ryzyka złego połączenia między elektrodą a złączem, co może skutkować ciągłym lub sporadycznie złym sygnałem elektrofizjologicznym. Solidnie przykręcone, przylutowane i scementowane elektrody zminimalizują występowanie tego problemu. Trzecie ograniczenie jest związane z tym, że zwierzęta są przywiązane do głowy za pomocą montażu głowy podczas nagrywania, co może przynajmniej do pewnego stopnia ograniczać lokomocję i inne zachowania, a czasami powodować uszkodzenie okablowania i utratę sygnału. Wreszcie, przedstawiony protokół jest bardziej odpowiedni dla dorosłych myszy, biorąc pod uwagę, że rozmiar czaszki młodszych zwierząt może powodować trudności w zainstalowaniu przedstawionego montażu głowy, jak opisano wcześniej2.
Połączony zapis ECoG/EMG i manipulacja precyzyjnym celem za pośrednictwem AAV ma również zastosowanie w dziedzinach badawczych innych niż neuronauka snu. Między innymi może być używany do badania i manipulowania zdarzeniami padaczkowymi w zwierzęcych modelach napadów i jest potężnym narzędziem do modulowania oscylacji mózgu zaangażowanych w kodowanie i konsolidację pamięci46,47. W związku z tym potencjalne zastosowania z pewnością obejmują dziedziny badań podstawowych w psychiatrii i neurologii, w tym chorób neurodegeneracyjnych. Oprócz zdolności do ekspresji nieaktywnej formy cząsteczki, AAV mogą być i były używane do nadekspresji lub obniżania ekspresji (np. Małe interferujące RNA, CRISPR/Cas9) lub do ratowania ekspresji cząsteczki w KO całego ciała. Co ważne, podwójna metodologia obecnego protokołu ma również zastosowanie do innych gatunków ssaków, takich jak szczury i gryzonie żyjące w ciągu dnia, które stanowią interesujące modele do zrozumienia zarówno snu, jak i neurodegeneracji48,49.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Praca została sfinansowana przez Kanadyjską Katedrę Badań nad Fizjologią Molekularną Snu. Autorzy są wdzięczni Chloé Provost i Caroline Bouchard za pomoc techniczną.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Surgery peparation | |||
| 21 G igła | Terumo | NN-2125R | |
| 6-kanałowe złącze | ENA AG | BPHF2-O6S-E-3.2 | Złącze używane w tym rękopisie, ale wycofane z produkcji. Zobacz potencjalny zamiennik poniżej |
| Distrelec | 300-93-672 | Potencjalny zamiennik wycofanego złącza powyżej | |
| myszy C57BL6/J | Jackson Laboratory | 000664 | B6 | Zwierzęta hodowane na miejscu |
| Pluronic F-68 | Niejonowy środek powierzchniowo czynny | ||
| Złoty drut o średnicy 0,2 mm | Delta scientific | 920-862-41 | Nieizolowana |
| strzykawka Hamilton (10 μ L) | Fisher Scientific 14815279 | ||
| Pompa strzykawkowa infuzyjna CMA 402 | Harvard Aparat | CMA8003110 | |
| Kaniula iniekcyjna 28 G | Tworzywa sztuczne jeden | C313L-SPCL | |
| Isoflurane | Baxter | CA2L9100 | |
| Ketamina (10 mg / ml) | SANDOZ | 4550 | |
| Bezołowiowy lut | AIM | SN100C | |
| okulistyki | ALLERGAN | 210889 | |
| PE 50 Cewnik cienkościenny | Tworzywa sztuczne jeden | C232CT | |
| Wkręty samogwintujące z walcowym płaskim | MORRIS | FF00CE125 | elektroda ECoG pokryta złotem; Wymiary: 1,9 mm średnica główki, 1,14 mm średnica główna, długość 3,6 mm |
| Lutownica | Weller | WES51 | |
| Strzykawka 1 ml | BD | 309659 | |
| Trymer | Aparat Harvard | 72-9063 | |
| Ksylazyna (20 mg / ml) | Bayer | 2169592 | |
| Wewnątrzkorowe wstrzyknięcie AAV za pomocą pompy strzykawkowej | |||
| Wiertło 0,7 mm | Dremel | 628 | |
| AAV9-CaMKIIα 0,4-kofilinaS3D-HA | UPenn Wirusowy rdzeń | ||
| AAV9-CaMKIIα 0,4-eGFP | UPenn Viral Core | ||
| Aplikatory z końcówką bawełnianą | Medicom | 806 | |
| Wiertarka | Dremel | 8050-N/18 | |
| Bardzo drobne kleszcze Graefe | Narzędzia do precyzyjnej nauki | 11150-10 | |
| Ramię stereotaktyczne | Stoelting | 51604U | |
| Ramka stereotaktyczna | Stoelting | 51600 | |
| Zaciski chirurgiczne | Narzędzia do nauki precyzyjnej | 18050-28 | |
| Nożyczki do tkanek | Magna Stainless | M4-124 | |
| ECoG/EMG implantacja elektrod | |||
| Buprenorfina (0,3 mg/mL) | CEVA | 57133-02 | |
| Kleszcze zakrzywione | Narzędzia do nauki precyzyjnej | 11001-12 | |
| Delikatne wycieraczki zadaniowe | Kimtech | 34120 | |
| Dentystyczny cement akrylowy | Yates Motloid | 44115 | |
| Kleszcze Dumont #5 | Narzędzia do precyzyjnej | nauki 91150-20 | |
| Bardzo cienkie kleszcze Graefe | Narzędzia do nauk ścisłych | 11150-10 | |
| Kleszcze Kelly | Narzędzia do nauki | 13002-10 | |
| Płynny akryl | Yates Motloid | 44119 | |
| Monocryl plus igła do szwów 13 mm 3/8c rev cięcie | Ethicon | MCP494 | |
| Prowidon-jod 10% | Triada jednorazowe | 10-8208 | |
| RelyX Unicem 2, Adhezyjny cement żywiczny A2 | 3M | 56849 | |
| Immunofluorescence i zapis ECoG | |||
| 36-kanałowy wlew EEG | LaMONT Medyczne | 832-000350 | |
| Przeciwciało monoklonalne alfa CaMKII (Cba-2) | Invitrogen | 13-7300 | Rozcieńczenie 1: 500 |
| Przewody Awg izolacyjny PVC Drut | Calmont i | HC-0819075R0 | |
| Donkey anty-mysie IgG wtórne Ab, Alexa Fluor 568 | Invitrogen | A10037 | Rozcieńczenie 1:1000 |
| Koza anty-królicza IgG wtórna Ab, Alexa Fluor 488 | Invitrogen | A-11008 | Rozcieńczenie 1:500 |
| HA-Tag (C29F4) Królik mAb | Sygnalizacja komórkowa | 3724 | Rozcieńczenie 1:800 |
| Programowalny wzmacniacz | LaMONT Medical | 815-000002- S2 | |
| Stellate Harmonie | Natus | HSYS-REC-LT2 | |
| Łącznik obrotowy | Crist Instrument Company Inc. | 4-TBC-9-S |
Bibliografia
- Campbell, I. G. EEG recording and analysis for sleep research. Current Protocols in Neuroscience. , Chapter 10 (unit 10.2) (2009).
- Mang, G. M., Franken, P. Sleep and EEG phenotyping in mice. Current Protocols in Mouse Biology. 2 (1), 55-74 (2012).
- Bastien, C. H., et al. Insomnia and sleep misperception. Pathologie Biologie. 62 (5), 241-251 (2014).
- Malafeev, A., et al. Automatic artefact detection in single-channel sleep EEG recordings. Journal of Sleep Research. 28 (2), 12679(2019).
- Latreille, V., et al. Electroencephalographic prodromal markers of dementia across conscious states in Parkinson's disease. Brain. 139, Pt 4 1189-1199 (2016).
- Rodrigues Brazete, J., et al. Electroencephalogram slowing predicts neurodegeneration in rapid eye movement sleep behavior disorder. Neurobiology of Aging. 37, 74-81 (2016).
- Kent, B. A., Strittmatter, S. M., Nygaard, H. B. Sleep and EEG power spectral analysis in three transgenic mouse models of Alzheimer's disease: APP/PS1, 3xTgAD, and Tg2576. Journal of Alzheimers Disease. 64 (4), 1325-1336 (2018).
- Chang, A. M., et al. Circadian gene variants influence sleep and the sleep electroencephalogram in humans. Chronobiology International. 33 (5), 561-573 (2016).
- Shi, G., Wu, D., Ptacek, L. J., Fu, Y. H. Human genetics and sleep behavior. Current Opinion in Neurobiology. 44, 43-49 (2017).
- Nakai, Y., et al. Calcineurin and its regulator sra/DSCR1 are essential for sleep in Drosophila. Journal of Neuroscience. 31 (36), 12759-12766 (2011).
- El Helou, J., et al. Neuroligin-1 links neuronal activity to sleep-wake regulation. Proceedings of the National Academy of Sciences of the United States of America. 110 (24), 9974-9979 (2013).
- Freyburger, M., et al. EphA4 is involved in sleep regulation but not in the electrophysiological response to sleep deprivation. Sleep. 39 (3), 613-624 (2016).
- Seok, B. S., et al. The effect of Neuroligin-2 absence on sleep architecture and electroencephalographic activity in mice. Molecular Brain. 11 (1), 52(2018).
- Haery, L., et al. Adeno-associated virus technologies and methods for targeted neuronal manipulation. Frontiers in Neuroanatomy. 13, 93(2019).
- Schmidt, F., Grimm, D. CRISPR genome engineering and viral gene delivery: a case of mutual attraction. Biotechnology Journal. 10 (2), 258-272 (2015).
- Wang, D., Zhang, F., Gao, G. CRISPR-based therapeutic genome editing: strategies and in vivo delivery by AAV vectors. Cell. 181 (1), 136-150 (2020).
- Havekes, R., et al. Transiently increasing cAMP levels selectively in hippocampal excitatory neurons during sleep deprivation prevents memory deficits caused by sleep loss. Journal of Neuroscience. 34 (47), 15715-15721 (2014).
- Fuller, P. M., Yamanaka, A., Lazarus, M. How genetically engineered systems are helping to define, and in some cases redefine, the neurobiological basis of sleep and wake. Temperature. 2 (3), Austin. 406-417 (2015).
- Naso, M. F., Tomkowicz, B., Perry, W. L., Strohl, W. R. Adeno-associated virus (AAV) as a vector for gene therapy. BioDrugs. 31 (4), 317-334 (2017).
- Ono, D., Yamanaka, A. Hypothalamic regulation of the sleep/wake cycle. Neuroscience Research. 118, 74-81 (2017).
- Shiromani, P. J., Peever, J. H. New neuroscience tools that are identifying the sleep-wake circuit. Sleep. 40 (4), 032(2017).
- Oishi, N., et al. Artificial association of memory events by optogenetic stimulation of hippocampal CA3 cell ensembles. Molecular Brain. 12 (1), 2(2019).
- Anaclet, C., et al. Genetic activation, inactivation, and deletion reveal a limited and nuanced role for somatostatin-containing basal forebrain neurons in behavioral state control. Journal of Neuroscience. 38 (22), 5168-5181 (2018).
- Chen, K. S., et al. A hypothalamic switch for REM and non-REM sleep. Neuron. 97 (5), 1168-1176 (2018).
- Torontali, Z. A., Fraigne, J. J., Sanghera, P., Horner, R., Peever, J. The sublaterodorsal tegmental nucleus functions to couple brain state and motor activity during REM sleep and wakefulness. Current Biology. 29 (22), 3803-3813 (2019).
- Rolls, A., et al. Optogenetic disruption of sleep continuity impairs memory consolidation. Proceedings of the National Academy of Sciences of the United States of America. 108 (32), 13305-13310 (2011).
- Ognjanovski, N., Broussard, C., Zochowski, M., Aton, S. J. Hippocampal network oscillations rescue memory consolidation deficits caused by sleep loss. Cerebral Cortex. 28 (10), 3711-3723 (2018).
- Khlghatyan, J., et al. Fxr1 regulates sleep and synaptic homeostasis. EMBO Journal. 39 (21), 103864(2020).
- Havekes, R., et al. Sleep deprivation causes memory deficits by negatively impacting neuronal connectivity in hippocampal area CA1. Elife. 5, 13424(2016).
- Wong, L. W., Tann, J. Y., Ibanez, C. F., Sajikumar, S. The p75 neurotrophin receptor is an essential mediator of impairments in hippocampal-dependent associative plasticity and memory induced by sleep deprivation. Journal of Neuroscience. 39 (28), 5452-5465 (2019).
- Mizuno, K. Signaling mechanisms and functional roles of cofilin phosphorylation and dephosphorylation. Cellular Signalling. 25 (2), 457-469 (2013).
- Nagaoka, R., Abe, H., Obinata, T. Site-directed mutagenesis of the phosphorylation site of cofilin: its role in cofilin-actin interaction and cytoplasmic localization. Cell Motility and the Cytoskeleton. 35 (3), 200-209 (1996).
- Elam, W. A., et al. Phosphomimetic S3D cofilin binds but only weakly severs actin filaments. Journal of Biological Chemistry. 292 (48), 19565-19579 (2017).
- Areal, C. C., Cao, R., Sonenberg, N., Mongrain, V. Wakefulness/sleep architecture and electroencephalographic activity in mice lacking the translational repressor 4E-BP1 or 4E-BP2. Sleep. 43 (2), (2020).
- Vyazovskiy, V., Borbely, A. A., Tobler, I. Unilateral vibrissae stimulation during waking induces interhemispheric EEG asymmetry during subsequent sleep in the rat. Journal of Sleep Research. 9 (4), 367-371 (2000).
- Sitnikova, E. Neonatal sensory deprivation promotes development of absence seizures in adult rats with genetic predisposition to epilepsy. Brain Research. 1377, 109-118 (2011).
- Tudor, J. C., et al. Sleep deprivation impairs memory by attenuating mTORC1-dependent protein synthesis. Science Signaling. 9 (425), 41(2016).
- Evilsizor, M. N., Ray-Jones, H. F., Lifshitz, J., Ziebell, J. Primer for immunohistochemistry on cryosectioned rat brain tissue: example staining for microglia and neurons. Journal of Visualized Experiments. (99), e52293(2015).
- Dufort-Gervais, J., et al. Neuroligin-1 is altered in the hippocampus of Alzheimer's disease patients and mouse models, and modulates the toxicity of amyloid-beta oligomers. Scientific Reports. 10 (1), 6956(2020).
- Franklin, K. B. J., Paxinos, G. The mouse brain in stereotaxic coordinates, Third edition. , Academic Press. New York. (2007).
- Lina, J. M., O'Callaghan, E. K., Mongrain, V. Scale-free dynamics of the mouse wakefulness and sleep electroencephalogram quantified using Wavelet-Leaders. Clocks & Sleep. 1 (1), 50-64 (2019).
- Massart, R., et al. The genome-wide landscape of DNA methylation and hydroxymethylation in response to sleep deprivation impacts on synaptic plasticity genes. Translational Psychiatry. 4, 347(2014).
- Freyburger, M., Poirier, G., Carrier, J., Mongrain, V. Shorter duration of non-rapid eye movement sleep slow waves in EphA4 knockout mice. Journal of Sleep Research. 26 (5), 539-546 (2017).
- Hubbard, J., et al. Rapid fast-delta decay following prolonged wakefulness marks a phase of wake-inertia in NREM sleep. Nature Communications. 11 (1), 3130(2020).
- Johansen, J. P., et al. Optical activation of lateral amygdala pyramidal cells instructs associative fear learning. Proceedings of the National Academy of Sciences of the United States of America. 107 (28), 12692-12697 (2010).
- Boyce, R., Glasgow, S. D., Williams, S., Adamantidis, A. Causal evidence for the role of REM sleep theta rhythm in contextual memory consolidation. Science. 352 (6287), 812-816 (2016).
- Bandarabadi, M., et al. Dynamic modulation of theta-gamma coupling during rapid eye movement sleep. Sleep. 42 (12), 182(2019).
- Estrada, C., et al. Transcranial magnetic stimulation and aging: Effects on spatial learning and memory after sleep deprivation in Octodon degus. Neurobiology of Learning and Memory. 125, 274-281 (2015).
- Hurley, M. J., et al. The long-lived Octodon degus as a rodent drug discovery model for Alzheimer's and other age-related diseases. Pharmacology & Therapeutics. 188, 36-44 (2018).
Przedruki i uprawnienia
