Ten protokół został opracowany w celu lepszego zrozumienia, jak agrochemikalia wpływają na reprodukcję pszczół miodnych (Apis mellifera), poprzez ustanowienie metod wystawiania królowych pszczół miodnych i ich opiekunów na działanie agrochemikaliów w kontrolowanych, laboratoryjnych warunkach i uważne monitorowanie ich odpowiednich reakcji.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Ocena ryzyka agrochemicznego dla krytych matek pszczół miodnych
W tym artykule
Podsumowanie
Streszczenie
Obecne strategie oceny ryzyka dla pszczół miodnych opierają się głównie na testach laboratoryjnych przeprowadzanych na dorosłych lub niedojrzałych pszczołach robotnicach, ale te metody mogą nie uchwycić dokładnie wpływu ekspozycji agrochemicznej na królowe pszczół miodnych. Jako jedyny producent zapłodnionych jaj w kolonii pszczół miodnych, królowa jest prawdopodobnie najważniejszym pojedynczym członkiem funkcjonującej jednostki kolonijnej. Dlatego zrozumienie, w jaki sposób agrochemikalia wpływają na zdrowie i produktywność królowych, powinno być uważane za kluczowy aspekt oceny ryzyka związanego z pestycydami. W tym miejscu przedstawiono dostosowaną metodę wystawiania królowych pszczół miodnych i matek robotnic na agrochemiczne czynniki stresogenne podawane w diecie robotnic, a następnie śledzenie produkcji jaj w laboratorium i ocenę pierwszego stadium rozwojowego za pomocą specjalistycznej klatki, zwanej klatką do monitorowania królowej. Aby zilustrować zamierzone zastosowanie metody, opisano wyniki eksperymentu, w którym robotnice karmiono dietą zawierającą subletalne dawki imidakloprydu i monitorowano wpływ na królowe.
Wprowadzenie
Ze względu na zwiększony globalny popyt na produkty rolne, nowoczesne praktyki rolnicze często wymagają użycia agrochemikaliów do zwalczania licznych szkodników, o których wiadomo, że zmniejszają lub szkodzą plonom1. Jednocześnie hodowcy wielu upraw owoców, warzyw i orzechów polegają na usługach zapylania świadczonych przez komercyjne kolonie pszczół miodnych, aby zapewnić obfite plony2. Praktyki te mogą spowodować, że zapylacze, w tym pszczoły miodne (Apis mellifera), będą narażone na szkodliwe poziomy pozostałości pestycydów3. Jednocześnie powszechna obecność pasożytniczych roztoczy Varroa destructor w koloniach pszczół miodnych często wymaga od pszczelarzy traktowania uli środkami roztoczobójczymi, które mogą również wywierać negatywny wpływ na zdrowie i długowieczność kolonii4,5,6. Aby ograniczyć i złagodzić szkodliwe działanie produktów agrochemicznych, konieczna jest pełna ocena ich bezpieczeństwa dla pszczół miodnych przed ich wdrożeniem, aby można było sformułować zalecenia dotyczące ich stosowania w celu ochrony pożytecznych owadów.
Obecnie, Agencja Ochrony Środowiska (EPA) opiera się na wielopoziomowej strategii oceny ryzyka narażenia pszczół miodnych na pestycydy, która obejmuje badania laboratoryjne na dorosłych pszczołach, a czasem na larwach pszczół miodnych7. Jeżeli badania laboratoryjne niższego poziomu nie rozwieją obaw związanych z toksycznością, mogą być zalecane badania terenowe i półterenowe wyższego poziomu. Chociaż te testy laboratoryjne dostarczają cennych informacji na temat potencjalnego wpływu agrochemikaliów na długowieczność pracowników, niekoniecznie przewidują ich wpływ na królowe, które znacznie różnią się od robotnic pod względem biologicznym8 i behawioralnie9. Co więcej, istnieje wiele potencjalnych skutków agrochemikaliów na owady wykraczających poza śmiertelność, co może mieć poważne konsekwencje dla owadów społecznych, które polegają na skoordynowanych zachowaniach, aby funkcjonować jako jednostka kolonijna10,11.
Chociaż śmiertelność jest najczęściej rozważanym skutkiem agrochemicznych pestycydów12, produkty te mogą mieć szeroki zakres wpływu zarówno na docelowe, jak i niedocelowe stawonogi, w tym zmienione zachowanie13,14,15,16, odstraszanie lub przyciąganie17,18,19, zmiany we wzorcach żywienia20,21,22, oraz zwiększył lub zmniejszył płodność20,21,22,23,24,25. W przypadku owadów społecznych efekty te mogą systemowo zakłócać interakcje i funkcje kolonii11. Spośród tych funkcji rozmnażanie, które jest w dużym stopniu uzależnione od pojedynczej królowej składającej jaja wspieranej przez resztę jednostki kolonijnej9, może być szczególnie podatne na zakłócenia spowodowane ekspozycją na pestycydy.
Badania przeprowadzone na niedojrzałych królowych wykazały, że rozwojowe narażenie na roztoczobójcze może wpływać na zachowanie dorosłej królowej, fizjologię, przeżywalność26,27. Podobnie, badania z użyciem kolonii o pełnych lub zmniejszonych rozmiarach wykazały, że agrochemikalia mogą wpływać na dorosłe matki pszczół miodnych poprzez zmniejszanie sukcesu krycia28, zmniejszanie składania jaj29 i zmniejszanie żywotności wyprodukowanych jaj25,30,31. Zjawiska te były wcześniej trudne do zaobserwowania bez użycia całych kolonii, głównie ze względu na brak dostępnych metod laboratoryjnych. Jednak metoda badania składania jaj królowej w ściśle kontrolowanych warunkach laboratoryjnych przy użyciu klatek do monitorowania królowej (QMC)32 została niedawno dostosowana do zbadania wpływu agrochemikaliów na płodność królowej33. W tym miejscu techniki te są szczegółowo opisane wraz z dodatkowymi metodami pomiaru i śledzenia spożycia diety pracowników w QMC.
Te metody są bardziej korzystne niż eksperymenty wymagające pełnowymiarowych kolonii, ponieważ pozwalają na podawanie precyzyjnych dawek agrochemikaliów znacznie zmniejszonej liczbie robotnic w stosunku do dziesiątek tysięcy zazwyczaj obecnych wewnątrz kolonii34, które następnie dostarczają królową. Ta technika ekspozycji odzwierciedla narażenie z drugiej ręki, którego królowe doświadczałyby w rzeczywistych scenariuszach, ponieważ w kolonii królowe nie żywią się same i polegają na robotnicach, które dostarczają im dietę9. Podobnie, królowe na ogół nie opuszczają ula, z wyjątkiem okresu rozmnażania kolonii (roju) w celu lotów godowych35. Kryte królowe pszczół miodnych można kupić od komercyjnych hodowców matek i wysłać z dnia na dzień. Zazwyczaj hodowcy matek sprzedają królowe bezpośrednio po potwierdzeniu, że zaczęły składać jaja, co jest uważane za wskaźnik udanego krycia. Jeśli potrzebne są dokładniejsze informacje na temat wieku matki lub pokrewieństwa, badacze mogą skonsultować się z hodowcą królowej przed złożeniem zamówienia.
QMCs pozwalają na precyzyjną obserwację i kwantyfikację składania jaj przez królową pszczoły miodnej oraz wskaźników wylęgu jaj32,33, dostarczając cennych danych związanych z wpływem ekspozycji agrochemicznej na płodność królowej. Przedstawione tutaj reprezentatywne wyniki opisują eksperyment określający ilościowo składanie jaj, spożycie diety i żywotność zarodków w QMC pod wpływem przewlekłego narażenia na istotne dla pola stężenia ogólnoustrojowego neurotoksycznego pestycydu neonikotynoidowego imidakloprydu36. Po zastosowaniu imidaklopryd przemieszcza się do tkanek roślinnych37, a pozostałości zostały wykryte w pyłku i nektarze wielu roślin zapylanych przez pszczoły38,39,40. Narażenie na imidaklopryd może mieć szeroki zakres szkodliwych skutków dla pszczół miodnych, w tym upośledzenie wydajności żerowania16, upośledzenie funkcji immunologicznych41 oraz zmniejszenie szybkości ekspansji i przeżywalności kolonii42,43. W tym przypadku imidaklopryd został wybrany do użycia jako substancja badana, ponieważ eksperymenty terenowe wykazały, że może on wpływać na składanie jaj królowej pszczół miodnych29
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Montaż QMC
- Zmontuj klatki QMC z elementów (Rycina 1A), wkładając jedną płytkę do składania jaj (ELP) zgodnie z Rycyną 1B. Nie dodawaj rurek karmnych, dopóki robotnice nie zostaną wprowadzone do klatki. Tymczasowo zaklej 4 otwory karmne taśmą laboratoryjną.
- Wsuń przegrodę przeciwkrólową oraz drzwiczki komory karmienia nad komorę karmienia, aby uniemożliwić królowej wejście do niej i kontakt z traktowaną dietą. Szczegóły montażu opisano w pracy Fine et al.32.
- Pobierz ramki z woskowym plastrem zawierające zasklepiony czerw robotnic z kolonii pszczół miodnych na 24 h przed wygryzieniem się dorosłych osobników i umieść je w inkubatorze (34,5 °C) wewnątrz larwnika. Po 24 h zmieć wygryzione pszczoły z ramek do otwartego pojemnika wyłożonego farbą barierową dla owadów (np. Fluon), aby zapobiec ucieczce pszczół.
- Wprowadź do komory składania jaj każdej klatki QMC co najmniej 50 pszczół wagowo (5 g ≈ 50 pszczół44,45). Aby zapewnić reprezentatywną i zróżnicowaną pulę genetyczną robotnic w eksperymencie, pobierz w przybliżeniu taką samą liczbę pszczół robotnic z co najmniej trzech kolonii i wymieszaj je przed umieszczeniem w klatkach QMC.
UWAGA: Nowo wygryzione pszczoły robotnice w wieku poniżej 1 dnia nie potrafią latać ani żądlić ze względu na niedorozwinięte mięśnie lotne i nieutwardzony kutykula. Jeśli są wprowadzane w tym wieku, nie ma potrzeby ich znieczulania przed manipulacją. Można je ważyć, delikatnie nabierając pszczoły z pojemnika małą miarką o pojemności ¼ szklanki i przenosząc je do drugiego pojemnika (wyłożonego farbą barierową, np. Fluon), który został wytarowany na wadze. Powierzchnia ramek pokryta zasklepionym czerwiem powinna być w przybliżeniu taka sama, aby zapewnić równą reprezentację kolonii źródłowych w populacjach robotnic w QMC. Homogenizację pszczół robotnic można osiągnąć poprzez zmiecenie nowo wygryzionych pszczół z ramek pobranych ze wszystkich kolonii do jednego pojemnika i pozostawienie ich do wymieszania przez 5 min przed wprowadzeniem do klatek QMC. - Dodaj karmniki zawierające roztwór sacharozy, wodę i suplement pyłkowy (patrz sekcja 2).
- Naraź poszczególne zapłodnione królowe na gaz CO2, aby pobudzić je do składania jaj46 oraz ułatwić przeniesienie do QMC.
- Użyj królowych zakupionych od komercyjnego hodowcy w ciągu 48 godzin od otrzymania. Gdy królowa znajduje się jeszcze w klatce transportowej, włóż ją do przezroczystej plastikowej torby. Włóż jeden koniec plastikowej rurki podłączonej do butli z gazem CO2 do wnętrza torby i delikatnie otwórz zawór butli, aby dopuścić przepływ gazu CO2.
- Po napompowaniu torby gazem jednocześnie zamknij zawór butli i szczelnie zamknij torbę, aby uwięzić gaz w środku. Trzymaj torbę zamkniętą przez 30 s lub do momentu, aż królowa przestanie się poruszać. Wyjmij królową i otwórz klatkę transportową, gdy stwierdzisz, że straciła przytomność.
- Uchyl drzwi do komory składania jaj, delikatnie umieść w niej nieprzytomną królową i zamknij pokrywę, uważając, aby nie zmiażdżyć królowej ani robotnic wewnątrz. Dodaj drugą płytkę do składania jaj do każdej klatki QMC, jak pokazano na Rycynie 1C. Przyklej kawałek taśmy laboratoryjnej w poprzek górnej części obu płytek ELP, aby zapobiec ich oddzieleniu od ramy QMC i uniemożliwić robotnicom opuszczenie klatki.
- Umieść klatki w ciemnym inkubatorze ze stabilnymi warunkami środowiskowymi: 34 ± 0,5 °C oraz wilgotnością względną 60% ± 10%, co odpowiada warunkom panującym w normalnej kolonii.
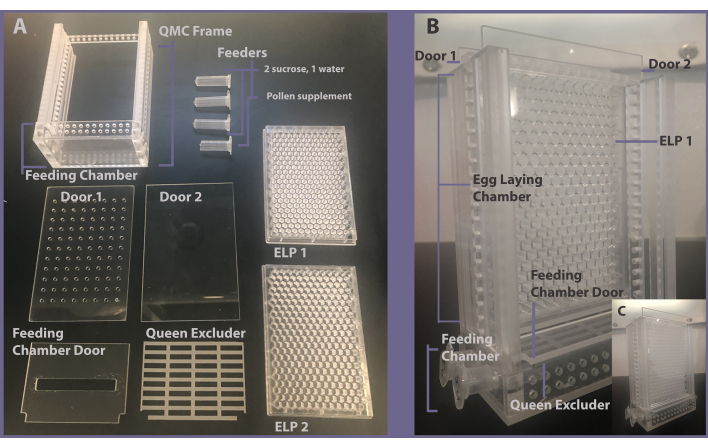
Rycina 1. A: Rozmontowany QMC. B: Częściowo zmontowany QMC z włożoną jedną płytką ELP. C: W pełni zmontowany QMC z dwiema płytkami ELP. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
2. Przygotowanie i podawanie diet z dodatkiem agrochemikaliów
- Aby przygotować 1000 g 50% (g/g) roztworu sacharozy, umieść mieszadło magnetyczne na dnie czystej szklanej butelki na odczynniki o pojemności 1 L. Dodaj 500 g sacharozy i 500 mL wody dejonizowanej. Odkręć korek butelki i użyj grzewczego mieszadła magnetycznego ustawionego na niską temperaturę, aby mieszać roztwór do czasu całkowitego rozpuszczenia sacharozy. Pozostaw roztwór do ochłodzenia do temperatury pokojowej przed dodaniem roztworów zapasowych agrochemikaliów.
- Przygotuj roztwory zapasowe agrochemikaliów w odpowiednim rozpuszczalniku, np. w acetonie, w stężeniu, które po dodaniu do diety pozwoli uzyskać pożądane stężenie końcowe interesującego agrochemikaliu.
UWAGA: Przy stosowaniu acetonu jako rozpuszczalnika nośnika wytyczne Organizacji Współpracy Gospodarczej i Rozwoju (OECD) określają, że stężenie końcowe acetonu w diecie musi wynosić ≤ 5% w przypadku testów przewlekłej toksyczności doustnej u dorosłych pszczół miodnych47. Jednak niektóre rozpuszczalniki, takie jak n-metylo-2-pirolidon5,31 oraz dimetylosulfotlenek25, mogą wywoływać efekty toksyczne poniżej tego stężenia, dlatego zaleca się utrzymywanie stężeń rozpuszczalników w diecie traktowanej na możliwie niskim poziomie. W zależności od objętości i rodzaju zastosowanego rozpuszczalnika może być konieczne uwzględnienie zarówno grupy kontrolnej rozpuszczalnika, jak i grupy kontrolnej negatywnej, aby zapewnić wykrycie potencjalnych efektów wynikających z toksyczności rozpuszczalnika. W przypadku stosowania produktów sformułowanych ilość użytego produktu musi zostać dostosowana do stężenia obecnego w formulacji. W zależności od stabilności interesującego agrochemikaliu w rozpuszczalniku, roztwory zapasowe można przechowywać do 2 tygodni w temperaturze -20 °C. - Wybierz dawki subletalne na podstawie wyników Testu OECD nr 245: Pszczoła miodna (Apis mellifera L.), Test przewlekłej toksyczności doustnej (karmienie przez 10 dni)47 i zidentyfikuj odpowiednią literaturę poprzez przeszukanie bazy wiedzy Ecotox48.
- Podaj preparaty agrochemiczne w roztworze sacharozy, komercyjnym suplemencie pyłkowym (jeśli jest dostępny w formie proszku) lub w obu. Przygotuj dietę eksperymentalną do użycia w tym samym dniu, dodając odpowiednią ilość roztworu zapasowego do schłodzonego lub w temperaturze pokojowej 50% roztworu sacharozy (w/w). Wymieszaj dokładnie za pomocą vortexu lub mieszadła magnetycznego ustawionego na średnią prędkość. W przypadku suplementów pyłkowych dodaj roztwór sacharozy z agrochemikaliem do proszkowego suplementu zamiast syropu, zgodnie z protokołami producenta, pamiętając o dostosowaniu objętości użytego roztworu zapasowego do końcowej masy diety pyłkowej. Przykładowe obliczenia znajdują się w Tabeli 1.
- Przygotuj rurki do karmienia z probówek do mikrocentryfugi o pojemności 2 mL.
- W przypadku karmideł z dietą płynną, podgrzej końcówkę igły 20G na płycie grzejnej/kuchence i przebij dno probówki dwukrotnie. Zamknij korek probówki i pipetuj około 1,5 mL roztworu sacharozy lub wody przez jeden z otworów. Postaw probówkę stroną przebitą do góry, aż zostanie dodana do QMC.
- W przypadku karmideł z suplementem pyłkowym, użyj żyletki, aby odciąć dno probówki. Zamknij korek i wciśnij kulkę suplementu pyłkowego o masie 1-2 g do probówki, aż dotknie korka.
- Zapisz masę karmideł przed umieszczeniem ich w QMC. Nie przechowuj niewykorzystanej diety w temperaturze 4 °C dłużej niż przez 48 godzin.
| Pożądane stężenie | Pożądane stężenie rozpuszczalnika nośnika | Pożądana objętość/masa końcowa roztworu sacharozy | Objętość roztworu zapasu | Imidaklopryd w roztworze stokowym | Sugerowany przepis na roztwór zapasowy | |
| Roztwór sacharozy | 10 ppb (m/m) | 0,05% (v/v) | 81,45 ml/100 g* | 40.7 µL | 0,001 mg/40.7 µL | 0,02 mg/814 µL |
| Suplement z pyłkiem kwiatowym | 10 ppb (m/m) | 10 g | 4.07 µL | 0,0001 mg/4.07 µL | 0,02 mg/814 µL | |
| Roztwór sacharozy | 50 ppb (m/m) | 0,05% (v/v) | 78,5 ml/100 g* | 40.7 µL | 0,005 mg/40.7 µL | 0,1 mg/814 µL |
| Suplement z pyłkiem kwiatowym | 50 ppb (m/m) | 10 g | 4.07 µL | 0,0005 mg/4.07 µL | 0,1 mg/814 µL |
Tabela 1: Przykładowe receptury na przetworzony roztwór sacharozy, suplement pyłkowy i roztwór zapasowy. *Objętość oparta na gęstości 50% (w/w) roztworu sacharozy (1,228 g/mL). **Gęstość suplementu pyłkowego będzie się różnić w zależności od zastosowanego produktu, ale przy użyciu tej objętości rozpuszczalnika końcowe stężenie rozpuszczalnika w suplemencie pyłkowym zmieści się w pożądanym zakresie ≤ 5% objętościowo.
3. Monitorowanie - stopa produkcji jaj
- Kwantyfikuj znoszenie jaj 1–2 razy dziennie, rano i/lub wieczorem. Rozpocznij od wyjęcia QMC z inkubatora w celu sprawdzenia obecności jaj.
UWAGA: W przypadku pomyślnego przebiegu eksperymentu, produkcja jaj w większości kontrolnych QMC rozpocznie się w ciągu 3 dni od początkowego montażu klatek. Wyjmuj z inkubatora jednorazowo tylko tyle QMC, ile można sprawdzić i nakarmić w ciągu 10 min. Dłuższe przebywanie poza inkubatorem może zaburzyć produkcję jaj. - Obejrzyj tył przezroczystych ELP pod kątem obecności jaj. Jeśli jaja są obecne, zdejmij panel drzwi przed interesującą Cię płytką. Usuń taśmę z ELP i ostrożnie wsuń panel drzwi pomiędzy ELP a pszczoły wewnątrz QMC, dbając o to, aby nie zmiażdżyć pszczół, które mogą czyścić komórki w ELP.
- Przy zamontowanym panelu drzwi wyjmij ELP, a następnie policz i zapisz liczbę jaj w komórkach ELP. Usuń jaja, opukując krawędzią ELP (otwartą stroną komórek skierowaną w dół) o twardą powierzchnię (np. krawędź pojemnika na odpady). Po wypadnięciu jaj umieść pusty ELP z powrotem w QMC. Delikatnie zdejmij i ponownie zamontuj panel drzwi za ELP na zewnątrz QMC. Powtórz czynności w razie potrzeby z drugim ELP i po zakończeniu ponownie zaklej QMC taśmą.
UWAGA: Produkcja jaj zazwyczaj spada, a śmiertelność wzrasta w QMC po 2 tygodniach32,33, dlatego zaleca się zakończenie eksperymentów po 14 dniach.
4. Monitorowanie - spożycie pokarmu
- Co dwa dni wymieniaj całą pozostałą w karmnikach QMC pożywkę na świeżo przygotowaną dietę. Przygotuj nowe rurki do karmników (łącznie z wodą) i zważ je przed wyjęciem QMC z inkubatora w celu monitorowania. Zamień wszystkie stare rurki na nowe i zważ stare rurki przed utylizacją niezużytej diety. Porównaj końcową masę rurki do karmnika wraz z niezużytą dietą z masą tej samej rurki przed umieszczeniem jej w QMC, aby oszacować spożycie diety.
- W dniach pomiędzy zaplanowanymi wymianami karmników sprawdzaj spożycie diety raz dziennie (w tym samym czasie, gdy monitoruje się produkcję jaj w QMC), aby upewnić się, że karmniki nigdy nie są puste. Jeśli rurka do karmnika jest pusta lub prawie pusta, wyjmij ją, napełnij ponownie, zanotuj masę rurki przed i po napełnieniu, a różnicę dodaj do całkowitej sumy spożycia diety z 2 dni dla danego QMC.
5. Monitorowanie - żywotność zarodków
- W wybranym momencie eksperymentu QMC wyjmij ELP zawierające świeżo zniesione jaja z QMC zgodnie z krokiem 3, ale nie oddzielaj jaj od ELP.
- Przykryj ELP uniwersalną pokrywką do mikropłytek i umieść ją w eksyكاتهrze z nasyconym roztworem K2SO4 (150 g K2SO4 w 1 L wody, umieszczonym w płytkim naczyniu).
UWAGA: Po osiągnięciu przez mieszaninę temperatury w inkubatorze na dnie naczynia powinna być widoczna niewielka ilość soli. - Przechowuj eksykator w inkubatorze ustawionym na 34,5 °C, co zapewni wilgotność względną 95% wewnątrz eksykatora, podobnie do warunków stosowanych przez Collinsa49.
UWAGA: Prawie wszystkie jaja wyklują się w ciągu 72 ± 6 godzin od momentu ich zniesienia49, zatem wskaźniki wykluwalności można ocenić już 78 godzin po usunięciu ELP z QMC. Larwa w kształcie litery „C” na dnie komórki świadczy o pomyślnym wykluciu. Możliwe są pewne odchylenia w tym czasie, jeśli na przykład jaja są trutniami, a nie robotnicami50.
6. Pobieranie próbek robotnic
- Jeśli QMC zostały zasiedlone nadmiarową liczbą robotnic, pobierz próbki pszczół robotnic w wybranym punkcie czasowym podczas eksperymentu w celu oceny zmian w ich fizjologii wywołanych traktowaniem. Przeprowadzaj zbiory równocześnie z codziennym karmieniem i liczeniem jaj, aby zminimalizować czas przebywania QMC poza inkubatorem.
- Przed pobraniem próbek umieść panel drzwiowy pomiędzy ELP a wnętrzem QMC, a następnie usuń ELP. Ostrożnie unieś panel drzwiowy na około 0,5 cm od podstawy klatki i usuń pszczelą robotnicę z wnętrza QMC, używając pęsety precyzyjnej. Aby zapobiec ucieczce pszczół, w razie potrzeby zakryj fragmenty otworu o szerokości 0,5 cm palcem w rękawiczce lub kawałkiem waty.
- Zakonserwuj pobraną pszczołę do dalszych analiz i powtarzaj ten proces, aż zostanie zebrana pożądana liczba próbek. W przypadku analizy ekspresji genów zdecydowanie zaleca się szybkie zamrożenie pszczół w ciekłym azocie i natychmiastowe przechowywanie w temperaturze -80 °C51.
7. Śmiertelność robotnic
- Oceń śmiertelność robotnic w trakcie eksperymentu, licząc liczbę martwych pszczół na dnie komory karmienia oraz komory składania jaj. Przeprowadzaj tę ocenę równocześnie z codziennym ilościowym oznaczaniem składania jaj.
- Za pomocą pęsety ostrożnie usuwaj martwe pszczoły przez otwory karmnika, zasłaniając otwór palcem w rękawiczce lub kawałkiem waty w czasie, gdy pęseta nie jest w nim umieszczona.
- Usuń martwe pszczoły z komory składania jaj, ostrożnie unosząc panel drzwiowy na wysokość około 0,5 cm od podstawy klatki i wkładając pęsetę. Aby zapobiec ucieczce pszczół, w razie potrzeby zasłaniaj części otworu o szerokości 0,5 cm palcem w rękawiczce lub kawałkiem waty.
- Oceń śmiertelność robotnic po zakończeniu eksperymentu, usuwając i licząc wszystkie martwe pszczoły z QMC przy użyciu wcześniej opisanych metod przed eutanazją pozostałych pszczół.
UWAGA: W przypadku braku pszczół robotnic królowe nie będą składać jaj i zagłodują w ciągu 24 godzin. Dlatego, jeśli zaobserwuje się śmierć wszystkich robotnic w QMC, należy usunąć to QMC z eksperymentu. Podobnie, jeśli królowa padnie w trakcie eksperymentu, należy usunąć QMC, a dane powinny zostać odpowiednio ocenzurowane.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Produkcję jaj monitorowano w QMC zmontowanych i utrzymywanych zgodnie z powyższym opisem, przeprowadzając obserwacje produkcji jaj raz dziennie w 15 klatkach na grupę badawczą. Nowo zapłodnione matki, pochodzące głównie z linii Carniola, zostały zakupione i dostarczone w przesyłce nocnej od hodowcy matek, a robotnice pszczół miodnych pozyskano z 3 kolonii utrzymywanych zgodnie ze standardowymi metodami komercyjnymi w The Bee Research Facility na University of Illinois Urbana-Champaign. Zastosowano 4 grupy dietetyczne: 1)...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Na płodność samic samotnych owadów, a także królowych w koloniach owadów eusocjalnych mogą wpływać abiotyczne czynniki stresogenne, takie jak agrochemikalia 25,28,29,30,33. U pszczół miodnych wpływ agrochemikaliów na królowe może być pośredni, ponieważ może wystąpić w wyniku zmian w pielęgnacji i żywieniu pszczół robotnic. Nasze reprezentatywne wyniki, które s...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają do zadeklarowania konfliktu interesów.
Podziękowania
Dziękuję dr Amy Cash-Ahmed, Nathanaelowi J. Beachowi i Alison L. Sankey za pomoc w realizacji tej pracy. Wzmianki o nazwach handlowych lub produktach komercyjnych w tej publikacji służą wyłącznie dostarczeniu konkretnych informacji i nie oznaczają rekomendacji ani poparcia ze strony Departamentu Rolnictwa Stanów Zjednoczonych. USDA jest dostawcą równych szans i pracodawcą. Badania te były wspierane przez grant z Agencji Zaawansowanych Projektów Badawczych w Obszarze Obronności # HR0011-16-2-0019 dla Gene'a E. Robinsona i Huimina Zhao, projekt USDA 2030-21000-001-00-D oraz doświadczenie badawcze w zakresie plastyczności fenotypowej dla studentów szkół wyższych na Uniwersytecie Illinois w Urbana Champaign.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Fluon | BioQuip, Rancho Dominguez, CA | 2871A | |
| Królowe pszczół miodnych | Olivarez Honey Bees, Orland, CA | ||
| Imidaklopryd | Sigma-Aldritch, St. Louis, MO | 37894 | |
| MegaBee w proszku | MegaBee, San Dieago, CA | ||
| Probówki do mikrowirówek 2 ml | ThermoFisher Scientific, Waltham, MA | 02-682-004 | |
| Igły o grubości 20 | W. W. Grainger, Lake Forest, IL | 5FVK4 | |
| Siarczan potasu | Sigma-Aldritch, St. Louis, MO | P0772 | |
| Klatki monitorujące królową | University of Illinois Urbana-Champaign | Numer zgłoszenia patentowego: 20190350175 | |
| Sacharoza | Sigma-Aldritch, St. Louis, MO | S8501 | |
| Uniwersalne pokrywki do mikropłytek | ThermoFisher Scientific, Waltham, MA | 5500 |
Bibliografia
- Hedlund, J., Longo, S. B., York, R. Agriculture, pesticide use, and economic development: A global examination (1990-2014). Rural Sociology. 85 (2), 519-544 (2020).
- Calderone, N. W. Insect pollinated crops, insect pollinators and US agriculture: Trend analysis of aggregate data for the period 1992-2009. PLOS ONE. 7 (5), 37235(2012).
- Johnson, R. M., Ellis, M. D., Mullin, C. A., Frazier, M. Pesticides and honey bee toxicity - USA. Apidologie. 41 (3), 312-331 (2010).
- Walsh, E. M., Sweet, S., Knap, A., Ing, N., Rangel, J. Queen honey bee (Apis mellifera) pheromone and reproductive behavior are affected by pesticide exposure during development. Behavioral Ecology and Sociobiology. 74 (3), 33(2020).
- Zhu, W., Schmehl, D. R., Mullin, C. A., Frazier, J. L. Four Common Pesticides, Their Mixtures and a Formulation Solvent in the Hive Environment Have High Oral Toxicity to Honey Bee Larvae. PLoS ONE. 9 (1), 77547(2014).
- Fisher, A., Rangel, J. Exposure to pesticides during development negatively affects honey bee (Apis mellifera) drone sperm viability. PLoS ONE. 13 (12), 0208630(2018).
- EPA. How we assess risks to pollinators. US EPA. , Available from: https://www.epa.gov/pollinator-protection/how-we-assess-risk-polliators (2013).
- Snodgrass, R. E. Anatomy of the honey bee. , Cornell University Press. (1956).
- Allen, M. D. The honeybee queen and her attendants. Animal Behaviour. 8 (3), 201-208 (1960).
- Hölldobler, B., Wilson, E. O. The superorganism: The beauty, elegance, and strangeness of insect societies. , W. W. Norton & Company. (2009).
- Berenbaum, M. R., Liao, L. -H. Honey bees and environmental stress: Toxicologic pathology of a superorganism. Toxicologic Pathology. 47 (8), 1076-1081 (2019).
- Yu, S. J. The toxicology and biochemistry of insecticides. , CRC Press. (2014).
- Ciarlo, T. J., Mullin, C. A., Frazier, J. L., Schmehl, D. R. Learning impairment in honey bees caused by agricultural spray adjuvants. PloS One. 7 (7), 40848(2012).
- Fourrier, J., et al. Larval exposure to the juvenile hormone analog pyriproxyfen disrupts acceptance of and social behavior performance in adult honeybees. PLoS ONE. 10 (7), (2015).
- Morfin, N., Goodwin, P. H., Correa-Benitez, A., Guzman-Novoa, E. Sublethal exposure to clothianidin during the larval stage causes long-term impairment of hygienic and foraging behaviours of honey bees. Apidologie. 50 (5), 595-605 (2019).
- Colin, T., Meikle, W. G., Wu, X., Barron, A. B. Traces of a neonicotinoid induce precocious foraging and reduce foraging performance in honey bees. Environmental Science & Technology. 53 (14), 8252-8261 (2019).
- Liao, L. H., Wu, W. Y., Berenbaum, M. R. Behavioral responses of honey bees (Apis mellifera) to natural and synthetic xenobiotics in food. Scientific Reports. 7 (1), 1-8 (2017).
- Kessler, S. C., et al. Bees prefer foods containing neonicotinoid pesticides. Nature. 521 (7550), 74-76 (2015).
- Metcalf, R. L., Luckmann, W. H. Introduction to Insect Pest Management. , John Wiley & Sons. (1994).
- Duncan, J. Post-treatment effects of sublethal doses of dieldrin on the mosquito Aedes aegypti L. Annals of Applied Biology. 52 (1), 1-6 (1963).
- Haynes, K. F. Sublethal effects of neurotoxic insecticides on insect behavior. Annual Review of Entomology. 33 (1), 149-168 (1988).
- James, D. G., Price, T. S. Fecundity in twospotted spider mite (Acari: Tetranychidae) is increased by direct and systemic exposure to imidacloprid. Journal of Economic Entomology. 95 (4), 729-732 (2002).
- Hodjat, S. H. Effects of sublethal doses of insecticides and of diet and crowding on Dysdercus fasciatus Sign. (Hem., Pyrrhocoridae). Bulletin of Entomological Research. 60 (3), 367-378 (1971).
- Feng, W. B., Bong, L. J., Dai, S. M., Neoh, K. B. Effect of imidacloprid exposure on life history traits in the agricultural generalist predator Paederus beetle: Lack of fitness cost but strong hormetic effect and skewed sex ratio. Ecotoxicology and Environmental Safety. 174, 390-400 (2019).
- Milchreit, K., Ruhnke, H., Wegener, J., Bienefeld, K. Effects of an insect growth regulator and a solvent on honeybee (Apis mellifera L.) brood development and queen viability. Ecotoxicology. 25 (3), 530-537 (2016).
- Haarmann, T., Spivak, M., Weaver, D., Weaver, B., Glenn, T. Effects of fluvalinate and coumaphos on queen honey bees (Hymenoptera: Apidae) in two commercial queen rearing operations. Journal of Economic Entomology. 95 (1), 28-35 (2002).
- Pettis, J. S., Collins, A. M., Wilbanks, R., Feldlaufer, M. F. Effects of coumaphos on queen rearing in the honey bee, Apis mellifera. Apidologie. 35 (6), 605-610 (2004).
- Thompson, H. M., Wilkins, S., Battersby, A. H., Waite, R. J., Wilkinson, D. The effects of four insect growth-regulating (IGR) insecticides on honeybee (Apis mellifera L.) colony development, queen rearing and drone sperm production. Ecotoxicology. 14 (7), 757-769 (2005).
- Wu-Smart, J., Spivak, M. Sub-lethal effects of dietary neonicotinoid insecticide exposure on honey bee queen fecundity and colony development. Scientific Reports. 6 (1), 1-11 (2016).
- Chen, Y. W., Wu, P. S., Yang, E. C., Nai, Y. S., Huang, Z. Y. The impact of pyriproxyfen on the development of honey bee (Apis mellifera L.) colony in field. Journal of Asia-Pacific Entomology. 19 (3), 589-594 (2016).
- Fine, J. D., Mullin, C. A., Frazier, M. T., Reynolds, R. D. Field residues and effects of the insect growth regulator novaluron and its major co-formulant n-methyl-2-pyrrolidone on honey bee reproduction and development. Journal of Economic Entomology. 110 (5), 1993-2001 (2017).
- Fine, J. D., et al. Quantifying the effects of pollen nutrition on honey bee queen egg laying with a new laboratory system. PLoS ONE. 13 (9), 0203444(2018).
- Fine, J. D. Evaluation and comparison of the effects of three insect growth regulators on honey bee queen oviposition and egg eclosion. Ecotoxicology and Environmental Safety. 205, 111142(2020).
- The Colony and Its Organization. MAAREC - Mid Atlantic Apiculture Research & Extension Consortium. , Available from: https://agdev.anr.udel.edu/maarec/honey-bee-biology/the-colony-and-its-organization/ (2020).
- Winston, M. L. The biology of the honey bee. , Harvard University Press. (1991).
- Mullins, J. W. Pest control with enhanced environmental safety. Imidacloprid. 524, 183-198 (1993).
- Sur, R., Stork, A. Uptake, translocation and metabolism of imidacloprid in plants. Bulletin of Insectology. 56 (1), 35-40 (2003).
- Dively, G. P., Kamel, A. Insecticide residues in pollen and nectar of a cucurbit crop and their potential exposure to pollinators. Journal of Agricultural and Food Chemistry. 60 (18), 4449-4456 (2012).
- Goulson, D. Review: An overview of the environmental risks posed by neonicotinoid insecticides. Journal of Applied Ecology. , 977-987 (2014).
- Krischik, V., Rogers, M., Gupta, G., Varshney, A. Soil-applied imidacloprid translocates to ornamental flowers and reduces survival of adult Coleomegilla maculata, Harmonia axyridis, and Hippodamia convergens lady beetles, and larval Danaus plexippus and Vanessa cardui butterflies. PLoS ONE. 10 (3), (2015).
- Prisco, G. D., et al. Neonicotinoid clothianidin adversely affects insect immunity and promotes replication of a viral pathogen in honey bees. Proceedings of the National Academy of Sciences. 110 (46), 18466-18471 (2013).
- Dively, G. P., Embrey, M. S., Kamel, A., Hawthorne, D. J., Pettis, J. S. Assessment of chronic sublethal effects of imidacloprid on honey bee colony health. PLoS ONE. 10 (3), 01118748(2015).
- Sandrock, C., Tanadini, M., Tanadini, L. G., Fauser-Misslin, A., Potts, S. G., Neumann, P. Impact of chronic neonicotinoid exposure on honeybee colony performance and queen supersedure. PLoS ONE. 9 (8), 103592(2014).
- Brodschneider, R., Riessberger-Gallé, U., Crailsheim, K. Flight performance of artificially reared honeybees (Apis mellifera). Apidologie. 40 (4), 441-449 (2009).
- Harrison, J. M. Caste-specific changes in honeybee flight capacity. Physiological Zoology. 59 (2), 175-187 (1986).
- Mackensen, O. Effect of carbon dioxide on initial oviposition of artificially inseminated and virgin queen bees. Journal of Economic Entomology. 40 (3), 344-349 (1947).
- OECD. OECD Test No. 245: Honey bee (Apis Mellifera L.), chronic oral toxicity test (10-Day Feeding), OECD guidelines for the testing of chemicals, section 2. , OECD Publishing. Paris. (2017).
- ECOTOX Home. , Available from: https://cfpub.epa.gov/ecotox/ (2020).
- Collins, A. M. Variation in time of egg hatch by the honey bee, Apis mellifera (Hymenoptera: Apidae). Annals of the Entomological Society of America. 97 (1), 140-146 (2004).
- Santomauro, G., Engels, W. Sexing of newly hatched live larvae of the honey bee, Apis mellifera, allows the recognition of diploid drones. Apidologie. 33 (3), 283-288 (2002).
- Tang, W., Hu, Z., Muallem, H., Gulley, M. L. Quality assurance of RNA expression profiling in clinical laboratories. The Journal of Molecular Diagnostics JMD. 14 (1), 1-11 (2012).
- Henry, M., et al. Reconciling laboratory and field assessments of neonicotinoid toxicity to honeybees. Proceedings of the Royal Society B: Biological Sciences. 282 (1819), (2015).
- Singaravelan, N., Nee'man, G., Inbar, M., Izhaki, I. Feeding responses of free-flying honeybees to secondary compounds mimicking floral nectars. Journal of Chemical Ecology. 31 (12), 2791-2804 (2005).
- Brown, L. A., Ihara, M., Buckingham, S. D., Matsuda, K., Sattelle, D. B. Neonicotinoid insecticides display partial and super agonist actions on native insect nicotinic acetylcholine receptors. Journal of Neurochemistry. 99 (2), 608-615 (2006).
- Dupuis, J. P., Gauthier, M., Raymond-Delpech, V. Expression patterns of nicotinic subunits α2, α7, α8, and β1 affect the kinetics and pharmacology of ACh-induced currents in adult bee olfactory neuropiles. Journal of Neurophysiology. 106 (4), 1604-1613 (2011).
- Crailsheim, K., et al. Pollen consumption and utilization in worker honeybees (Apis mellifera carnica): Dependence on individual age and function. Journal of Insect Physiology. 38 (6), 409-419 (1992).
- The Merck Index Online - chemicals, drugs and biologicals. , Available from: https://www.rsc.org/merck-index (2020).
- Trostanetsky, A., Kostyukovsky, M. Note: Transovarial activity of the chitin synthesis inhibitor novaluron on egg hatch and subsequent development of larvae of Tribolium castaneum. Phytoparasitica. 36 (1), 38-41 (2008).
- Medina, P., Smagghe, G., Budia, F., del Estal, P., Tirry, L., Viñuela, E. Significance of penetration, excretion, and transovarial uptake to toxicity of three insect growth regulators in predatory lacewing adults. Archives of Insect Biochemistry and Physiology. 51 (2), 91-101 (2002).
- Kim, S. H. S., Wise, J. C., Gökçe, A., Whalon, M. E. Novaluron causes reduced egg hatch after treating adult codling moths, Cydia pomenella: Support for transovarial transfer. Journal of Insect Science. 11, (2011).
- Joseph, S. V. Transovarial effects of insect growth regulators on Stephanitis pyrioides (Hemiptera: Tingidae). Pest Management Science. 75 (8), 2182-2187 (2019).
- Tasei, J. N. Effects of insect growth regulators on honey bees and non-Apis bees. A review. Apidologie. 32 (6), 527-545 (2001).
- Haydak, M. H. Honey Bee Nutrition. Annual Review of Entomology. 15 (1), 143-156 (1970).
- Böhme, F., Bischoff, G., Zebitz, C. P. W., Rosenkranz, P., Wallner, K. From field to food-will pesticide-contaminated pollen diet lead to a contamination of royal jelly. Apidologie. 49 (1), 112-119 (2018).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
