Pęcherzyki bakteryjne odgrywają ważną rolę w patogenezie i mają obiecujące zastosowania biotechnologiczne. Niejednorodność pęcherzyków komplikuje analizę i użytkowanie; Dlatego konieczna jest prosta, powtarzalna metoda oddzielania pęcherzyków o różnych rozmiarach. Tutaj pokazujemy zastosowanie chromatografii wykluczania wielkości do oddzielania heterogenicznych pęcherzyków wytwarzanych przez Aggregatibacter actinomycetemcomitans.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Chromatografia wykluczania wielkości do analizy niejednorodności pęcherzyków błony zewnętrznej bakterii
W tym artykule
Podsumowanie
Streszczenie
Ściana komórkowa bakterii Gram-ujemnych składa się z wewnętrznej (cytoplazmatycznej) i zewnętrznej błony (OM), oddzielonych cienką warstwą peptydoglikanu. Podczas wzrostu błona zewnętrzna może błyszczeć, tworząc kuliste pęcherzyki błony zewnętrznej (OMV). Te OMV są zaangażowane w wiele funkcji komórkowych, w tym dostarczanie ładunku do komórek gospodarza i komunikację z komórkami bakteryjnymi. Ostatnio zaczęto badać potencjał terapeutyczny OMV, w tym ich zastosowanie jako szczepionek i nośników leków. Chociaż OMV pochodzą z OM, od dawna zdawano sobie sprawę, że ładunek lipidów i białek OMV różni się, często znacząco, od ładunku OM. Niedawno odkryto dowody na to, że bakterie mogą uwalniać wiele typów OMV i istnieją dowody na to, że rozmiar może wpływać na mechanizm ich wchłaniania przez komórki gospodarza. Badania w tej dziedzinie są jednak ograniczone ze względu na trudności w skutecznym oddzieleniu OMV o niejednorodnych rozmiarach. W tym celu tradycyjnie stosuje się wirowanie w gradionym spadku gęstości (DGC); Jednak ta technika jest czasochłonna i trudna do skalowania. Z drugiej strony, chromatografia wykluczająca ze względu na rozmiar (SEC) jest mniej kłopotliwa i nadaje się do niezbędnego przyszłego zwiększenia skali w celu terapeutycznego zastosowania OMV. W tym miejscu opisujemy podejście SEC, które umożliwia powtarzalne oddzielanie pęcherzyków o niejednorodnych rozmiarach, wykorzystując jako przypadek testowy OMV wytwarzane przez Aggregatibacter actinomycetemcomitans, których średnica waha się od mniej niż 150 nm do ponad 350 nm. Pokazujemy separację "dużych" (350 nm) OMV i "małych" (<150 nm) OMV, weryfikowaną za pomocą dynamicznego rozpraszania światła (DLS). Zalecamy techniki oparte na SEC zamiast technik opartych na DGC do oddzielania pęcherzyków o niejednorodnych rozmiarach ze względu na łatwość użycia, odtwarzalność (w tym między użytkownikami) i możliwość zwiększenia skali.
Wprowadzenie
Bakterie Gram-ujemne uwalniają pęcherzyki pochodzące z ich zewnętrznej błony, tak zwane pęcherzyki błony zewnętrznej (OMB), podczas całego wzrostu. Te OMV odgrywają ważną rolę w komunikacji międzykomórkowej, zarówno między bakteriami a gospodarzem, jak i między komórkami bakteryjnymi, przenosząc szereg ważnych biomolekuł, w tym DNA/RNA, białka, lipidy i peptydoglikany1,2. W szczególności rola OMV w patogenezie bakteryjnej została szeroko zbadana ze względu na ich wzbogacenie w niektóre czynniki wirulencji i toksyny3,4,5,6,7,8,9,10,11.
OMV mają rozmiary od 20 do 450 nm, w zależności od bakterii rodzicielskiej i etapu wzrostu, przy czym kilka typów bakterii uwalnia OMV o niejednorodnych rozmiarach8,12,13,14, które różnią się również składem białka i mechanizmem wnikania do komórek gospodarza12. H. pylori uwalniał OMV o średnicy od 20 do 450 nm, przy czym mniejsze OMV zawierały bardziej jednorodny skład białkowy niż większe OMV. Co ważne, zaobserwowano, że obie populacje OMV są internalizowane przez komórki gospodarza za pomocą różnych mechanizmów12. Ponadto wykazaliśmy, że Aggregatibacter actinomycetemcomitans uwalnia populację małych (<150 nm) OMV wraz z populacją dużych (>350 nm) OMV, przy czym OMV zawierają znaczną ilość wydzielanej toksyny białkowej, leukotoksyny (LtxA)15. Chociaż rola heterogeniczności OMV w procesach komórkowych jest wyraźnie ważna, trudności techniczne w oddzielaniu i analizowaniu różnych populacji pęcherzyków ograniczyły te badania.
Oprócz ich znaczenia w patogenezie bakterii, OMV zostały zaproponowane do wykorzystania w wielu zastosowaniach biotechnologicznych, w tym jako szczepionki i pojazdy dostarczające leki16,17,18,19,20. Do ich translacyjnego zastosowania w takich podejściach wymagane jest czyste i monodyspersyjne przygotowanie pęcherzyków. W związku z tym konieczne są skuteczne i wydajne metody separacji.
Najczęściej, wirowanie gradientu gęstości (DGC) jest używane do oddzielania niejednorodnych populacji pęcherzyków od resztek komórkowych, w tym wici i wydzielanych białek21; metoda została również opisana jako podejście do separacji subpopulacji OMV o niejednorodnych rozmiarach12,13,14. Jednak DGC jest czasochłonny, nieefektywny i bardzo zmienny między użytkownikami22 i dlatego nie jest idealny do skalowania. Natomiast chromatografia wykluczania wielkości (SEC) reprezentuje skalowalne, wydajne i spójne podejście do oczyszczania OMVs21,23,24. Odkryliśmy, że długa (50 cm), grawitacyjna kolumna SEC, wypełniona żelowym medium filtracyjnym, jest wystarczająca do skutecznego oczyszczania i oddzielania subpopulacji OMV. W szczególności zastosowaliśmy to podejście do rozdzielenia OMV A. actinomycetemcomitans na "duże" i "małe" subpopulacje, a także do usunięcia zanieczyszczenia białkami i DNA. Oczyszczanie zakończono w czasie krótszym niż 4 godziny, a także dokonano całkowitego oddzielenia subpopulacji OMV i usunięcia szczątków.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Przygotowanie buforów
- Aby przygotować bufor do płukania w teście ELISA, należy dodać 3,94 g Tris-base, 8,77 g NaCl oraz 1 g albuminy surowicy bydlęcej (BSA) do 1 L wody dejonizowanej (DI). Dodać 500 µL polisorbatasu-20. Dostosować pH do wartości 7,2 za pomocą HCl lub NaOH.
- Aby przygotować bufor blokujący, należy dodać 3,94 g Tris-base, 8,77 g NaCl oraz 10 g BSA. Dodać 500 µL polisorbatasu-20 do 1 L wody DI. Dostosować pH do wartości 7,2 za pomocą HCl lub NaOH.
- Aby przygotować bufor do elucji (PBS), należy dodać 8,01 g NaCl, 2,7 g KCl, 1,42 g Na2HPO4 oraz 0,24 g KH2PO4 do 1 L wody DI. Dostosować pH do wartości 7,4 za pomocą HCl lub NaOH.
UWAGA: Można przygotować 10-krotnym stężeniem tego buforu i rozcieńczać go wodą DI w zależności od potrzeb.
2. Przygotowanie próbki OMV
- Hodować komórki A. actinomycetemcomitans do późnej fazy wzrostu wykładniczego (gęstość optyczna przy 600 nm wynosząca 0,7). Osadzić komórki poprzez dwukrotne wirowanie przy 10 000 x g w temperaturze 4 °C przez 10 min. Przesączyć nadsącz przez filtr 0,45 µm.
- Skoncentrować nadsącz wolny od bakterii, korzystając z filtrów z progiem odcięcia masy cząsteczkowej 50 kDa. Poddać skoncentrowany roztwór ultrawirowaniu przy 105 000 x g w temperaturze 4 °C przez 30 min.
- Resuspendować osad w PBS i ponownie poddać ultrawirowaniu (105 000 x g w 4 °C przez 30 min). Resuspendować osad w 2 mL PBS.
3. Pakowanie kolumny S-1000
- Wymieszać zapasową butelkę z medium do filtracji żelowej za pomocą szklanej rurki do mieszania i przelać do szklanej butelki objętość niezbędną do wypełnienia kolumny, zwiększoną o około 50% nadmiaru (około 135 mL). Pozostawić kuleczki do czasu ich osiadania, a następnie odlać nadmiar cieczy. Ponownie zawiesić kuleczki w buforze elucyjnym w taki sposób, aby końcowy roztwór składał się z około 70% (objętościowo) żelu i 30% buforu. Odgazować roztwór pod próżnią.
- Zamocować szklaną kolumnę pionowo za pomocą statywu z obręczą i wypełnić buforem elucyjnym, aby zwilżyć ścianki kolumny. Odlać bufor, aż w kolumnie pozostanie tylko około 1 cm cieczy.
- Ostrożnie pipetować kuleczki do kolumny, wypełniając ją do pełna, unikając powstawania pęcherzyków powietrza. Przez cały ten proces stale odlać nadmiar buforu. Należy dopilnować, aby kuleczki nie osiadły całkowicie przed dodaniem kolejnych porcji na górę kolumny. Kolumna powinna być upakowana do wysokości około 2 cm poniżej dna zbiornika kolumny.
4. Nakładanie próbki i zbieranie frakcji
- Odgazuj bufor elucyjny w próżni. Przemyj kolumnę dwiema objętościami kolumny (180 mL) buforu elucyjnego.
- Pozostaw pozostały bufor do całkowitego wniknięcia do kolumny. Gdy bufor osiągnie górną krawędź warstwy żelu, ostrożnie nanieś pipetą 2-mL próbkę zawierającą OMVs (przy stężeniu lipidów około 100 - 200 nmol/L) na powierzchnię kulek, uważając, aby nie poruszyć kulek na górze kolumny. Pozostaw próbkę do całkowitego wniknięcia w żel, aż nad warstwą żelu nie pozostanie żadna ciecz.
- Ostrożnie i powoli dodaj bufor elucyjny na górę kolumny żelowej. Nie zaburzaj górnej warstwy żelu, ponieważ spowoduje to rozcieńczenie próbki.
- Umieść jedną probówkę 50-mL pod kolumną i otwórz kolumnę. Zbierz pierwsze 20 mL eluentu. W razie potrzeby ostrożnie dodawaj dodatkowy bufor elucyjny na górę kolumny, aby zapobiec jej wyschnięciu.
- Umieść serię probówek 1,5 mL pod kolumną. Uruchom przepływ w kolumnie i zbierz serię 1-mL próbek do każdej probówki. W trakcie zbierania próbek kontynuuj dodawanie buforu elucyjnego na górę kolumny, jeśli jest to konieczne. Powtarzaj czynność, aż zostanie zebranych 96 frakcji. Zatrzymaj przepływ w kolumnie.
UWAGA: Próbki należy przechowywać w temperaturze -20 °C do długotrwałego przechowywania lub w 4 °C do krótkotrwałego przechowywania do czasu dalszej analizy. - Aby wyczyścić kolumnę, przepuść przez nią jedną objętość kolumny (90 mL) 0,1 M NaOH. Następnie przepuść przez kolumnę dwie objętości kolumny (180 mL) buforu elucyjnego.
5. Analiza próbek
- Aby zmierzyć stężenie lipidów w każdej frakcji, nanieś pipetą 50 µL każdej frakcji do pojedynczej studzienki płytki 96-dołkowej. Do każdej studzienki dodaj 2,5 µL barwnika lipofilowego. Inkubuj przez 15 s. Zmierz intensywność fluorescencji na czytniku płytek przy długości fali wzbudzenia 515 nm i długości fali emisji 640 nm. Aby obliczyć ułamek wszystkich lipidów w każdej próbce, zsumuj wszystkie intensywności emisji i podziel każdą pojedynczą wartość intensywności przez sumę całkowitą.
- Aby zmierzyć stężenie konkretnego białka, nanieś pipetą 100 µL każdej frakcji do pojedynczej studzienki immunopłytki ELISA. Inkubuj w temperaturze 25 °C przez 3 h.
- Odlej próbki. Do każdej studzienki dodaj 200 µL buforu płuczącego do ELISA, a następnie odlej. Powtórz czynność cztery razy, aby w sumie przeprowadzić pięć płukań.
- Do każdej studzienki dodaj 200 µL buforu blokującego i inkubuj przez 1 h w temperaturze 25 °C. Odlej.
- Inkubuj płytki z 100 µL buforu blokującego z dodatkiem przeciwciała pierwszorzędowego (1:10 000 dla przeciwciał oczyszczonych; 1:10 dla przeciwciał nieoczyszczonych) przez noc w temperaturze 4 °C. Odlej.
- Do każdej studzienki dodaj 200 µL buforu płuczącego do ELISA, a następnie odlej. Powtórz czynność cztery razy, aby w sumie przeprowadzić pięć płukań.
- Do każdej studzienki dodaj 100 µL buforu płuczącego do ELISA z dodatkiem przeciwciała wtórnego (1:30 000). Inkubuj przez 1 h w temperaturze 25 °C.
- Do każdej studzienki dodaj 200 µL buforu płuczącego do ELISA, a następnie odlej. Powtórz czynność cztery razy, aby w sumie przeprowadzić pięć płukań.
- Dodaj 100 µL jednoetapowego roztworu 3,3',5,5'-tetrametylobenzyidyny (TMB) i inkubuj przez 15-30 min lub do momentu pojawienia się niebieskiego zabarwienia. Zatrzymaj reakcję TMB, dodając 50 µL roztworu stopującego.
- Za pomocą czytnika płytek zmierz absorbancję każdej studzienki przy długości fali 450 nm.
- Aby zmierzyć całkowite stężenie białka, zmierz absorbancję każdej frakcji przy długości fali 280 nm (A280) przy użyciu spektrofotometru UV-vis.
Schemat procedury przedstawiono na Rysunku 1.
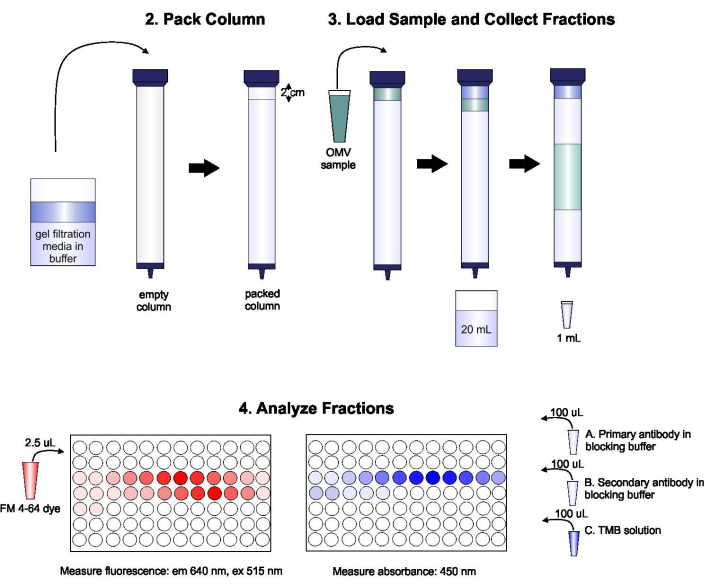
Rysunek 1: Schemat procedury SEC. Kolumnę pakuje się odgazowanym medium do filtracji żelowej, dbając o uniknięcie pęcherzyków powietrza i nieciągłości, a następnie przemywa dwiema objętościami kolumny buforu elucyjnego. Następnie próbkę ostrożnie nanosi się pipetą na wierzch żelu, tak aby nie naruszyć jego struktury. Kolumnę otwiera się i prowadzi proces do czasu całkowitego wprowadzenia próbki w głąb żelu. W tym momencie na górę kolumny nanosi się bufor i zbiera pierwsze 20 mL eluatu. Następnie zbiera się serię frakcji o objętości 1 mL. Frakcje te są następnie przenoszone do płytki 96-dołkowej lub immunopłytki 96-dołkowej w celu analizy zawartości lipidów i białek. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Rycina 2 przedstawia reprezentatywne wyniki uzyskane za pomocą tej metody. OMVs produkowane przez szczep JP2 A. actinomycetemcomitans zostały najpierw oczyszczone z supernatantu hodowli przy użyciu ultrawirowania15. Wcześniej ustaliliśmy, że szczep ten produkuje dwie populacje OMVs: jedną o średnicy około 300 nm i drugą o średnicy około 100 nm15. Aby rozdzielić te populacje OMV, oczyszczono próbkę zgodnie z opisanym powyżej protokołem ...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
W tym miejscu przedstawiliśmy protokół prostego, szybkiego i powtarzalnego oddzielania subpopulacji bakteryjnych OMV. Chociaż technika ta jest stosunkowo prosta, istnieją pewne kroki, które należy wykonać bardzo ostrożnie, aby zapewnić skuteczną separację w kolumnie. Po pierwsze, ważne jest, aby żel był ładowany do kolumny ostrożnie i powoli, aby uniknąć pęcherzyków powietrza. Zaobserwowaliśmy, że pozostawienie żelu w temperaturze pokojowej na kilka godzin przed załadowaniem kolumny pozwala żelowi zrównoważyć się i minim...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają do zgłaszania konfliktu interesów.
Podziękowania
Ta praca została sfinansowana przez National Science Foundation (1554417) i National Institutes of Health (DE027769).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 1-stopniowe filtry Ultra TMB-ELISA | Thermo Scientific | 34028 | |
| Amicon 50 kDa | Millipore Sigma | UFC905024 | |
| Albumina surowicy bydlęcej (BSA) | Fisher Scientific | BP9704-100 | |
| Płytki immunologiczne ELISA | Thermo Scientific | 442404 | |
| FM 4-64 | Thermo Scientific | T13320 | 1,5 x 50 cm |
| Szklany czytnik płytek Econo-Column | BioRad | 7371552 | |
| Infinite 200 Pro Tecan | |||
| Chlorek potasu (KCl) | Amresco (VWR) | 0395-500G | |
| Fosforan potasu jednozasadowy bezwodny (KH2PO4) | Amresco (VWR) | 0781-500G | |
| Sephacryl S-1000 Superfine | GE Healthcare | 17-0476-01 | |
| Chlorek sodu (NaCl) | Fisher Chemical | S271-3 | |
| Fosforan sodu dwuzasadowy bezwodny (Na2HPO4) | Amresco (VWR) | 0404-500G | |
| Tris Base | VWR | 0497-1KG | |
| Tween(R) 20 | Acros Organics | 23336-2500 |
Bibliografia
- Kuehn, M. J., Kesty, N. C. Bacterial outer membrane vesicles and the host-pathogen interaction. Genes and Development. 19, 2645-2655 (2005).
- Kulp, A., Kuehn, M. J. Biological functions and biogenesis of secreted bacterial outer membrane vesicles. Annual Reviews Microbiology. 64, 163-184 (2010).
- Kato, S., Kowashi, Y., Demuth, D. R. Outer membrane-like vesicles secreted by Actinobacillus actinomycetemcomitans are enriched in leukotoxin. Microbial Pathogenesis. 32 (1), 1-13 (2002).
- Nice, J. B., et al. Aggregatibacter actinomycetemcomitans leukotoxin is delivered to host cells in an LFA-1-independent manner when associated with outer membrane vesicles. Toxins. 10 (10), 414(2018).
- Haurat, M. F., et al. Selective sorting of cargo proteins into bacterial membrane vesicles. Journal of Biological Chemistry. 286 (2), 1269-1276 (2011).
- Horstman, A. L., Kuehn, M. J. Enterotoxigenic Escherichia coli secretes active heat-labile enterotoxin via outer membrane vesicles. The Journal of Biological Chemistry. 275 (17), 12489-12496 (2000).
- Wai, S. N., et al. Vesicle-mediated export and assembly of pore-forming oligomers of the Enterobacterial ClyA cytotoxin. Cell. 115, 25-35 (2003).
- Balsalobre, C., et al. Release of the Type I secreted α-haemolysin via outer membrane vesicles from Escherichia coli. Molecular Microbiology. 59 (1), 99-112 (2006).
- Donato, G. M., et al. Delivery of Bordetella pertussis adenylate cyclase toxin to target cells via outer membrane vesicles. FEBS Letters. 586, 459-465 (2012).
- Kim, Y. R., et al. Outer membrane vesicles of Vibrio vulnificus deliver cytolysin-hemolysin VvhA into epithelial cells to induce cytotoxicity. Biochemical and Biophysical Research Communications. 399, 607-612 (2010).
- Maldonado, R., Wei, R., Kachlany, S. C., Kazi, M., Balashova, N. V. Cytotoxic effects of Kingella kingae outer membrane vesicles on human cells. Microbial Pathogenesis. 51 (1-2), 22-30 (2011).
- Turner, L., et al. Helicobacter pylori outer membrane vesicle size determines their mechanisms of host cell entry and protein content. Frontiers in Immunology. 9, 1466(2018).
- Zavan, L., Bitto, N. J., Johnston, E. L., Greening, D. W., Kaparakis-Liaskos, M. Helicobacter pylori growth stage determines the size, protein composition, and preferential cargo packaging of outer membrane vesicles. Proteomics. 19 (1-2), 1800209(2019).
- Rompikuntal, P. K., et al. Perinuclear localization of internalized outer membrane vesicles carrying active cytolethal distending toxin from Aggregatibacter actinomycetemcomitans. Infections and Immunity. 80 (1), 31-42 (2012).
- Nice, J. B., et al. Aggregatibacter actinomycetemcomitans leukotoxin is delivered to host cells in an LFA-1-independent manner when associated with outer membrane vesicles. Toxins. 10 (10), 414(2018).
- Stevenson, T. C., et al. Immunization with outer membrane vesicles displaying conserved surface polysaccharide antigen elicits broadly antimicrobial antibodies. Proceedings of the National Academy of Sciences. 115 (14), 3106-3115 (2018).
- Gujrati, V., et al. Bioengineered bacterial outer membrane vesicles as cell-specific drug-delivery vehicles for cancer therapy. ACS Nano. 8 (2), 1525-1537 (2014).
- Huang, W., et al. Development of novel nanoantibiotics using an outer membrane vesicle-based drug efflux mechanism. Journal of Controlled Release. 317, 1-22 (2020).
- Chen, D. J., et al. Delivery of foreign antigens by engineered outer membrane vesicle vaccines. Proceedings of the National Academy of Sciences. 107 (7), 3099-3104 (2010).
- Chen, L., et al. Outer membrane vesicles displaying engineered glycotopes elicit protective antibodies. Proceedings of the National Academy of Sciences. 113 (26), 3609-3618 (2016).
- Singorenko, P. D., et al. Isolation of membrane vesicles from prokaryotes: A technical and biological comparison reveals heterogeneity. Journal of Extracellular Vesicles. 6 (1), 1324731(2017).
- Zeringer, E., Barta, T., Li, M., Vlassov, A. V. Strategies for isolation of exosomes. Cold Spring Harbor Protocols. 2015 (4), 319-323 (2015).
- Benedikter, B. J., et al. Ultrafiltration combined with size exclusion chromatography efficiently isolates extracellular vesicles from cell culture media for compositional and functional studies. Science Reports. 7 (1), 15297(2017).
- Mol, E. A., Goumans, M. J., Doevendans, P. A., Sluijter, J. P. G., Vader, P. Higher functionality of extracellular vesicles isolated using size-exclusion chromatography compared to ultracentrifugation. Nanomedicine. 13 (6), 2061-2065 (2017).
- Lally, E. T., Golub, E. E., Kieba, I. R. Identification and immunological characterization of the domain of Actinobacillus actinomycetemcomitans leukotoxin that determines its specificity for human target cells. Journal of Biological Chemistry. 269 (49), 31289-31295 (1994).
- Chang, E. H., Giaquinto, P., Huang, J., Balashova, N. V., Brown, A. C. Epigallocatechin gallate inhibits leukotoxin release by Aggregatibacter actinomycetemcomitans by promoting association with the bacterial membrane. Molecular Oral Microbiology. 35 (1), 29-39 (2020).
- Klimentová, J., Stulík, J. Methods of isolation and purification of outer membrane vesicles from gram-negative bacteria. Microbiological Research. 170, 1-9 (2015).
- Dauros Singorenko, P., et al. Isolation of membrane vesicles from prokaryotes: a technical and biological comparison reveals heterogeneity. Journal of Extracellular Vesicles. 6 (1), 1324731(2017).
- Monguió-Tortajada, M., Gálvez-Montón, C., Bayes-Genis, A., Roura, S., Borràs, F. E. Extracellular vesicle isolation methods: rising impact of size-exclusion chromatography. Cellular and Molecular Life Sciences. 76 (12), 2369-2382 (2019).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
