Wykorzystanie sztucznej inteligencji (Ai) do analizy obrazów jawi się jako potężne, mniej stronnicze i szybkie podejście w porównaniu z powszechnie stosowanymi metodami. Tutaj wyszkoliliśmy Ai, aby rozpoznawała organellę komórkową, pierwotne rzęski i analizowała właściwości, takie jak długość i intensywność barwienia, w rygorystyczny i powtarzalny sposób.
Artykuł metodologiczny
Podejścia sztucznej inteligencji do oceny rzęsek pierwotnych
W tym artykule
Podsumowanie
Streszczenie
Rzęski to komórkowe wyrostki oparte na mikrotubulach, które funkcjonują jako centra sygnalizacyjne dla różnych ścieżek sygnałowych w wielu typach komórek ssaków. Długość rzęsek jest wysoce konserwatywna, ściśle regulowana i różni się w zależności od różnych typów komórek i tkanek oraz jest zaangażowana w bezpośredni wpływ na ich zdolność sygnalizacyjną. Na przykład wykazano, że rzęski zmieniają swoją długość w odpowiedzi na aktywację receptorów rzęskowych sprzężonych z białkiem G. Jednak dokładny i powtarzalny pomiar długości licznych rzęsek jest zabiegiem czasochłonnym i pracochłonnym. Obecne podejścia są również podatne na błędy i stronniczość. Programy sztucznej inteligencji (AI) można wykorzystać do pokonania wielu z tych wyzwań dzięki możliwościom, które umożliwiają asymilację, manipulację i optymalizację obszernych zestawów danych. Tutaj pokazujemy, że moduł sztucznej inteligencji można wytrenować do rozpoznawania rzęsek na obrazach zarówno z próbek in vivo, jak i in vitro. Po wykorzystaniu wyszkolonej sztucznej inteligencji do identyfikacji rzęsek, jesteśmy w stanie zaprojektować i szybko wykorzystać aplikacje, które analizują setki rzęsek w jednej próbce pod kątem długości, intensywności fluorescencji i kolokalizacji. To bezstronne podejście zwiększyło naszą pewność siebie i rygor podczas porównywania próbek z różnych pierwotnych preparatów neuronalnych in vitro, a także w różnych regionach mózgu u zwierzęcia i między zwierzętami. Co więcej, technika ta może być wykorzystana do wiarygodnej analizy dynamiki rzęsek z dowolnego typu komórek i tkanek w sposób wysokoprzepustowy w wielu próbkach i grupach poddanych zabiegowi. Ostatecznie podejścia oparte na sztucznej inteligencji prawdopodobnie staną się standardem, ponieważ większość dziedzin zmierza w kierunku mniej stronniczych i bardziej powtarzalnych podejść do pozyskiwania i analizy obrazów.
Wprowadzenie
Pierwotne rzęski to organelle czuciowe wystające z większości typów komórek ssaków1,2,3,4. Są to na ogół pojedyncze przydatki, które mają kluczowe znaczenie dla koordynacji różnych szlaków sygnalizacji komórkowej poprzez integrację sygnałów zewnątrzkomórkowych5,6,7. Pierwotne rzęski odgrywają ważną rolę podczas rozwoju embrionalnego i homeostazy tkanek dorosłych, a zakłócenie ich funkcji lub morfologii wiąże się z kilkoma zaburzeniami genetycznymi, które są zbiorczo nazywane ciliopatiami. Ze względu na niemal wszechobecną naturę rzęsek, ciliopatie są związane z szerokim zakresem cech klinicznych, które mogą wpływać na wszystkie układy narządów8,9,10,11,12. W zwierzęcych modelach ciliopatii utrata struktury rzęskowej lub zdolności sygnalizacyjnej przejawia się w kilku klinicznie istotnych fenotypach, w tym otyłości związanej z hiperfagią3,13,14,15. W wielu systemach modelowych wykazano, że zmiany długości rzęsek wpływają na ich zdolność sygnalizacyjną i funkcje16,17,18,19. Istnieje jednak kilka czasochłonnych i technicznych wyzwań związanych z dokładną i powtarzalną oceną długości i składu rzęsek.
Ośrodkowy układ nerwowy (OUN) dorosłego ssaka to jeden z biologicznych kontekstów, który stanowi wyzwanie dla zrozumienia morfologii i funkcji rzęsek. Chociaż wydaje się, że neurony i komórki w całym OUN posiadają rzęski, ze względu na ograniczone narzędzia i możliwości obserwacji i analizy tych rzęsek, zrozumienie ich funkcji pozostaje nieuchwytne20. Na przykład prototypowy marker rzęsek, acetylowana α-tubulina, nie oznacza rzęsek neuronalnych20. Trudność w badaniu tych rzęsek została częściowo rozwiązana dzięki odkryciu kilku receptorów sprzężonych z białkiem G (GPCR), maszynerii sygnalizacyjnej i białek związanych z błoną, które są wzbogacone na błonie rzęsek neuronalnych21,22. Wszystkie te proste podstawowe obserwacje wskazują na znaczenie i różnorodność rzęsek OUN, które do tej pory wydają się nieporównywalne z innymi tkankami. Na przykład różnice w długości rzęsek i lokalizacji GPCR można zaobserwować w całym mózgu, przy czym długości w niektórych jądrach neuronalnych są różne w porównaniu z innymi jądrami19,23. Podobnie, ich zawartość GPCR i maszyneria sygnalizacyjna uzupełniają różnorodność w oparciu o lokalizację neuroanatomiczną i typ neuronalny2,24,25,26,27,28,29. Te proste obserwacje pokazują, że długość i skład rzęsek ośrodkowego układu nerwowego ssaków są ściśle regulowane, podobnie jak w organizmach modelowych, takich jak Chlamydomonas reinhardtii, ale wpływ tych różnic długości na funkcję, sygnalizację i ostatecznie zachowanie rzęsek pozostaje niejasny16,30,31,32.
Dokładny pomiar długości i składu rzęsek okazuje się być technicznym wyzwaniem podatnym na błędy użytkownika i nieodtwarzalności. Obecnie rzęski in vivo i in vitro są najczęściej identyfikowane przy użyciu metod immunofluorescencyjnych, które znakują białka rzęskowe lub fluorescencyjne allele reporterowe wzbogacone w rzęski33,34,35. Długości tych fluorescencyjnie oznakowanych rzęsek są następnie mierzone na podstawie obrazu dwuwymiarowego (2D) za pomocą narzędzi do pomiaru linii w programach do analizy obrazu, takich jak ImageJ36. Proces ten jest nie tylko żmudny i pracochłonny, ale także podatny na stronniczość i błędy. Te same przeszkody pojawiają się podczas pomiaru intensywności rzęsek, które pomagają wskazać zmiany w strukturze rzęsek37. Aby zminimalizować niespójności w tego typu analizach obrazów, programy sztucznej inteligencji (AI) stają się coraz bardziej powszechnymi i przystępnymi cenowo opcjami38.
Ai to zaawansowanie systemów komputerowych, które wykorzystują przewagę algorytmów komputerowych i programowania do wykonywania zadań, które zwykle wymagałyby ludzkiej inteligencji39. Urządzenia AI są uczone dostrzegania powtarzających się wzorców, parametrów i cech oraz podejmowania działań w celu maksymalizacji szans na osiągnięcie pomyślnych wyników. Sztuczna inteligencja jest wszechstronna i można ją wytrenować do rozpoznawania określonych obiektów lub struktur będących przedmiotem zainteresowania, takich jak rzęski, a następnie zaprogramować ją do przeprowadzania różnych analiz na zidentyfikowanych obiektach. W związku z tym złożone dane obrazowe mogą być szybko i powtarzalnie generowane przez klasę Ai38. Automatyzacja i analiza AI przechwyconych obrazów zwiększy skuteczność i wydajność, jednocześnie ograniczając potencjalne błędy ludzkie i stronniczość39. Ustanowienie opartej na sztucznej inteligencji metodologii identyfikacji rzęsek tworzy spójny sposób dla wszystkich grup badawczych do analizy i interpretacji danych dotyczących rzęsek.
Tutaj używamy modułu Ai do identyfikacji rzęsek zarówno in vivo, jak i in vitro na obrazach 2D. Korzystając z zestawu przykładowych obrazów, sztuczna inteligencja jest szkolona w rozpoznawaniu rzęsek. Po zakończeniu trenowania wyznaczona sztuczna inteligencja jest używana do nakładania maski binarnej na rzęski zidentyfikowane przez sztuczną inteligencję na obrazie. Pliki binarne stosowane przez sztuczną inteligencję można modyfikować, jeśli to konieczne, aby zapewnić, że wszystkie rzęski na obrazach są prawidłowo zidentyfikowane, a identyfikacja niespecyficzna jest eliminowana. Po wykorzystaniu sztucznej inteligencji do identyfikacji rzęsek, niestandardowe programy do analizy ogólnej (GA) są używane do wykonywania różnych analiz, takich jak pomiar długości rzęsek i intensywności fluorescencji. Zebrane dane są eksportowane do tabeli, którą można łatwo odczytać, zinterpretować i wykorzystać do analiz statystycznych (Rysunek 1). Wykorzystanie zautomatyzowanej technologii i sztucznej inteligencji do identyfikacji rzęsek i uzyskania konkretnych pomiarów między grupami eksperymentalnymi pomoże w przyszłych badaniach mających na celu zrozumienie wpływu funkcji i morfologii rzęsek OUN na komunikację i zachowanie komórka-komórka.
Protokół
1. Pobieranie surowych obrazów
- W razie potrzeby napraw i oznacz immunologicznie próbki20.
- Obraz rzęsek za pomocą mikroskopu konfokalnego przy maksymalnej głębi bitowej przy użyciu tego samego rozmiaru piksela z rozdzielczością Nyquista.
- Eksportuj obrazy jako monochromatyczne pliki w formacie obrazu oznaczonego tagiem (.tif).
UWAGA: Ten protokół określa sposób korzystania z modułu Ai w szczególności w oprogramowaniu NIS Elements. Jeśli obrazy zostały pozyskane jako pliki .nd2, eksportowanie obrazów jako plików .tif nie jest konieczne i użytkownik może przejść bezpośrednio do kroku 2.3. Jeśli obrazy zostały pozyskane w innym systemie, licencję NIS Elements można zakupić osobno, a .tif pliki można przekonwertować zgodnie z opisem w następnych krokach.
2. Naucz sztuczną inteligencję do rozpoznawania rzęsek
- Otwórz zestaw danych treningowych.
- Wybierz około 50 przykładowych obrazów z co najmniej jedną rzęską na klatkę, aby przeszkolić oprogramowanie i skopiować je do jednego folderu. Ten folder służy do kierowania oprogramowaniem podczas otwierania obrazów. Otwórz te 50 ramek w jednym dokumencie ND2 z co najmniej jedną rzęską na klatkę. Wybierz opcję File (Plik) > Import/Export (Importuj/Eksportuj) > Create ND File (Utwórz plik ND z sekwencji plików).
- Wybierz folder zawierający zestaw danych treningowych. Spowoduje to otwarcie listy plików na środku okna dialogowego. Zdefiniuj ręcznie organizację plików, korzystając z co najmniej jednej opcji w menu rozwijanym powyżej. Dostępne opcje to wielopunktowy (dla wielu plików maksymalnej projekcji), seria Z (dla obrazu ze stosu z), czas (dla obrazu poklatkowego) i długość fali (dla plików z wielu kanałów).
- Wprowadź odpowiednie wartości liczbowe pod każdą wybraną opcją. Wybierz opcję Brak wszędzie tam, gdzie opcje nie są zaznaczone. Kliknij przycisk Konwertuj, aby otworzyć dokument ND.
- Kalibrowanie obrazów.
- Wprowadź rozmiar w pikselach w lewym dolnym rogu obrazu: Kliknij prawym przyciskiem myszy pozycję Nieskalibrowany > Kalibruj dokument > rozmiaru w pikselach.
- Zidentyfikuj rzęski.
- Ręcznie zidentyfikuj rzęski, precyzyjnie śledząc poszczególne struktury rzęskowe we wszystkich otwartych ramkach za pomocą funkcji AutoDetect lub Draw Object na pasku narzędzi binarnych. Spowoduje to narysowanie masek binarnych na obiektach zainteresowania. Te pliki binarne posłużą jako przykładowe obiekty do szkolenia oprogramowania w zakresie identyfikacji rzęsek na podstawie cech opartych na pikselach w przyszłej eksperymentalnej analizie obrazu. Wybierz opcję Widok > Formanty analizy > binarnym pasku narzędzi > Rysuj obiekt.
UWAGA: Usuń każdą ramkę, która nie ma żadnych plików binarnych, ponieważ oprogramowanie nie rozpocznie trenowania, jeśli nie będzie w stanie wykryć plików binarnych we wszystkich otwartych ramkach.
- Ręcznie zidentyfikuj rzęski, precyzyjnie śledząc poszczególne struktury rzęskowe we wszystkich otwartych ramkach za pomocą funkcji AutoDetect lub Draw Object na pasku narzędzi binarnych. Spowoduje to narysowanie masek binarnych na obiektach zainteresowania. Te pliki binarne posłużą jako przykładowe obiekty do szkolenia oprogramowania w zakresie identyfikacji rzęsek na podstawie cech opartych na pikselach w przyszłej eksperymentalnej analizie obrazu. Wybierz opcję Widok > Formanty analizy > binarnym pasku narzędzi > Rysuj obiekt.
- Trenuj sztuczną inteligencję.
- Rozpocznij szkolenie oprogramowania. Spowoduje to otwarcie pociągu Segment.ai skrzynki. Wybierz NIS.ai > Train Segment.ai.
- W polu Train Segment.ai (Trenowanie ) wybierz kanał źródłowy, który ma być używany do trenowania. Jeśli otwarte są pliki z wielu kanałów, wybierz tylko jeden kanał jako kanał źródłowy. Następnie wybierz odpowiednie pliki binarne prawdy podstawowej, na których chcesz trenować sztuczną inteligencję. Na koniec wybierz liczbę iteracji potrzebnych do wytrenowania sztucznej inteligencji w zależności od rozmiaru i dystrybucji plików binarnych.
UWAGA: Jeśli pliki binarne są łatwo wykrywalne z otoczenia i dobrze rozmieszczone na obrazie, oprogramowanie może potrzebować mniej niż 1000 iteracji, aby nauczyć się identyfikować obrazy. Jeśli obrazy mają niski stosunek sygnału do szumu, idealnie jest uruchomić co najmniej 1000 iteracji podczas treningu, aby umożliwić sztucznej inteligencji identyfikację rzęsek w próbkach testowych z dużą pewnością. - Wybierz folder docelowy, aby zapisać wytrenowany plik sztucznej inteligencji (.sai), a następnie kliknij przycisk Trenuj, aby wytrenować oprogramowanie. Oprogramowanie będzie teraz trenować się w rozpoznawaniu rzęsek na podstawie śledzonych plików binarnych. Ten proces trwa kilka godzin.
UWAGA: Podczas treningu oprogramowanie wyświetli wykres przedstawiający straty treningowe. Wykres początkowo pokaże skok, a następnie zwęzi się do idealnie około 1% straty, gdzie utrzymuje się do końca treningu. Zapisz wykres do wykorzystania w przyszłości, zaznaczając pole wyboru Zapisz zrzut ekranu wykresu w polu Train Segment.ai (Rysunek uzupełniający 1). - Jeśli wymagane jest dalsze uściślenie trenowania, kontynuuj trenowanie na tym samym zestawie danych. Alternatywnie możesz trenować na nowym zestawie danych z dokładnie tymi samymi parametrami. Nie zaleca się trenowania już wytrenowanej sztucznej inteligencji na nowym zbiorze danych o różnych parametrach lub różnych obiektach zainteresowania. Wybierz pozycję Trenuj segment.ai > kontynuuj trenowanie > wybierz pozycję Plik wytrenowanej sztucznej inteligencji.
3. Zidentyfikuj rzęski za pomocą wyszkolonej sztucznej inteligencji
- Otwórz eksperymentalny zestaw danych.
- Otwórz eksperymentalne obrazy konfokalne rzęsek w oprogramowaniu, konwertując pliki próbki .tif na pliki .nd2, podobnie jak w kroku 2.1. Wybierz opcję Plik > Importuj/Eksportuj > Utwórz plik ND z sekwencji plików.
UWAGA: Obrazy powinny mieć ten sam rozmiar piksela, co te używane do trenowania sztucznej inteligencji. Jeśli obrazy są już w formacie ND2, przejdź do kroku 3.3.
- Otwórz eksperymentalne obrazy konfokalne rzęsek w oprogramowaniu, konwertując pliki próbki .tif na pliki .nd2, podobnie jak w kroku 2.1. Wybierz opcję Plik > Importuj/Eksportuj > Utwórz plik ND z sekwencji plików.
- Kalibrowanie obrazów.
- Wprowadź rozmiar w pikselach w lewym dolnym rogu obrazu. Kliknij prawym przyciskiem myszy pozycję Nieskalibrowany > Kalibruj dokument > rozmiaru w pikselach.
- Uruchom wytrenowaną sztuczną inteligencję na otwartych plikach.
- Rozpocznij identyfikację rzęsek za pomocą Ai. Oprogramowanie będzie teraz rysować pliki binarne na rzęskach na podstawie treningu, który otrzymał w poprzednim kroku. Ten proces zajmie kilka sekund. Wybierz NIS.ai > Segment.ai.
UWAGA: Oprogramowanie poprosi o wybranie kanału, jeśli otwartych jest wiele kanałów. Kanały są tutaj wymienione według ich nazw. Jeśli nie, pole oznaczone "Mono" zostanie automatycznie zaznaczone.
- Rozpocznij identyfikację rzęsek za pomocą Ai. Oprogramowanie będzie teraz rysować pliki binarne na rzęskach na podstawie treningu, który otrzymał w poprzednim kroku. Ten proces zajmie kilka sekund. Wybierz NIS.ai > Segment.ai.
- Sprawdź obrazy pod kątem błędnie zidentyfikowanych plików binarnych.
- Gdy sztuczna inteligencja zidentyfikuje rzęski i narysuje pliki binarne, sprawdź obrazy pod kątem błędnie zidentyfikowanych obiektów. W razie potrzeby ręcznie usuń wszystkie błędnie zidentyfikowane pliki binarne. Wybierz opcję Widok > formantów analizy > binarny pasek narzędzi > Usuń obiekt.
4. Pomiar długości i intensywności rzęsek
- Utwórz nową recepturę Analizy ogólnej 3 (GA3).
- Teraz, gdy rzęski zostały zidentyfikowane i podzielone na segmenty, przystąp do analizy różnych parametrów rzęsek, takich jak długość i intensywność, za pomocą narzędzia GA3. Spowoduje to otwarcie nowego okna z pustym miejscem pośrodku, w którym zostanie zdefiniowana analiza. Wybierz Obraz > Nowy przepis GA3.
- Wybierz pliki binarne do analizy.
- Ponieważ rzęski są już podzielone na segmenty za pomocą Segment.ai, GA3 automatycznie wykryje pliki binarne odpowiednio oznaczone zgodnie ze sztuczną inteligencją i uwzględni węzeł. Wybierz opcję "Pliki binarne > automatyczne Detect_AI" lub "Pliki binarne > rysuj Object_AI".
- Wybierz kanały wymagane do analizy. GA3 automatycznie wykryje również kanały na obrazach i wyświetli ich zakładki w sekcji Kanały.
- Usuń obiekty stykające się z krawędzią ramki.
- Ponieważ Ai podzieli na segmenty wszystkie obiekty podobne do rzęsek w ramce, wykryje również niekompletne rzęski wzdłuż krawędzi ramki. Obiekty te można usunąć ręcznie w kroku 3.4 lub automatycznie w wersji ogólnie dostępnej 3. Wybierz Przetwarzanie binarne > Usuń obiekty > Stykające się granice.
- Wybierz parametry do pomiaru rzęsek.
- Przeciągnij i upuść parametry do pomiaru, takie jak długość rzęsek (długość) i intensywność (suma intensywności obiektu). Połącz węzły z odpowiednim węzłem binarnym (połączenie A) i węzłami kanału (połączenie B). Umieść kursor na połączeniu węzła, aby wyświetlić etykietkę narzędzia, aby pokazać, do którego połączenia należy węzeł. Wybierz Pomiar > Rozmiar > długość obiektu oraz Pomiar > intensywności obiektu > Sumuj intensywność obiektu.
UWAGA: >Długość węzła łączy się tylko z węzłem binarnym, podczas gdy Suma intensywności obj łączy się zarówno z węzłem binarnym, jak i węzłem kanału.
- Przeciągnij i upuść parametry do pomiaru, takie jak długość rzęsek (długość) i intensywność (suma intensywności obiektu). Połącz węzły z odpowiednim węzłem binarnym (połączenie A) i węzłami kanału (połączenie B). Umieść kursor na połączeniu węzła, aby wyświetlić etykietkę narzędzia, aby pokazać, do którego połączenia należy węzeł. Wybierz Pomiar > Rozmiar > długość obiektu oraz Pomiar > intensywności obiektu > Sumuj intensywność obiektu.
- Dołącz pomiary do jednej tabeli.
- Połącz wszystkie pomiary w jednej tabeli wyjściowej, przeciągając i upuszczając węzeł Dołącz kolumnę do schematu blokowego analizy i łącząc go z węzłami pomiaru, długością i intensywnością sumy. Wybierz pozycję Zarządzanie danymi > Podstawowe > Dołącz kolumnę.
- Zmierz rzęski.
- Zmierz rzęski, klikając Uruchom. Ten proces zajmuje kilka chwil, aby zmierzyć wszystkie rzęski na obrazach eksperymentalnych. Długości i intensywności pojawią się w nowym oknie Wyniki analizy.
UWAGA: Tabela może czasami zawierać dane z masek, które sztuczna inteligencja rozpoznała jako rzęski, ale były zbyt małe, aby mogły zostać wykryte przez ludzkie oko i wyeliminowane w kroku 3.4. Obiekty te można usunąć ze zbioru danych za pomocą filtru przed analizą statystyczną. W tym przypadku do pomiarów długości rzęsek in vitro użyto filtra o wielkości 1 μm w Rysunek 2 i 2 μm dla rzęsek in vivo. Można to zrobić przed wyeksportowaniem danych za pomocą poniższej ścieżki. Wybierz okno Wyniki analizy > Zdefiniuj filtr > Wprowadź wartość > Użyj filtru.
- Zmierz rzęski, klikając Uruchom. Ten proces zajmuje kilka chwil, aby zmierzyć wszystkie rzęski na obrazach eksperymentalnych. Długości i intensywności pojawią się w nowym oknie Wyniki analizy.
- Eksport danych do analizy statystycznej.
5. Badania kolokalizacyjne
UWAGA: Analiza kolokalizacji może być zawarta w tym samym przepisie GA3, który jest używany do pomiarów długości rzęsek i analizy intensywności. W przypadku korzystania z tej samej receptury otwórz pliki zgodnie z poniższym opisem i zmierz długość i intensywność obu kanałów wraz ze współczynnikami kolokalizacji w tym samym potoku analizy.
- Otwórz eksperymentalny zestaw danych.
- Otwórz eksperymentalne obrazy konfokalne rzęsek w oprogramowaniu, konwertując pliki próbki .tif na pliki .nd2. Wybierz opcję File (Plik) > Import/Export (Importuj/Eksportuj) > Create ND File (Utwórz plik ND z sekwencji plików).
- W wyskakującym okienku wybierz pliki monochromatyczne o 16-bitowej głębi ze wszystkich interesujących Cię kanałów z eksploratora okien znajdującego się w pierwszej kolumnie wyskakującego okienka. Z pierwszego menu rozwijanego wybierz opcję Wielopunktowe lub Seria Z i wprowadź wartość odpowiadającą odpowiednio całkowitej liczbie obrazów lub stosów.
- W drugim polu rozwijanym wybierz opcję Długość fali i zmień wartość na całkowitą liczbę kanałów w folderze. Oprogramowanie automatycznie odblokuje okno wyboru długości fali znajdujące się w prawym dolnym rogu wyskakującego okienka. Użyj menu rozwijanego Kolor, aby wybrać kolor każdego kanału. Podaj każdemu kanałowi inną nazwę w kolumnie Nazwa. Po zaktualizowaniu wszystkich informacji kliknij przycisk Konwertuj. Oprogramowanie automatycznie wygeneruje plik obrazu Wszystkie nałożony na wszystkie pojedyncze obrazy ze wszystkich wybranych kanałów.
- Kalibrowanie obrazów.
- Wprowadź rozmiar w pikselach w lewym dolnym rogu obrazu. Kliknij prawym przyciskiem myszy pozycję Nieskalibrowany > Kalibruj dokument > rozmiaru w pikselach.
- Uruchom wytrenowaną sztuczną inteligencję na pierwszym kanale.
- Rozpocznij identyfikację rzęsek na jednym z otwartych kanałów (np. ACIII; Rysunek 5A) za pomocą sztucznej inteligencji. Oprogramowanie będzie teraz rysować pliki binarne na rzęskach oznaczonych ACIII na podstawie treningu, który otrzymał dla tego kanału. Ten proces zajmie kilka sekund. Wybierz NIS.ai > Segment.ai > Kanały źródłowe > ACIII.
- Uruchom wytrenowaną sztuczną inteligencję na drugim kanale.
- Rozpocznij identyfikację rzęsek na drugim otwartym kanale (np. MCHR1; Rysunek 5B) za pomocą sztucznej inteligencji. Oprogramowanie będzie teraz rysować pliki binarne na rzęskach oznaczonych MCHR1 na podstawie treningu, który otrzymał dla tego kanału. Ten proces zajmie kilka chwil. Wybierz NIS.ai > Segment.ai > Kanały źródłowe > MCHR1.
- Sprawdź obrazy pod kątem błędnie zidentyfikowanych plików binarnych.
- Gdy sztuczna inteligencja zidentyfikuje rzęski i narysuje pliki binarne, sprawdź obrazy pod kątem błędnie zidentyfikowanych obiektów. W razie potrzeby ręcznie usuń wszystkie błędnie zidentyfikowane pliki binarne. Wybierz opcję Widok > formantów analizy > binarny pasek narzędzi > Usuń obiekt.
- Utwórz nowy przepis GA3.
- Teraz, gdy rzęski zostały zidentyfikowane i podzielone na segmenty, przejdź do analizy kolokalizacji za pomocą narzędzia GA3. Spowoduje to otwarcie nowego okna z pustym miejscem pośrodku, w którym zostanie zdefiniowana analiza. Zostanie wygenerowane okno ze wszystkimi zidentyfikowanymi plikami binarnymi i kanałami. Sprawdź, czy wszystkie żądane kanały i pliki binarne wymagane do analizy są obecne i wybrane. Wybierz Obraz > Nowy przepis GA3.
- Usuń obiekty stykające się z krawędzią ramki.
- Ponieważ sztuczna inteligencja podzieli na segmenty wszystkie obiekty podobne do rzęsek w ramce, wykryje również niekompletne rzęski wzdłuż krawędzi ramki. Obiekty te można usunąć ręcznie w kroku 5.5 lub automatycznie w wersji ogólnie dostępnej 3. Wybierz opcję Przetwarzanie binarne > Usuń obiekty > Stykające się krawędzie.
- Skonfiguruj ścieżkę kolokalizacji w GA3.
- Aby zmierzyć nakładanie się dwóch kanałów w rzęskach, użyj korelacji współczynnika Mandera. Przeciągnij i upuść węzeł Współczynnik Mandersa w puste miejsce przepisu GA3 i połącz go z odpowiednim plikiem binarnym i kanałami. W tym przypadku "połączenie A" łączy się z plikiem binarnym ACIII, "połączenie B" z kanałem MCHR1, a "połączenie C" z kanałem ACIII, aby określić nakładanie się MCHR1 w obrębie pliku binarnego ACIII. Wybierz Pomiar > Współczynnik proporcji obiektu > Manders.
UWAGA: Oprogramowanie umożliwia pomiar kolokalizacji za pomocą korelacji współczynnika Pearsona przy użyciu tych samych kroków, które opisano w tym protokole40.
- Aby zmierzyć nakładanie się dwóch kanałów w rzęskach, użyj korelacji współczynnika Mandera. Przeciągnij i upuść węzeł Współczynnik Mandersa w puste miejsce przepisu GA3 i połącz go z odpowiednim plikiem binarnym i kanałami. W tym przypadku "połączenie A" łączy się z plikiem binarnym ACIII, "połączenie B" z kanałem MCHR1, a "połączenie C" z kanałem ACIII, aby określić nakładanie się MCHR1 w obrębie pliku binarnego ACIII. Wybierz Pomiar > Współczynnik proporcji obiektu > Manders.
- Dołącz pomiary do jednej tabeli.
- Połącz wszystkie pomiary w jednej tabeli wyjściowej. Wybierz pozycję Zarządzanie danymi > Podstawowe > Dołącz kolumnę.
- Mierz kolokalizację.
- Zmierz rzęski, klikając Uruchom. Ten proces zajmuje kilka chwil, aby zmierzyć wszystkie rzęski na obrazach eksperymentalnych. Dane pojawią się w nowym oknie Wyniki analizy.
- Eksport danych do analizy statystycznej.
Wyniki
Trenowanie AI w celu identyfikacji rzęsek
Pomiar i ocena długości strukturalnej oraz składu rzęsek może być procesem żmudnym, czasochłonnym i podatnym na błędy. W niniejszej pracy wykorzystujemy AI do dokładnej segmentacji rzęsek z dużej puli obrazów oraz analizujemy ich długość i intensywność za pomocą narzędzia analitycznego (Rycina 1). Wszystkie podejścia oparte na AI wymagają etapów trenowania w celu ich wdrożenia. Ustanowiliśmy potok treningowy do rozpoznawania rzęsek, który polegał na ręcznym nakładaniu masek binarnych na struktury rzęsek. Informacje te są następnie wykorzystywane do trenowania AI w oparciu o charakterystykę pikseli pod zastosowanymi maskami binarnymi. Zgodnie z ogólnymi wytycznymi, trening obejmuje przejście oprogramowania przez kilka iteracji, około 1000, i uznaje się go za optymalny, jeśli strata treningowa lub wskaźnik błędów jest mniejszy niż 1%. Jednak liczba iteracji i błędów w procesie trenowania może się różnić w zależności od obrazów próbek użytych do treningu. Na przykład po naszych sesjach treningowych z wykorzystaniem obrazów rzęsek neuronalnych in vitro wskaźnik błędów wyniósł 1,378% w porównaniu z 3,36% dla obrazów przekrojów mózgu in vivo (Rycina dodatkowa 1). Po zakończeniu trenowania AI może być następnie wykorzystane do segmentacji rzęsek z obrazów eksperymentalnych w ciągu kilku sekund, a wynikowe maski binarne służą do pomiaru parametrów strukturalnych. Eliminuje to konieczność segmentacji obiektów za pomocą tradycyjnej metody progowania intensywności, która może być trudna w obrazach z wysokim szumem tła lub gdy obiekty znajdują się blisko siebie. AI zmniejsza również potencjał do wystąpienia błędów i stronniczości poprzez zastosowanie tego samego algorytmu we wszystkich obrazach, niezależnie od użytkownika.
Pomiar długości rzęsek przy użyciu GA3
Długość rzęsek jest ściśle regulowana i wiąże się z funkcjonalnym wpływem na sygnalizację rzęskową16,19. W niniejszym badaniu zmierzyliśmy długość rzęsek, korzystając z potoku analitycznego w oprogramowaniu NIS Elements o nazwie General Analysis 3 lub GA3. GA3 wspomaga łączenie wielu narzędzi w jednym przepływie pracy w celu budowania spersonalizowanych procedur dla każdego eksperymentu. Rozpoczęliśmy od pomiaru długości rzęsek w linii komórkowej. Rzęski w komórkach zbiorniczych wewnętrznej rdzeniowej części rdzenia nerek myszy (IMCD-3) zostały immunoznakowane acetylowaną tubuliną i zobrazowane za pomocą mikroskopu konfokalnego. Długość rzęsek zmierzyliśmy za pomocą GA3 po segmentacji z użyciem segment.ai (Rycina uzupełniająca 3A). Choć acetylowana α-tubulina występuje preferencyjnie w rzęskach pierwotnych, znajduje się ona również w innych obszarach bogatych w mikrotubule, takich jak cytoszkielet, a także w mostku cytokinetycznym. Przeszkolona sztuczna inteligencja (AI) prawidłowo zidentyfikowała rzęski na obrazie, pomijając inne struktury niebędące rzęskami, a wykazujące pozytywny sygnał dla acetylowanej tubuliny. Długość rzęsek w komórkach IMCD wahała się od 0,5 µm do 4,5 µm, przy średniej długości 1,8 ± 0,04 µm (Rycina 2A). Następnie przetestowaliśmy zdolność AI do pomiaru długości rzęsek w pierwotnych kulturach neuronalnych. Hodowaliśmy neurony z podwzgórza i hipokampa noworodków myszy przez 10 dni i immunoznakowaliśmy je markerem rzęsek – cyklazą adenylanową III (ACIII)21,41. Podczas analizy kultur neuronalnych stwierdziliśmy, że pomocne jest zastosowanie filtra przed statystyczną analizą długości. Ze względu na niższy stosunek sygnału do szumu zidentyfikowano kilka obiektów o długości mniejszej niż 1 µm, które nie były rzęskami. Dlatego przefiltrowaliśmy dane, aby wyeliminować wszystkie obiekty o długości mniejszej niż 1 µm, zapewniając analizę wyłącznie rzęsek. W hodowanych neuronach podwzgórza długość rzęsek wahała się od 2 µm do 7 µm, przy średniej długości 3,8 ± 0,19 µm (Rycina 2B). Co ciekawe, rzęski w hodowanych neuronach hipokampa były dłuższe, ze średnią długością 6,73 ± 0,15 µm (Rycina 2C). Donoszono, że różne jądra neuronalne w obrębie podwzgórza wykazują odmienną długość rzęsek oraz że rzęski te zmieniają swoją długość w odpowiedzi na zmiany fizjologiczne w sposób specyficzny dla danego jądra19,23. W związku z tym oznakowaliśmy również ACIII w przekrojach mózgu z podwzgórza dorosłych samców myszy C57BL/6J i zobrazowaliśmy jądro łukowate (ARC) oraz jądro przykomorowe (PVN). Używając GA3 do pomiaru długości rzęsek, zaobserwowaliśmy, że rzęski podwzgórza in vivo wydawały się dłuższe niż rzęski in vitro. Konkretnie, rzęski podwzgórza in vivo mają długość od 1 µm do około 15 µm (Rycina 3). Nie stwierdzono istotnych różnic między długością rzęsek w PVN (5,54 ± 0,42 µm) a rzęskami w ARC (6,16 ± 0,27 µm) (Rycina 3C)23. Podobnie, rzęski w obszarze cornu ammonis (CA1) hipokampa wykazują węższy zakres długości od 1 µm do 10 µm, przy średniej długości 5,28 ± 0,33 µm (Rycina 3). Zgodnie z wcześniej opublikowanymi badaniami, nasza analiza z wykorzystaniem narzędzi AI i GA3 wykazała, że rzęski z różnych obszarów mózgu wykazują zróżnicowanie długości19,23. Ponadto, stosując to podejście oparte na AI, jesteśmy w stanie szybko ocenić dużą liczbę rzęsek.
Pomiar składu rzęsek przy użyciu GA3
Rzęska pierwotna jest centrum sygnalizacyjnym dla wielu szlaków, które wykorzystują różnorodne typy białek do pełnienia unikalnych funkcji, takich jak białka motorowe, białka transportu wewnątrzrzęskowego i receptory GPCR, wymieniając tylko niektóre3,24,42,43. Utrzymywanie odpowiedniego poziomu tych białek w rzęsce jest istotne dla prawidłowego funkcjonowania i często wydaje się zależne od kontekstu komórkowego. Fluorescencyjne znakowanie tych białek pozwoliło nam nie tylko na ich wizualizację, ale także na kwantyfikację ich intensywności jako miary ilości znakowanego białka w tym stosunkowo niewielkim przedziale20. W związku z tym dążyliśmy do określenia intensywności rzęskowego receptora GPCR, receptora hormonu koncentrującego melaninę 1 (MCHR1), in vivo zarówno w ARC, jak i PVN podwzgórza dorosłych samców myszy24,44. Wykorzystując Ai i GA3, zmierzyliśmy długości rzęsek wykazujących pozytywną reakcję na MCHR1 wraz z ich intensywnościami, aby upewnić się, że liczone obiekty są rzęskami (Supplementary Figure 3A). Po analizie odrzuciliśmy obiekty o długości mniejszej niż 2 µm i przeanalizowaliśmy intensywności pozostałych masek binarnych. Co ciekawe, stwierdziliśmy, że intensywność rzęskowego MCHR1 w PVN jest znacznie wyższa niż w ARC, co wskazuje na silniejszą obecność rzęskowego MCHR1 w PVN (Figure 4). Wymagane są dalsze badania, aby określić znaczenie rzęskowego MCHR1 w tych obwodach neuronalnych. Zmierzyliśmy również intensywności rzęskowego MCHR1 w pierwotnych kulturach neuronów podwzgórza i hipokampa. Rzęski z obu kultur wykazują szeroki rozkład intensywności MCHR1, co sugeruje obecność heterogenicznych populacji neuronów (Supplementary Figure 2). Zatem stosowanie zaawansowanych narzędzi analitycznych, takich jak Ai i GA3, umożliwia ocenę heterogeniczności rzęsek w obrębie tej samej tkanki lub pomiędzy wieloma tkankami. Interesujące będzie sprawdzenie, czy inne neuronalne receptory GPCR wykazują podobne różnice w lokalizacji w obrębie neuronów tej samej tkanki i czy ulega to zmianie w odpowiedzi na zmiany fizjologiczne.
Kolokalizacja
Podczas gdy pomiar intensywności fluorescencji w całym polu obrazu może dać ogólne pojęcie o białku, nie dostarcza on informacji takich jak rozkład przestrzenny czy bliskość innych sąsiednich białek i struktur komórkowych. W tym przypadku zmierzyliśmy nakładanie się MCHR1 z ACIII jako markerem rzęsek, wykreślając intensywności MCHR1 względem ACIII dla każdej maski binarnej (Rysunek 5). Wykres pokazuje, że większość rzęsek jest pozytywna zarówno dla ACIII, jak i MCHR1, choć w niektórych rzęskach obserwuje się silniejszą ekspresję jednego kanału nad drugim. Ponadto istnieją rzęski wykazujące obecność tylko ACIII lub tylko MCHR1, co wynika z punktów położonych odpowiednio bezpośrednio na osi x i osi y. Aby ilościowo określić to nakładanie się, zmierzyliśmy współczynnik nakładania Mandersa i porównaliśmy stopień ekspresji MCHR1 w rzęskach neuronalnych obszaru ARC i PVN40. Co ciekawe, nasza analiza wykazała, że współczynniki dla PVN (0,6382 ± 0,0151) były istotnie wyższe niż dla ARC (0,5430 ± 0,0181) (Rysunek 5C). Jest to zgodne z naszymi wcześniejszymi danymi, w których zaobserwowaliśmy wyższe intensywności MCHR1 w PVN w porównaniu do ARC (Rysunek 4). Dane te sugerują, że podobnie jak długość rzęsek, wzorzec ekspresji MCHR1 w przedziale rzęskowym różni się w zależności od regionu mózgu. Wykorzystując ten sam schemat analizy, będzie możliwe ustalenie, czy inne rzęskowe receptory GPCR, takie jak receptor neuropeptydu Y typu 2 (NPY2R) i receptor somatostatyny typu 3 (SSTR3), wykazują podobny stopień zróżnicowania.
Pomiar profilu intensywności wzdłuż rzęsoki
Po zidentyfikowaniu rzęsoków za pomocą segment.ai, recepturę GA3 można zmodyfikować, aby połączyć analizę rzęsoków z identyfikacją innych interesujących struktur na obrazie. Na przykład znakowanie markerami ciałek podstawnych jest przydatne do określenia polarności rzęsoków. Aby przeprowadzić tę analizę, wykonaliśmy obrazowanie przekrojów podwzgórza mózgu myszy P0 wykazujących ekspresję ARL13B-mCherry oraz Centrin2-GFP, obrazując ARC i PVN34. W tym przypadku rzęsoki zidentyfikowano za pomocą Ai jak wcześniej, ale zmodyfikowana receptura GA3 obejmuje teraz identyfikację Centrin2-GFP, białka centriolarnego znajdującego się u podstawy rzęsoków (Rycina uzupełniająca 3B). Dzięki znakowaniu Centrin2-GFP można odróżnić podstawę rzęsoków od ich wierzchołków w rzęsokach pozytywnych pod kątem ARL13B-mCherry (Rycina 6A). Następnie, zamiast mierzyć intensywność w całej rzęsokach, jesteśmy w stanie zmierzyć zmiany intensywności ARL13B wzdłuż długości rzęsoków (Rycina 6B). Możemy również porównać różnice w intensywności ARL13B między końcami proksymalnymi a dystalnymi rzęsoków. W tym celu podzieliliśmy długość rzęsoki na przedziały o szerokości 1 µm, zaczynając od podstawy, i wyznaczyliśmy pierwszy przedział 1 µm jako koniec proksymalny, a ostatni przedział 1 µm jako koniec dystalny. Nasza analiza wykazała, że w ARC i PVN obecność ARL13B jest znacząco większa bliżej podstawy niż wierzchołka rzęsoki, co jest spójne z wcześniej opublikowanymi badaniami na ludzkich chondrocytach45 (Rycina 6C). W tego typu analizie, zamiast stosować filtr długości w celu wykluczenia małych obiektów nierzęsokowych z analizy, analizowane są tylko rzęsoki związane ze znakowaniem Centrin2-GFP. Może to być korzystne w sytuacjach, gdy mutacje genetyczne powodują powstawanie bardzo krótkich rzęsoków lub gdy zaistnieją podejrzenia dotyczące zmian w poddomenach rzęsoków, takich jak strefa przejściowa lub wierzchołek. Identyfikacja rzęsoków przy użyciu Ai i analiza GA3 są wysoce adaptowalne i mogą być dostosowane do szeregu złożonych pytań badawczych.
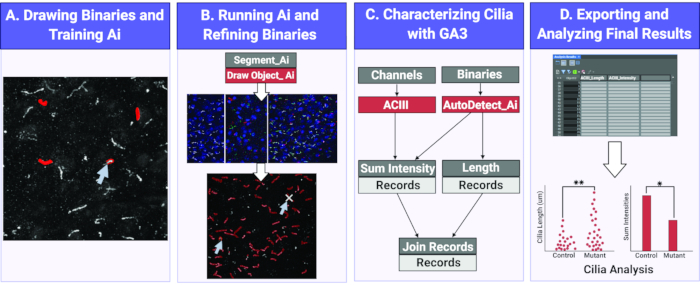
Rycina 1. Schemat pomiaru długości i intensywności rzęsek z wykorzystaniem AI. (A) W celu wytrenowania AI, na surowych obrazach treningowych rysuje się maski binarne wokół obiektów zainteresowania (rzęsek). Wykorzystując narysowane maski binarne, program Segment AI jest trenowany w rozpoznawaniu kształtu i intensywności pikseli rzęsek. (B) Następnie wytrenowany program Segment AI jest stosowany do surowych obrazów eksperymentalnych. Rysuje on maski binarne na obiektach rozpoznanych jako rzęski. Maski te mogą zostać doprecyzowane, aby upewnić się, że analizowane są wszystkie i wyłącznie rzęski. (C) Tworzony jest program GA3 w celu analizy intensywności i długości obiektów rozpoznanych przez AI. (D) Dane są importowane do tabeli w oprogramowaniu. Tabelę tę można następnie wyeksportować do dalszej analizy. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
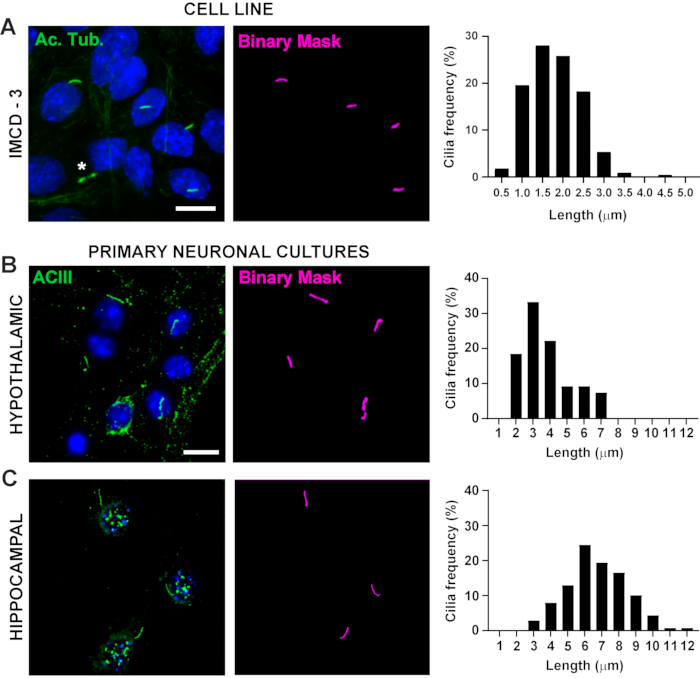
Rycina 2. Pomiary długości rzęsek in vitro. Reprezentatywne obrazy rzęsek w (A) komórkach IMCD (zielony, acetylowana tubulina), (B) pierwotnych kulturach podwzgórza (zielony, ACIII) oraz (C) kulturach hipokampa (zielony, ACIII). Przeszkolona sztuczna inteligencja (Ai) została wykorzystana do rozpoznawania rzęsek, co przedstawiono na masce binarnej (magenta), a następnie użyto programu GA3 do pomiaru długości rzęsek. Rozkład długości rzęsek przedstawiono na wykresie jako procent rzęsek w przedziałach 0,5 lub 1,0 µm. * oznacza mostek cytokinetyczny, który nie został prawidłowo rozpoznany przez Ai. n=225 rzęsek w komórkach IMCD z 3 powtórzeń, 54 rzęsek w kulturach podwzgórza i 139 rzęsek w kulturach hipokampa z 3 zwierząt. Paski skali 10 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
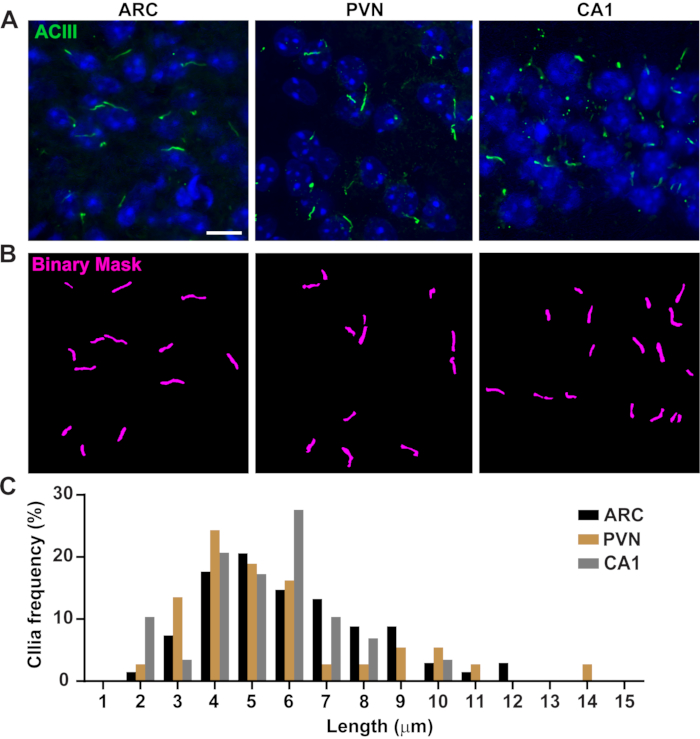
Rysunek 3. In vivo pomiary długości rzęsek. (A) Reprezentatywne obrazy rzęsek (kolor zielony, ACIII) w ARC, PVN i CA1 w przekrojach mózgu dorosłej myszy. (B) W programie NIS Elements wykorzystano wytrenowaną sztuczną inteligencję (AI) do rozpoznawania rzęsek, co przedstawiono na masce binarnej (kolor purpurowy), a następnie użyto narzędzia GA3 do pomiaru długości rzęsek. (C) Rozkład długości rzęsek przedstawiono na wykresie jako procent rzęsek w przedziałach jednogodzinowych (one-micron bins). n= 68 rzęsek w ARC, 36 w PVN i 29 w CA1 z 3 zwierząt. Paski skali 10 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
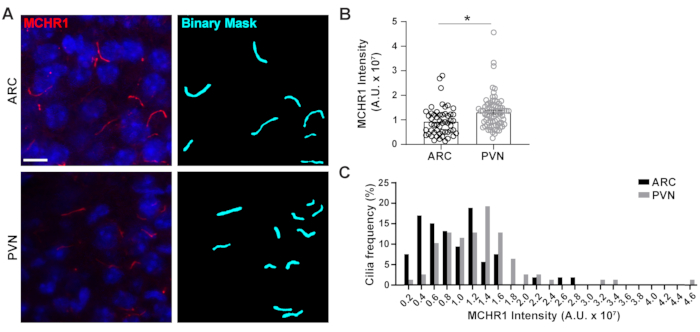
Rycina 4. Pomiary intensywności barwienia rzęsek neuronów podwzgórza wspomagane przez AI. (A) Reprezentatywne obrazy rzęsek (MCHR1, czerwony) w jądrze łukowatym (ARC) i jądrze przykomorowym (PVN) w przekrojach mózgu dorosłej myszy. Wykorzystano wytrenowaną sztuczną inteligencję (AI) w programie NIS Elements do rozpoznawania rzęsek, co przedstawiono na masce binarnej (cyjan), a następnie użyto narzędzia GA3 do pomiaru intensywności barwienia MCHR1 w rzęskach. (B) Intensywności MCHR1 przedstawiono na wykresie jako średnia ± S.E.M. Każda kropka reprezentuje jedną rzęskę. * p < 0.05, test t Studenta. (C) Rozkład intensywności MCHR1 przedstawiono jako procent rzęsek w przedziałach 0.2 x 10⁷ jednostek umownych (A. U.). n= 53 rzęsek w ARC, 78 w PVN od 3 zwierząt. Paski skali 10 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
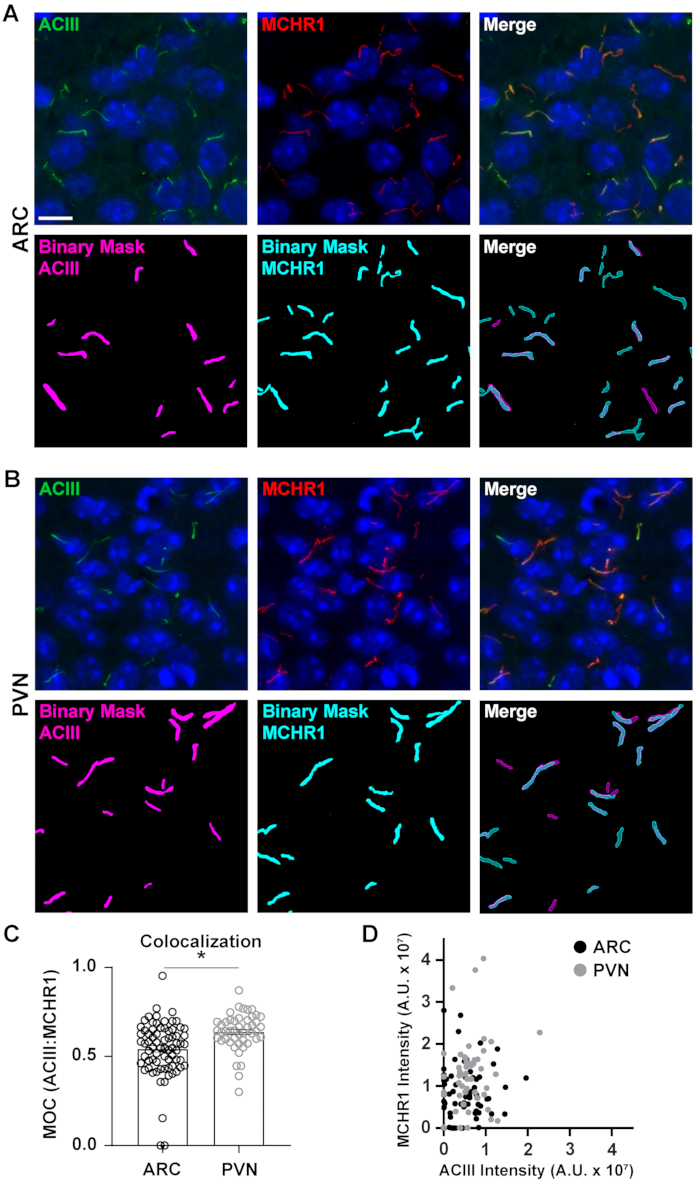
Rycina 5. Analiza kolokalizacji rzęsek wspomagana przez AI. (A, B) Reprezentatywne obrazy rzęsek odpowiednio w ARC i PVN. Rzęski są znakowane ACIII (zielony) oraz MCHR1 (czerwony). W programie NIS Elements wykorzystano wytrenowane AI do rozpoznawania rzęsek, co przedstawiono na masce binarnej (magenta dla rzęsek znakowanych ACIII, cyjan dla rzęsek znakowanych MCHR1). Do rozpoznania rzęsek zawierających zarówno ACIII, jak i MCHR1 użyto GA3. (C) Wartości współczynnika nakładania Mandersa (MOC) przedstawiono jako średnia ± S.E.M. Każda kropka reprezentuje jedną rzęskę. * p < 0.05, test t Studenta. (D) Wykres rozrzutu intensywności MCHR1 względem intensywności ACIII w ARC i PVN. Każda kropka reprezentuje jedną rzęskę. n= 72 rzęsek w ARC, 47 w PVN z 3 zwierząt. Paski skali 10 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
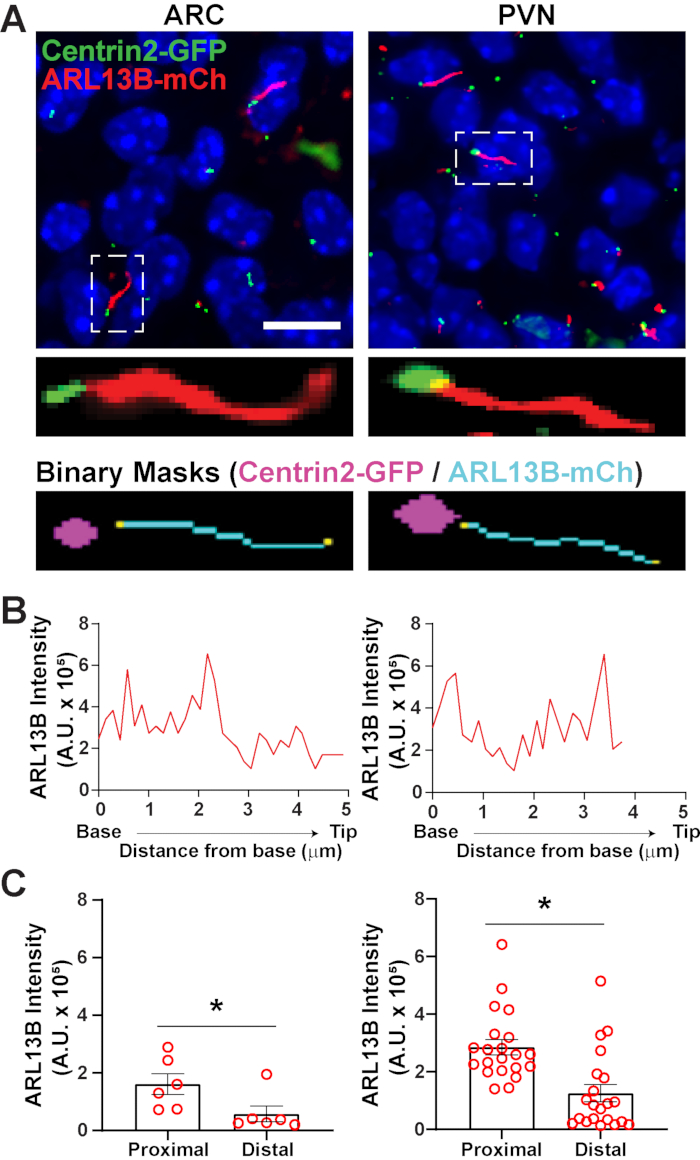
Rycina 6. Analiza rzęsek i ciałek podstawnych. (A) Reprezentatywne obrazy rzęsek (czerwony, ARL13B-mCherry) i markera ciałka podstawnego (zielony, Centrin2-GFP) w ARC i PVN myszy P0. Przeszkolona sztuczna inteligencja (Ai) została wykorzystana do rozpoznawania rzęsek, co pokazano na masce binarnej (cyjan). Maska binarna dla ciałka podstawnego (magenta) została wygenerowana poprzez progowanie w programie GA3. (B) Reprezentatywna intensywność skanu liniowego rzęski. (C) Intensywności ARL13B na końcach proksymalnych i dystalnych rzęsek zidentyfikowanych przez Ai, przedstawione jako średnia ± S.E.M. Końce proksymalne i dystalne zdefiniowano odpowiednio jako obszar w obrębie pierwszego 1 µm długości oraz ostatniego 1 µm długości od podstawy rzęski. Każda kropka reprezentuje jedną rzęskę. * p < 0.05. n = 6 rzęsek w ARC z 2 zwierząt i 21 rzęsek w PVN z 3 zwierząt. Paski skali 10 µm. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
Rycina uzupełniająca 1. Wykresy straty podczas trenowania AI. (A, B) Wykresy przedstawiające stratę podczas trenowania segment.ai odpowiednio na rzęskach neuronalnych in vitro oraz in vivo. Kliknij tutaj, aby pobrać ten plik.
Rycina uzupełniająca 2. Pomiary intensywności barwienia rzęsek wspomagane przez AI w rzęskach neuronalnych in vitro. (A, B) Reprezentatywne obrazy rzęsek (MCHR1, kolor czerwony) odpowiednio w pierwotnych kulturach podwzgórza i hipokampa. W programie NIS Elements wykorzystano wytrenowaną AI do rozpoznawania rzęsek, co przedstawiono na masce binarnej (kolor cyjan), a następnie użyto GA3 do pomiaru intensywności barwienia MCHR1 w rzęskach. Rozkład intensywności MCHR1 przedstawiono na wykresie jako procent rzęsek w przedziałach 1000 A.U. dla kultur podwzgórza i 2000 A.U. dla kultur hipokampa. n= 30 rzęsek w kulturach podwzgórza i 106 rzęsek w kulturach hipokampa z 3 zwierząt. Paski skali 10 µm. Kliknij tutaj, aby pobrać ten plik.
Rysunek uzupełniający 3. Ogólne receptury analizy 3 do analizy rzęsek. (A) Prosta receptura Ogólnej Analizy (GA3) do pomiaru długości rzęsek, intensywności i współczynnika Mandersa. (B) Złożona receptura GA3 do pomiaru intensywności wzdłuż długości rzęski przy użyciu markera ciałka podstawnego. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Pomiary długości i intensywności są powszechnymi sposobami analizy rzęsek pierwotnych, jednak nie ma ustandaryzowanej konwencjonalnej metody stosowanej w tej dziedzinie. Identyfikacja i kwantyfikacja rzęsek pierwotnych za pomocą oprogramowania takiego jak ImageJ jest czasochłonna i podatna na stronniczość i błędy użytkownika. Utrudnia to dokładną analizę dużych zbiorów danych. Tutaj pokazujemy, że użycie programu AI może przezwyciężyć wiele z tych wyzwań, dzięki czemu możliwa jest wysokoprzepustowa analiza rzęsek pierwotnych. W tym miejscu opisujemy procedurę trenowania aplikacji opartej na sztucznej inteligencji w celu rozpoznawania rzęsek pierwotnych i nakreślamy kroki wymagane do analizy długości i intensywności.
Podczas gdy wstępne szkolenie sztucznej inteligencji w rozpoznawaniu rzęsek wymaga od użytkownika znacznego czasu, po zakończeniu można je wykorzystać na dowolnym zestawie danych uzyskanych o tych samych parametrach. Maska binarna generowana przez sztuczną inteligencję jest modyfikowalna w taki sposób, że wszelkie błędy można poprawić. Jednak błędy w identyfikacji rzęsek powinny sygnalizować użytkownikowi, że sztuczna inteligencja musi być dalej trenowana za pomocą dodatkowych obrazów. Jedną z głównych zalet tej metody jest to, że sztuczną inteligencję można wytrenować do rozpoznawania rzęsek w różnych typach próbek zarówno w 2D, jak i 3D. Poprzednie metody analizy generowane w laboratoriach miały różne ograniczenia, w tym wymaganie ręcznego progowania w celu identyfikacji i problemy z identyfikacją rzęsek obrazowanych na podstawie odcinków tkanki, w których gęstość komórek jest wysoka 36,46,47. Metody te są również wyspecjalizowane w analizie rzęsek, podczas gdy analiza za pomocą oprogramowania NIS Elements może oceniać kilka aspektów obrazów jednocześnie. Ponieważ opisana tutaj sztuczna inteligencja jest częścią pakietu oprogramowania NIS Elements, obrazy uzyskane za pomocą mikroskopu firmy Nikon można łatwo kontynuować aż do analizy. Jednak obrazowanie za pomocą firmy Nikon nie jest wymagane do korzystania z tej metody. Niezależnie od przechwyconego formatu pliku danych surowych, pliki ".tif" mogą być otwierane przez NIS Elements w celu użycia w sztucznej inteligencji.
Ta aplikacja AI w ramach NIS Elements jest szeroko dostępna i prawdopodobnie jest już częścią oprogramowania do analizy obrazu używanego przez laboratoria badające pierwotne rzęski. Wraz z rozwojem technologii sztucznej inteligencji inne programy do obrazowania mogą rozszerzyć swoje opcje analizy o podobny moduł sztucznej inteligencji. Zastosowanie analizy Ai do identyfikacji rzęsek może być wykorzystane do kilku różnych aspektów analizy rzęsek. Chociaż przedstawiliśmy metody dla kilku prostych analiz, takich jak długość (Rysunek 2 i 3), intensywność (Rysunek 4) i kolokalizacja (Rysunek 5), bardziej wyrafinowaną analizę można dodać do przepływu pracy analizy GA3, jak na Rysunku 6. Na przykład, zamiast mierzyć intensywność całej rzęski, różnice w intensywności w podregionie rzęski mogą być interesujące dla oceny lokalizacji podrzęskowej. Różnice w intensywności w podregionie rzęski mogą wskazywać, że białko gromadzi się na czubku lub podstawie rzęski, na przykład w jaki sposób białka Gli są wzbogacane na końcu rzęski48. Ponadto ta aplikacja AI może być używana do łatwej identyfikacji różnic między genotypami lub grupami leczonymi. Chociaż nasze laboratorium wykorzystuje tę metodę głównie do analizy rzęsek zobrazowanych z wycinków mózgu lub kultur neuronalnych, można ją zastosować do obrazów uzyskanych z różnych linii komórkowych lub innych typów tkanek. Elastyczność typu próbki, do której można wykorzystać tę aplikację, sprawia, że ta metoda analizy jest cenna dla wielu różnych grup badających rzęski pierwotne lub dowolne dyskretne organelle, które są oceniane, takie jak mitochondria, jądro lub ER.
Oświadczenia
Współautor Wesley Lewis jest pracownikiem firmy Nikon. Nie ujawnia się żadnych informacji finansowych.
Podziękowania
Ta praca została sfinansowana przez National Institute of Diabetes and Digestive and Kidney Diseases R01 DK114008 dla NFB oraz American Heart Association Fellowship Grant #18PRE34020122 dla RB. Dziękujemy Richowi Gruskinowi, dyrektorowi generalnemu firmy Nikon Software, Melissie Bentley, Courtney Haycraft i Teresie Mastracci za wnikliwe komentarze na temat manuskryptu.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Intel Xeon, 3,6 GHz, 32 GB pamięci RAM | Intel Corporation | W-2123 | używany do uruchamiania NIS Elements. |
| Oprogramowanie Nikon Elements | Nikon Instruments Inc. | - | Oprogramowanie Ai i GA3 |
| Karta graficzna Quadro RTX 4000 NVIDIA | Corporation | Quadro RTX 4000 | |
| Windows 10 Professional 64-bit | Microsoft Inc. | - | System operacyjny używany do uruchamiania NIS |
| Elements Workstation | HP Development Company, L.P. | HP Stacja robocza Z4G4 | używana do uruchamiania elementów NIS |
Bibliografia
- Wang, L., et al. Ciliary gene RPGRIP1L is required for hypothalamic arcuate neuron development. JCI Insight. 4 (3), (2019).
- Siljee, J. E., et al. Subcellular localization of MC4R with ADCY3 at neuronal primary cilia underlies a common pathway for genetic predisposition to obesity. Nature Genetics. 50 (2), 180-185 (2018).
- Davenport, J. R., et al. Disruption of intraflagellar transport in adult mice leads to obesity and slow-onset cystic kidney disease. Current Biology. 17 (18), 1586-1594 (2007).
- Berbari, N. F., O'Connor, A. K., Haycraft, C. J., Yoder, B. K. The primary cilium as a complex signaling center. Current Biology. 19 (13), 526-535 (2009).
- Walz, G. Role of primary cilia in non-dividing and post-mitotic cells. Cell Tissue Research. 369 (1), 11-25 (2017).
- Nachury, M. V., Mick, D. U. Establishing and regulating the composition of cilia for signal transduction. Nature Reviews. Molecular Cell Biology. 20 (7), 389-405 (2019).
- Goetz, S. C., Anderson, K. V. The primary cilium: a signalling centre during vertebrate development. Nature Reviews Genetics. 11 (5), 331-344 (2010).
- Engle, S. E., Bansal, R., Antonellis, P. J., Berbari, N. F. Cilia signaling and obesity. Seminars in Cell and Developmental Biology. , (2020).
- Reiter, J. F., Leroux, M. R. Genes and molecular pathways underpinning ciliopathies. Nature reviews. Molecular Cell Biology. 18 (9), 533-547 (2017).
- Waters, A. M., Beales, P. L. Ciliopathies: an expanding disease spectrum. Pediatric Nephrology. 26 (7), Berlin, Germany. 1039-1056 (2011).
- Hildebrandt, F., Benzing, T., Katsanis, N. Ciliopathies. New England Journal of Medicine. 364 (16), 1533-1543 (2011).
- Vaisse, C., Reiter, J. F., Berbari, N. F. Cilia and Obesity. Cold Spring Harbor Perspectives in Biology. 9 (7), (2017).
- Berbari, N. F., et al. Leptin resistance is a secondary consequence of the obesity in ciliopathy mutant mice. Proceedings of the National Academy of Sciences of the United States of America. 110 (19), 7796-7801 (2013).
- Jacobs, D. T., et al. Dysfunction of intraflagellar transport-A causes hyperphagia-induced obesity and metabolic syndrome. Disease Models & Mechanisms. 9 (7), 789-798 (2016).
- Arsov, T., et al. Fat aussie--a new Alström syndrome mouse showing a critical role for ALMS1 in obesity, diabetes, and spermatogenesis. Molecular Endocrinology. 20 (7), 1610-1622 (2006).
- Tam, L. W., Ranum, P. T., Lefebvre, P. A. CDKL5 regulates flagellar length and localizes to the base of the flagella in Chlamydomonas. Molecular Biology of the Cell. 24 (5), 588-600 (2013).
- Rajagopalan, V., Subramanian, A., Wilkes, D. E., Pennock, D. G., Asai, D. J. Dynein-2 affects the regulation of ciliary length but is not required for ciliogenesis in Tetrahymena thermophila. Molecular Biology of the Cell. 20 (2), 708-720 (2009).
- Bengs, F., Scholz, A., Kuhn, D., Wiese, M. LmxMPK9, a mitogen-activated protein kinase homologue affects flagellar length in Leishmania mexicana. Molecular Microbiology. 55 (5), 1606-1615 (2005).
- Han, Y. M., et al. Leptin-promoted cilia assembly is critical for normal energy balance. Journal of Clinical Investigation. 124 (5), 2193-2197 (2014).
- Caspary, T., Marazziti, D., Berbari, N. F. Cilia: Methods and Protocols. Satir, P., Tvorup Christensen, S. , Springer. New York. 203-214 (2016).
- Bishop, G. A., Berbari, N. F., Lewis, J., Mykytyn, K. Type III adenylyl cyclase localizes to primary cilia throughout the adult mouse brain. Journal of Comparative Neurology. 505 (5), 562-571 (2007).
- Domire, J. S., Mykytyn, K. Markers for neuronal cilia. Methods in Cell Biology. 91, 111-121 (2009).
- Sun, J. S., et al. Ventromedial hypothalamic primary cilia control energy and skeletal homeostasis. Journal of Clinical Investigation. 131 (1), (2021).
- Berbari, N. F., Johnson, A. D., Lewis, J. S., Askwith, C. C., Mykytyn, K. Identification of ciliary localization sequences within the third intracellular loop of G protein-coupled receptors. Molecular Biology of the Cell. 19 (4), 1540-1547 (2008).
- Brailov, I., et al. Localization of 5-HT(6) receptors at the plasma membrane of neuronal cilia in the rat brain. Brain Research. 872 (1-2), 271-275 (2000).
- Domire, J. S., et al. Dopamine receptor 1 localizes to neuronal cilia in a dynamic process that requires the Bardet-Biedl syndrome proteins. Cellular and Molecular Life Sciences. 68 (17), 2951-2960 (2011).
- Handel, M., et al. Selective targeting of somatostatin receptor 3 to neuronal cilia. Neuroscience. 89 (3), 909-926 (1999).
- Koemeter-Cox, A. I., et al. Primary cilia enhance kisspeptin receptor signaling on gonadotropin-releasing hormone neurons. Proceedings of the National Academy of Sciences of the United States of America. 111 (28), 10335-10340 (2014).
- Mukhopadhyay, S., et al. The ciliary G-protein-coupled receptor Gpr161 negatively regulates the Sonic hedgehog pathway via cAMP signaling. Cell. 152 (1-2), 210-223 (2013).
- Berman, S. A., Wilson, N. F., Haas, N. A., Lefebvre, P. A. A novel MAP kinase regulates flagellar length in Chlamydomonas. Current Biology. 13 (13), 1145-1149 (2003).
- Nguyen, R. L., Tam, L. W., Lefebvre, P. A. The LF1 gene of Chlamydomonas reinhardtii encodes a novel protein required for flagellar length control. Genetics. 169 (3), 1415-1424 (2005).
- Tam, L. W., Wilson, N. F., Lefebvre, P. A. A CDK-related kinase regulates the length and assembly of flagella in Chlamydomonas. Journal of Cell Biology. 176 (6), 819-829 (2007).
- O'Connor, A. K., et al. An inducible CiliaGFP mouse model for in vivo visualization and analysis of cilia in live tissue. Cilia. 2 (1), 8(2013).
- Bangs, F. K., Schrode, N., Hadjantonakis, A. K., Anderson, K. V. Lineage specificity of primary cilia in the mouse embryo. Nature Cell Biology. 17 (2), 113-122 (2015).
- Delling, M., et al. Primary cilia are not calcium-responsive mechanosensors. Nature. 531 (7596), 656-660 (2016).
- Saggese, T., Young, A. A., Huang, C., Braeckmans, K., McGlashan, S. R. Development of a method for the measurement of primary cilia length in 3D. Cilia. 1 (1), 11(2012).
- Kobayashi, Y., Hamamoto, A., Saito, Y. Analysis of ciliary status via G-protein-coupled receptors localized on primary cilia. Microscopy. 69 (5), 277-285 (2020).
- Zhou, L. Q., et al. Artificial intelligence in medical imaging of the liver. World Journal of Gastroenterology. 25 (6), 672-682 (2019).
- Naugler, C., Church, D. L. Automation and artificial intelligence in the clinical laboratory. Critical Reviews in Clinical Laboratory Sciences. 56 (2), 98-110 (2019).
- Dunn, K. W., Kamocka, M. M., McDonald, J. H. A practical guide to evaluating colocalization in biological microscopy. American Journal of Physiology-Cell Physiology. 300 (4), 723-742 (2011).
- Bansal, R., et al. Hedgehog Pathway Activation Alters Ciliary Signaling in Primary Hypothalamic Cultures. Frontiers in Cellular Neuroscience. 13, 266(2019).
- Jin, H., et al. The conserved Bardet-Biedl syndrome proteins assemble a coat that traffics membrane proteins to cilia. Cell. 141 (7), 1208-1219 (2010).
- Liew, G. M., et al. The intraflagellar transport protein IFT27 promotes BBSome exit from cilia through the GTPase ARL6/BBS3. Developmental Cell. 31 (3), 265-278 (2014).
- Engle, S. E., et al. A CreER Mouse to Study Melanin Concentrating Hormone Signaling in the Developing Brain. Genesis. , (2018).
- Thorpe, S. D., et al. Reduced primary cilia length and altered Arl13b expression are associated with deregulated chondrocyte Hedgehog signaling in alkaptonuria. Journal of Cellular Physiology. 232 (9), 2407-2417 (2017).
- Lauring, M. C., et al. New software for automated cilia detection in cells (ACDC). Cilia. 8, 1(2019).
- Dummer, A., Poelma, C., DeRuiter, M. C., Goumans, M. J., Hierck, B. P. Measuring the primary cilium length: improved method for unbiased high-throughput analysis. Cilia. 5, 7(2016).
- Haycraft, C. J., et al. Gli2 and Gli3 localize to cilia and require the intraflagellar transport protein polaris for processing and function. PLoS Genetics. 1 (4), 53(2005).
Przedruki i uprawnienia
