Opisujemy technikę sekcji, która zachowuje architekturę połączenia nerwowo-mięśniowego i umożliwia szczegółowe badanie immunocytochemiczne neuronów ruchowych w nodze dorosłego Drosophila.
Artykuł metodologiczny
Rozwarstwienie i immunohistochemia dorosłej nogi Drosophila w celu wykrycia zmian w połączeniu nerwowo-mięśniowym dla zidentyfikowanego neuronu ruchowego
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Drosophila melanogaster reprezentuje genetycznie podatny model do badania struktury i funkcji neuronów oraz późniejszych zmian w stanach chorobowych. Dobrze scharakteryzowane larwalne połączenie nerwowo-mięśniowe jest często wykorzystywane do takich badań. Jednak szybki rozwój larwalny, po którym następuje histoliza mięśni i przebudowa układu nerwowego podczas metamorfozy, sprawia, że model ten jest problematyczny w badaniu powolnych, zależnych od wieku zmian zwyrodnieniowych, takich jak te występujące w stwardnieniu zanikowym bocznym. Alternatywnie, dorosłe muchy żyją 90 dni, a dorosła noga może być wykorzystana do badania zmian neuronów ruchowych w ciągu dorosłego życia za pomocą obrazowania fluorescencyjnego in vivo przez naskórek. W tym miejscu opisujemy technikę preparacji nóg w połączeniu z immunocytochemią, która pozwala na badanie zmian molekularnych w połączeniu nerwowo-mięśniowym zidentyfikowanych neuronów ruchowych nóg dorosłych. Techniki te można połączyć z niezliczonymi przeciwciałami znakującymi zarówno struktury przed-, jak i postsynaptyczne. Razem procedury te pozwalają na pełniejszą charakterystykę powolnych, zależnych od wieku zmian u dorosłych much i mogą być stosowane w wielu modelach chorób neuronu ruchowego.
Wprowadzenie
Choroby neuronów ruchowych (MN) obejmują grupę heterogenicznych schorzeń, których głównym fenotypem klinicznym jest postępująca degeneracja prowadząca do zaniku mięśni i porażenia1. Choć są one rzadkie, z globalną zapadalnością na poziomie 4,5 na 100 000 osób, oczekuje się, że wskaźnik ten wzrośnie wraz ze starzeniem się populacji2. Stwardnienie zanikowe boczne (ALS) jest najczęstszą chorobą neuronów ruchowych (MND) i zazwyczaj kończy się śmiercią w krótkim czasie od diagnozy, przy braku dostępnych obecnie terapii modyfikujących przebieg choroby3. Dla chorób MND charakterystyczna jest przedłużona faza presymptomatyczna, w której u pacjentów obserwuje się wczesne zmiany biomarkerów molekularnych oraz zmiany w obrazowaniu funkcjonalnym4. Wczesna patologia komórkowa w fazie presymptomatycznej jest również obserwowana w nie-ludzkich modelach chorób5,6,7,8. Badanie wczesnych zmian w złączu nerwowo-mięśniowym jest istotne dla zrozumienia patogenezy chorób MN i może pomóc w opracowaniu wczesnej diagnostyki oraz potencjalnych metod terapeutycznych.
W przypadku Drosophila istnieje bogaty zestaw narzędzi genetycznych i molekularnych pozwalających na analizę budowy i funkcji złącza nerwowo-mięśniowego (NMJ; patrz 9 w celu zapoznania się z przeglądem dobrze scharakteryzowanego NMJ larwalnego). Narzędzia te, w połączeniu z krótkim cyklem życia, sprawiają, że Drosophila jest doskonałym modelem do badania zmian neurodegeneracyjnych w NMJ. W szczególności neurony ruchowe (MNs) unerwiające mięśnie dorosłych osobników są obecne przez cały około 90-dniowy okres życia imago i podlegają naturalnym procesom starzenia10,11,12,13. Zatem dorosłe MNs dają możliwość badania powolnych zmian degeneracyjnych, w przeciwieństwie do NMJ larwalnych, które istnieją jedynie przez krótki okres około 1 tygodnia przed metamorfozą14,15.
W niniejszej pracy opisujemy procedurę sekcji umożliwiającą przeprowadzenie analizy immunocytochemicznej neuronów ruchowych (MNs) w odnóżu dorosłego osobnika. Każda odnóża dorosłego owada jest unerwiona przez około 50 MNs, które tworzą synapsy z powiązanymi mięśniami odnóża w celu umożliwienia lokomocji. Anatomia, fizjologia mechaniczna i neurobiologia odnóża zostały szczegółowo opisane16,17,18. Drzewa aksonalne MNs odnóży były wcześniej charakteryzowane poprzez obrazowanie przez kutykulę w populacjach komórek wypełnionych wstecznie lub znakowanych genetycznie przy użyciu dwuczęściowego systemu Gal4/UAS, a metody obrazowania zostały opublikowane wcześniej19. Przedstawione tutaj metody sekcji zachowują morfologię rozgałęzień aksonów i pozwalają na wykorzystanie szerokiego zakresu przeciwciał do znakowania różnych komponentów molekularnych złącza nerwowo-mięśniowego (NMJ). Nasze poprzednie prace koncentrowały się na projekcjach określonego MN w odnóżu metatorakalnym (3ciej), które unerwia mięsień dźwigacz goleni (tilm) i wykazuje spójne wzorce arboryzacji oraz liczbę butonów. Początkowo badaliśmy zależne od wieku zmiany u mutantów Drosophila superoxide dismutase 1 (dsod1) i stwierdziliśmy zmiany zgodne z demontażem NMJ20. Przedstawione metody sekcji stwarzają możliwość lepszej charakterystyki powolnych zmian degeneracyjnych w NMJ dla innych modeli ALS, podstawowych badań nad starzeniem się oraz innych chorób związanych z MN.
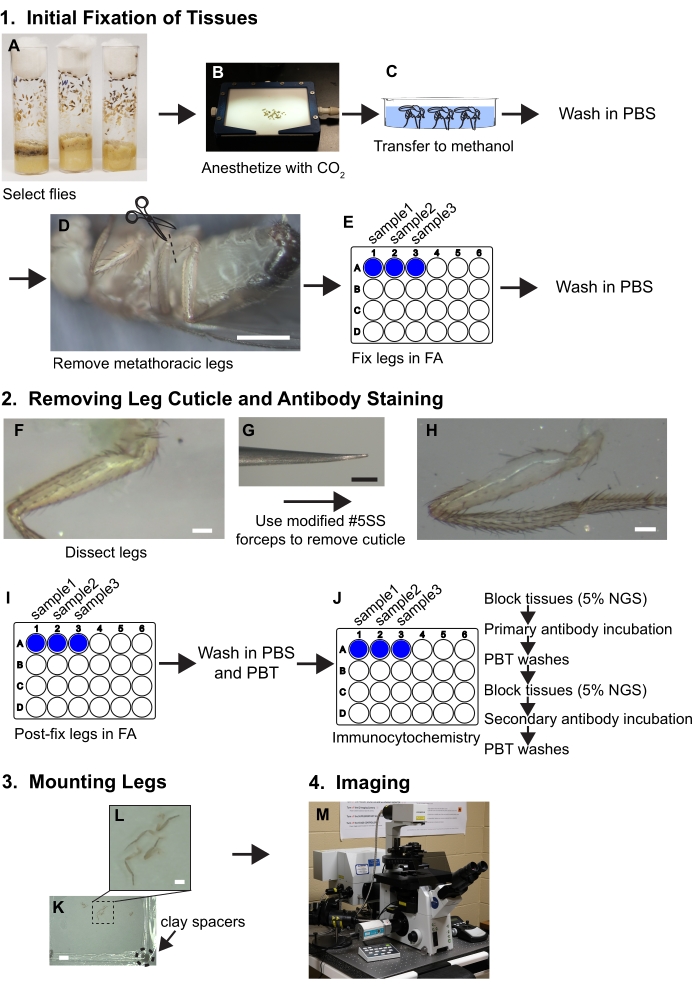
Rycina 1Podsumowanie procedury preparowania odnóży. Szczegółowe kroki znajdują się w protokole. (A, BMuchy są wyselekcjonowane i znieczulone.CMuchy przenosi się do metanolu i przemywa buforem PBS.D) Odcina się odnóża metatorakalne u podstawy koksy, obserwując je pod mikroskopem stereoskopowym (powiększenie ok. 30x); pasek skali = 500 μm. (ENastępnie kończyny utrwalono w 3,7% roztworze formaldehydu w PBS (FA) przez 30 minut w dołkach płytek 24-dołkowych, a następnie usunięto FA poprzez przemycie PBS.F, G, HOdnóża przenosi się do tacek sekcyjnych z elastomeru silikonowego, a następnie, przy użyciu pęsety ściętej i pod nadzorem mikroskopu sekcyjnego przy powiększeniu 80x, usuwa się fragment kutykuli z proksymalnej części uda; pasek skali = 50 μm. (IKonieczności po sekcji utrwala się w FA, a następnie przemywa w PBS, a potem w PBT (PBS + 0,1% niejonowego surfaktantu).J) Odnóża poddano barwieniu immunocytochemicznemu. (K,L) Odnóża przenosi się na szkiełko przedmiotowe, utrwala w medium montażowym i przykrywa szkiełkiem nakrywkowym z glinianymi dystansami; skala = 2 mm i 500 μm. (M) Odnóża obrazuje się za pomocą mikroskopii konfokalnej. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Protokół
Procedury przygotowania roztworów roboczych stosowanych w tym protokole opisano w Tabeli 1.
| Odczynnik | Przygotowanie | Przechowywanie | |||
| PBS | Przygotuj roztwór roboczy 1x PBS z roztworu stokowego 10x PBS poprzez rozcieńczenie w wodzie destylowanej. pH roztworu roboczego PBS powinno wynosić 7,2–7,4. | 4 °C przez ponad miesiąc, aż do momentu pojawienia się widocznego zanieczyszczenia bakteryjnego. | |||
| PBT | 1x roztwór PBS z 0,1% niejonowym surfaktantem. | 4 °C przez ponad miesiąc, aż do momentu, gdy widoczna będzie kontaminacja bakteryjna. | |||
| FA | 3,7% roztwór formaldehydu przygotowany z 37% roztworu zapasowego i rozcieńczony w 1x PBS. | Temperatura pokojowa. Przygotowywać świeże każdego dnia sekcji. | |||
| OSTROŻNIE: Formaldehyd dostarczany w postaci 37% roztworu stokowego jest potencjalnym kancerogenem i powinien być rozcieńczany w dygestorium. | |||||
| 5% NGS | 5% normalne surowica kozia rozcieńczona w PBT. Stosowana surowica powinna odpowiadać gatunkowi użytego przeciwciała wtórnego. | 4 °C przez kilka tygodni, aż do momentu pojawienia się widocznego zanieczyszczenia bakteryjnego | |||
Tabela 1. Roztwory do przeprowadzania immunocytochemii kończyny dorosłej muchy Drosophila.
1. Wstępna fiksacja tkanek
- Wybierz około 10 much dla każdego genotypu i wieku. Znieczul je na podkładce do much w atmosferze dwutlenku węgla (Ryc. 1A, B).
UWAGA: Rozpocznij od większej liczby much niż jest to konieczne, aby zapewnić odpowiednio dużą wielkość próby po sekcji. - Za pomocą pędzelka przenieś muchy do zimnego metanolu w szklanej studzience lub naczyniu na około 30 sekund do 1 minuty (Ryc. 1C). Metanol rozpuszcza węglowodory kutykularne, dzięki czemu muchy mogą teraz zatopić się, zamiast unosić na powierzchni roztworów wodnych.
- Za pomocą pęsety ostrożnie przenieś muchy do PBS. Przepłucz 3x w lodowatym PBS, aby usunąć nadmiar metanolu, i przechowuj muchy w PBS na lodzie do momentu sekcji i fiksacji. Na tym etapie dokonaj sekcji much i przeprowadź fiksację w jak najkrótszym czasie (<30 minut).
- Aby wyizolować odnóża, przenieś muchy do naczynia do sekcji z elastomeru silikonowego wypełnionego zimnym PBS, usuń odnóża metatorakalne na wysokości coxae za pomocą dwóch par pęset Dumont nr 5 lub odetnij odnóża nożyczkami Vanna (Ryc. 1D). Przenieś odnóża do studzienki plastikowej płytki 24-dołkowej wypełnionej 1 mL PBS i trzymaj płytkę na lodzie, aż wszystkie odnóża zostaną usunięte i przeniesione do studzienek.
UWAGA: Każda studzienka może pomieścić co najmniej 20 odnóży. - Zastąp roztwór PBS 1 mL roztworu FA i inkubuj na nutatorze przez 30 minut (Ryc. 1E). Nutator powinien być ustawiony na średnią prędkość (17 rpm). Upewnij się, że odnóża są całkowicie zanurzone w roztworze FA w tym czasie, aby zapewnić prawidłową fiksację.
- Aby usunąć roztwór FA, przemyj 3x szybko w 1 mL PBS, a następnie przeprowadź dodatkowe 3 płukania po 5 minut każde w 1 mL PBS. Przechowuj tkanki w 1 mL PBS na lodzie przed i podczas etapów sekcji opisanych poniżej.
2. Usuwanie kutykuli odnóża i barwienie przeciwciałami
- Usuwanie kutykuli odnóża
- Kluczem do sukcesu jest zastosowanie odpowiednich pęsety do sekcji. W końcówkach pęsety super-fine nr 5 należy wykonać lekkie równoległe zagięcia obu ramion, aby uzyskać skos, który pozwala na powierzchowne chwycenie kutykuli zamiast jej nakłuwania, co mogłoby uszkodzić tkankę (Rycina 1F, G).
UWAGA: Ramiona zagięte równolegle powinny stykać się ze sobą na całej swojej długości po zamknięciu (Rycina 2). - Przenieś odnóża do naczynia z elastomeru silikonowego z PBS w celu przeprowadzenia sekcji. Uorientuj odnóże tak, aby strona przednia była skierowana do góry (informacje o anatomii i orientacji odnóża znajdują się na Rycynie 3). Używając jednej pęsety, przytrzymaj segment goleni do naczynia z elastomeru silikonowego. Drugą pęsetą, trzymaną skosem do dołu, chwyć fragment kutykuli na dystalnym końcu uda i pociągnij w kierunku proksymalnym w stronę trochantera.
- Metodycznie usuwaj kutykulę, aż odsłonięty mięsień stanie się widoczny na całym proksymalnym końcu uda (Rycina 1F, G, H).
UWAGA: Aby uniknąć odrywania mięśni, kontakt z odnogami powinien być jedynie powierzchowny, z wykorzystaniem skosu pęsety. - Po zdysekowaniu wszystkich odnóży zastąp PBS roztworem FA, aby przeprowadzić post-fiksację odnóży przez 30 minut przy wstrząsaniu na nutatorze z prędkością średnią (Rycina 1I). Przepłucz próbki w 1 mL PBS trzykrotnie (szybkie płukanie), a następnie trzykrotnie przez 5 minut w PBT (Rycina 1J).
UWAGA: W przypadku barwienia przeciwciałem monoklonalnym NC82 (anty-bruchpilot) w celu znakowania stref aktywnych, post-fiksację należy skrócić do 20 minut, ponieważ antygen ten jest wrażliwy na dłuższe utrwalanie.
- Kluczem do sukcesu jest zastosowanie odpowiednich pęsety do sekcji. W końcówkach pęsety super-fine nr 5 należy wykonać lekkie równoległe zagięcia obu ramion, aby uzyskać skos, który pozwala na powierzchowne chwycenie kutykuli zamiast jej nakłuwania, co mogłoby uszkodzić tkankę (Rycina 1F, G).
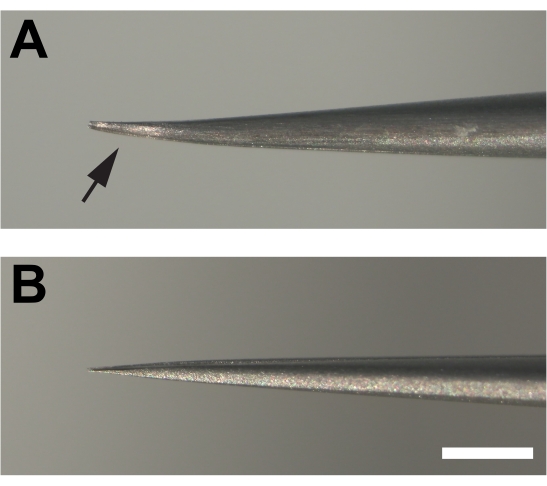
Rysunek 2Zmodyfikowane pincety używane do sekcji odnóży dorosłych osobników. (AKońce pęsety zostają zgięte, a następnie spłaszczone u dołu (strzałka), tworząc skos poprzez szlifowanie na kamieniu osełkowym.B) W przeciwieństwie do nich, ramiona niemodyfikowanej pęsety nie są wygięte. Pasek skali = 1 mm Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
- Barwienie przeciwciałami
- Aby zablokować tkanki przed barwieniem przeciwciałami, zastąp 1 mL PBT roztworem blokującym składającym się z 1 mL 5% NGS rozcieńczonego w PBT. Inkubuj wypreparowane odnóża przez 4 godziny w temperaturze pokojowej lub przez noc w temperaturze 4 °C, kołysząc na nutatorze z umiarkowaną prędkością (17 rpm). Podczas wszystkich inkubacji przykrywaj studzienki taśmą uszczelniającą oprócz plastikowej pokrywy (Rysunek 1J).
UWAGA: Do immunocytochemii stosuje się płytki 24-dołkowe zamiast mikroprobówek 1,5 mL lub 2 mL, ponieważ wcześniejsze próby wykorzystania probówek mikrocentryfużowych skutkowały złamaniem odnóży i uszkodzeniem tkanek. - Usuń roztwór blokujący i dodaj 300 mL przeciwciał pierwszorzędowych rozcieńczonych w świeżym roztworze blokującym. Mała objętość użytych przeciwciał powinna być wystarczająca do pokrycia tkanek. Ponownie uszczelnij studzienki laboratoryjną taśmą uszczelniającą oraz plastikową pokrywką i inkubuj przez noc w temperaturze 4 °C z wstrząsaniem na nutatorze z umiarkowaną prędkością (Rysunek 1J). Informacje o roboczych odczynnikach przeciwciał oraz stężeniach zastosowanych w tych badaniach opisano w Tabeli 2.
- Przemyj przeciwciała pierwszorzędowe w 1 mL PBT 3 razy krótko, a następnie 3 razy po 15 minut każde (Rysunek 1J).
UWAGA: Rozcieńczone przeciwciała pierwszorzędowe można przechowywać i wykorzystać ponownie, jeśli są przechowywane w temperaturze 4 °C przez maksymalnie 2 tygodnie. - Ponownie zablokuj tkanki w 1 mL 5% NGS przez co najmniej 2 godziny w temperaturze pokojowej lub przez noc w temperaturze 4 C (Rysunek 1J).
- Usuń 5% roztwór blokujący NGS i dodaj 300 µL odpowiednich rozcieńczonych fluorescencyjnych koniugowanych przeciwciał wtórnych. Dodatkowo dodaj rozcieńczenie 1:2000 faloidyny sprzężonej z fluoresceiną w celu znakowania mięśni (Rysunek 1J).
- W przypadku inkubacji z przeciwciałami wtórnymi uszczelnij studzienki laboratoryjną taśmą uszczelniającą i pokrywką. Dodatkowo owiń płytki folią aluminiową, aby chronić fluorofory przed światłem. Inkubuj przez 6-8 godzin w temperaturze pokojowej lub przez noc w temperaturze 4 °C.
- Przemyj przeciwciała wtórne i faloidynę zgodnie z opisem w kroku 2.2.3 powyżej. Pomiędzy płukaniami przykrywaj płytki folią aluminiową, aby chronić fluorofory przed światłem.
- Aby zablokować tkanki przed barwieniem przeciwciałami, zastąp 1 mL PBT roztworem blokującym składającym się z 1 mL 5% NGS rozcieńczonego w PBT. Inkubuj wypreparowane odnóża przez 4 godziny w temperaturze pokojowej lub przez noc w temperaturze 4 °C, kołysząc na nutatorze z umiarkowaną prędkością (17 rpm). Podczas wszystkich inkubacji przykrywaj studzienki taśmą uszczelniającą oprócz plastikowej pokrywy (Rysunek 1J).
3. Montaż nóg
- Za pomocą pęsety przenieś odnóża na szkiełko przedmiotowe, orientując je stroną przednią do góry. Przykryj odnóża medium montażowym (Rysunek 1K, L).
UWAGA: Wypreparowane odnóża można odessać końcówką pipety P1000, jeśli otwór dolny zostanie poszerzony poprzez przecięcie go żyletką. - Nałóż odstępniki z glinki na szkiełko nakrywkę o wymiarach 22x22 mm2 (grubość #1.5), przesuwając narożniki szkiełka po małej kulce glinki modelarskiej. W każdym narożniku powinna znaleźć się niewielka ilość glinki o grubości 1-2 mm (Rysunek 1K).
- Aby przykryć preparat, nałóż szkiełko nakrywkę tak, aby odstępniki z glinki były skierowane w stronę szkiełka przedmiotowego, a następnie ostrożnie dociśnij narożniki, aż szkiełko nakrywka ledwo dotknie powierzchni uda.
- Aby zapobiec odparowaniu, zabezpiecz krawędzie szkiełka nakrywki lakierem do paznokci i pozostaw do wyschnięcia w ciemnym miejscu (około 10 minut) przed przechowywaniem w temperaturze 4 °C do czasu wykonania obrazowania.
4. Obrazowanie
- Wykonaj obrazowanie za pomocą mikroskopu konfokalnego (Rycina 1M). Należy uwzględnić kanał światła przechodzącego, aby lepiej ocenić jakość preparacji; próbki z widocznymi uszkodzeniami włókien mięśniowych w obszarze zainteresowania powinny zostać odrzucone.
- Rozpocznij akwizycję stosów obrazów z (z-stacks) przy powiększeniu 20x, zoomie 2x i całkowitej głębokości obrazowania ~ 40 mm, co odpowiada grubości uda. W celu detekcji sygnału fluorescencyjnego wykonaj zdjęcia w rozdzielczości zgodnej z próbkowaniem Nyquista (stosujemy 1024 x 1024 piksele przy czasie przebywania (dwell setting) 8-10 μs/pixel). Natężenie sygnału powinno mieścić się w zakresie liniowym, co osiąga się poprzez regulację ustawień wzmocnienia wysokiego napięcia (high voltage gain). Po ustaleniu ustawień wzmocnienia dla serii próbek w ramach jednego eksperymentu nie należy ich zmieniać, aby umożliwić porównanie natężeń sygnałów między próbkami.
- Do obrazowania zakończeń synaptycznych (boutons) oraz innych struktur subkomórkowych wykonaj zdjęcia konfokalne przy powiększeniu ≥60x. Ustawienia detektora powinny mieścić się w zakresie liniowym, natomiast gęstość pikseli, ustawienia czasu przebywania oraz głębokość z powinny być zbliżone do parametrów stosowanych przy niższym powiększeniu (krok 4.1).
Wyniki
Rysunek 4 przedstawia reprezentatywny przykład odnóża metatorakalnego zabarwionego przeciwciałami anti-hrp, anti-dlg oraz falloidyną. W przypadku preparatów, w których usunięto kutykulę z proksymalnej części uda, stereotypowe drzewka neuronów będą widoczne w pobliżu ścięgna, które jest łatwo wykrywalne dzięki autofluorescencji. Należy zauważyć, że penetracja przeciwciał do wnętrza odnóża zachodzi na krótkim odcinku poza obszarem, w którym usunięto kutykulę (Rysunek 4A). Obszary te można skutecznie obrazować w obecności silnego sygnału fluorescencyjnego. Obrazowanie przy niskim powiększeniu (20x z zoomem 2x) pozwala na łatwe określenie: 1) jak dużo kutykuli zostało usunięte oraz 2) czy podczas preparowania doszło do uszkodzeń. Zwiększone powiększenie (60x) ukazuje stereotypowe projekcje na tilm (Rysunek 4B). Nasze prace skupiły się na jednym MN, prawdopodobnie pochodzącym z linii I- MN, które unerwiają tilm w proksymalnej części uda (ramka, Rysunek 4B i Rysunek 4C). Dalsze zwiększenie powiększenia (100x z zoomem 2x) umożliwia efektywną wizualizację butonów synaptycznych (Rysunek 4D).
Aby zbadać zmiany morfologiczne w dorosłym NMJ w czasie, wykorzystaliśmy wcześniej mutanty dsod1 jako model ALS. Obrzęk boutonów występuje u starszych mutantów dsod1H71Y w stosunku do dsod1null i dsod1+ (Rysunek 5A, B). W larwalnym NMJ do znakowania stref aktywnych często stosuje się przeciwciało monoklonalne NC82 i struktury te można łatwo zwizualizować w dorosłym NMJ (Rysunek 5C). Słabo dodatnie dla HRP rozgałęzienia aksonów są liczne u mutantów dsod1H71Y, a rozgałęzienia te często wykazują słabą i rozproszoną lokalizację BRP (strzałki).
Z uwagi na znaczenie w procesach neurodegeneracji, dostępne komercyjnie przeciwciała mogą wykrywać ubikwitynowane białka często występujące w agregatach; wykryliśmy ubikwitynowane agregaty w aksonach końcowych neuronów ruchowych u starych mutantów much dsod1 oraz w mięśniach (Rysunek 6A). Ponadto przeciwciała znakujące mitochondria mogą również wykrywać zmiany morfologiczne związane z wiekiem (Rysunek 6B).
W przypadku niektórych preparatów uszkodzenia mięśni podczas sekcji sprawiają, że próbka staje się bezużyteczna. Na początku takie uszkodzenia mogą występować często, lecz z praktyką ich liczba maleje. Przykłady prawidłowych sekcji przedstawiono na Rysunku 7A, C, natomiast nieprawidłowe sekcje pokazano na Rysunku 7B, D. Nieprawidłowe sekcje powodują dezorganizację włókien mięśniowych, co można wykryć za pomocą mikroskopii kontrastowej (Rysunek 7B), lub brak włókien mięśniowych widoczny po zastosowaniu falloidyny sprzężonej z fluorescencyjnym znacznikiem (Rysunek 7D, strzałka). Połączenie znakowania mięśni falloidyną oraz obrazowania w świetle przechodzącym pozwala wykryć takie uszkodzenia mięśni, które mogą nie być widoczne podczas obserwacji pod mikroskopem stereowym.
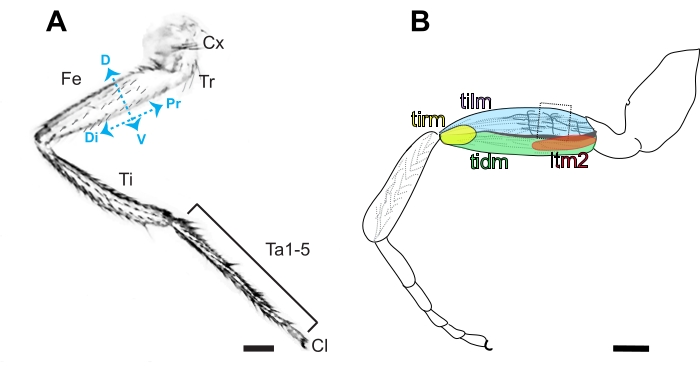
Rycina 3. Anatomia nogi Drosophila. (A) Schemat przedniej strony nogi metatorakalnej, charakteryzującej się obecnością szczecinek w przeciwieństwie do wyraźnej gładkiej kutykuli występującej po stronie tylnej. Segmentowana noga składa się z koksy (Cx), trochantera (Tr), uda (Fe), goleni (Ti), 5 segmentów nadgarstka (Ta1-5) oraz pazura (Cl), w kolejności od strony proksymalnej (Pr) do dystalnej (Di). Wskazano również strony grzbietową (D) i brzuszną (V) uda. Pasek skali = 100 μm. (B) Schemat uda zawierający mięsień dźwigacz goleni (tilm), mięsień obniżacz goleni (tidm), długi mięsień ścięgnisty 2 (ltm2) oraz mięśnie reduktora goleni (tirm) oraz projekcje aksonalne w proksymalnej części uda unerwiające tilm. Przyjmuje się, że te stereotypowe projekcje aksonalne pochodzą z neuroblastów linii I16, a druga arboryzacja jest najłatwiejsza do uzyskania poprzez dysekcję (obramowana). Pasek skali = 100 μm. Aby zobaczyć powiększoną wersję tej ryciny, kliknij tutaj.
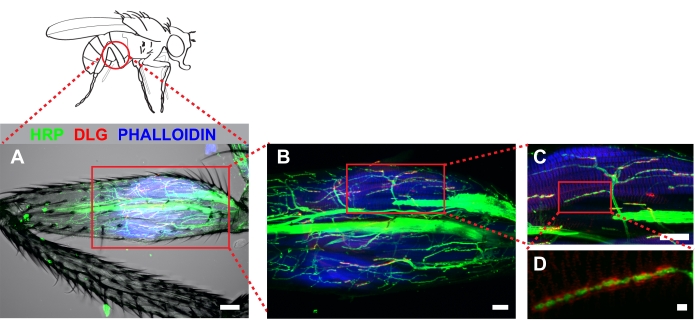
Rysunek 4. Przekrój uda metatorakalnego ujawnił stereotypową architekturę MN unerwiającą tilm. Do znakowania neuronów (HRP), białka discs-large (DLG) oraz mięśni (faloidyna) wykorzystano immunocytochemię. Serie obrazów Z-stack uzyskano za pomocą mikroskopii konfokalnej w obrębie całego uda, a następnie przedstawiono jako projekcję maksymalnej intensywności. (A) Uwzględniono również kanał światła przechodzącego, aby wykazać brak widocznych uszkodzeń mięśni podczas sekcji. Obraz wykonano przy powiększeniu 20x, pasek skali = 50 μm. (B) Zidentyfikowane arboryzacje związane z tilm (obszar w ramce, środek), pasek skali = 20 μm; oraz (C) przy powiększeniu 60x, pasek skali = 20 μm. (D) DLG otaczające butony były widoczne u zwierząt typu dzikiego przy powiększeniu 100x z zoomem 2x; pasek skali = 2 μm Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
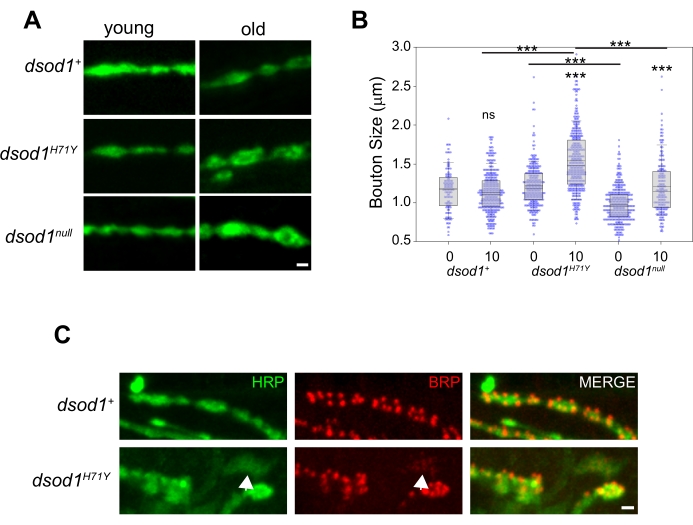
Rycina 5. Przykład zmian w morfologii boutonów zależnych od wieku, które można wykryć za pomocą techniki dyssekcji odnóży. Pęcznienie boutonów jest widoczne u starszych mutantów dsod1H71Y. (A) Reprezentatywne obrazy boutonów barwionych HRP u młodych (nowo wyklutych, dorosłych w dniu 0.) i starych (dzień 10.) much, pasek skali = 1 μm. (B) Rozmiary boutonów dla poszczególnych genotypów ilościowo określono przy użyciu funkcji pomiaru w programie ImageJ. ***p<0.0001 (2-drogowa ANOVA z testem post-hoc Tukeya). (C) Strefy aktywne w boutonach synaptycznych znakowane przeciwciałem monoklonalnym NC82 (anty-bruchpilot); pasek skali = 1 μm. Rycina zmodyfikowana z20 Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
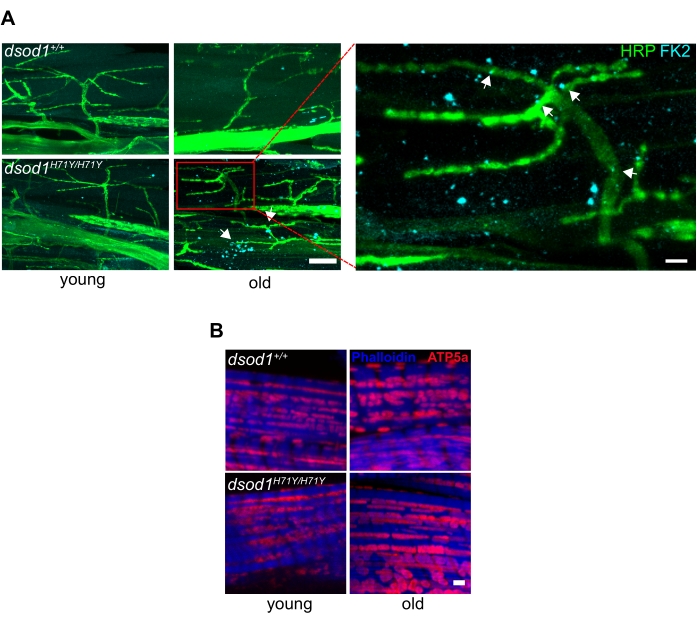
Rycina 6. Typowe markery związane z chorobami neurodegeneracyjnymi stosowane w preparatach odnóży Drosophila. (A) Subkomórkowe agregaty poliubikwitynowane są wykrywane w aksonach terminalnych i mięśniach starych much dsod1H71Y. Immunocytochemia z użyciem przeciwciał anty-poliubikwityna (FK2) wykazuje punkty (strzałki) u starych dsod1H71Y/H71Y, pasek skali = 20 μm (lewo) i 5 μm (prawo). (B) Obrzęknięte mitochondria można wykryć przy użyciu anty-ATP5A, pasek skali = 1 μm. Rycina zmodyfikowana na podstawie20 Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rysunek 7. Przykłady prawidłowych i nieprawidłowych preparatów po sekcji. (A) Sekcja, która nie naruszyła architektury mięśni podścielnych. (B) Przykład nieprawidłowej sekcji, w której widoczne są poszarpane włókna mięśniowe (strzałka), co uniemożliwiło przeprowadzenie analizy. Obie próbki obrazowano za pomocą mikroskopii fazokontrastowej. Pasek skali = 50 μm. (C) Przykład prawidłowej sekcji obrazowanej za pomocą mikroskopii konfokalnej z użyciem HRP (zielony) i falloidyny (niebieski). (D) Nieprawidłowa sekcja z brakiem grzbietowych włókien mięśniowych TILM (strzałka). Pasek skali = 50 μm Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Przeciwciało/Barwnik | Rozcieńczanie |
| anty-ATP5A | 1:500 |
| Anti-bruchpilot (nc82) | 1:20 |
| Przeciwciało przeciwko białku z motywem cysteinowym (ab49) | 1:50 |
| Przeciwciała antydyskalne duże (4F3) | 1:200 |
| Przeciwciało anty-HRP | 1:550 |
| Przeciwciało przeciwko poliubikwitynie (FK2) | 1:1000 |
| Anti-repo (8D12) | 1:5 |
| Przeciwciało wtórne kozie anty-mysie | 1:800 |
| Faloidyna | 1:2000 |
| Rozcieńczyć w 5% NGS |
Tabela 2. Przeciwciała i rozcieńczenia. Komercyjni dostawcy przeciwciał wykorzystanych w tych badaniach są wymienieni w liście materiałów.
Dyskusja
Dorosła noga Drosophila jest idealnym modelem do badania neurodegeneracji, biorąc pod uwagę względną prostotę, z dobrze scharakteryzowanymi MN zmapowanymi z linii neuroblastów i stereotypowymi wzorcami arboryzacji. W kilku raportach wcześniej wykorzystano MN nóg do badania chorób neurodegeneracyjnych21,22. W badaniach tych wykorzystano linie wyrażające GFP w połączeniu z analizą mozaiki z represyjnym markerem komórkowym (MARCM) do obrazowania przez naskórek i udokumentowania szeregu zmian morfologicznych. Obrazowanie dorosłych NMJ za pomocą immunocytochemii z wyciętym naskórkiem umożliwia dalszą charakterystykę z możliwością śledzenia złożonych zmian molekularnych przy użyciu zestawu dostępnych przeciwciał.
Część immunocytochemiczna tego protokołu jest stosunkowo standardowa i może być stosowana niezależnie od genotypu (patrz23 w celu uzyskania doskonałego opisu ogólnych metod barwienia przeciwciał do stosowania w przypadku Drosophila). Ponadto parametry takie jak intensywność fluorescencji, długość gałęzi aksonu oraz liczba i rozmiar butonów mogą być określone za pomocą różnych dostępnych makr ImageJ po przechwyceniu obrazów i opublikowaniu szczegółowych metod analizy ilościowej (na przykład patrz 24,25,26). Tak więc technika preparacji jest główną opisywaną tutaj innowacją. Przed preparacją muchy zanurza się w alkoholu w celu usunięcia węglowodorów kutykularnych. W tym celu powszechnie stosuje się zarówno etanol, jak i metanol; Użyliśmy jednak tylko metanolu. Kluczowe znaczenie dla powodzenia sekcji ma kilka czynników: Po pierwsze, użycie zmodyfikowanych kleszczy ze skosem pozwala na bardzo powierzchowny kontakt z naskórkiem. Po drugie, za pomocą mikroskopu preparacyjnego zdolnego do całkowitego powiększenia 60-100x, tak aby powierzchnia naskórka była wyraźnie widoczna. W przypadku mikroskopów o mniejszym maksymalnym powiększeniu dostępne są obiektywy 2x dla większości popularnych marek i powinny być wystarczające w połączeniu z istniejącymi obiektywami. Po trzecie, początkowy etap mocowania sprawia, że naskórek jest kruchy i łatwiejszy do oderwania bez uszkadzania mięśni pod spodem. Nadmierna fiksacja na tym etapie sprawia, że cała noga jest zbyt sztywna, aby można ją było skutecznie rozwarstwić. Dlatego początkowa fiksacja powinna być ograniczona do 30 minut. Utrwalacz formaldehydu nie wniknie wystarczająco mocno, aby skutecznie usieciować leżącą pod spodem tkankę w tym krótkim okresie, dlatego konieczny jest drugi etap utrwalania. Przed drugim utrwaleniem tkanki powinny być trzymane na lodzie, aby zapobiec degradacji i zmianom morfologii. Po czwarte, odkryliśmy, że preparowanie próbek, chociaż jest zimne, jest również ważne, prawdopodobnie z podobnych powodów, ponieważ naskórek jest kruchy, a mały kawałek można łatwiej usunąć.
Po nabraniu wprawy okazuje się, że ~50% rozwarstwień będzie można wykorzystać bez zauważalnego uszkodzenia tkanki. Chociaż odsetek ten może wydawać się niski w porównaniu z niektórymi innymi tkankami, procedura preparowania jest szybka, a wiele nóg można przetworzyć w ciągu 30-60 minut. Dlatego, nawet jeśli początkowo wskaźniki sukcesu są niskie, możliwe jest uzyskanie 4-5 dobrych próbek dla każdej grupy eksperymentalnej. Ograniczeniem może być jednak liczba much dostępnych w danym momencie, jeśli genotypy i/lub wiek skutkują znaczną śmiertelnością.
Kolejnym ograniczeniem jest to, że ze względu na rozmiar nie byliśmy w stanie wypreparować innych obszarów nogi poza bliższym obszarem kości udowej. W ten sposób możemy badać zidentyfikowane altany MN niezawodnie unerwiające TILM i możliwe jest wypreparowanie naskórka powyżej mięśnia depresyjnego piszczeli z niewielkimi zmianami w orientacji nogi podczas preparacji. Jednak dostęp do innych obszarów nogi okazał się trudniejszy bez naruszenia architektury aksonalnej podczas sekcji.
W tym miejscu przedstawiono metody preparacji w celu wykrycia zmian w dorosłym NMJ dla zdefiniowanych MN unerwiających tilm za pomocą immunocytochemii. Noga jest przydatna jako prosty system, unerwiony przez zaledwie ~50 MN i zawierający 14 mięśni o dobrze opisanej anatomii. Wypreparowany preparat nóg może być stosowany w różnych genotypach, a zestaw przeciwciał jest dostępny do wizualizacji NMJ bez konieczności budowania genotypowo złożonych zapasów konstruktów genów reporterowych w zmutowanym tle. Podejście to umożliwi bardziej szczegółową charakterystykę zmian w NMJ w przypadku chorób MN i innych schorzeń związanych z wiekiem.
Oświadczenia
Autorzy deklarują brak konfliktu interesów.
Podziękowania
Dziękujemy Ericowi Robertsowi za radę dotyczącą obrazowania. Pragniemy również podziękować Działowi Obsługi Technologii Informatycznych w Rhode Island College, a w szczególności Michaelowi Caine'owi i Jake'owi Douglasowi za filmowanie. Przeciwciała monoklonalne anty-dlg i anty-brp zostały opracowane odpowiednio przez UC-Berkeley i Universitaetsklinikim Wuerzburg i uzyskano je z Developmental Studies Hybridoma Bank, utworzonego przez NICHD NIH i utrzymywanego na Uniwersytecie Iowa, Wydział Biologii, Iowa City, IA 52242, USA. Opisane tutaj badania były w pełni wspierane przez Rhode Island Institutional Development Award (IDeA) Network of Biomedical Research Excellence z National Institute of General Medical Sciences of the National Institutes of Health w ramach grantu numer [P20GM103430].
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 10x sól fizjologiczna buforowana fosforanami | Fisher Scientific | BP3991 | |
| 24-dołkowe płytki | Corning | 3473 | Hydrofobowa, bardzo niska powierzchnia mocowania |
| 2x akcesorium do obiektywu | Olympus | 110AL2X | Nasadka przykręcana |
| Przeciwciało pierwotne anty-ATP5A | Abcam | ab14748 | Mysie monoklonalne |
| przeciwciało | pierwotne anty-bruchpilotBadania rozwojowe Hybridoma Bank | nc82 | Mysie monoklonalne |
| przeciwciało anty-krążkowe duże pierwotne | Badania rozwojowe Hybridoma Bank | 4F3 | Mysie monoklonalne |
| przeciwciało pierwszorzędowe anty-hrp | Jackson Immuno Research | 123-605-021 | Alexa Fluor 647 sprzężone poliklonalne |
| przeciwciało pierwotne anty-poliubikwityny (FK2) | Millipore Sigma | 04-263 | Mysz monoklonalna |
| Mikroskop konfokalny | Olympus | FV1000 | Obiektywy (NA): 10x (0,4), 20x (0,85), 40x (1,20), 60x (1,42), 100x (1,40) |
| Szkiełka nakrywkowe | Corning | 285022 | grubości 160-190 mm |
| Kleszcze preparacyjne | Fine Science Tools | 11252-00 | Dumont #5SF |
| Mikroskop preparacyjny | Olympus | SZ61 | |
| Formaldehyd | Fisher Scientific | BP531-500 | 37% zapasu stabilizowanego metanolem |
| Kozie przeciwciało wtórne przeciwko myszom | Jackson Immuno Research | 115-545-146 | Alexa Fluor 488 sprzężona |
| surowica kozia | Novus Biologicals | NB036768 | filtrowana 0,2 mm |
| Laboratoryjna taśma uszczelniająca | Fisher Scientific | 03-448-254 | Parafilm M |
| Metanol Fisher Scientific | A413 | ||
| Fisher Scientific | 12-550-123 | 76mm x 25mm | |
| Nośniki montażowe | Sondy molekularne | S36972 | Slowfade Diamentowe media montażowe |
| Niejonowy środek powierzchniowo czynny | Acros Organics | 215680010 | Triton-X 100 |
| Nutator | Fisher Scientific | S06622 | |
| Phalloidin | Invitrogen | A34055 | Alexa Fluor 555- sprzężony |
| Kamień do ostrzenia | Fine Science Tools | 29008-01 | |
| Elastomer | silikonowy Mikroskopia elektronowa Nauki | 2423610 | Sylgard 184 |
Bibliografia
- McDermott, C. J., Shaw, P. J. Diagnosis and management of motor neurone disease. BMJ. 336 (7645), 658-662 (2008).
- Global Collaborators, G. B. D. M. N. D. Global, regional, and national burden of motor neuron diseases 1990-2016: a systematic analysis for the Global Burden of Disease Study 2016. Lancet Neurology. 17 (12), 1083-1097 (2018).
- Foster, L. A., Salajegheh, M. K. Motor Neuron Disease: Pathophysiology, Diagnosis, and Management. American Journal of Medicine. 132 (1), 32-37 (2019).
- Bede, P., Pradat, P. F. Editorial: Biomarkers and Clinical Indicators in Motor Neuron Disease. Frontiers in Neurology. 10, 1318(2019).
- Clark, J. A., Southam, K. A., Blizzard, C. A., King, A. E., Dickson, T. C. Axonal degeneration, distal collateral branching and neuromuscular junction architecture alterations occur prior to symptom onset in the SOD1(G93A) mouse model of amyotrophic lateral sclerosis. Journal of Chemical Neuroanatomy. 76, 35-47 (2016).
- Martineau, E., Di Polo, A., Van de Velde, C., Robitaille, R. Dynamic neuromuscular remodeling precedes motor-unit loss in a mouse model of ALS. Elife. 7, (2018).
- Shahidullah, M., et al. Defects in synapse structure and function precede motor neuron degeneration in Drosophila models of FUS-related ALS. Journal of Neuroscience. 33 (50), 19590-19598 (2013).
- Tremblay, E., Martineau, E., Robitaille, R. Opposite Synaptic Alterations at the Neuromuscular Junction in an ALS Mouse Model: When Motor Units Matter. Journal of Neuroscience. 37 (37), 8901-8918 (2017).
- Harris, K. P., Littleton, J. T. Transmission, Development, and Plasticity of Synapses. Genetics. 201 (2), 345-375 (2015).
- Beramendi, A., Peron, S., Casanova, G., Reggiani, C., Cantera, R. Neuromuscular junction in abdominal muscles of Drosophila melanogaster during adulthood and aging. Journal of Comparative Neurology. 501 (4), 498-508 (2007).
- Banerjee, S., et al. Miniature neurotransmission is required to maintain Drosophila synaptic structures during ageing. Nature Communications. 12 (1), 4399(2021).
- Liao, S., Broughton, S., Nassel, D. R. Behavioral Senescence and Aging-Related Changes in Motor Neurons and Brain Neuromodulator Levels Are Ameliorated by Lifespan-Extending Reproductive Dormancy in Drosophila. Frontiers in Cellular Neuroscience. 11, 111(2017).
- Mahoney, R. E., Rawson, J. M., Eaton, B. A. An age-dependent change in the set point of synaptic homeostasis. Journal of Neuroscience. 34 (6), 2111-2119 (2014).
- Fernandes, J. J., Keshishian, H. Development of the adult neuromuscular system. International Review of Neurobiology. 43, 221-239 (1999).
- Truman, J. W. Metamorphosis of the central nervous system of Drosophila. Journal of Neurobiology. 21 (7), 1072-1084 (1990).
- Baek, M., Mann, R. S. Lineage and birth date specify motor neuron targeting and dendritic architecture in adult Drosophila. Journal of Neuroscience. 29 (21), 6904-6916 (2009).
- Enriquez, J., et al. Specification of individual adult motor neuron morphologies by combinatorial transcription factor codes. Neuron. 86 (4), 955-970 (2015).
- Soler, C., Daczewska, M., Da Ponte, J. P., Dastugue, B., Jagla, K. Coordinated development of muscles and tendons of the Drosophila leg. Development. 131 (24), 6041-6051 (2004).
- Guan, W., Venkatasubramanian, L., Baek, M., Mann, R. S., Enriquez, J. Visualize Drosophila Leg Motor Neuron Axons Through the Adult Cuticle. Journal of Visualized Experiments. (140), e58365(2018).
- Agudelo, A., et al. Age-dependent degeneration of an identified adult leg motor neuron in a Drosophila SOD1 model of ALS. Biology Open. 9 (10), (2020).
- Fernius, J., Starkenberg, A., Thor, S. Bar-coding neurodegeneration: identifying subcellular effects of human neurodegenerative disease proteins using Drosophila leg neurons. Disease Models & Mechanisms. 10 (8), 1027-1038 (2017).
- Sreedharan, J., Neukomm, L. J., Brown, R. H., Freeman, M. R. Age-Dependent TDP-43-Mediated Motor Neuron Degeneration Requires GSK3, hat-trick, and xmas-2. Current Biology. 25 (16), 2130-2136 (2015).
- Patel, N. H. Imaging neuronal subsets and other cell types in whole-mount Drosophila embryos and larvae using antibody probes. Methods in Cell Biology. 44, 445-487 (1994).
- Guirado, R., Carceller, H., Castillo-Gomez, E., Castren, E., Nacher, J. Automated analysis of images for molecular quantification in immunohistochemistry. Heliyon. 4 (6), 00669(2018).
- Castells-Nobau, A., et al. Two Algorithms for High-throughput and Multi-parametric Quantification of Drosophila Neuromuscular Junction Morphology. Journal of Visualized Experiments. (123), e55395(2017).
- Brown, J. R., Phongthachit, C., Sulkowski, M. J. Immunofluorescence and image analysis pipeline for Drosophila motor neurons. Biology Methods and Protocols. 4 (1), (2019).
Przedruki i uprawnienia
