Ten protokół opisuje metodę analizy morfometrycznej połączeń nerwowo-mięśniowych za pomocą połączonej mikroskopii konfokalnej i STED, która jest używana do ilościowego określania zmian patologicznych w mysich modelach SMA i CMS związanych z ColQ.
Artykuł metodologiczny
Charakterystyka połączeń nerwowo-mięśniowych u myszy za pomocą połączonej mikroskopii konfokalnej i superrozdzielczej
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Połączenia nerwowo-mięśniowe (NMJ) to wysoce wyspecjalizowane synapsy między dolnymi neuronami ruchowymi a włóknami mięśni szkieletowych, które odgrywają istotną rolę w przekazywaniu cząsteczek z układu nerwowego do mięśni dobrowolnych, prowadząc do skurczu. Są one dotknięte wieloma chorobami ludzkimi, w tym dziedzicznymi zaburzeniami nerwowo-mięśniowymi, takimi jak dystrofia mięśniowa Duchenne'a (DMD), wrodzone zespoły miasteniczne (CMS), rdzeniowy zanik mięśni (SMA) i stwardnienie zanikowe boczne (ALS). Dlatego monitorowanie morfologii połączeń nerwowo-mięśniowych i ich zmian w mysich modelach choroby stanowi cenne narzędzie do badań patologicznych i przedklinicznej oceny podejść terapeutycznych. W tym miejscu opisano metody znakowania i analizy trójwymiarowej (3D) morfologii pre- i postsynaptycznych części motorycznych płytek końcowych z mysich drażnionych włókien mięśniowych. Szczegółowo opisano procedury przygotowywania próbek i pomiaru objętości NMJ, powierzchni, krętości i morfologii/zajętości końcówek aksonów za pomocą obrazowania konfokalnego oraz odległości między postsynaptykalnymi fałdami połączeniowymi a szerokością pasma receptora acetylocholiny (AChR) za pomocą mikroskopii STED (Authorized emission depletion) o wysokiej rozdzielczości. Zmiany w tych parametrach NMJ są zilustrowane u zmutowanych myszy dotkniętych SMA i CMS.
Wprowadzenie
Połączenie nerwowo-mięśniowe (NMJ) to złożona struktura składająca się z zakończenia aksonu ruchowego, perisynaptycznej komórki Schwanna i części szkieletu włókna mięśniowego zaangażowanej w przekazywanie informacji chemicznej i sprzężenie aktywności dolnego neuronu ruchowego ze skurczem mięśni. U ssaków morfologia połączenia nerwowo-mięśniowego zmienia się podczas rozwoju, przyjmując typowy kształt podobny do precla po osiągnięciu dojrzałości, z różnicami w kształcie i złożoności między gatunkami, i wykazuje pewien stopień plastyczności w odpowiedzi na procesy fizjologiczne, takie jak ćwiczenia lub starzenie się1,2,3,4. Postsynaptyczna płytka końcowa silnika tworzy wgłębienia błonowe zwane fałdami połączeniowymi, gdzie górna część zawierająca receptory acetylocholiny (AChR) jest w bliskim kontakcie z presynaptyczną końcową gałęzią aksonu5.
Zmiany morfologiczne i funkcjonalne w połączeniach nerwowo-mięśniowych przyczyniają się do patofizjologii wielu zaburzeń neurodegeneracyjnych, takich jak rdzeniowy zanik mięśni (SMA) i stwardnienie zanikowe boczne (ALS), miopatie takie jak dystrofia mięśniowa Duchenne'a (DMD), wrodzone zespoły miasteniczne (CMS), miastenia (MG) i miopatie centronuklearne (CNM) oraz sarkopenia związana ze starzeniem się3,6,7,8,9,10,11,12. W tych chorobach obserwuje się zmiany strukturalne NMJ, takie jak fragmentacja płytki końcowej, zmniejszony rozmiar postsynaptycznego fałdu połączeniowego i/lub odnerwienie. Patologia NMJ może być pierwotnym lub wczesnym zdarzeniem podczas progresji choroby lub pojawić się ostatnio jako zdarzenie wtórne przyczyniające się do objawów klinicznych. W każdym razie monitorowanie morfologii NMJ w modelach zwierzęcych tych chorób stanowi cenny parametr do badania zmian patologicznych i oceny skuteczności potencjalnych metod leczenia.
Morfologia połączeń nerwowo-mięśniowych jest zazwyczaj analizowana za pomocą technik wykorzystujących mikroskopię konfokalną2,13,14,15 lub mikroskopia elektronowa5,16, z ich nieodłącznymi ograniczeniami, takimi jak rozdzielczość lub trudności techniczne. Ostatnio mikroskopia superrozdzielcza została również wykorzystana do wizualizacji poszczególnych regionów NMJ, takich jak presynaptyczne strefy aktywne lub rozkład AChR na błonie postsynaptycznej16,17,18, jako alternatywne lub uzupełniające podejście do analizy ultrastrukturalnej za pomocą mikroskopii elektronowej.
Ten protokół ma na celu dostarczenie szczegółowej i powtarzalnej metody oceny parametrów morfologicznych NMJ poprzez połączenie fluorescencji konfokalnej i mikroskopii STED (Stimulated emission depletion). Ważne cechy presynaptycznych i postsynaptycznych płytek końcowych, takie jak objętość, obszar, względna krętość, szerokość paska AChR i dystrybucja końców aksonów w unerwionych drażnionych włóknach mięśniowych mięśnia brzuchatego łydki myszy i piszczela przedniego, określono ilościowo w kontekście normalnych i chorobowych stanów. W szczególności defekty NMJ zostały zilustrowane w mysim modelu rdzeniowego zaniku mięśni Smn2B/-, choroby nerwowo-mięśniowej ze zwyrodnieniem neuronu ruchowego spowodowanym mutacjami w genie SMN111,19, oraz w podjednostce ogonowej podobnej do kolagenu myszy z asymetrycznym nokautem acetylocholinoesterazy (ColQDex2/Dex2 lub ColQ-KO), jako model wrodzonego zespołu miastenicznego20,21,22.
Protokół
Opieka i manipulacje z myszami były przeprowadzane zgodnie z krajowym i europejskim prawodawstwem dotyczącym eksperymentów na zwierzętach i zostały zatwierdzone przez instytucjonalną komisję etyczną. W badaniu wykorzystano samce i samice myszy Smn2B/- (tło C57Bl/6J) oraz ColQDex2/Dex2 (tło B6D2F1/J) w wieku odpowiednio 3 i 6 tygodni.
1. Eutanazja myszy i wyobcowanie mięśni: tibialis anterior oraz gastrocnemius
- Przeprowadzić znieczulenie myszy poprzez doszpikowe wstrzyknięcie mieszanego roztworu ketaminy (87,5 mg/kg) i ksylazyny (12,5 mg/kg) (0,1 mL/20 g masy ciała) przed utylizacją poprzez zwichnięcie szyi.
UWAGA: Ponieważ SMA i ColQ-CMS dotykają osobników niezależnie od ich płci, w niniejszym protokole zastosowano myszy samce i samice. - Usunąć owłosienie kończyn tylnych za pomocą małej golarki elektrycznej i opłukać nogi 70% etanolem.
UWAGA: Procedura sekcji będzie różnić się dla każdego mięśnia. W celu wycięcia mięśnia piszczelowego przedniego (tibialis anterior , TA) należy wykonać kroki 1.2.1-1.2.3, a dla mięśnia brzuchatego łydki (gastrocnemius , GA) (części przyśrodkowej i bocznej) kroki 1.2.4-1.2.6. Z mięśniami należy obchodzić się delikatnie, aby zapobiec uszkodzeniu tkanek oraz ich zmiażdżeniu lub rozciągnięciu podczas sekcji.- Umieścić mysz w pozycji na plecach.
- Za pomocą ostrych nożyczek chirurgicznych wykonać nacięcie skóry o długości 5 mm wzdłuż przednio-zewnętrznej części dystalnej kończyny tylnej, równolegle do kości piszczelowej, aby odsłonić mięsień. Użyć bardzo cienkich nożyczek do usunięcia powięzi.
- Przeciąć najpierw ścięgno dystalne (blisko łapy), a następnie ścięgno proksymalne (blisko kolana), używając bardzo cienkich nożyczek i cienkiej pęsety zakrzywionej. Mięsień należy obchodzić się ostrożnie, aby uniknąć uszkodzenia włókien mięśniowych i nerwów.
UWAGA: Ścięgno proksymalne musi zostać przecięte jak najbliżej kości, aby pobrać cały mięsień. - Umieścić mysz w pozycji na brzuchu, użyć ostrych nożyczek chirurgicznych do wykonania nacięcia skóry od górnej części przedziału tylnego dystalnej kończyny tylnej w dół do łapy, a następnie usunąć skórę.
- Chwycić ścięgno Achillesa pęsetą ząbkowaną średnią, przeciąć je bardzo cienkimi nożyczkami i delikatnie oddzielić mięsień GA od otaczających tkanek aż do jego przyczepu proksymalnego.
- Po stronie proksymalnej wprowadzić pęsetę ząbkowaną średnią w przestrzeń powstałą między mięśniem dwugłowym uda (BF) a mięśniem GA. Rozdzielić oba mięśnie, aby przeciąć ścięgno GA jak najbliżej przyczepu kostnego bardzo cienkimi nożyczkami.
- W celu utrwalenia tkanek umieścić każdy mięsień w probówce do mikrocentryfugi o pojemności 2 mL zawierającej 1 mL 4% (w/v) roztworu paraformaldehydu (PFA) rozcieńczonego w buforze fosforanowym (PBS bez Ca2+Mg2+) i przechowywać w temperaturze 4 °C przez 18-24 h.
OSTROŻNIE: Paraformaldehyd i formaldehyd są toksyczne i muszą być obsługiwane w dygestorium chemicznym z zastosowaniem odpowiedniego sprzętu ochronnego. - Następnego dnia wypłukać utrwalone mięśnie 3x przez 5 min w buforze PBS w płytkach 12-dołkowych, delikatnie wstrząsając w temperaturze pokojowej (RT) w dygestorium chemicznym.
UWAGA: Protokół można przerwać na tym etapie i kontynuować w ciągu miesiąca. W takim przypadku należy dodać PBS uzupełniony o 0,01% azotku sodu, aby przechowywać próbki w temperaturze 4 °C. - Rozdzielić każdy mięsień na małe pęczki włókien o szerokości około 1 mm za pomocą dwóch cienkich pęset ząbkowanych.
UWAGA: Kluczowe jest bardzo delikatne manipulowanie mięśniami za pomocą pęset, bez użycia nadmiernej siły, aby zapobiec uszkodzeniu tkanek podczas rozdzielania.- Rozdzielić mięsień TA na 3 lub 4 pęczki, w zależności od jego wielkości.
- W przypadku mięśnia GA oddzielić części przyśrodkową i boczną mięśnia, a następnie rozdzielić każdą część na 4-5 pęczków, w zależności od ich wielkości.
2. Immunobarwienie
- Przystąp do permeabilizacji włókien mięśniowych: przenieś pęczki mięśni do płytek 24-dołkowych zawierających 1% (v/v) Triton X-100 w PBS i utrzymuj je pod łagodnym wytrząsaniem (50 rpm) przez 1 h w RT lub 5 h w 4 °C.
UWAGA: Podziel pęczki mięśni między dwie płytki, aby przeprowadzić oddzielne barwienia immunocytochemiczne i zminimalizować ryzyko pomylenia przeciwciał. Nie dziel ich na więcej niż dwa dołki (1 dołek/płytka); w przeciwnym razie liczba (N) złączeń neuromięśniowych (NMJ) reprezentatywnych dla ich ogólnego stanu w analizowanym mięśniu może być niewystarczająca. - Przemyj próbki 3x przez 5 min w PBS w RT i inkubuj je z roztworem blokującym składającym się z 4% albuminy surowicy bydlęcej (BSA) w PBS/Triton X-100 1% przez 4 h w 4 °C, pod łagodnym wytrząsaniem (50 rpm).
UWAGA: Podczas etapów płukania nie używaj pompy aspiracyjnej, lecz odsysaj roztwór ręcznie za pomocą pipety 200 µL i końcówek o małym rozmiarze (referencja wskazana w Tabeli Materiałów). - Inkubuj próbki przez noc (O/N) w 4 °C pod łagodnym wytrząsaniem (50 rpm) z roztworem blokującym wskazanym w kroku 2.2, zawierającym pierwotne przeciwciała monoklonalne przeciwko neurofilamentowi M (NF-M, 2H3, rozcieńczenie 1/200) lub glikoproteinie pęcherzyka synaptycznego 2 (SV2, rozcieńczenie 1/200), aby odpowiednio znakować presynaptyczne terminale aksonalne lub strefy aktywne.
- Następnego dnia przemyj pęczki mięśni 3x przez 5 min w PBS pod wytrząsaniem (50 rpm).
- Do obrazowania konfokalnego: inkubuj pęczki mięśni z wtórnymi przeciwciałami anty-mysimi sprzężonymi z fluorophorem emitującym światło czerwone (F594) (rozcieńczenie 1/500) oraz α-bungarotoksyną sprzężoną z fluorophorem emitującym światło zielone (α-BTX-F488) (rozcieńczenie 1/1000) w PBS przez 2 h w RT pod wytrząsaniem (50 rpm).
- Do obrazowania STED: inkubuj pęczki mięśni z wtórnymi przeciwciałami anty-mysimi sprzężonymi z fluorophorem emitującym światło zielone (F488) (rozcieńczenie 1/500) oraz α-bungarotoksyną sprzężoną z fluorophorem emitującym światło dalekoczerwone, charakteryzującym się wysoką fotostabilnością (α-BTX-F633) (rozcieńczenie 1/1000) w PBS przez 2 h w RT pod wytrząsaniem (50 rpm).
UWAGA: Nie wystawiaj próbek na działanie światła podczas inkubacji, aby uniknąć fotowyblechania.
- Przemyj znakowane pęczki mięśni 3x przez 5 min w PBS pod wytrząsaniem (50 rpm) i umieść je na szkiełku z medium montującym.
UWAGA: Umieść maksymalnie 4 do 5 pęczków mięśni na jednym szkiełku, aby umożliwić uszczelnienie. - Nałóż na wierzch szkiełko nakrywkowe klasy #1.5 (lub #1.5H) (grubość 0.17 mm) i umieść magnesy cylindryczne po obu stronach szkiełka, aby wywrzeć nacisk i spłaszczyć mięśnie.
- Przechowuj szkiełka chronione przed światłem przez noc (O/N) w 4°C. Uszczelnij szkiełka trwale za pomocą lakieru do paznokci.
3. Akwizycja obrazu
- Akwizycje za pomocą mikroskopu konfokalnego
UWAGA: Obrazy zostały zarejestrowane za pomocą odwróconego konfokalnego mikroskopu laserowego z użyciem obiektywu imersyjnego olejowego o powiększeniu 63x (HCX Plan Apo CS, aperturą numeryczną (NA) 1,4).- W celu przeprowadzenia ślepej analizy, osoba nieuczestnicząca w badaniu powinna oznaczyć każdy preparat odpowiednim numerem. Należy zachować ślepą próbę w odniesieniu do grup eksperymentalnych aż do momentu zakończenia kwantyfikacji parametrów połączeń nerwowo-mięśniowych (NMJ) dla wszystkich próbek.
- Uruchom oprogramowanie mikroskopu w Tryb konfiguracji > maszyna.xlhw (Rycina dodatkowa 1).
- Umieść preparat na stole mikroskopu i odnajdź płaszczyznę obserwacji w próbce, korzystając z szerokopolowego oświetlenia fluorescencyjnego DAPI z zestawem filtrów DAPI.
- Kliknij w Otwórz projekt > Nowe projekty i utwórz folder do przechowywania zarejestrowanych obrazów (Rycina dodatkowa 1).
UWAGA: Dla każdego złącza nerwowo-mięśniowego (NMJ) należy utworzyć nowy projekt, aby ograniczyć rozmiar folderu i zapobiec problemom z pamięcią komputera. - Aby zarządzać parametrami akwizycji, należy kliknąć w Akwizycja okno karty i ustaw otwór konfokalny na 1,0 jednostki Airy oraz moc lasera, aby zoptymalizować poziomy wzmocnienia (gain) i przesunięcia (offset) dla fluorescencji zielonej/F488 (α-BTX), używając lasera o długości fali 488 nm w miejscu płyty końcowej, która ma zostać zobrazowana (tryb Live włączony).
- Następnie należy zoptymalizować akwizycję fluorescencji czerwonej/F594 (NF-M lub SV2), wykorzystując laser dostosowany do obserwacji F594. W niniejszym badaniu zastosowano laser o długości fali 552 nm (tryb Live WŁ.). Ustaw widmo emisji barwników w następujących zakresach dla każdego lasera: laser 405 (DAPI) od 414 do 483 nm, laser 488 (F488-α-BTX) od 506 do 531 nm oraz laser 552 (NF-M/SV2) od 622 do 650 nm.
- Należy zebrać stosy obrazów złącza nerwowo-mięśniowego dla każdej grupy eksperymentalnej przy użyciu tych samych ustawień: rozmiar obrazu 1024 x 1024 piksele (73,7 x 73.7 µm) przy częstotliwości próbkowania 400 Hz, Bidirectional X ON, współczynnik powiększenia 2,5, rozmiar kroku Z 0.5 µm w trybie Z-Wide.
UWAGA: Dla każdego połączenia nerwowo-mięśniowego (NMJ) liczba warstw jest ustawiana tak, aby objąć całe złącze. Opisane powyżej ustawienia akwizycji spełniają twierdzenie Nyquista-Shannona o próbkowaniu. Niemniej jednak użytkownik może kliknąć w Optymalizacja formatu przycisk, dostępny we wszystkich aktualnych wersjach oprogramowania do mikroskopii konfokalnej, który zapewnia, że rozmiar piksela i skok w osi Z są zgodne z optymalną częstotliwością próbkowania Nyquista. Działanie to pozwoli uniknąć nadmiernego lub niewystarczającego próbkowania obrazów, co prowadziłoby do utraty dokładności pomiarów objętości. - Zapisz oryginalny plik (.lif) lub obrazy Z-stack (.tif) w folderze, którego nazwa zawiera kod preparatu, rodzaj barwienia oraz numer płytki końcowej.
UWAGA: Skanowanie z użyciem laserów 488 nm i 552 nm (F488 i F594) należy przeprowadzać sekwencyjnie (nie jednocześnie), aby uniknąć przenikania sygnału fluorescencji F488 do kanału F594 i odwrotnie (bleed-through). NB: ścieżkę wiązki można skonfigurować za pomocą funkcji Dye Assistant w oprogramowaniu mikroskopu. - Przejdź do następnego zakodowanego slajdu i powtórz kroki 3.1.3–3.1.8 dla każdego złącza nerwowo-mięśniowego (NMJ).
- Na koniec sesji kliknij w Otwórz w przeglądarce 3D i wybierz reprezentatywne złącze nerwowo-mięśniowe (NMJ) z grupy eksperymentalnej w celu wizualizacji znakowania 3D.
UWAGA: Ten tryb widoku pomoże zweryfikować, czy parametry akwizycji były prawidłowe. - Zamknij oprogramowanie mikroskopu, wyczyść obiektywy za pomocą chusteczek do soczewek, a następnie wyłącz system.
- Akwizycje obrazów w mikroskopii STED
UWAGA: Obrazy zostały zebrane przy użyciu odwróconego konfokalnego mikroskopu skaningowego z laserem, wyposażonego w moduł Gated STED przy 775 nm, z wykorzystaniem obiektywu imersyjnego olejowego 100x (HC PL APO CS2 1,4 NA).- W celu przeprowadzenia ślepej analizy, osoba niezaangażowana w proces analityczny powinna oznaczyć każdy preparat określonym numerem. Należy zachować ślepą próbę w odniesieniu do grup eksperymentalnych do momentu zakończenia kwantyfikacji parametrów złącza nerwowo-mięśniowego (NMJ) dla wszystkich próbek.
- Uruchom oprogramowanie mikroskopu w Tryb konfiguracji > maszyna.xlhw oraz STED WŁ. (Rysunek dodatkowy 2).
- Kliknij w Otwórz projekt > Nowe projekty należy utworzyć folder do przechowywania pozyskanych obrazów.
UWAGA: Twórz nowy folder dla każdego slajdu, aby ograniczyć rozmiar folderów i zapobiec problemom z pamięcią komputera. - Umieść preparat na stole mikroskopu i obejrzyj go przy użyciu szerokopolowego oświetlenia fluorescencyjnego z wykorzystaniem lasera 488 nm, aby odnaleźć płaszczyznę obserwacji wewnątrz próbki.
- Należy wyszukać złącze nerwowo-mięśniowe (NMJ) znakowane neurofilamentem M (NF-M) lub barwieniem SV2, korzystając z lasera o długości fali 488 nm z detekcją spektralną w zakresie 506–531 nm.
- Po zidentyfikowaniu złącza nerwowo-mięśniowego należy kliknąć w Aktywuj STED i rozpocząć akwizycję obrazów w obszarze zawierającym kilka fałdów połączeniowych (Rycina uzupełniająca 3) przy użyciu lasera 635 nm z detekcją spektralną w zakresie 640–750 nm.
UWAGA: Podczas akwizycji obrazu należy zwrócić uwagę na tabelę przeglądową (LUT) nasycenia i kliknąć w Szybka tabela LUT przycisk zapobiegający prześwietleniu (wartości szarości) >255; dla 8 bitów). - Należy zebrać obrazy każdej grupy eksperymentalnej przy zastosowaniu tych samych ustawień: rozmiar obrazu 2048 x 2048 pikseli (38,75 x 38.75 µm) przy częstotliwości próbkowania 400 Hz.
UWAGA: Moc lasera wygaszającego (STED) została ustawiona na 65%. - Zapisz obrazy, używając nazw plików zawierających kod preparatu.
UWAGA: Można kliknąć w Zoptymalizowany format XY: Ustaw format Proszę podać tekst źródłowy do przetłumaczenia. w celu uzyskania optymalnych ustawień akwizycji w obrazowaniu STED. - Przejdź do kolejnego zakodowanego preparatu i powtórz kroki 3.2.3–3.2.8. Powtórz tę procedurę dla wszystkich preparatów.
- Po zakończeniu sesji mikroskopii STED przenieś pliki obrazów na inny komputer i zapisz pliki oryginalne (.lif) na zewnętrznym dysku lub serwerze.
- Wyłącz oprogramowanie mikroskopu, wyczyść obiektywy za pomocą chusteczek do soczewek, a następnie wyłącz system.
4. Analiza obrazu – mikroskopia konfokalna
UWAGA: Wszystkie obrazy zostały przetworzone komputerowo przy użyciu systemu operacyjnego Microsoft Windows 10 professional.
- Uruchom program ImageJ oraz niestandardowe makro w celu obliczenia objętości blaszki końcowej postsynaptycznej NMJ, powierzchni maksymalnej projekcji intensywności (MIP) oraz względnej krętości.
- Przetwórz stosy obrazów NMJ przy użyciu darmowego oprogramowania NIH ImageJ23, wtyczki iGeodesic oraz niestandardowego makra, aby uzyskać pomiary parametrów NMJ. Uruchom oprogramowanie ImageJ.
UWAGA: Najnowsza wersja ImageJ jest dostępna bezpłatnie i można ją pobrać24. Aby otwierać zastrzeżone formaty plików, należy pobrać wtyczkę Bio-Formats Package2526. Ten krok nie jest konieczny, jeśli operator korzysta z programu Fiji, ponieważ wtyczka jest już zainstalowana w oprogramowaniu. Wtyczka iGeodesic27 do obliczania krętości jest również dostępna online28; należy sprawdzić dostępność tej wtyczki w wersji ImageJ/Fiji, która będzie używana. Niestandardowe makra są również dostępne online29. - Przeciągnij i upuść plik Macro_NMJ_VOL_Marinelloetal.ijm (niestandardowy, Supplementary Coding File 1) do okna ImageJ; makro zostanie otwarte w drugim oknie. W tym nowym oknie kliknij Macros > Run Macro.
UWAGA: Makro może przetwarzać zarówno pliki zastrzeżone, jak i pliki TIFF. Pliki muszą spełniać następujące kryteria: w przypadku zastrzeżonych formatów plików należy zapisać tylko jedno złącze (tj. stos obrazów) w jednym pliku, uporządkowane w folderze; w przypadku obrazów TIFF pliki muszą być zapisane w folderze zawierającym podfoldery, z których każdy nazywa się JunctionX (gdzie X odpowiada numerowi NMJ) wraz ze stosami obrazów danego złącza (RGB TIFF) (Supplemental Figure 4). - Wybierz główny folder zawierający podfoldery Junction, które mają zostać przeanalizowane, i kliknij Select.
- W nowym menu wyskakującym o nazwie Saving Folder, wybierz folder zapisu i kliknij Select.
- W nowym menu wyskakującym o nazwie Image Type, wybierz format akwizycji stosu Z (Z-stack).
- Wybierz kanał RGB odpowiadający interesującemu barwieniu oraz wskaż rozmiar piksela XY i krok Z (z). Makro automatycznie przeprowadzi analizę.
UWAGA: W przypadku wyboru zastrzeżonych formatów plików, makro bezpośrednio odczytuje rozmiar piksela i krok Z (z). Użytkownik musi jednak nadal wskazać interesujący go kanał (C1, C2 lub C3). Makro utworzy arkusz danych (.csv) dla każdego parametru złącza (objętość blaszki końcowej, powierzchnia MIP i krętość) w folderze zapisu. Makro generuje również trzy pliki .TIF, które odpowiadają obrysowi barwienia α-BTX Drawing_MaxprojX.tif, DrawingJunctionX.tif oraz MIP MaxprojX.tif. Pliki TIFF te są generowane w celu weryfikacji jakości akwizycji i upewnienia się, że przetwarzanie obrazów zostało wykonane poprawnie.
Objętość postsynaptyczna NMJ (V): Makro oddzieli obrazy z pojedynczego NMJ i zachowa kanał α-bungarotoksyny F488 odpowiadający postsynaptycznej blaszce końcowej. Stos jest segmentowany przy użyciu progu Otsu30 na środkowym przekroju stosu. Powstały obraz binarny jest rozszerzony o 1 piksel, a funkcja Analyze Particles służy do pomiaru powierzchni blaszki końcowej każdego wykrytego obiektu. Aby uzyskać objętość postsynaptyczną NMJ, makro sumuje wszystkie zmierzone powierzchnie blaszek końcowych stosu i mnoży je przez wartość kroku Z (z) w µm.

Powierzchnia blaszki końcowej w maksymalnej projekcji intensywności (MIP): Po zastosowaniu progu dla stosu, maksymalna projekcja intensywności (MIP) jest uzyskiwana za pomocą funkcji Z-project w ImageJ. Następnie funkcja Analyze particles jest używana do ilościowego określenia powierzchni blaszki końcowej MIP.
Krętość MIP NMJ (T): Krętość NMJ, odzwierciedlająca stopień złożoności postsynaptycznej blaszki końcowej, w tym fałdów i perforacji31, jest obliczana na podstawie każdego MIP według następującego wzoru, gdzie dObj(AB) to odległość między punktami A i B wzdłuż obrysu obiektu, a dEuc(AB) to odległość euklidesowa między A i B (linia prosta).
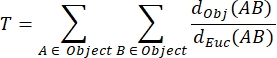
- Ustaw najwyższą wartość krętości w grupie typu dzikiego (wild-type) dla każdego warunku eksperymentalnego na 100% i znormalizuj wszystkie pozostałe wartości warunku eksperymentalnego do tej wartości, aby uzyskać względną krętość NMJ.
- Przetwórz stosy obrazów NMJ przy użyciu darmowego oprogramowania NIH ImageJ23, wtyczki iGeodesic oraz niestandardowego makra, aby uzyskać pomiary parametrów NMJ. Uruchom oprogramowanie ImageJ.
- Uruchom program ImageJ oraz niestandardowe makro w celu ilościowego określenia akumulacji presynaptycznych neurofilamentów oraz barwienia glikoproteiny 2 pęcherzyków synaptycznych.
UWAGA: Akumulacja neurofilamentów (tutaj NF-M) i/lub zmieniony rozkład pęcherzyków synaptycznych (tutaj SV2) są markerami nieprawidłowego transportu aksonalnego i/lub upośledzonego transportu pęcherzyków i były wcześniej obserwowane w NMJ różnych modeli mysich SMA32,33,34.- Przeciągnij i upuść plik Macro_NMJ_ACCU_Marinelloetal.ijm (niestandardowy, Supplementary Coding File 2) do okna ImageJ; makro otworzy się w drugim oknie. W tym nowym oknie kliknij Macros > Run Macro.
UWAGA: Makro może przetwarzać zarówno zastrzeżone formaty plików, jak i pliki TIFF. Pliki muszą spełniać kryteria wskazane w UWAGA poniżej kroku 4.1.2. - Wybierz główny folder zawierający podfoldery Junction, które mają zostać przeanalizowane, i kliknij Select.
- W nowym menu wyskakującym o nazwie Saving Folder, wybierz folder zapisu i kliknij Select.
- W nowym menu wyskakującym o nazwie Image Type, wybierz format akwizycji stosu Z (Z-stack).
- W oknie Staining Infos wskaż etykietę i kolor barwienia presynaptycznego i postsynaptycznego, a następnie kliknij OK. Na przykład, etykieta presynaptyczna: SV2 lub NF, kolor presynaptyczny: R, etykieta postsynaptyczna: BTX, kolor postsynaptyczny: G.
UWAGA: W przypadku zastrzeżonych formatów plików należy wskazać etykiety i odpowiadające im kanały (C1, C2 lub C3). - W oknie Pixel Size wskaż rozmiar piksela XY 0.072 µm i krok Z 0.5 µm (z), a następnie kliknij OK. Makro automatycznie przeprowadzi analizę.
UWAGA: Parametr ten odpowiada rozmiarowi obrazu 1024 x 1024 pikseli (73.7 x 73.7 µm) wybranemu przed akwizycją mikroskopem konfokalnym i jest skorelowany z ustawieniami obiektywu i zoomu. Jeśli wybrano zastrzeżone formaty plików, makro bezpośrednio odczytuje rozmiar piksela i krok Z (z). Makro zapisze w folderze zapisu arkusz danych (.csv) objętości presynaptycznych i postsynaptycznych oraz wielostronicowy obraz TIFF aktualnej detekcji dla każdego barwienia (pre- i postsynaptycznego). Jak wspomniano powyżej, pliki TIFF te są generowane w celu sprawdzenia jakości akwizycji i upewnienia się, że przetwarzanie obrazów zostało wykonane poprawnie.
Makro oblicza objętość barwienia aksonalnych neurofilamentów M (objętość NF) z kanału NF-M-F594, który kolokalizuje z barwieniem α-bungarotoksyną-F488, oraz objętość barwienia glikoproteiny 2 pęcherzyków synaptycznych NMJ (objętość SV2) z kanału SV2-F594, który kolokalizuje z barwieniem α-BTX-F488. Akumulację NF-M określa się ilościowo obliczając stosunek objętości NF do objętości postsynaptycznej blaszki końcowej (α-BTX), a zajęcie terminala aksonalnego NMJ za pomocą stosunku objętości SV2 do α-BTX, jak pokazano poniżej.
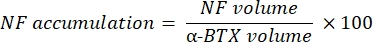
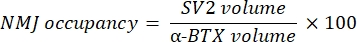
- Przeciągnij i upuść plik Macro_NMJ_ACCU_Marinelloetal.ijm (niestandardowy, Supplementary Coding File 2) do okna ImageJ; makro otworzy się w drugim oknie. W tym nowym oknie kliknij Macros > Run Macro.
5. Analiza obrazu – mikroskopia STED
UWAGA: Przetwarzanie obrazów zostało wykonane przy użyciu oprogramowania offline producenta mikroskopu STED.
- Uruchom oprogramowanie mikroskopu.
- Otwórz projekt, klikając przycisk Open Project. Wybierz plik projektu (.lif) i otwórz go. Obrazy zostaną wyświetlone na ekranie wraz z ich nazwami.
- W oknie Process: kliknij Noise Reduction > Median. Na dole środkowego okna ustaw wartość Radius na 5.00, a Iteration na 1.00, i odznacz opcję 3D Filtering.
- Następnie wybierz kartę Open Projects w górnej lewej części okna i wybierz obraz.
- Kliknij Apply, aby zatwierdzić parametry. Utworzony zostanie nowy obraz o nazwie „nameofimage_median001”.
UWAGA: Przed kliknięciem Apply można kliknąć Preview, aby monitorować efekt filtra medianowego, który zwiększy kontrast obrazu i wygładzi profile linii używane do kwantyfikacji. - Zastosuj filtr do wszystkich obrazów zgodnie z opisem w krokach 5.4-5.5.
- W kartach Open Projects kliknij ikonę dyskietki, aby zapisać wszystkie projekty, w tym nowo utworzone obrazy filtrowane.
UWAGA: Kolejny krok zostanie wykonany przy użyciu filtrowanego obrazu o nazwie „nameofimage_median001”. - Oblicz odległość między prążkami AChR
UWAGA: Zmiany w morfologii fałdów pozasynaptycznych są często obserwowane w zaburzeniach nerwowo-mięśniowych jako oznaka patologii NMJ (niedojrzałość lub degeneracja). Odległość (d) między prążkami AChR, wykrywanymi za pomocą barwienia α-bungarotoksyną, oblicza się poprzez generowanie profili intensywności i kwantyfikację odległości między poszczególnymi maksimami szczytów intensywności poprzez rysowanie profilu linii (Supplemental Figure 5).- W oprogramowaniu mikroskopu wybierz menu Quantify u góry centralnego okna.
- Kliknij kartę Tools w górnym lewym rogu. Wybierz Intensity w lewym górnym panelu i kliknij ikonę Line profile. Ustaw Oversampling na 1 i zaznacz Sort Channels.
- Kliknij karty Open Projects i wybierz filtrowany obraz do analizy.
UWAGA: Można powiększyć obraz, przewijając kółkiem myszy komputerowej. Zakres dynamiczny obrazu można zmodyfikować za pomocą paska po lewej stronie obok wyświetlanego obrazu, co ułatwia wizualizację prążków. - Następnie kliknij ikonę Draw Line w górnym menu prawego okna i narysuj linię przecinającą prostopadle kilka prążków/fałdów złącza.
UWAGA: Profil intensywności jest wyświetlany w centralnym oknie. - Kliknij szczyt pierwszego piku i przesuń wskaźnik myszy, trzymając wciśnięty lewy przycisk myszy, aż do osiągnięcia kolejnego szczytu maksymalnego.
UWAGA: Informacje są wyświetlane w profilu intensywności, a odległość między dwoma szczytami jest wyświetlana pod wykresem z oznaczeniem „dx”. - Kliknij prawym przyciskiem myszy w obszarze obrazu w prawym oknie i wybierz Save ROIs. Otwórz zapisane ROI (regiony zainteresowania), klikając Load ROIs.
- Kliknij ikonę strzałki w górnym lewym rogu prawego okna, kliknij ROI i usuń je, klikając ikonę kosza.
- Powtórz tę operację tyle razy, ile jest to konieczne dla różnych profili intensywności, aby uzyskać przewidywaną liczbę odległości prążków AChR, które będą reprezentować wartość globalną w analizowanym mięśniu.
UWAGA: Optymalną wartość N można obliczyć wcześniej na podstawie szacowanej różnicy między grupami, ryzyka α, mocy oraz testu jednostronnego lub dwustronnego. W obecnym projekcie eksperymentalnym zastosowano jednostronny test Manna-Whitneya (ryzyko α = 10%; moc = 80%), a wartość N oszacowano na co najmniej pięć odległości prążków AChR na jedno NMJ w celu porównania dwóch grup zwierząt.
- Szerokość prążka AChR
UWAGA: Szerokość prążka (w) odpowiada pełnej szerokości połówce maksymalnej (FWHM) profilu intensywności, czyli odległości między punktami, w których wartość fluorescencji sygnału α-BTX wynosi połowę jego maksymalnej intensywności (Supplemental Figure 5).- W oprogramowaniu mikroskopu wybierz menu Quantify w centralnym oknie.
- Kliknij kartę Tools w górnej lewej części. Wybierz Intensity w lewym górnym panelu i kliknij ikonę Determine FWHM. Zaznacz Sort Channels.
UWAGA: Aby zoptymalizować wykrywanie szczytów przez oprogramowanie, wartości Set Threshold oraz Width ustawiono odpowiednio na 50 i 3. Dostosuj te wartości do każdego eksperymentu i skonsultuj się z doświadczonym specjalistą w dziedzinie obrazowania. - Kliknij karty Open projects i wybierz filtrowany obraz do analizy.
UWAGA: Można powiększyć wyświetlany obraz w prawym oknie, przewijając kółkiem myszy komputerowej. Jak wskazano powyżej (UWAGA po kroku 5.8.3), zakres dynamiczny obrazu można zmodyfikować w celu optymalnej wizualizacji prążków. - Następnie kliknij ikonę Draw Rectangle w górnym menu prawego okna. Wybierz prążek poziomy lub pionowy i narysuj prostokąt prostopadle do prążka. Profil pojawi się w centralnym oknie.
- Kliknij Vertical lub Horizontal w menu Average Projection znajdującym się w lewym panelu, w zależności od tego, czy orientacja prążka jest pionowa czy pozioma.
- Kliknij Statistics w centralnym oknie i odczytaj wartość FWHM.
- Kliknij prawym przyciskiem myszy na obrazie wyświetlanym w prawym oknie i wybierz Save ROIs.
UWAGA: Otwórz zapisane ROI, klikając Load ROIs. - Kliknij ikonę strzałki w górnym lewym rogu prawego okna, kliknij ROI i usuń je, klikając ikonę kosza.
- Powtórz tę operację tyle razy, ile jest to konieczne dla różnych prostokątnych ROI, aż do uzyskania przewidywanej liczby szerokości prążków AChR, które będą reprezentatywne dla wartości globalnej w analizowanym mięśniu.
6. Projekt eksperymentalny i testy statystyczne
- Przeprowadzić analizy statystyczne przy użyciu specjalistycznego oprogramowania.
UWAGA: Dane zostały zebrane od N ≥ 3 powtórzeń biologicznych i co najmniej 20 NMJs na genotyp dla obrazowania mikroskopem konfokalnym oraz od N ≥ 5 powtórzeń biologicznych i N = 5 NMJs na genotyp dla obrazowania STED, w każdej grupie eksperymentalnej. Istotność oceniano za pomocą nieparzystego testu Mann-Whitney’a (nieparametrycznego), a wartości p wskazano w odpowiednich legendach do rysunków.
Wyniki
W celu umożliwienia reprodukowalnej analizy morfologicznej złączy nerwowo-mięśniowych na poziomie presynaptycznym i postsynaptycznym opracowano schemat postępowania obejmujący etapy od pobrania mięśni po obrazowanie i kwantyfikację z wykorzystaniem oprogramowania mikroskopowego oraz niestandardowych makr programu ImageJ (Rysunek 1). Aby zilustrować użyteczność niniejszego protokołu, oceniono morfologię złączy nerwowo-mięśniowych u dwóch mysich modeli zaburzeń genetycznych: myszy Smn2B/- oraz ColQDex2/Dex2, dotkniętych odpowiednio rdzeniowym zanikiem mięśni (SMA) oraz postacią wrodzonego zespołu miastenicznego (CMS), a następnie porównano uzyskane dane z grup kontrolnych miotów w tym samym wieku.
Strukturę NMJ oceniano odpowiednio w mięśniach tibialis anterior oraz gastrocnemius 3- i 6-tygodniowych myszy Smn2B/- (tło C57Bl/6) i ColQDex2/Dex2 (tło B6D2F1/J), w czasie gdy u tych zwierząt występowały już objawy choroby. W 3. tygodniu życia myszy Smn2B/- wykazują oznaki opóźnionego rozwoju mięśni szkieletowych i denerwacji, takie jak zanik i utrata NMJ35,36. Myszy CMS mają pierwotną patologię w obrębie NMJ i wykazują spadek masy ciała od pierwszego tygodnia życia oraz wyraźne osłabienie mięśni20 (dane niepokazane). Jak pokazano na Rysunku 2A, w badaniu mikroskopii konfokalnej postsynaptyczna płytka końcowa motoryczna znakowana fluorescencyjną α-bungarotoksyną wydawała się mniejsza i/lub pofragmentowana u mutantów obu linii myszy. Kwantyfikacja stosów Z (Z-stacks) NMJ przy użyciu spersonalizowanych makr ImageJ ujawniła znaczne zmniejszenie objętości płytki końcowej, maksymalnej projekcji intensywności (MIP) oraz względnej krętości u myszy z SMA i CMS w porównaniu z grupą kontrolną, co stanowi oznaki wad dojrzewania NMJ32 (Rysunek 2B-D). Objętość postsynaptycznej płytki końcowej oraz MIP były zmniejszone u chorych zwierząt (zmiana krotności wyniosła 2,7 i 2,0 dla objętości oraz 2,5 i 2,0 dla MIP odpowiednio u myszy Smn2B/- i ColQDex2/Dex2). Względna krętość była również mniejsza w mięśniach z niedoborem SMN i ColQ niż u myszy WT (16,97% ± 1,33% w SMA versus 48,84% ± 5,90% u myszy WT oraz 13,29% ± 2,79% w CMS versus 30,20% ± 4,44% u myszy kontrolnych). Ponadto kwantyfikacja rozkładu presynaptycznych odgałęzień zakończeń aksonalnych z użyciem spersonalizowanego makra ImageJ ujawniła zmieniony wzorzec rozkładu neurofilamentu M w obu modelach zwierzęcych, z zwiększonym immunoznakowaniem (84,65% ± 0,32% versus 16,57% ± 2,03% oraz 23,64% ± 2,78% versus 18,77% ± 1,73% odpowiednio u myszy Smn2B/- i ColQDex2/Dex2 w porównaniu z grupami kontrolnymi) (Rysunek 3A-D). W barwieniu SV2 u myszy Smn2B/- zaobserwowano również 43% redukcję współczynnika zajętości, tj. procenta obszarów zawierających AChR z sąsiadującymi aktywnymi strefami zakończeń nerwowych (49,36% ± 3,76% w SMA versus 85,69% ± 2,34% u myszy WT) (Rysunek 3E,F). Ten parametr NMJ obliczono również w GA mutantów ColQDex2/Dex2, jednak nie stwierdzono statystycznie istotnej różnicy w porównaniu z kontrolnymi rodzeństwem z jednego miotu (dane niepokazane).
Dalsze analizy charakterystyki błony postsynaptycznej przeprowadzono poprzez ilościowe określenie odległości między fałdami synaptycznymi oraz szerokości pasm AChR, znajdujących się na szczytach tych fałdów, w mięśniach z niedoborem ColQ, wykorzystując mikroskopię superrozdzielczą z wygaszaniem emisji stymulowanej (STED). Jak pokazano na Ryc. 4, wygląd tych struktur można wyraźnie zwizualizować za pomocą fluorescencyjnego znakowania α-bungarotoksyną oraz analizy profilu intensywności. Oceńiono te parametry NMJ i stwierdzono zwiększenie odległości między fałdami synaptycznymi (d) oraz szerokości (w) pasm AChR w mięśniu brzuchatym (gastrocnemius) mutantów (odpowiednio 358,3 nm ± 11,97 nm i 320,8 nm ± 10,90 nm dla odległości oraz 216,9 nm ± 10,51 nm i 186,3 nm ± 7,015 nm dla szerokości u myszy ColQDex2/Dex2 w porównaniu z myszami typu dzikiego, p < 0,05) (Ryc. 4C,D).

Rycina 1: Schemat protokołu wideo dla 3D wielkoskalowej charakterystyki NMJ za pomocą mikroskopii konfokalnej i STED. Tibialis anterior (TA) i mięśnie gastrocnemius (GA) pobrano od myszy, a włókna mięśniowe rozdzielono przed znakowaniem α-bungarotoksyną-F488 lub α-bungarotoksyną-F633, DAPI, przeciwciałami pierwszorzędowymi skierowanymi przeciwko neurofilamentowi M (NF-M) i glikoproteinie pęcherzyków synaptycznych 2 (SV2) oraz przeciwciałami wtórnymi sprzężonymi z fluoroforami (F488 lub F594). Stosy obrazów pozyskano za pomocą mikroskopii konfokalnej i przetworzono w celu pomiaru objętości postsynaptycznej NMJ, presynaptycznego nagromadzenia NF-M, stopnia zajęcia zakończeń aksonalnych NMJ, powierzchni blaszki końcowej w maksymalnej projekcji intensywności (MIP) postsynaptycznej oraz krętości (dObj(AB) to odległość między punktami A i B wzdłuż obwodu obiektu (czerwona linia), natomiast dEuc(AB) to odległość euklidesowa między punktami A i B (zielona linia)). W analizie mikroskopowej STED określono szerokość prążków receptora acetylocholiny (AChR) oraz odległość między fałdami synaptycznymi na podstawie profili intensywności barwienia α-BTX-F633. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.

Rycina 2: Wieloparametryczna charakterystyka postsynaptycznego NMJ w modelach mysich rdzeniowego zaniku mięśni (SMA) oraz wrodzonego zespołu miastenicznego (CMS) związanego z ColQ. (A) Reprezentatywne obrazy postsynaptycznych blaszek końcowych z mięśni TA i GA znakowanych α-bungarotoksyną-F488 (α-BTX). (B) Ilościowe oznaczenie objętości postsynaptycznej blaszki końcowej NMJ, (C) pola powierzchni maksymalnej projekcji intensywności (MIP) oraz (D) względnej krętości w mięśniu TA 3-tygodniowych myszy typu dzikiego (WT) i Smn2B/- (wykresy po lewej, N = 3 zwierzęta na genotyp, odpowiednio n = 37 i n = 56 NMJ) oraz 6-tygodniowych myszy WT i ColQDex2/Dex2 (wykresy po prawej, N = 5 myszy na genotyp, odpowiednio n = 89 i n = 97 NMJ). Dane przedstawiono jako średnią na mysz (kropka) ± SEM. Różnice między grupami analizowano testem Manna-Whitneya (* p < 0.05). Pasek skali to 10 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 3: Analiza morfometryczna rozkładu presynaptycznych zakończeń aksonalnych w mięśniach myszy WT i mutantów. Wzór unerwienia złączy nerwowo-mięśniowych (NMJ) w mięśniach piszczelowych przednich (tibialis anterior, TA) i brzuchatych łydki (gastrocnemius, GA) u myszy typu dzikiego (WT), myszy z SMA oraz myszy z CMS związany z ColQ. (A, B) Reprezentatywne złącza nerwowo-mięśniowe z mięśnia TA myszy WT i Smn2B/- w 21. dniu życia, znakowane przeciwciałami przeciwko neurofilamentowi M (NF-M, czerwony) i α-bungarotoksyną-F488 (α-BTX, zielony) (A), oraz wyniki ilościowej analizy akumulacji neurofilamentów (B); (C, D) Reprezentatywne złącza nerwowo-mięśniowe z mięśnia GA 6-tygodniowych myszy WT i ColQDex2/Dex2, znakowane przeciwciałami przeciwko neurofilamentowi M (NF-M, czerwony) i α-bungarotoksyną-F488 (α-BTX, zielony), wykazujące pofragmentowane i niedojrzałe płytki postsynaptyczne (C), oraz wyniki akumulacji neurofilamentów w dwóch grupach zwierząt (D). W eksperymentach (B, D) analizowano N= 4 (n = 34 NMJs) (B) i N = 3 (n = 54 NMJs) (D) zwierząt WT, a także N=3 (n = 36 NMJs) myszy Smn2B/- i N = 3 (n = 55 NMJs) myszy ColQDex2/Dex2. (E, F) Reprezentatywne obrazy stopnia zajęcia złączy NMJ przez zakończenia aksonalne w mięśniu TA 3-tygodniowych myszy WT i Smn2B/-, znakowane przeciwciałami przeciwko glikoproteinie 2 pęcherzyków synaptycznych (SV2, czerwony) i α-bungarotoksyną-F488 (α-BTX, zielony) (E), oraz wyniki stopnia zajęcia NMJ (stosunek objętości SV2/AChR) (F). Analizie poddano mięśnie od N = 3 (n = 50 NMJs) myszy typu dzikiego i N = 4 (n = 62 NMJs) myszy Smn2B/-. Dane przedstawiono jako średnią wartość na mysz (kropka) ± SEM. Różnice między grupami analizowano testem Manna-Whitneya (* p < 0.05). Paski skali oznaczają 20 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 4: Obrazowanie STED postsynaptycznych blaszek końcowych NMJ. (A) Reprezentatywny obraz STED NMJ znakowanego α-bungarotoksyną-F633 (α-BTX) z mięśnia gastrocnemius 6-tygodniowej myszy typu dzikiego, pokazujący postsynaptyczne prążki AChR (pasek skali 5 µm). (B) Powiększenie obszaru z prążkami AChR (dolny panel), który został wykorzystany do wygenerowania profilu intensywności. Szerokość (w) prążków AChR oraz odległość między dwoma sąsiednimi prążkami (d) w tym obszarze zostały ilościowo określone i przedstawione na wykresie słupkowym. Schematyczne przedstawienie postsynaptycznej blaszki końcowej obrazujące szerokość (w) i odległość (d) prążków AChR. Parametry te, (C) odległość prążków AChR oraz (D) szerokość, zmierzono u myszy ColQDex2/Dex2 oraz kontrolnych myszy z tego samego miotu w wieku 6 tygodni. NMJ od 5 zwierząt WT (łącznie n = 29 NMJ) i 6 zwierząt ColQDex2/Dex2 (łącznie n = 43 NMJ) zostały poddane ślepej analizie. Dane przedstawiono jako średnią na mysz (kropka) ± SEM. Różnice statystyczne między grupami analizowano za pomocą testu Manna-Whitneya (* p < 0.05). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Rysunek dodatkowy 1: Uruchomienie oprogramowania LAS X i parametry akwizycji konfokalnej.Różne etapy pozyskiwania obrazów konfokalnych opisano w sekcjach 3.1.2 do 3.1.7 protokołu. Dla każdej akwizycji stosu NMJ otwiera się projekt (krok 3.1.4) i wybiera parametry rozmiaru obrazu, prędkości akwizycji oraz osi X, Y i Z (krok 3.1.7), z zaznaczeniem każdego skanowania sekwencyjnego (Seq.1, laser 405 dla DAPI; Seq.2, laser 488 dla α-BTX-F488; oraz Seq.3, laser 552 dla przeciwciał wtórnych sprzężonych z F594). Kliknij tutaj, aby pobrać ten plik.
Rysunek dodatkowy 2: Uruchamianie oprogramowania LAS X i parametry akwizycji STED.Kroki niezbędne do uzyskania obrazów STED opisano w sekcjach 3.2.2 do 3.2.8 protokołu. Mikroskop jest uruchamiany w trybie konfiguracji STED ON (krok 3.2.2), a następnie otwiera się projekt (krok 3.2.3). Wskazano parametry akwizycji obrazu (krok 3.2.7) (rozmiar obrazu, prędkość akwizycji, współczynnik powiększenia Zoom, oś X) dla każdego skanu sekwencyjnego (Seq.1 dla α-BTX-F633; Seq.2 dla przeciwciał wtórnych sprzężonych z F488). Kliknij tutaj, aby pobrać ten plik.
Rysunek dodatkowy 3: Obrazy fałdów połączeniowych barwionych α-BTX uzyskane za pomocą mikroskopii STED.Przykładowe obrazy postsynaptycznej blaszki końcowej znakowanej α-BTX-F633 od 6-tygodniowej myszy typu dzikiego, wykonane przy prawidłowym (lewo) lub nieprawidłowym (prawo) ustawieniu ostrości. Kliknij tutaj, aby pobrać ten plik.
Rysunek dodatkowy 4: Okna pop-up opisujące dane wejściowe i wyjściowe uzyskane za pomocą niestandardowych makr ImageJ.Przykłady danych wejściowych (.tif oraz pliki .lif) obrazów NMJ przedstawiono w lewej kolumnie. Dane wyjściowe z makr (prawa kolumna) są zapisywane w folderach (Save_Volume, Save_Accu), które zawierają obrazy złącza (.tif) oraz arkusze danych z wynikami (pliki .csv). Kliknij tutaj, aby pobrać ten plik.
Rysunek dodatkowy 5: Analiza odległości i szerokości prążków AChR z obrazu STED z wykorzystaniem oprogramowania LAS X. Kroki analizy obrazów STED z połączeń NMJ opisano w sekcji 5 protokołu. A) Obraz oznakowanego obszaru postsynaptycznej blaszki końcowej zawierający prążki AChR. Obszar zainteresowania do analizy prążków jest wybierany poprzez narysowanie linii prostopadłej (zielona linia, dla odległości prążków) lub prostokąta prostopadłego (fioletowy prostokąt, dla szerokości prążków). (B, C) Przedstawiono profile intensywności wybranych obszarów oraz pomiary służące do obliczenia odległości między prążkami AChR (B) i szerokości prążka AChR (C). Kliknij tutaj, aby pobrać ten plik.
Uzupełniający plik kodu 1: Macro_NMJ_VOL_Marinelloetal. Niestandardowe makro ImageJ do wyodrębniania pomiarów parametrów NMJ (objętość NMJ, powierzchnia płytki końcowej MIP oraz krętość NMJ). Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający z kodem 2: Macro_NMJ_ACCU_Marinelloetal. Własne makro ImageJ do ekstrakcji akumulacji NF-M oraz barwienia SV2. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Opisany protokół wideo zapewnia szczegółową metodę ilościowego określania struktury 3D połączeń nerwowo-mięśniowych poprzez połączenie mikroskopii konfokalnej i STED, które można wykorzystać do scharakteryzowania zmian patologicznych na poziomie pre- i postsynaptycznym. Wysoka rozdzielczość mikroskopii STED umożliwia wizualizację i analizę morfometryczną nanostruktur, których nie można zidentyfikować za pomocą konwencjonalnego obrazowania konfokalnego. Procedura ta umożliwiła nam zmierzenie zmian strukturalnych NMJ w dwóch mięśniach wyrostka robaczkowego, piszczelowym przednim i brzuchatym łydki, myszy CMS związanych z SMA i ColQ.
Aby uzyskać wiarygodne wyniki za pomocą tej techniki, bardzo ważne jest, aby prawidłowo rozciąć i drażnić mięśnie, zwracając szczególną uwagę na powięź otaczającą mięsień i siłę przyłożoną do oddzielenia wiązek mięśniowych; w przeciwnym razie wzorzec unerwienia może zostać zakłócony, utrudniając prawidłową ocenę presynaptycznego NMJ. Chociaż szczegółowe informacje są dostarczane do analizy NMJ z TA i GA, w zasadzie protokół ten można dostosować do innych mięśni, w tym mięśni płaskich, takich jak przepona lub poprzeczny brzuch37, które nie wymagają kroku drażnienia. Utrwalenie tkanek ma również kluczowe znaczenie dla zapewnienia dobrej jakości barwienia; dlatego zaleca się stosowanie wysokiej jakości PFA w odpowiedniej objętości (15-20 razy większej niż w mięśniu). Ponadto czas ekspozycji na utrwalacz jest ważnym krokiem, ponieważ artefakty, takie jak kurczenie się i zbrylanie, mogą pojawić się z powodu nadmiernej fiksacji i wpływać na cechy NMJ. Biorąc pod uwagę wielkość próbek i szybkość penetracji roztworu paraformaldehydu w tkankach38, dla tego typu mięśni zaleca się czas utrwalenia 18-24 godzin. W przypadku, gdy etap barwienia jest planowany później niż tydzień po pobraniu tkanek, sugeruje się utrzymywanie mięśni utrwalonych PFA w PBS uzupełnionych azydkiem sodu w temperaturze 4 °C, aby zapobiec namnażaniu się bakterii.
Protokół ten przedstawia podejście wykorzystujące α-BTX-F488 do obrazowania konfokalnego i α-BTX-F633 do obrazowania STED. Fluorofory te zostały dobrane tak, aby pasowały do opisanego projektu eksperymentalnego, ale mogą być modyfikowane w zależności od dostępnego sprzętu i materiałów. Na przykład etykietowanie α-BTX F488 można wybrać w przypadku korzystania z lasera STED CW 592 nm do akwizycji obrazu i kwantyfikacji. Wydaje się jednak, że konfiguracja, która została zastosowana w niniejszym badaniu (wzbudzenie impulsowe bramkowane STED, zubożenie 775 nm) wykazuje wyższą wydajność i lepszą rozdzielczość niż inne podejścia, takie jak STED39 z falą ciągłą, co czyni ją bardziej odpowiednią do obecnego zastosowania. Ważne jest również, aby starannie dobrać ustawienia mocy lasera, zwłaszcza dla STED (zarówno wzbudzenia, jak i zubożenia), ponieważ charakterystyka profilu intensywności nie może być zmierzona w przypadku nasycenia, a zatem każdy nasycony sygnał na obrazie NMJ może zagrozić całej analizie.
Ten szczegółowy przepływ pracy, w tym akwizycja i analiza obrazu przy użyciu oprogramowania mikroskopowego i makr ImageJ, został opracowany w celu ułatwienia autonomicznej analizy morfometrycznej NMJ za pomocą mikroskopii konfokalnej i STED z pojedynczego mięśnia. Wcześniej opisane przepływy pracy dla analizy konfokalnej NMJ, takie jak NMJ-morph2 lub NMJ-Analyser14, utorowały drogę do zaprojektowania półautomatycznych metod, które ułatwiają analizę morfologiczną NMJ i badania porównawcze. NMJ-morph (i jego zaktualizowana wersja aNMJ-morph15) to darmowa platforma oparta na ImageJ, która wykorzystuje projekcję maksymalnej intensywności do pomiaru 21 cech morfologicznych, a NMJ-Analyser wykorzystuje skrypt opracowany w Pythonie, który generuje 29 istotnych parametrów z całej struktury 3D NMJ. Ręczne progowanie jest jedynym krokiem podczas przetwarzania obrazu w tych dwóch metodach, który wymaga analizy użytkownika. Ten zintegrowany protokół szczegółowo opisuje etapy przygotowania tkanki, akwizycji obrazów konfokalnych 3D i przetwarzania NMJ z całych mięśni szkieletowych w oparciu o ImageJ i zapewnia uproszczony przegląd pięciu ważnych parametrów postsynaptycznych (objętość, maksymalny obszar projekcji i krętość) i presynaptycznych (zajętość końców aksonów i akumulacja neurofilamentów). Dodatkowy parametr o znaczeniu biologicznym, wzorzec organizacji AChR postsynaptycznych fałdów połączeniowych, został włączony do analizy morfometrycznej na poziomie nanoskali za pomocą superrozdzielczej mikroskopii STED (rozdzielczość 20-30 nm)40. Co ciekawe, przygotowanie tkanek do obrazowania STED jest prostsze niż inne metody stosowane w badaniach ultrastrukturalnych NMJ, takie jak konwencjonalna transmisyjna mikroskopia elektronowa (TEM)9, która jest dość złożoną i czasochłonną procedurą, która wymaga wykwalifikowanego manipulatora w celu uzyskania ultracienkich odcinków odpowiedniego obszaru mięśniowego. Ponadto dane ilościowe z wielu zagięć złączy można uzyskać automatycznie za pomocą oprogramowania powiązanego z STED.
Protokół ten został zastosowany w celu zilustrowania wcześniej znanych defektów NMJ w mięśniach z niedoborem SMN i ColQ 20,36,41,42. Wspólne zmiany stwierdzono w dwóch modelach mysich za pomocą mikroskopii konfokalnej, takie jak zmniejszona objętość postsynaptycznej płytki końcowej, obszar MIP i względna krętość oraz zwiększona akumulacja neurofilamentów, podczas gdy niektóre bardziej szczegółowe wyniki (zmniejszone zajętość NMJ) zaobserwowano tylko u myszy SMA, jako wskaźnik upośledzonego transportu pęcherzyków36. Wreszcie, wzrost odległości i szerokości pasków AChR wykryto w ColQ-KO za pomocą analizy STED, które są oznakami defektów ultrastrukturalnych w postsynaptycznych fałdach połączeniowych, jak wcześniej zaobserwowano w TEM20. Co ważne, protokół ten może pomóc w bardziej dogłębnej charakterystyce morfologicznej połączeń nerwowo-mięśniowych podczas rozwoju, utrzymania i w różnych stanach patologicznych.
Oświadczenia
Autorzy deklarują, że nie ma konfliktu interesów związanego z tą pracą.
Podziękowania
Dziękujemy "Centralnemu Ośrodku Obrazowania i Cytometrii" firmy Genethon, a także służbie histologicznej, które są częściowo wspierane przez fundusze sprzętowe z Regionu Ile-de-France, Conseil General de l'Essonne, Genopole Recherche z Evry, Uniwersytetu Evry Val d'Essonne i INSERM we Francji. Jesteśmy również wdzięczni dr Rashmi Kothary za dostarczenie linii myszy Smn2B/2B (University of Ottawa, Kanada) oraz dr Ericowi Krejci za linię myszy ColQDex2/+ (niepublikowanej, Uniwersytet Paryski, Francja). Dziękujemy Guillaume'owi Corre za jego wsparcie w analizie statystycznej. Przeciwciała monoklonalne 2H3 (opracowane przez Jessel, TM i Dodd, J.) i SV2 (opracowane przez Buckley, KM) uzyskano z Developmental Studies Hybridoma Bank (DSHB), utworzonego przez NICHD NIH i utrzymywanego na Uniwersytecie Iowa, Wydział Biologii, Iowa City, IA 52242. Prace te były wspierane przez Association Française contre les Myopathies (AFM-Telethon), INSERM i Uniwersytet w Evry Val d'Essonne.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Buffers and Reagents | |||
| Alexa Fluor 488 kozia anty-mysia IgG (F488) | Life Technologies, Thermofisher | A-11001 | |
| Alexa Fluor 488 α-bungarotoxin (F488-a-BTX) | Life Technologies, Thermofisher | B13422 | |
| Alexa Fluor 594 kozia anty-mysia IgG (F594) | Life Technologies, Thermofisher | A-11032 | |
| ATTO-633 α-bungarotoksyna (F633-a-BTX) | Alomone Labs | B-100-FR | |
| Albumina surowicy bydlęcej (BSA) | Sigma | A2153 | |
| DAPI Fluoromount-G | Southern Biotech | 00-4959-52 | |
| DPBS | Gibco, Invitrogen | 14190-169 | |
| Absolutny etanol VWR | 20821.296 | ||
| Olejek immersyjny, n = 1.518 | THORLABS | MOIL-10LF | Niska autofluorescencja |
| Przeciwciało neurofilamentowe (NF-M) | DSHB | AB_531793 | |
| Paraformaldehyd (PFA) | MERCK | 1.04005 | |
| Przeciwciało przeciwko glikoproteinie pęcherzyków synaptycznych 2 (SV2) | DSHB | AB_2315387 | |
| Triton X-100 | Sigma | T8787 | |
| Materiały | |||
| Alnico Magnesy cylindryczne | Farnell France | E822 | średnica 19,1 mm przy maksymalnym uciągu 1,9 Kg |
| 63x 1,4 NA magnitudo olejek immersyjny HCX Plan Apo CS obiektyw | Leica Microsystems | ||
| 100x 1.4 NA HC PL APPO CS2 Obiektyw | Zeiss | ||
| Zakrzywione cienkie kleszcze-Kleszczyki do tęczówki Moria | Fine Science Tools | 11370-31 | |
| Ekstra cienkie nożyczki - Vannas-Tü Bingen Nożyczki sprężynowe | Fine Science Tools | 15-003-08 | |
| Kleszcze drobno ząbkowane | Euronexia | P-95-AA | |
| Końcówka ładująca żel okrągła 1-200 i mikro; L | COSTAR | 4853 | |
| Laserowy skaningowy mikroskop konfokalny Leica TCS SP8 | Leica Microsystems | ||
| Leica Laserowy skaningowy mikroskop konfokalny TCS SP8 bramkowany STED 775 nm | Leica Microsystems | ||
| Chusteczka do czyszczenia soczewek | Whatman (GE Healthcare) | 2105-841 | |
| Kleszcze średnio ząbkowane | Euronexia | P-95-AB | |
| Okulary nakrywkowe do mikroskopu 24x50 nm Nr 1,5H 170± 5 & mikro; m | Marienfield | 107222 | Precyzyjna |
| powierzchnia delta Nunclon (płytki 12-dołkowe) | Thermo Scientific | ||
| Powierzchnia delta nunclon (płytki 24-dołkowe) | Thermo Scientific | ||
| Skalpel Safeshield | Feather | 02.001.40.023 | |
| Ostro-nożyczki - drobne Nożyczki - martenzytyczne Stal nierdzewna | Fine Science Tools | 14094-11 | |
| Prowadnice Superfrost plus | Thermo Scientific | J1800AMNZ | |
| Software | |||
| GraphPad | Prism, San Diego (US) | Wydanie N° 6.07 | Oprogramowanie statystyczne |
| Oprogramowanie ImageJ | National Institutes of Health | Release N° 1.53f | |
| Oprogramowanie Leica Application Suite X | Leica Microsystems | N° 3.7.2.2283 | Darmowe oprogramowanie mikroskopowe dostępne na https://www.leica-microsystems.com/products/microscope-software/p/leica-las-x-ls/downloads/ |
Bibliografia
- Slater, C. R. Postnatal maturation of nerve-muscle junctions in hindlimb muscles of the mouse. Developmental Biology. 94 (1), 11-22 (1982).
- Jones, R. A., et al. NMJ-morph reveals principal components of synaptic morphology influencing structure-function relationships at the neuromuscular junction. Open Biology. 6 (12), (2016).
- Willadt, S., Nash, M., Slater, C. Age-related changes in the structure and function of mammalian neuromuscular junctions. Annals of the New York Academy of Sciences. 1412, 41-53 (2018).
- Boehm, I., et al. Comparative anatomy of the mammalian neuromuscular junction. Journal of Anatomy. 237 (5), 827-836 (2020).
- Nishimune, H., Shigemoto, K. Practical anatomy of the neuromuscular junction in health and disease. Neurologic Clinics. 36 (2), 231-240 (2018).
- Moloney, E. B., de Winter, F., Verhaagen, J. ALS as a distal axonopathy: molecular mechanisms affecting neuromuscular junction stability in the presymptomatic stages of the disease. Frontiers in Neuroscience. 8, (2014).
- Lovering, R. M., Iyer, S. R., Edwards, B., Davies, K. E. Alterations of neuromuscular junctions in Duchenne muscular dystrophy. Neuroscience Letters. 737, 135304(2020).
- Koneczny, I., Herbst, R. Myasthenia Gravis: Pathogenic effects of autoantibodies on neuromuscular architecture. Cells. 8 (7), 671(2019).
- Dowling, J. J., et al. Myotubular myopathy and the neuromuscular junction: a novel therapeutic approach from mouse models. Disease Models & Mechanisms. 5 (6), 852-859 (2012).
- Gibbs, E. M., et al. Neuromuscular junction abnormalities in DNM2-related centronuclear myopathy. Journal of Molecular Medicine. 91 (6), 727-737 (2013).
- Swoboda, K. J., et al. Natural history of denervation in SMA: Relation to age, SMN2 copy number, and function. Annals of Neurology. 57 (5), 704-712 (2005).
- Rodríguez Cruz, P. M., Palace, J., Beeson, D. The neuromuscular junction and wide heterogeneity of congenital myasthenic syndromes. International Journal of Molecular Sciences. 19 (6), 1677(2018).
- Tse, N., et al. The neuromuscular junction: Measuring synapse size, fragmentation and changes in synaptic protein density using confocal fluorescence microscopy. Journal of Visualized Experiments: JoVE. (94), e52220(2014).
- Mejia Maza, A., et al. NMJ-Analyser identifies subtle early changes in mouse models of neuromuscular disease. Scientific Reports. 11 (1), 12251(2021).
- Minty, G., et al. aNMJ-morph: a simple macro for rapid analysis of neuromuscular junction morphology. Royal Society Open Science. 7 (4), 200128(2020).
- Modla, S., Mendonca, J., Czymmek, K. J., Akins, R. E. Identification of neuromuscular junctions by correlative confocal and transmission electron microscopy. Journal of Neuroscience Methods. 191 (2), 158-165 (2010).
- Kittel, R. J., et al. Bruchpilot promotes active zone assembly, Ca2+ channel clustering, and vesicle release. Science. 312 (5776), 1051-1054 (2006).
- York, A. L., Zheng, J. Q. Super-resolution microscopy reveals a nanoscale organization of acetylcholine receptors for trans-synaptic alignment at neuromuscular synapses. eNeuro. 4 (4), (2017).
- Bowerman, M., Murray, L. M., Beauvais, A., Pinheiro, B., Kothary, R. A critical smn threshold in mice dictates onset of an intermediate spinal muscular atrophy phenotype associated with a distinct neuromuscular junction pathology. Neuromuscular Disorders. 22 (3), 263-276 (2012).
- Feng, G., Krejci, E., Molgo, J., Cunningham, J. M., Massoulié, J., Sanes, J. R. Genetic analysis of collagen Q: Roles in acetylcholinesterase and butyrylcholinesterase assembly and in synaptic structure and function. Journal of Cell Biology. 144 (6), 1349-1360 (1999).
- Sigoillot, S. M., et al. Neuromuscular junction immaturity and muscle atrophy are hallmarks of the ColQ-deficient mouse, a model of congenital myasthenic syndrome with acetylcholinesterase deficiency. The FASEB Journal. 30 (6), 2382-2399 (2016).
- Vanhaesebrouck, A. E., Beeson, D. The congenital myasthenic syndromes: expanding genetic and phenotypic spectrums and refining treatment strategies. Current Opinion in Neurology. 32 (5), 696-703 (2019).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH image to ImageJ: 25 years of image analysis. Nature Methods. 9 (7), 671-675 (2012).
- ImageJ. , Available from: http://imagej.nih.gov/ij (2021).
- Linkert, M., et al. Metadata matters: access to image data in the real world. Journal of Cell Biology. 189 (5), 777-782 (2010).
- Bio-Formats. , Available from: http://www.openmicroscopy.org/bio-formats/downloads/ (2021).
- Legland, D., Beaugrand, J. Automated clustering of lignocellulosic fibres based on morphometric features and using clustering of variables. Industrial Crops and Products. 45, Supplement C 253-261 (2013).
- ImageJ documentation. , Available from: http://imagejdocu.tudor.lu/plugin/analysis/geodesic_distances/start (2021).
- GitHUb. , Available from: https://github.com/Genethon/ImCy (2021).
- Otsu, N. A Threshold selection method from gray-level histograms. IEEE Transactions on Systems, Man, and Cybernetics. 9 (1), 62-66 (1979).
- Sanes, J. R., Lichtman, J. W. Induction, assembly, maturation and maintenance of a postsynaptic apparatus. Nature Reviews Neuroscience. 2 (11), 791-805 (2001).
- Kong, L., et al. Impaired synaptic vesicle release and immaturity of neuromuscular junctions in spinal muscular atrophy mice. The Journal of Neuroscience. 29 (3), 842-851 (2009).
- Cifuentes-Diaz, C., et al. Neurofilament accumulation at the motor endplate and lack of axonal sprouting in a spinal muscular atrophy mouse model. Human Molecular Genetics. 11 (12), 1439-1447 (2002).
- Murray, L. M., Comley, L. H., Thomson, D., Parkinson, N., Talbot, K., Gillingwater, T. H. Selective vulnerability of motor neurons and dissociation of pre- and post-synaptic pathology at the neuromuscular junction in mouse models of spinal muscular atrophy. Human Molecular Genetics. 17 (7), 949-962 (2008).
- Boyer, J. G., et al. Myogenic program dysregulation is contributory to disease pathogenesis in spinal muscular atrophy. Human Molecular Genetics. 23 (16), 4249-4259 (2014).
- Ling, K. K. Y., Gibbs, R. M., Feng, Z., Ko, C. -P. Severe neuromuscular denervation of clinically relevant muscles in a mouse model of spinal muscular atrophy. Human Molecular Genetics. 21 (1), 185-195 (2012).
- Murray, L., Gillingwater, T. H., Kothary, R. Dissection of the transversus abdominis muscle for whole-mount neuromuscular junction analysis. Journal of Visualized Experiments: JoVE. (83), e51162(2014).
- Baker, J. R. Principles of biological microtechnique; a study of fixation and dyeing. , Wiley. London Methuen; New York. at http://archive.org/details/principlesofbiol01bake (1958).
- Vicidomini, G., et al. STED Nanoscopy with time-gated detection: Theoretical and experimental aspects. PLoS ONE. 8 (1), 054421(2013).
- Badawi, Y., Nishimune, H. Super-resolution microscopy for analyzing neuromuscular junctions and synapses. Neuroscience Letters. 715, 134644(2020).
- Thomson, S. R., et al. Morphological characteristics of motor neurons do not determine their relative susceptibility to degeneration in a mouse model of severe spinal muscular atrophy. PLoS ONE. 7 (12), 052605(2012).
- McMacken, G. M., et al. Salbutamol modifies the neuromuscular junction in a mouse model of ColQ myasthenic syndrome. Human Molecular Genetics. 28 (14), 2339-2351 (2019).
Przedruki i uprawnienia
