Artykuł metodologiczny

Nieunikniony protokół ekspozycji na zapach kota do badania wrodzonego i kontekstowego warunkowania zagrożeń u szczurów

4.3K wyświetleń

DOI:

10.3791/63078

10 listopada 2021

W tym artykule

Podsumowanie

Streszczenie

Zwierzęta reagują na sytuacje zagrażające, wykazując szereg zachowań obronnych, w tym unikanie, zamrażanie i ocenę ryzyka. Model zwierzęcy z podejściem etologicznym oferuje głębszy wgląd w mechanizmy biologiczne leżące u podstaw reakcji na zagrożenia. W artykule opisano metodologię pomiaru zachowań obronnych wobec zarówno wrodzonych, jak i wyuczonych bodźców awersyjnych u szczurów. Zwierzęta były indywidualnie wystawiane na zapach drapieżnika w nieuniknionej komorze, aby wywołać mierzalny, trwały stan obronny. Projekt eksperymentalny polegał na umieszczeniu szczura w znanej komorze na 10 minut, a następnie wystawieniu na działanie zapachu kota przez kolejne 10 minut w tym samym kontekście. Następnego dnia szczury były ponownie wystawione na 10 minut w tej samej komorze kontekstowej, w której wystąpiła ekspozycja na zapach kota. Sesje były nagrywane na wideo, a zachowania obronne były oceniane w oba dni.

Test behawioralny został połączony z odwracalną funkcjonalną inaktywacją i technikami immunohistochemicznymi c-Fos, aby określić rolę kory interoceptywnej w reakcjach na zagrożenia. Szczury wystawione na zapach kota pierwszego dnia i ponownie wystawione na działanie komory kontekstowej drugiego dnia wykazywały wyższy poziom zachowań obronnych, a zapach kota wywołał znaczny wzrost aktywności neuronalnej kory interoceptywnej. Co więcej, inaktywacja kory interoceptywnej muscymolem zmniejszyła ekspresję zachowań obronnych w odpowiedzi na zapach kota i upośledzała kontekstową pamięć zagrożeń. Wyniki te pokazują, że ten test behawioralny jest użytecznym narzędziem do badania mechanizmów neuronalnych zachowań obronnych i może oferować wgląd w mechanizmy, które pośredniczą w strachu u ludzi i powiązanych z nim zaburzeniach.

Wprowadzenie

Zachowania obronne występują w odpowiedzi na bodźce, które sygnalizują potencjalne zagrożenie dla przetrwania zwierzęcia. Zachowania te są wysoce konserwatywne u ssaków i szybko związane z bodźcami lub okolicznościami związanymi z zagrożeniem1,2,3. W naturze groźnym bodźcem dla większości zwierząt są drapieżniki; Dlatego wykrywanie sygnałów drapieżników, takich jak sygnały zapachowe, jest szczególnie korzystne dla uniknięcia drapieżnictwa. Reakcje behawioralne na sygnały drapieżnika zostały szeroko zbadane u gryzoni.

Na przykład, bodźce, takie jak naturalne zapachy kociego futra czy skóry, aktywują układ węchowy i lemieszowo-nosowy, wywołując wysoki poziom zachowań obronnych4. Bodźcom tym towarzyszą zmiany w aktywności neuronalnej i hormonalnej5,6,7,8, i są silnymi, nieuwarunkowanymi, awersyjnymi bodźcami do kontekstowego warunkowania zagrożenia u szczurów7,8,9,10,11. Badania wykazały, że co najmniej 24 godziny po ekspozycji na naturalne sygnały ze strony drapieżników, szczury wykazują silne i długotrwałe stany podobne do lęku7,12,13. Zjawisko to jest szczególnie interesujące dla opracowania bardziej realistycznych modeli zespołu stresu pourazowego (PTSD)14,15,16,17, uogólnione zaburzenie lękowe ()5 oraz lęk napadowy (PD)18,19.

W warunkach laboratoryjnych zachowanie strachu jest mierzone jako ucieczka, unikanie (np. wycofanie się, ukrywanie się) lub zamrożenie. Dodatkowo, lęk może być mierzony jako pozycje rozciągające i czujne skanowanie ukierunkowane na monitorowanie bodźca drapieżnego - zestaw reakcji szeroko znanych jako zachowania związane z oceną ryzyka6,9,20. Badania wykazały, że zachowanie związane z zamrożeniem jest dominującą strategią obronną szczurów przed nieuniknionym zagrożeniem, podczas gdy ocena ryzyka jest obserwowana, gdy zagrożenie jest niejednoznaczne lub niezlokalizowane12,21,32. Chociaż wiadomo, że wrodzony lub wyuczony bodziec może wywoływać zachowania obronne, brakuje laboratoryjnych paradygmatów behawioralnych, które niezawodnie ujmują reakcje obronne w bardziej etologicznym kontekście. Aby wypełnić tę lukę, zaprojektowaliśmy protokół z podejściem etologicznym, który umożliwia pomiar trwałych wrodzonych i kontekstowych zachowań związanych z zagrożeniem wraz z reakcjami mózgu na naturalistyczne bodźce zagrożeń.

Stresujące doświadczenia, takie jak narażenie na nieunikniony zapach drapieżnika, powodują trwałe zmiany w behawioralnej i fizjologicznej reakcji u szczurów14,22,23. Zmiany te odzwierciedlają profil objawów obserwowany w zaburzeniach związanych ze strachem i lękiem, takich jak PTSD. W obecnym modelu komora testowa jest używana bez bezpiecznej kryjówki, aby wystawić szczury na nieuniknione zdarzenie zagrożenia, a tym samym wzmocnić reakcje obronne. Szczury wykazywały silne zachowania związane z zamrażaniem i oceną ryzyka w odpowiedzi zarówno na zapach kota, jak i kontekst testowy. Odkrycia te wspierają wykorzystanie tego protokołu jako wiarygodnej i ważnej metody badania mechanizmów biologicznych leżących u podstaw zachowań obronnych oraz opracowywania i udoskonalania nowych strategii leczenia zaburzeń lękowych u ludzi.

Protokół

Poniższą procedurę przeprowadzono zgodnie z zaleceniami wytycznych instytucjonalnych zawartych w Guide for the Care and Use of Laboratory Animals (NIH Publication No. 80-23, wersja z 1996 r.) National Institutes of Health (USA). Wszystkie procedury zostały zatwierdzone przez Instytucjonalny Komitet Biobezpieczeństwa i Etyki w Pontificia Universidad Católica de Chile. Wszystkie sesje eksperymentalne przeprowadzono podczas fazy aktywności szczurów (fazy ciemnej).

1. Przygotowanie pomieszczenia i komory testowej

UWAGA: Przegląd aparatury przedstawiono na Rysunku 1. Komora testowa została opracowana i zmodyfikowana zgodnie z poprzednimi badaniami24,25.

  1. Użyć przezroczystej prostokątnej komory testowej z polimetakrylanu metylu o wymiarach: 60 cm (długość) x 40 cm (szerokość) x 40 cm (wysokość). Ściany boczne oraz tylną ścianę komory testowej zakryć dowolnym czarnym papierem. Przednia ścianka komory testowej musi pozostać przezroczysta, aby umożliwić rejestrację zachowań zwierząt.
  2. W prawym dolnym rogu podłogi komory testowej zamocować stalowy wspornik, który posłuży do przymocowania obroży dla kotów podczas procedur testowych.
  3. Przed i po testach oczyścić komorę testową 5% (v/v) etanolem w celu usunięcia śladów zapachowych pozostawionych przez badane szczury i uniknięcia reakcji awersyjnej szczura. Odczekać 5 min między kolejnymi sesjami, aby etanol całkowicie odparował.
  4. Sesje testowe przeprowadzać w cichym pomieszczeniu, słabo oświetlonym czerwoną żarówką o mocy 80 W, umieszczoną 20 cm nad komorą testową. Do rejestracji zachowań zwierząt użyć kamery wideo ustawionej przed komorą.

Schemat ustawienia eksperymentu behawioralnego w labiryncie Y z myszą do analizy pamięci przestrzennej, diagram.
Rysunek 1: Schematyczny przegląd komory testowej. Aparatura składa się z przedziału testowego z: (1) otworami wentylacyjnymi, (2) ścianami bocznymi oraz (3) ścianą tylną, które są zaciemnione, oraz stalowym uchwytem zablokowanym w lewym narożniku podłogi (4) do przymocowania obroży kota (wymiary: szerokość 15 mm, grubość 5 mm, długość 300 mm). Wymiary komory są zaznaczone na rysunku (60 L x 40 W x 40 H cm). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

2. Przygotowanie zapachu kota

  1. Należy pozyskać obrożę dla kota z wewnętrzną warstwą z filcu, aby lepiej zatrzymywać zapach kota. Należy zapewnić dostęp do kilku obroży do wykorzystania jako obroża kontrolna (bez zapachu) lub obroża testowa (z zapachem kota).
    UWAGA: Kluczowym punktem jest to, aby obroża dla kota posiadała wewnętrzną wyściółkę służącą do gromadzenia i zatrzymywania zapachów.
  2. Należy założyć obrożę domowej kotce po ovariektomii i pozwolić zwierzęciu nosić ją przez tydzień przed rozpoczęciem testów. Należy starać się utrzymywać kotkę w pomieszczeniach podczas noszenia obroży testowej.
    UWAGA: Przez cały okres badania należy używać tego samego kota.
  3. Użytkowaną obrożę dla kota należy przechowywać w szczelnym plastikowym pojemniku w temperaturze 4 °C. Należy wymieniać zużytą obrożę na nową, zawierającą świeży zapach kota, co trzy dni.

3. Przygotowanie szczurów do procedury eksperymentalnej

  1. Należy wykorzystać dorosłe samce szczurów rasy Sprague-Dawley o masie 270-290 g. Należy je utrzymywać w osobnych klatkach z dostępem do paszy i wody ad libitum.
  2. [Opcjonalnie] Przygotowanie szczurów do procedury chirurgicznej (opcjonalnie)
    1. Operację należy przeprowadzić w warunkach sterylnych. Obszar roboczy należy oczyścić i zdezynfekować za pomocą roztworu 70% etanolu, a wszystkie materiały i instrumenty chirurgiczne należy wysterylizować.
    2. Szczura należy znieczulić poprzez dostarczenie do jamy brzusznej mieszaniny ketaminy (100 mg/kg) i ksylazyny (20 mg/kg). Należy odczekać do osiągnięcia odpowiedniej głębokości znieczulenia, gdy szczur nie reaguje na bodziec w postaci ucisku palca u stopy lub stymulację rogówki. Aby utrzymać stan znieczulenia przez cały czas trwania operacji, należy podawać dodatkową dawkę koktajlu znieczulającego co 45 min.
    3. Należy delikatnie ogolić głowę szczura od okolic za uszami do miejsca między oczami, a następnie zdezynfekować pole operacyjne za pomocą sterylnego gazika nasączonego alkoholem, a następnie roztworem powidonu jodowego. Należy zastosować smarującą maść do oczu, aby zapobiec wysychaniu rogówki podczas procedury chirurgicznej.
    4. Szczura należy umieścić w aparacie stereotaktycznym i unieruchomić głowę, odpowiednio pozycjonując pręty uszne w kanałach słuchowych. Następnie należy delikatnie wprowadzić siekacze szczura do pręta do siekaczy i zabezpieczyć zacisk nosowy.
    5. W uchwycie stereotaktycznym należy umieścić sterylną stalową kaniulę prowadzącą 26 G. Za pomocą skalpela należy wykonać cięcie w linii środkowej wzdłuż skóry głowy. Wokół nacięcia (2-3 cm) należy umieścić 2 lub więcej zacisków.
    6. Należy całkowicie oczyścić czaszkę z tkanek, aż do momentu, gdy widoczne staną się szwy czaszkowe bregma i lambda.
    7. Symetryczne ustawienie głowy należy zweryfikować poprzez wyrównanie osi grzbietowo-brzusznej i przednio-tylnej czaszki, odpowiednio za pomocą pręta do siekaczy i prętów usznych. Należy określić współrzędne kaniuli prowadzącej dla interesującego regionu mózgu. Bregma i lambda należy utrzymać w tej samej płaszczyźnie poziomej za pomocą pręta do siekaczy.
    8. Należy obliczyć współrzędne miejsca implantacji kaniuli prowadzącej w obszarze zainteresowania, zgodnie ze współrzędnymi stereotaktycznymi atlasów Paxinosa i Watsona26 lub Swansona27.
      UWAGA: Dla pierwotnej interoceptywnej kory wyspy zastosowano następujące współrzędze stereotaktyczne: Bregma -0,51 mm, linia środkowa 5,0 mm, głębokość od powierzchni czaszki 4,5 mm, kąt 10° przyśrodkowo od pionu.
    9. Współrzędne implantacji kaniuli prowadzącej należy sprawdzić, opuszczając ją do momentu dotknięcia czaszki, a następnie wywiercić otwór w czaszce w zweryfikowanym miejscu. Należy wywiercić 3 dodatkowe otwory wokół obszaru docelowego, aby wkręcić w czaszkę 3 śruby.
    10. Należy wprowadzić kaniulę do interesującego obszaru mózgu i za pomocą śrub oraz akrylu dentystycznego przymocować kaniulę do czaszki. Akryl dentystyczny należy nalać na suchą czaszkę, upewniając się, że pokrywa on śruby, aby unieruchomić kaniulę. Po stwardnieniu akrylu dentystycznego należy ostrożnie zdjąć ramię stereotaktyczne, pozostawiając kaniulę prowadzącą na miejscu.
      UWAGA: Procedura ta unieruchamia zaimplantowaną kaniulę i pozwala badaczom na wykonanie wielokrotnych mikroiniekcji w obszarze zainteresowania.
    11. Do kaniuli prowadzącej należy włożyć stalowy stylet, aby zapobiec zatorom i kontaminacji.
    12. Po zakończeniu operacji należy podać pojedynczą dawkę antybiotyku (enrofloksacyna 5%; 19 mg/kg i.p.) oraz leku przeciwzapalnego (ketofen 0,2 mg/kg i.p.). Krok ten należy powtarzać przez trzy kolejne dni po operacji.
    13. Przed rozpoczęciem eksperymentów należy pozwolić szczurom na pełną rekonwalescencję przez co najmniej jeden tydzień.
  3. Szczury należy utrzymywać w odwróconym 12/12 h cyklu światło/ciemność (światło zapalone o godzinie 19:00) przez co najmniej dziesięć dni przed rozpoczęciem eksperymentów (Rycina 2).
    UWAGA: Jeśli badacz musi przeprowadzić jakąkolwiek procedurę chirurgiczną, należy ją wykonać przed odwróceniem cyklu ciemność-światło. Pozwala to na zmniejszenie stresu po operacji.
  4. Wszystkie szczury należy poddawać manipulacjom przez 20 min/dobę przez 2-3 dni. Należy brać jednego szczura na raz, pewnie trzymać zwierzę za tułów (nie za ogon) i w tym czasie go głaskać. Jeśli zwierzęta wykazują oznaki stresu, czas manipulacji należy wydłużyć.
    UWAGA: Krok ten jest krytyczny dla zminimalizowania stresu związanego z manipulacjami, który może wpłynąć na kolejne etapy.
  5. Przed eksperymentami należy poddać zwierzęta ekspozycji na komorę testową (komora z zapachem kota z nienoszona obrożą kota) przez 30 min/dobę przez trzy dni, aby zwierzęta mogły zaadaptować się do kontekstu testowego.
    UWAGA: Sugeruje się, aby badacz nie używał perfum ani balsamów o intensywnym zapachu.
  6. Po umieszczeniu zwierzęcia w komorze należy odczekać około 10-15 min, wprowadzić rękę do komory testowej i zamienić obrożę kota na inną obrożę kota o tych samych właściwościach.
    ​UWAGA: Krok ten jest krytyczny dla jak najdokładniejszego zasymulowania każdego etapu procedur behawioralnych w celu zminimalizowania stresu, który mógłby wpłynąć na wyniki behawioralne szczura w ostatnich 10 min testu.
  7. Między sesjami komorę testową należy czyścić 5% (v/v) etanolem.

Schemat czasowy habituacji i testów kontekstowych w ciągu 12 dni w eksperymencie R-Dark/Light.
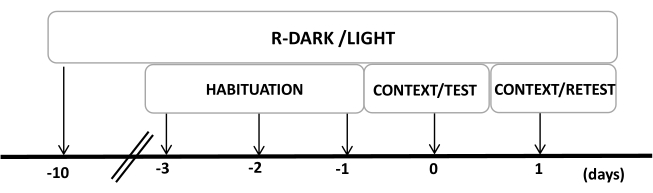
Rycina 2: Harmonogram projektu eksperymentalnego. Szczury były poddawane odwróconemu cyklowi ciemność-światło przez 10 dni, a następnie przez ostatnie trzy dni habituowane przez 30 min w komorze testowej zawierającej kontrolną (nienoszoną) obrożę dla kota. W dniu 0 szczury były najpierw poddane działaniu znanej komory testowej (CONTEXT) przez 10 min, a następnie wystawione na działanie obroży z zapachem kota lub bez niego przez kolejne 10 min (TEST) w tym samym kontekście. W dniu 1 szczury, które w dniu 0 były poddane działaniu zapachu kota (TEST), zostały ponownie umieszczone w tej samej komorze testowej na 10 min (CONTEXT), a następnie ponownie wystawione na działanie zapachu kota (RETEST) przez kolejne 10 min. Rycina została zmodyfikowana na podstawie 8. Skrót: R-Dark/light = odwrócony cykl ciemność-światło. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.

4. Procedury testu zapachu kota

  1. W dniu 0 protokołu eksperymentalnego oceniono reakcje na zagrożenie wywołane zapachem kota.
  2. W razie potrzeby, przed testami behawioralnymi, wykonano iniekcje do kory zgodnie z opisaną poniżej metodą. W przypadku realizacji wyłącznie protokołu behawioralnego należy pominąć ten krok i przejść do punktu 4.3.
    1. Po usunięciu zatyczki, do kaniuli prowadzącej wprowadzono sterylną kaniulę iniekcyjną 33 G połączoną ze strzykawką Hamiltona o pojemności 1 µL.
    2. Strzykawkę Hamiltona napełniono sterylną solą fizjologiczną (szczury kontrolne) lub agonistą receptorów GABA-A, muskimolem (szczury badawcze), a następnie wstrzykiwano 0,5 µL/półkulę w ciągu 2 min. Odczekano 2 min w celu umożliwienia dyfuzji leku, powoli wyjęto kaniulę iniekcyjną i natychmiast wstawiono zatyczki.
      UWAGA: Krok ten należy wykonywać u spokojnego, budzącego się zwierzęcia, a leki wstrzykiwać powoli, aby zminimalizować drgania kaniuli iniekcyjnej i wynikającą z tego dyfuzję do sąsiednich obszarów mózgu.
    3. Po zakończeniu iniekcji do kory/półkuli odczekano 30 min i przystąpiono do następnego kroku.
  3. Zwierzęta umieszczono w komorze testowej na 20 min. Przez pierwsze 10 min zwierzęta eksponowano na nieużywaną, znaną obrożę. W ciągu kolejnych 10 min wprowadzono obrożę nasączoną zapachem kota (TEST) lub nieużywaną, znaną obrożę (CONTEXT) (Rysunek 3).

Wpływ zapachu kota na zamieranie i ocenę ryzyka; analiza wykresu liniowego, wyniki eksperymentu behawioralnego.
Rycina 3: Ekspozycja na zapach kota zwiększa wrodzone zachowania obronne. (A, B) Szczury były najpierw eksponowane na znaną komorę testową (KONTEKST) przez 10 min, a następnie na obrożę z zapachem kota (grupa z zapachem kota, czarne kółka) lub bez zapachu kota (grupa bez zapachu, białe kółka) przez dodatkowy okres 10 min (TEST) w tym samym kontekście. Kółka przedstawiają procent czasu spędzonego na zamieraniu (B) i ocenie ryzyka (C) u naiwnych szczurów. Dane przedstawiono jako średnie +SEM. *p < 0.05. Rycina została zmodyfikowana na podstawie 8. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

  1. Ustaw kamerę przed komorą testową i nagraj zachowanie zwierzęcia do późniejszej oceny behawioralnej przez eksperymentatora nieznającego warunków doświadczalnych.
  2. Po zakończeniu sesji z zapachem kota przenieś zwierzęta do ich klatek macierzystych i umieść je z powrotem w pomieszczeniu dla zwierząt do czasu następnej sesji.
  3. Między sesjami oczyść komorę testową 5% (v/v) etanolem.
  4. Dwadzieścia cztery godziny po sesji z zapachem kota (Dzień 1) oceń reakcje obronne na kontekst testowy.
  5. W razie potrzeby powtórz krok 4.2 przed ekspozycją na kontekst.
  6. Umieść szczury w tej samej komorze testowej z nieużywaną, znaną obrożą i oceń zachowania obronne w celu pomiaru pamięci o kontekstowym zagrożeniu w ciągu 10 min (Rysunek 4).
  7. Ustaw kamerę przed komorą testową i nagraj zachowanie zwierzęcia do późniejszej oceny behawioralnej przez eksperymentatora nieznającego warunków doświadczalnych.
  8. W ciągu kolejnych 10 min zastąp nieużywaną znaną obrożę, ponownie poddaj zwierzę działaniu obroży z zapachem kota i zmierz zachowania obronne.
  9. Po drugiej ekspozycji na zapach kota przenieś zwierzę do klatki macierzystej i oczyść komorę testową 5% (v/v) etanolem. Umieść szczura z powrotem w pomieszczeniu dla zwierząt.

Wykres zachowań obronnych; zamieranie vs. ocena ryzyka; kontekst i fazy testowe; badanie behawioralne.
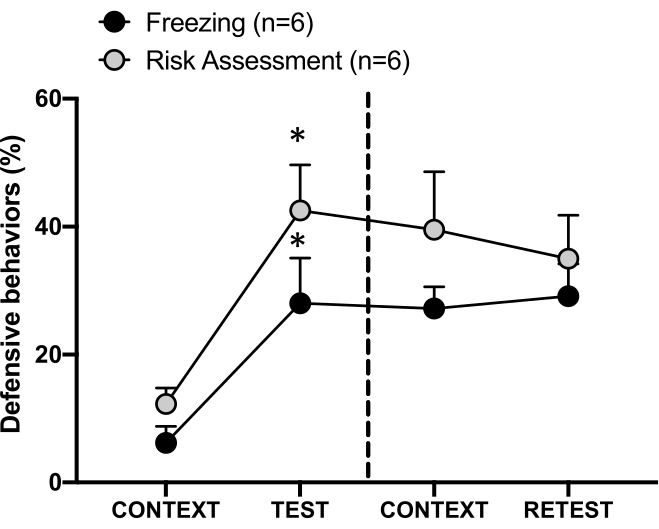
Rycina 4: Kontakt z zapachem kota indukuje kontekstową naukę zagrożenia. Koła przedstawiają procent czasu spędzonego na zamieraniu (czarne koła) oraz na zachowaniach związanych z oceną ryzyka (szare koła). Linia przerywana oddziela test wrodzonego lęku (dzień 0, lewa strona) od testu lęku kontekstowego (dzień 1, prawa strona). Dane przedstawiono jako średnie + SEM. *p < 0.05. Rycina została zmodyfikowana na podstawie źródła 8. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

5. Procedury immunohistochemiczne

  1. Zanurz zwierzę w narkozie, podając dootrzewnowo mieszankę ketaminy (0,45 mg/kg) i ksylazyny (0,05 mg/kg) 90 min po zakończeniu eksperymentów. Następnie uśmierć szczura poprzez perfuzję transkardialną 4% paraformaldehydem.
    UWAGA: Jeśli konieczna jest ocena pierwszej ekspozycji na zapach kota, uwarunkowanej odpowiedzi na kontekst lub ponownej ekspozycji na zapach kota, wykonaj ten krok po każdej z tych sytuacji eksperymentalnych. Noś rękawice oraz fartuch laboratoryjny i obchodź się z paraformaldehydem ostrożnie pod dygestorium chemicznym.
  2. Po perfuzji utrwal mózg w tym samym roztworze utrwalającym przez 2 h, a następnie przenieś go do 30% sacharozy z 0,02% azydkiem sodu w soli fizjologicznej z buforem fosforanowym (PBS), aż mózg opadnie na dno. Przechowuj mózg w temperaturze 4 °C.
  3. Zamroź mózg za pomocą suchego lodu i potnij go na seryjne przekroje koronalne o grubości 50 µm przy użyciu mikrotomu ślizgowego. Zbierz trzy zestawy przekrojów mózgu z obszaru zainteresowania, zostawiając jeden do weryfikacji umiejscowienia kaniuli i dwa zestawy do procedury immunohistochemicznej.
  4. Inkubuj wolnopływające przekroje mózgu w 0,3% H2O2 w PBS przez 30 min, przemyj w PBS, a następnie przenieś przekroje do roztworu blokującego (0,4% Triton X-100, 0,02% azydku sodu, 3% normalnego surowicy koziej w PBS) na 1 h.
  5. Przenieś przekroje do roztworu inkubacyjnego z przeciwciałami pierwszorzędowymi zawierającego przeciwciało c-Fos rozcieńczone 1:20 000 w roztworze blokującym i pozostaw je na noc w temperaturze pokojowej.
  6. Płucz przekroje w PBS przez 1 h, a następnie inkubuj je w roztworze przeciwciał wtórnych rozcieńczonym 1:1 000 w 0,4% Triton X-100 i 1,5% normalnej surowicy koziej w PBS.
  7. Płucz przekroje przez 40 min i inkubuj je przez 1 h w systemie peroksydazy opartej na awidynie/biotynie (patrz Tabela materiałów), rozcieńczonym 1:500 w PBS.
  8. Przepłucz i inkubuj przekroje w 0,05% roztworze chlorowodorku 3-3′-diaminobenzydyny (DAB) zawierającym 0,003% H2O2 i 0,05% chlorku niklu, aby uzyskać ciemnoniebieski produkt reakcji.

6. Liczenie komórek

  1. Obejrzyj skrawki pod kamerą lucida, używając obiektywu o małym powiększeniu (10x), aby zlokalizować punktowe barwienie c-Fos w jądrach neuronów (Rysunek 5).
  2. Użyj siatki liczeniowej dostosowanej do rozmiaru obszaru zainteresowania. Na przykład dla pIC, od Bregma 0,95 do -0,26, użyj siatki liczeniowej 0,25 mm x 1 mm; od Bregma -0,51 do -2,45 mm, użyj siatki liczeniowej 0,5 mm x 1 mm.
  3. Ilościowo określ liczbę komórek immunoreaktywnych dla c-Fos (Fos-ir) na skrawku, korzystając z cyfrowego licznika ręcznego.
  4. Policz wszystkie interesujące przekroje czołowe dwukrotnie i upewnij się, że liczenia wykonuje ten sam obserwator, który nie zna warunków eksperymentalnych.
  5. Wykonaj zdjęcie, używając mikroskopu sprzężonego z kamerą cyfrową.

Wpływ ekspozycji na zapach kota na neurony Fos-ir; obrazy mikroskopowe i analiza na wykresie słupkowym; wyniki eksperymentalne.
Rysunek 5: Zapach kota wywołuje aktywację neuronalną w pierwotnej korze interoceptywnej. (A) Reprezentatywna mikrofotografia pIC wykazująca niemal całkowity brak komórek c-Fos-ir (czarne groty strzałek) u szczurów eksponowanych na nieużywaną obrożę dla kota (brak zapachu, lewa strona) w porównaniu ze znacznie zwiększoną liczbą komórek c-Fos-ir u szczurów eksponowanych na zapach kota (prawa strona). (B) Ilościowe oznaczenie komórek c-Fos-ir w pIC w obu warunkach eksperymentalnych. Dane przedstawiono jako średnie + SEM. *p < 0.05. Paski skali = 200 µm. Rysunek zmodyfikowano na podstawie 8. Skróty: pIC = primary interoceptive cortex; c-fos-ir = c-Fos-immunoreactive. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

7. Analiza danych

  1. Oceń zachowania obronne na podstawie nagrań wideo z eksperymentów i przeanalizuj je przy użyciu oprogramowania statystycznego.
  2. Oceń zamieranie poprzez pomiar czasu trwania poszczególnych epizodów, wyrażony jako procent czasu spędzonego w bezruchu w ciągu 10 min. Oblicz procent zamierania, korzystając z równania (1).
    Zamrażanie = (czas zamrażania w sekundach/600 s) × 100 (1)
    UWAGA: Zamarcie zdefiniowano jako całkowity brak ruchu, z wyjątkiem oddychania, trwający co najmniej 1 s28.
  3. Oceń ryzyko poprzez pomiar czasu trwania serii czujnego skanowania i wyraź go jako procent czasu spędzonego na ocenie ryzyka w ciągu 10 min. Oblicz procent oceny ryzyka, korzystając z rów. (2).
    % Ocena ryzyka = (czas spędzony na ocenie ryzyka w sekundach/600 s) × 100 (2)
    UWAGA: Zachowanie oceny ryzyka zdefiniowano jako czujne skanowanie otoczenia (obserwacja, ruchy głową z boku na bok, bez przemieszczania się) trwające co najmniej 1 s29.
  4. Oceń te parametry behawioralne ręcznie i upewnij się, że są one zliczane przez eksperymentatora zaślepionego na warunki eksperymentalne (tj. warunki zapachowe i lekowe). W zależności od normalności rozkładów zbiorów danych zastosuj testy parametryczne lub nieparametryczne do porównania dwóch lub więcej grup.
    UWAGA: W niniejszym badaniu wszystkie testy statystyczne przeprowadzono przy użyciu oprogramowania SPSS.
    1. Zastosuj test Kruskala-Wallisa H-test z użyciem testu Manna-Whitneya U-test do porównań parowych między grupami.
    2. Przeprowadź analizę porównań wewnątrzgrupowych w czasie, stosując test Friedmana, a następnie test Wilcoxona dla porównań parzystych.
      UWAGA: Na wszystkich rycinach poziomy istotności ustalono na p < 0,05 (*) oraz p < 0.01 (**).
  5. W celu analizy ekspresji c-Fos w konkretnych obszarach mózgu, należy policzyć liczbę komórek c-Fos-dodatnich w każdym przekroju, obliczając gęstość komórek c-Fos-ir na mm²2or porównać średnią liczbę między grupą kontrolną (brak zapachu) a grupą stymulowaną (zapach kota).
    1. W zależności od rozkładu danych, należy zastosować nieparowany test t Studenta t-test lub test Manna-Whitneya U-test.
      UWAGA: W niniejszym badaniu test Mann-Whitneya Uzastosowano test; różnice uznano za istotne, jeśli p < 0.05 (*).

Wyniki

W niniejszym protokole procenty zamrożenia (freezing) oraz oceny ryzyka (risk assessment) mierzono odpowiednio jako wskaźniki lęku i stanów lękowych u szczurów. Harmonogram projektu doświadczalnego przedstawiono na Rysunku 2. Wyniki uzyskane od zwierząt narażonych na zapach kota w dniu 0 zaprezentowano na Rysunku 3. Szczury wykazywały istotnie wyższe poziomy zamrożenia (Rysunek 2A, grupa Cat Odor, test rang znakowanych Wilcoxona, Z = -2.201, p = 0.028) oraz oceny ryzyka (Rysunek 2B, grupa Cat Odor, test rang znakowanych Wilcoxona Z = -2.336 p = 0.018) w odpowiedzi na zapach kota (TEST) niż w odpowiedzi na znany kontekst (CONTEXT). Niskie poziomy zamrożenia (Rysunek 2A, grupa no-odor, test rang znakowanych Wilcoxona, Z = -0.184, p = 0.854) oraz oceny ryzyka (Rysunek 2B, grupa no-odor, test rang znakowanych Wilcoxona, Z = -1.753, p = 0.08) zaobserwowano u szczurów narażonych na czystą obrozę podczas drugiej części testu.

Dodatkowa analiza wykazała, że poziomy zamarcia (Rycina 2A, test Mann-Whitneya, U = 0.000, p = 0.004) oraz oceny ryzyka (Rycina 2B, test Mann-Whitneya, U = 4.000, p = 0.025) były wyższe w grupie z zapachem kota niż w grupie bez zapachu podczas drugiej części testu. Nie stwierdzono istotnych różnic w zamarciu (Rycina 2A, test Mann-Whitneya, U = 11.000, p = 0.256) oraz ocenie ryzyka (Rycina 2B, test Mann-Whitneya, U = 15.00, p = 0.627) pomiędzy dwiema grupami podczas pierwszych 10 min ekspozycji na znany kontekst (CONTEXT). Wyniki te dowodzą, że opracowany protokół nadaje się do badania zachowań obronnych w odpowiedzi na zapach sierści/skóry kota.

Uwarunkowana reakcja na zagrożenie w kontekście testowym (CONTEXT) w dniu 1. została przedstawiona na Rysunku 4. Szczury narażone na zapach kota zostały ponownie umieszczone w komorze testowej 24 h po pierwszym kontakcie z zapachem drapieżnika. W dniu 1. zwierzęta wykazywały wyższy poziom zamarcia (test Wilcoxona, Z = -2.366, p = 0.018) oraz oceny ryzyka (test Wilcoxona, Z = -2.201, p = 0.028) w odpowiedzi na kontekst testowy niż w dniu 0. Ponadto nie odnotowano różnic w poziomach zamarcia (test Wilcoxona, Z = -0.841, p = 0.400) ani oceny ryzyka (test Wilcoxona, Z = -0.943, p = 0.345) pomiędzy grupami CONTEXT a RETEST. Szczury wykazywały takie same poziomy zamarcia (test Wilcoxona, Z = -0.105, p = 0.917) i oceny ryzyka (test Wilcoxona, Z = -0.980, p = 0.327) podczas procedur RETEST i TEST. Wyniki te wykazały, że jednorazowa, 10 min ekspozycja na zapach futra/skóry kota doprowadziła do wyuczonej reakcji na zagrożenie w kontekście, w którym zwierzęta zetknęły się z zapachem drapieżnika.

Rysunek 5 oraz Rysunek 6 przedstawiają dwa zestawy eksperymentów przeprowadzonych zgodnie z protokołem opisanym w niniejszym artykule. Badano, czy pierwotna kora interoceptywna (pIC), obszar mózgu zaangażowany w przetwarzanie emocji8,30,31,32, jest niezbędna do ekspresji zachowań obronnych. Aktywację neuronalną indukowaną zapachem kota oceniając w pIC poprzez zliczanie komórek c-Fos-ir w oddzielnych grupach zwierząt: w warunkach braku zapachu oraz w warunkach ekspozycji na zapach kota. Szczury te poddano eutanazji 90 min po zakończeniu TESTU. Zaobserwowano istotny wzrost liczby neuronów c-Fos-ir w pIC w grupie z zapachem kota (test Mann-Whitney, U = 3.000, p = 0.016) w porównaniu z grupą kontrolną (Rysunek 5).

Wykres zamierania i oceny ryzyka; grupa traktowana vs kontrolna; wyniki testów behawioralnych; analiza eksperymentu.
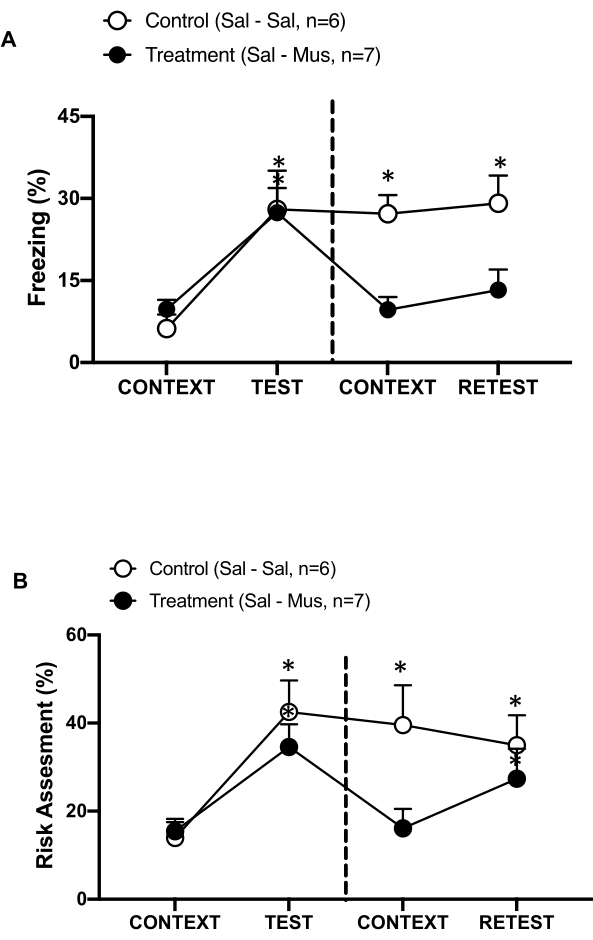
Rysunek 6: Inaktywacja pierwotnej kory interoceptywnej za pomocą muscimolu upośledza kontekstową pamięć zagrożenia. (A, B) Zwierzęta z grupy traktowanej otrzymały wstrzyknięcie soli fizjologicznej w dniu 0 oraz muscimolu w dniu 1 do pIC (grupa traktowana). Szczury kontrolne otrzymały wstrzyknięcia soli fizjologicznej do pIC w oba dni. W dniu 1 zwierzęta wróciły do znanej komory testowej, gdzie były eksponowane na KONTEKST przez 10 min, a następnie ponownie eksponowane na zapach kota (RETEST) przez kolejne 10 min. Kółka reprezentują procent czasu spędzonego na zamieraniu (czarne kółka) oraz na zachowaniach oceny ryzyka (otwarte kółka). Linia przerywana oddziela test wrodzonego lęku (dzień 0, lewa strona) od testu lęku kontekstowego (dzień 1, prawa strona). Dane przedstawiono jako średnie + SEM. *p < 0.05. Rysunek zmodyfikowano na podstawie 8. Skróty: pIC = pierwotna kora interoceptywna; Sal-Sal = wstrzyknięcie soli fizjologicznej w dniu 0 i dniu 1; Sal-Mus = wstrzyknięcie soli fizjologicznej w dniu 0 i muscimolu w dniu 1. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Zmierzyliśmy również wpływ inaktywacji pIC za pomocą muscymolu na kontekstową pamięć zagrożenia (Ryc. 6). Grupa badawcza (szczury sal-mus) otrzymała wstrzyknięcie soli fizjologicznej do pIC w dniu 0, a w dniu 1 agonistę receptora GABA-A, muscymol. Grupa ta nie wykazała żadnych różnic w poziomach zamierania (Ryc. 6A, test znaków Wilcoxona, Z = -0,140, p = 0,889) ani oceny ryzyka (Ryc. 6B, test znaków Wilcoxona, Z = -0,700, p = 0,484) w dniu 1 w odpowiedzi na znany kontekst w porównaniu z dniem 0, co wskazuje na upośledzenie kontekstowej pamięci zagrożenia. Co ciekawe, zamieranie (Ryc. 6A, test znaków Wilcoxona, Z = -2,100, p = 0,036), ale nie ocena ryzyka (Ryc. 6B, test znaków Wilcoxona, Z = -0,980, p = 0,327), było znacząco zredukowane podczas RETEST w porównaniu z TEST. Ten ostatni wynik wskazuje, że wyciszenie pIC w dniu 1 selektywnie upośledziło reakcję strachu, a nie lęku, na zapach drapieżnika. Wspólnie wyniki te potwierdzają, że opisany powyżej protokół eksperymentalny jest odpowiedni do badania wrodzonych i nabytych reakcji obronnych na zagrożenia ze strony drapieżników.

Dyskusja

Opisany tutaj protokół oferuje innowacyjne podejście do oceny zachowań obronnych wywoływanych przez wrodzone i wyuczone bodźce awersyjne. Komora testowa bez bezpiecznej kryjówki (ryc. 1) oraz obroża nasączona zapachem skóry/futra kotki domowej po owariektomii zostały wykorzystane do wywołania silnego i trwałego stanu zagrożenia u szczurów, który może być przydatny do zbadania obwodów nerwowych leżących u podstaw adaptacyjnych i nieadaptacyjnych reakcji obronnych.

Powszechnie wiadomo, że przejawianie określonych reakcji obronnych zależy od cech zarówno bodźca zagrożeniowego, jak i sytuacji/środowiska, w którym zwierzę ma do czynienia21,33. Unikanie, ocena ryzyka i zamrażanie są częścią szerokiego repertuaru reakcji obronnych zwierząt, które mogą być wywołane przez zagrażające bodźce 9,19. Wybór dominującej reakcji obronnej zależy jednak od warunków środowiskowych, takich jak odległość od zagrożenia33 lub obecność bezpiecznego miejsca wewnątrz komory badawczej21,33. Na przykład, gdy szczury są umieszczane na arenie z kryjówką, w obecności zapachu kota, wykazują zachowania obronne, takie jak pozycje rozciągające/opiekuńcze, głowa poza kryjówką i unikanie 6,24,25. Z kolei zamrożenie, czujne skanowanie i pozycje rozciągania/uczestniczenia są silnie wywoływane w sytuacjach, gdy ucieczka nie jest możliwa, a odległość do zagrożenia nie jest zbyt krótka33,34.

Badania wykazały, że narażenie na niekontrolowany stresor wywołuje różnorodne konsekwencje behawioralne, które różnią się od tych, które występują, gdy stresor jest kontrolowany 35,36,37,38. Na przykład nieunikniony, ale nie unikniony, wstrząs ogonowy prowadzi do dużego wzrostu serotoniny w jądrze szwu grzbietowego 3 5 i zachowań podobnych do lęku mierzonych 24 godziny po doświadczeniu awersyjnym36. Co więcej, niekontrolowane stresory zwiększają warunkowanie strachu u zwierząt36,37 i ludzi38. Naszym początkowym uzasadnieniem dla opracowania protokołu było wystawienie szczurów na sytuację, w której nie mogą kontrolować bodźca awersyjnego, a tym samym wykazywać silnych i trwałych reakcji na zagrożenie oraz rozwijać ulepszone uczenie się kontekstowe po jednorazowej i krótkiej ekspozycji na zapach kota.

W opisanym tutaj projekcie eksperymentalnym brak kryjówki wywołał silny i trwały stan obronny, który na przemian przechodził między zamrożeniem (tj. całkowitym bezruchem z wyjątkiem oddychania28) i oceną ryzyka (tj. czujne skanowanie i pozycje rozciągania/uczestniczenia29), które są zwykle uważane za behawioralne przejawy strachu i stanów podobnych do lęku u gryzoni (Figura 3). Warto zauważyć, że ten sam wzorzec reakcji obronnych wystąpił 24 godziny później, gdy szczury zostały ponownie wystawione na kontekst testowy, co wskazuje, że pojedyncza 10-minutowa ekspozycja na zapach sierści/skóry kota jest wystarczająca, aby wywołać długotrwałe kontekstowe uczenie się zagrożeń, jak wcześniej zgłaszano 7,10,11,14,15,34,39 (Figura 4).

Obroża dla kota z wewnętrzną filcową wyściółką została wykorzystana do skutecznego zbierania i wychwytywania zapachów/zapachów, a tym samym uzyskania wiarygodnej próbki bodźca zagrożenia, który wywołał silną reakcję obronną. Naukowcy wykorzystali bodźce awersyjne, takie jak odchody kota, mocz lub trimetylotiazolina (TMT, składnik odchodów lisów) w podobnych pracach. Niemniej jednak bodźce te wydają się być mniej predykcyjne co do natychmiastowej obecności drapieżnika, ponieważ są mniej zdolne do wywoływania uczenia się kontekstowego 40,41. Zgodnie z wcześniejszymi ustaleniami 2,4,8,9,10,11,20,34,39, zapach kota jest niezawodnym wrodzonym bodźcem awersyjnym, który może wywoływać trwałe reakcje obronne i kontekstową pamięć zagrożeń u szczurów. Z biegiem lat ten rodzaj etologicznego behawioralnego modelu zwierzęcego coraz bardziej przyciąga zainteresowanie naukowców do badania stresu i zaburzeń związanych ze stresem 13,14,15,16,17,23,42, takich jak te związane z nieprzystosowawczymi wspomnieniami strachu, takimi jak PTSD.

Protokół ten ma być stosowany w połączeniu z różnymi technikami eksperymentalnymi, w tym na przykład z biologią molekularną i komórkową oraz elektrofizjologią u zwierząt czuwających i zachowujących się, które dają możliwość odpowiedzi na otwarte pytania i lepszego zrozumienia adaptacyjnych i nieadaptacyjnych reakcji na zagrożenia. W tym badaniu przetestowaliśmy ideę, że, region mózgu zaangażowany w przetwarzanie emocji, jest niezbędny do wyrażania zachowań obronnych. Eksperymenty behawioralne połączono z immunohistochemią c-Fos w celu zmapowania wzorców aktywności neuronalnej w w odpowiedzi na zapach kota i domózgowe wlewy agonisty receptora GABA-A, muscymolu, w celu odwracalnego wyciszenia i określenia jego udziału we wrodzonych i wyuczonych reakcjach zagrożenia na zapach drapieżnika. Odkrycia te ujawniły, że zapach kota wywołał wzrost aktywności neuronalnej w (Figura 5), a wyciszenie doprowadziło do poważnego deficytu kontekstowej pamięci zagrożeń (Figura 6).

Chociaż opisany tutaj protokół jest technicznie prosty do wdrożenia i wykonania, może pojawić się kilka komplikacji. Na przykład zanieczyszczenie krzyżowe zapachem kota może wystąpić, jeśli nienoszona obroża wejdzie w kontakt ze zużytą obrożą dla kota. W związku z tym obroże muszą być przechowywane oddzielnie podczas wszystkich zabiegów, a rękawiczki należy zmieniać po umieszczeniu zużytej obroży w komorze testowej. Jeśli eksperymentator chce przeprowadzić warunki zapachowe i bezzapachowe przy użyciu tej samej komory testowej, eksperymenty muszą być wykonywane w różnych dniach. Do tych eksperymentów można użyć dwóch identycznych komór testowych34, a szczury powinny być trzymane w oddzielnych pomieszczeniach, aby uniknąć komunikacji społecznej43. Problemem może być również stres wywołany ekspozycją na nowe bodźce w nieznanym środowisku. W związku z tym zwierzęta muszą mieć co najmniej trzy dni przyzwyczajenia się do środowiska testowego i procedur mających na celu zmniejszenie stresu i postawy obronnej powszechnie wykazywanych przez szczury w nowych sytuacjach. Ponadto czas wymagany na okres przyzwyczajenia powinien być dłuższy niż okres testowy. Na przykład, jeśli test trwa 10 minut, na okres przyzwyczajenia należy przeznaczyć 20 lub 30 minut.

Wreszcie, zachowania obronne powinny być najlepiej oceniane w ciemnej fazie cyklu, kiedy szczury są aktywne. Szczury muszą być utrzymywane w odwróconym cyklu światło/ciemność, aby umożliwić przeprowadzenie procedur doświadczalnych, gdy zarówno szczur, jak i eksperymentator znajdują się w fazie aktywnej. Zmiana cyklu światło/ciemność trwa nie dłużej niż 10 dni, a z doświadczenia wynika, że większość szczurów w tym stanie reaguje odpowiednio na zapach kota. Istnieje jednak kilka badań, które pokazują, że szczury Sprague-Dawley są mniej podatne na długotrwałe uwarunkowanie zagrożeń i niepokój niż szczury Wistar44. W związku z tym możliwe jest, że użycie szczurów rasy Wistar zamiast szczurów szczepu Sprague-Dawley może przynieść bardziej solidne wyniki.

Podsumowując, zapach kota jest etologicznie istotnym zagrażającym bodźcem, który wywołuje wiarygodne reakcje neuronalne, endokrynologiczne i behawioralne u szczurów. Spotkanie z zapachem kota w nieuniknionej komorze prowadzi do silnej i długotrwałej reakcji strachu/lęku u szczurów, co skutkuje szybkim i trwałym kontekstowym uczeniem się zagrożeń. Opisany powyżej protokół może być użytecznym narzędziem do badania strachu oraz adaptacyjnych i nieadaptacyjnych mechanizmów kodowania pamięci zagrożeń.

Oświadczenia

Autorzy tego manuskryptu nie mają konkurencyjnych interesów finansowych ani innych konfliktów interesów, które mogliby ujawnić.

Podziękowania

Autorzy dziękują Marceli Gonzalez za pomoc w procedurach laboratoryjnych, Mabel Matamala za wkład w projektowanie protokołu i Miguelowi Rojasowi za pomoc w ilustrowaniu.

Materiały

Lista materiałów użytych w tym artykule
NazwaFirmaNumer katalogowyKomentarze
3-3′ chlorowodorek diaminobenzydyny (DAB)Bio-RadKolorymetryczne podłoże do bibuły; stosowany z koniugatem przeciwciała peroksydazy
Hermetyczny plastikowy pojemnikkomercyjnySłuży do przechowywania obroży
kotów Obroża dla kotahandloweszerokość 1,5, grubość 0,5, długość 30 cm
Kot OdórkotadomowegoOwariektomia kotki w pomieszczeniach i na zewnątrz karmiona zwykłą komercyjną karmą dla kotów.
Enrofloksacyna 5%Bayer(19 mg/kg i.p.). Stosowany w protokole operacyjnym.
EtanolSigma-Aldrich5% v/v do czyszczenia pudełka testowego
Kaniule prowadzącePlastic One26 gauge. Składa się z gwintowanego cylindrycznego plastikowego cokołu uformowanego wokół kawałka rurki ze stali nierdzewnej, która jest wszczepiana w określony obszar docelowy mózgu zgodnie ze współrzędnymi stereotaktycznymi.
Strzykawka HamiltonSigma-Aldrich1 uL. Stosowany w protokole inaktywacji
Nadtlenek wodoru 30%Merck MilliporeStosowany w procedurze immunohistochemicznej
Kaniula iniekcyjnaPlastikowy miernik One33. Kaniula ta jest wprowadzana do kaniuli prowadzącej, aby płyny były dozowane do określonego docelowego obszaru mózgu.
Ketamina (Imalgene)Rhodia MerieuxŚrodek uspokajający (100 mg / kg i.p.). Stosowany w protokołach chirurgicznych i immunohistochemicznych
Ketoprofen 1%Rhodia MerieuxAnti-infammatory (0,2 mg / kg i.p.). Stosowany w protokole operacyjnym.
Samce szczurówUniversidad Catò lica de ChileSzczep Sprague dawley (270– 290 g)
Mechaniczny cyfrowy licznik ręcznyKomercjalnyUżywany do liczenia komórek
MuscimolSigma-Aldrich0,5 ug / uL do zlokalizowanego obszaru mózgu
Normalna surowica koziaTechnologieStosowany w procedurze immunohistochemicznej
Okluder canulaePlastikowy JedenWkładany do kaniuli prowadzącej w celu jej uszczelnienia i zapobieżenia odpływowi płynu tkankowego po wstrzyknięciu.
Proszek paraformaldehyduSigma-AldrichSłuży do utrwalania tkanek
PBS 10x, pH 7,4Life TechnologiesStosowany w procedurze immunohistochemicznej
Przeciwciało pierwotneSigma, St LouisRabbit poliklonalny F7799 stosowany w procedurze immunohitochemicznej
Czerwona żarówka (80 watów)CromptomUżywany podczas protokołu
behawioralnegoPlastikowe Stosowanyw protokole chirurgicznym do zakotwiczania kaniul prowadzących w czaszce
Przeciwciało wtórneJackson immunoresearchAnty-królicze IgG (H+L) stosowane w procedurze immunohitochemicznej
Pojedyncza dawka sterylnego roztworu soli fizjologicznej 0,9%SalJet0,5 ug/uL do zlokalizowanego obszaru mózgu
Azydek soduSigma-AldrichStosowany w immunohistochemii procedura
SPSS dla systemu WindowsIBMw wersji 20.0. Oprogramowanie służące do statystycznej analizy danych
Aparat stereotaksjiKopfStosowany w protokole operacyjnym
Przezroczysta komora prostokątna z pleksizmontowana60 x 40 x 40 cm, dł., ., wys.); przezroczysta komora prostokątna z poli(metakrylanu metylu)
Triton X-100Merck MilliporeStosowany w procedurze immunohistochemicznej
ZestawVectastain ABC EliteSystemperoksydazy na bazie awidyny/biotyny Vector Laboratories stosowany do wykrywania przeciwciał drugorzędowych sprzężonych z biotyną
Stosowany w protokołach chirurgicznych i immunohistochemicznych.
dla wymiary : antybiotyk życia Kamera wideo Sony Preferuj użycie kamery noktowizyjnej Ksylazyna (Rompun) Bayer Środek uspokajający (20 mg / kg ip).

Bibliografia

  1. Steimer, T. The biology of fear- and anxiety-related behaviors. Dialogues in Clinical Neuroscience. 4 (3), 231-249 (2002).
  2. Gross, C. T., Canteras, N. S. The many paths to fear. Nature Reviews. Neuroscience. 13 (9), 651-658 (2012).
  3. Harrison, L. A., Ahn, C., Adolphs, R. Exploring the structure of human defensive responses from judgments of threat scenarios. PLoS One. 10 (8), 0133682(2015).
  4. Papes, F., Logan, D. W., Stowers, L. The vomeronasal organ mediates interspecies defensive behaviors through detection of protein pheromone homologs. Cell. 141 (4), 692-703 (2010).
  5. Blanchard, R. J., Griebel, G., Andrew Henrie, J., Blanchard, D. C. Differentiation of anxiolytic and panicolytic drugs by effects on rat and mouse defense test batteries. Neuroscience and Biobehavioral Reviews. 21 (6), 783-789 (1997).
  6. Dielenberg, R. A., McGregor, I. S. Defensive behavior in rats towards predatory odors: a review. Neuroscience and Biobehavioral Reviews. 25 (7-8), 597-609 (2001).
  7. Muñoz-Abellan, C., Daviu, N., Rabasa, C., Nadal, R., Armario, A. Cat odor causes long-lasting contextual fear conditioning and increased pituitary-adrenal activation, without modifying anxiety. Hormones and Behavior. 56 (4), 465-471 (2009).
  8. Rodriguez, M., et al. Interoceptive insular cortex mediates both innate fear and contextual threat conditioning to predator odor. Frontiers in Behavioral Neuroscience. 13, 283(2020).
  9. Blanchard, R. J., Yang, M., Li, C. I., Gervacio, A., Blanchard, D. C. Cue and context conditioning of defensive behaviors to cat odor stimuli. Neuroscience and Biobehavioral Reviews. 25 (7-8), 587-595 (2001).
  10. Takahashi, L. K., Chan, M. M., Pilar, M. L. Predator odor fear conditioning: current perspectives and new directions. Neuroscience and Biobehavioral Reviews. 32 (7), 1218-1227 (2008).
  11. de Lima, M. A. X., Baldo, M. V. C., Canteras, N. S. Revealing a cortical circuit responsive to predatory threats and mediating contextual fear memory. Cerebral Cortex. 29 (7), 3074-3090 (2019).
  12. Blanchard, D. C., Blanchard, R. J. Defensive behaviors, fear and anxiety. Handbook of anxiety and Fear. Blanchard, R. J., Blanchard, D. C., Griebel, G., Nutt, D. J. , Elsevier Academic Press. Amsterdam. 63-76 (2008).
  13. Armario, A., Escorihuela, R. M., Nadal, R. Long-term neuroendocrine and behavioural effects of a single exposure to stress in adult animals. Neuroscience and Biobehavioral Reviews. 32 (6), 1121-1135 (2008).
  14. Cohen, H., Matar, M. A., Joseph, Z. Animal models of posttraumatic stress. Preclinical models of neurologic and psychiatric disorders. Current Protocols in Neuroscience. 9, Chapter 9, Unit 9 45(2013).
  15. Liang, Z., King, J., Zhang, N. Neuroplasticity to a single-episode traumatic stress revealed by resting-state fMRI in awake rats. NeuroImage. 103, 485-491 (2014).
  16. Dengler, B. A., Hawksworth, S. A., Berardo, L., McDougall, I., Papanastassiou, A. M. Bilateral amygdala stimulation reduces avoidance behavior in a predator scent post-traumatic stress disorder model. Neurosurgical Focus. 45 (2), 16(2018).
  17. Ozbeyli, D., et al. Protective effects of vortioxetine in predator scent stress model of post-traumatic stress disorder in rats: role on neuroplasticity and apoptosis. Journal of Physiology and Pharmacology. 70 (4), 557-571 (2019).
  18. Graeff, F. G., Del-Ben, C. M. Neurobiology of panic disorder: From animal models to brain neuroimaging. Neuroscience and Biobehavioral Reviews. 32 (7), 1326-1335 (2008).
  19. Blanchard, D. C., Griebelb, G., Pobbec, R., Blanchard, R. J. Risk assessment as an evolved threat detection and analysis process. Brain Research. 35 (4), 991-998 (2011).
  20. Apfelbach, R., Blanchard, C. D., Blanchard, R. J., Hayes, R. A., McGregor, I. S. The effects of predator odors in mammalian prey species: a review of field and laboratory studies. Neuroscience and Biobehavioral Reviews. 29 (8), 1123-1144 (2005).
  21. Blanchard, D. C., Blanchard, R. J., Griebel, G. Defensive responses to predator threat in the rat and mouse. Current Protocols in Neuroscience. , Chapter 8, Unit 8.19 (2005).
  22. Zoladz, P. R., Conrad, C. D., Fleshner, M., Diamond, D. M. Acute episodes of predator exposure in conjunction with chronic social instability as an animal model of post-traumatic stress disorder. Stress. 11 (4), 259-281 (2008).
  23. Shallcross, J., et al. The divergent effects of CDPPB and cannabidiol on fear extinction and anxiety in a predator scent stress model of PTSD in rats. Frontiers in Behavioral Neuroscience. 13, 91(2019).
  24. Dielenberg, R. A., Carrive, P., McGregor, I. S. The cardiovascular and behavioral response to cat odor in rats: unconditioned and conditioned effects. Brain Research. 897 (1), 228-237 (2001).
  25. Dielenberg, R. A., Leman, S., Carrive, P. Effect of dorsal periaqueductal gray lesions on cardiovascular and behavioral responses to cat odor exposure in rats. Behavioral Brain Research. 153 (2), 487-496 (2004).
  26. Paxinos, G., Watson, C. The rat brain in stereotaxic coordinates. , Academic Press. San Diego. (1997).
  27. Swanson, L. W. Brain maps: Structure of the rat brain. A laboratory guide with printed and electronic templates for data, models, and schematics. , Elsevier. (1998).
  28. Blanchard, R. J., Blanchard, D. C. Crouching as an index of fear. Journal of Comparative and Physiological Psychology. 67 (3), 370-375 (1969).
  29. Choy, K. H. C., Yu, J., Hawkes, D., Mayorov, D. N. Analysis of vigilant scanning behavior in mice using two-point digital video tracking. Psychopharmacology. 221 (4), 649-657 (2012).
  30. Casanova, J. P., et al. A role for the interoceptive insular cortex in the consolidation of learned fear. Behavioral Brain Research. 296, 70-77 (2016).
  31. Casanova, J. P., Aguilar-Rivera, M., Rodriguez, M., Coleman, T. P., Torrealba, F. The activity of discrete sets of neurons in the posterior insula correlates with the behavioral expression and extinction of conditioned fear. Journal of Neurophysiology. 120 (4), 1906-1913 (2018).
  32. Contreras, M., Ceric, F., Torrealba, F. Inactivation of the interoceptive insula disrupts drug craving and malaise induced by lithium. Science. 318 (3850), 655-658 (2007).
  33. McNaughton, N., Corr, P. J. A two-dimensional neuropsychology of defense: fear/anxiety and defensive distance. Neuroscience and Biobehavioral Reviews. 28 (3), 285-305 (2004).
  34. Blanchard, D. C., Canteras, N. S., Markham, C. M., Pentkowski, N. S., Blanchard, R. J. Lesions of structures showing FOS expression to cat presentation: effects on responsivity to a cat, cat odor and nonpredator threat. Neuroscience and Biobehavioral Reviews. 29 (8), 1243-1253 (2005).
  35. Maswood, S., Barter, J. E., Watkins, L. R., Maier, S. F. Exposure to inescapable but not escapable shock increases extracellular levels of 5-HT in the dorsal raphe nucleus of the rat. Brain Research. 783 (1), 115-120 (1998).
  36. Maier, S. F., et al. The role of the amygdala and dorsal raphe nucleus in mediating the behavioral consequences of inescapable shock. Behavioral Neuroscience. 107 (2), 377(1993).
  37. Maier, S. F., Grahn, R. E., Watkins, L. R. 8-OH-DPAT microinjected in the region of the dorsal raphe nucleus blocks and reverses the enhancement of fear conditioning and interference with escape produced by exposure to inescapable shock. Behavioral Neuroscience. 109 (3), 404-412 (1995).
  38. Hartley, C. A., Gorun, A., Reddan, M. C., Ramirez, F., Phelps, E. A. Stressor controllability modulates fear extinction in humans. Neurobiology of Learning and Memory. 113, 149-156 (2014).
  39. Staples, L. G., Hunt, G. E., Cornish, J. L., McGregor, I. S. Neural activation during cat odor-induced conditioned fear and 'trial 2' fear in rats. Neuroscience and Biobehavioral Reviews. 29 (8), 1265-1277 (2005).
  40. Blanchard, D. C., et al. Failure to produce conditioning with low-dose trimethylthiazoline or cat feces as unconditioned stimuli. Behavioral Neuroscience. 117 (2), 360-368 (2003).
  41. Rosen, J. B., Asok, A., Chakraborty, T. The smell of fear: innate threat of 2,5-dihydro-2,4,5-trimethylthiazoline, a single molecule component of a predator odor. Frontiers in Neuroscience. 9, 292(2015).
  42. Verbitsky, A., Dopfel, D., Zhang, N. Rodent models of post-traumatic stress disorder: behavioral assessment. Translational Psychiatry. 10 (1), 132(2020).
  43. Fendt, M., et al. Predator odor but not TMT induces 22-kHz ultrasonic vocalizations in rats that lead to defensive behaviors in conspecifics upon replay. Scientific Reports. 8, 11041(2018).
  44. Fragale, J. E., et al. Dysfunction in amygdala-prefrontal plasticity and extinction-resistant avoidance: A model for anxiety disorder vulnerability. Experimental Neurology. 275, 59-68 (2016).

Przedruki i uprawnienia

Tagi

Zachowania obronnekontekstowa pamięć zagrożeniazapach drapieżnikazachowanie szczurówkora interoceptywnaimmunohistochemia c-Fosinaktywacja muscymolemwarunkowanie lękowe

Ten artykuł został opublikowany

Film wkrótce dostępny