Tutaj prezentujemy protokół oceny neuroprotekcyjnych aktywności testowych związków u Caenorhabditis elegans, w tym agregacji poliglutaminy, śmierci neuronów i zachowania chemounikania, a także przykładowej integracji wielu fenotypów.
Artykuł metodologiczny
Caenorhabditis elegans jako modelowy system do odkrywania związków bioaktywnych przeciwko neurotoksyczności za pośrednictwem poliglutaminy
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Związane z wiekiem nieprawidłowe fałdowanie i agregacja patogennych białek są odpowiedzialne za kilka chorób neurodegeneracyjnych. Na przykład, choroba Huntingtona (HD) jest głównie napędzana przez powtórzenia nukleotydowe CAG, które kodują rozszerzony przewód glutaminowy w białku huntingtyny. Tak więc, hamowanie agregacji poliglutaminy (polyQ), a w szczególności neurotoksyczności związanej z agregacją, jest użyteczną strategią zapobiegania chorobie Huntingtona i innym chorobom związanym z poliQ. W artykule przedstawiono uogólnione protokoły eksperymentalne do oceny zdolności neuroprotekcyjnych badanych związków przeciwko HD przy użyciu uznanych modeli transgenicznych Caenorhabditis elegans polyQ. Szczep AM141 został wybrany do testu agregacji polyQ, ponieważ związany z wiekiem fenotyp dyskretnych agregatów fluorescencyjnych można łatwo zaobserwować w ścianie ciała w stadium dorosłym ze względu na specyficzną dla mięśni ekspresję białek fuzyjnych polyQ::YFP. W przeciwieństwie do tego, model HA759 z silną ekspresją dróg ekspandowanych poliQ w neuronach ASH jest używany do badania śmierci neuronów i zachowań chemounikania. Aby kompleksowo ocenić zdolność neuroprotekcyjną związków docelowych, powyższe wyniki testów są ostatecznie przedstawiane jako wykres radarowy z profilowaniem wielu fenotypów w sposób bezpośredniego porównania i bezpośredniego oglądania.
Wprowadzenie
Postępująca neurodegeneracja w chorobie Huntingtona obejmuje patogenną zmutowaną huntingtynę z nieprawidłowym odcinkiem polyQ kodowanym przez powtórzenia trinukleotydowe CAG1,2,3. Zmutowane białka huntingtyny z więcej niż 37 powtórzeniami glutaminy są podatne na agregację i akumulację w mózgach pacjentów z HD i modelach zwierzęcych4,5, co ostatecznie prowadzi do neurodegeneracji6. Pomimo braku jasności co do roli agregatów polyQ w patologii choroby5, hamowanie agregacji polyQ i związanej z tym toksyczności jest użyteczną strategią terapeutyczną w przypadku HD i innych chorób polyQ4,7,8.
Ze względu na zachowanie szlaków sygnalizacji neuronalnej i łatwe do skonstruowania modele chorób transgenicznych, Caenorhabditis elegans jest powszechnie stosowany jako główny organizm modelowy do badania zaburzeń neurologicznych9,10,11,12. Na przykład, transgeniczne modele C. elegans wyrażające podatne na agregację ekspansje polyQ mogą obiektywnie naśladować cechy podobne do HD, takie jak selektywna utrata komórek neuronalnych, tworzenie agregatów cytoplazmatycznych i defekty behawioralne13. Badanie potencjalnego wpływu próbek testowych na odwrócenie tych fenotypów w uznanych modelach nicieni polyQ doprowadziło do zidentyfikowania wielu obiecujących kandydatów terapeutycznych, np. polisacharydów7,14,15, oligosacharydy16, naturalne małe cząsteczki17,18 oraz ekstrakty i formuły ziołowe19,20.
Opisane tutaj są dwa główne modele polyQ C. elegans i odpowiednie protokoły dla potencjalnych zastosowań, czego przykładem jest badanie nad astragalanem, polisacharydem wyizolowanym z Astragalus membranaceus7. Do testu agregacji polyQ u C. elegans stosowanym modelem jest transgeniczny szczep AM141, który po osiągnięciu dorosłości wykazuje fluorescencyjne puncta rozproszone w mięśniu ściany ciała z powodu ekspresji białka fuzyjnego Q40::YFP, przewodu poliQ składającego się z 40 reszt (poliQ40) połączonych z żółtym białkiem fluorescencyjnym (YFP)21,22. Szczep HA759 został użyty do zbadania przeżycia neuronów i zachowania chemounikania, ponieważ wyraża zarówno białko zielonej fluorescencji (GFP), jak i Htn-Q150 (ludzki szlak poliQ pochodzący z huntingtyny składający się ze 150 reszt) silnie w neuronach ASH, ale słabo w innych neuronach, co skutkuje postępującą neurodegeneracją i śmiercią komórek ASH7,13. Kompleksowe podsumowanie potencjału neuroprotekcyjnego kandydatów terapeutycznych można uzyskać poprzez integrację wyników z różnych testów.
Protokół
UWAGA: Składy roztworów wykorzystanych w tym protokole znajdują się w Tabeli 1.
1. Przygotowanie materiałów do analizy z użyciem Caenorhabditis elegans
- Utrzymanie szczepów C. elegans
- Pozyskać szczepy C. elegans (AM141 i HA759) oraz Escherichia coli (OP50 i NA22) (patrz Tabela materiałów).
- Hodywać nicienie na podłożu NGM (nematode growth media) zaszczepionym E. coli OP50 w temperaturze 20 °C dla szczepu AM14121 lub 15 °C dla szczepu HA75923.
- Przygotowanie hodowli bakteryjnej E. coli OP50
- Wyizolować pojedynczą kolonię E. coli OP50 z płytki z posiewem na podłożu Luria-Bertani (LB) i zaszczepić ją do 50 mL płynnej kultury LB.
- Inkubować bakterie OP50 w wytrząsarce w temperaturze 37 °C przy 200 rpm, aż do uzyskania gęstości optycznej ~0,5 przy 570 nm (OD570).
- Przechowywać hodowlę bakteryjną OP50 w temperaturze 4 °C i wykorzystać w ciągu dwóch tygodni.
- Przygotowanie płytek NGM z bakteriami OP50
- Do butelki autoklawowalnej o pojemności 1 L dodać 20 g agaru, 2,5 g peptonu, 3,0 g NaCl oraz 975 mL wody dejonizowanej. Autoklawować w temperaturze 121 °C przez 30 min.
- Pozostawić butelkę z płynnym agarem NGM na blacie do schłodzenia do temperatury ~60 °C, a następnie dodać następujące sterylne roztwory stokowe: 1 mL 1 M CaCl2, 1 mL 1 M MgSO4, 1 mL cholesterolu o stężeniu 5 mg/mL oraz 25 mL 1 M fosforanu potasu (pH 6,0).
- Wlać 20 mL NGM do sterylnej płytki Petriego o średnicy 90 mm i pozostawić płytki na blacie do schłodzenia i zastygnięcia. Przechowywać płytki dnem do góry i pozwolić im wyschnąć na blacie w temperaturze pokojowej przez 2 dni.
- Nanieść 200 µL hodowli bakteryjnej OP50 na każdą płytkę NGM i rozprowadzić równomiernie sterylnym szklanym rozcieraczem. Zamknąć pokrywki i inkubować płytki przez noc w temperaturze 37 °C.
- Przechowywać płytki NGM zaszczepione OP50 w plastikowym pojemniku z pokrywką w temperaturze pokojowej i wykorzystać w ciągu dwóch tygodni.
- Przygotowanie populacji C. elegans o zsynchronizowanym wieku
- Zebrać dorosłe nicienie w stanie ciąży do sterylnej probówki mikrowirówkowej o pojemności 1,5 mL i wirować przy 1000 × g przez 1 min. Przemyć trzykrotnie i resuspendować nicienie w buforze M9.
- Dodać taką samą objętość roztworu wybielacza i delikatnie mieszać przez 3–5 min. Monitorować proces wybielania co 15 s pod mikroskopem stereoskopowym.
UWAGA: Roztwór wybielacza musi być przygotowany na świeżo przed użyciem poprzez zmieszanie równych objętości 10% NaOCl i 1 M NaOH (Tabela 1)20. - Gdy większość nicieni ulegnie rozpadowi, zatrzymać trawienie poprzez rozcieńczenie buforem M9. Szybko odwirować, aby usunąć nadsącz i resuspendować osad w buforze M9, powtarzając przemywanie trzykrotnie.
- Resuspendować osad w medium S. Pozostawić resztki nicieni, aby opadły pod wpływem grawitacji przez 2–3 min, podczas gdy jaja pozostaną w nadsączu.
- Odssać nadsącz do nowej sterylnej probówki mikrowirówkowej. Zebrać jaja poprzez wirowanie przy 1000 × g przez 1 min.
- Odlać ~80% nadsączu i przenieść jaja do sterylnej kolby zawierającej 20 mL medium S. Umieścić kolbę w wytrząsarce i inkubować jaja przez noc bez pożywki przy 120 rpm, aby uzyskać zsynchronizowane nicienie w stadium L1.
2. Test agregacji PolyQ
- Przygotowanie nicieni do testu agregacji polyQ
- Przenieść 300-500 zsynchronizowanych larw L1 szczepu AM141 do każdego dołka płytki 48-dołkowej z 500 µL pożywki S zawierającej OP50 (OD570 na poziomie 0,7-0,8) oraz 5 mg/mL astragalanu, zazwyczaj jeden dołek na każdą grupę traktowania dla jednego punktu czasowego.
- Uszczelnić płytkę parafilmem i inkubować w temperaturze 20 °C przy 120 rpm przez 24, 48, 72 i 96 h.
- Zebrać nicienie do sterylnej probówki mikrocentryfugowej 1,5 mL i przemyć buforem M9 >3 razy poprzez wirowanie (1000 × g przez 1 min), aby usunąć pozostałe OP50. Resuspendować nicienie AM141 w buforze M9 i pozostawić do akwizycji obrazów.
- Akwizycja obrazów fluorescencyjnych i analiza danych
UWAGA: Dane są analizowane automatycznie za pomocą tego systemu obrazowania wysokoprzepustowego (high-content imaging system). Jeśli urządzenie do zautomatyzowanego obrazowania nie jest dostępne, można zastosować konwencjonalną metodę przygotowania podkładki agarozowej do akwizycji obrazów, aby uzyskać podobne wyniki przy użyciu zwykłego mikroskopu fluorescencyjnego7,15,17 (patrz kroki 3.2 i 3.3).- Przenieść 10-15 nicieni do każdego dołka płytki 384-dołkowej (objętość końcowa 80 µL na dołek). Przygotować 10 dołków powtórzeń dla każdej grupy traktowania.
- Dodać 10 µL 200 mM azotku sodu do każdego dołka, aby sparaliżować nicienie i pozwolić im opaść na dno (5-10 min).
- Umieścić płytkę w systemie obrazowania wysokoprzepustowego w celu pozyskania obrazów fluorescencyjnych (informacje o urządzeniu i oprogramowaniu znajdują się w Tabeli materiałów).
- Otworzyć oprogramowanie do akwizycji obrazów i ustawić następujące parametry.
- Otworzyć okno Plate Acquisition Setup, utworzyć nowy zestaw eksperymentów i nadać mu nazwę.
- Wybrać powiększenie (Magnification) 2x, binning kamery (Camera binning) 1 oraz typ płytki (Plate type) jako 384-well plate.
- Wyznaczyć dołki i miejsca (pojedyncze miejsce), które mają zostać odwiedzone.
- Wybrać filtr izotiocyjanianu fluoresceiny (FITC filter) i włączyć opcje ostrzenia na podstawie obrazu.
- Ustawić czas ekspozycji (Exposure) na 300 ms.
UWAGA: Powyższe ustawienia można przetestować i dostosować w celu optymalizacji parametrów obrazowania. - Zapisać ustawienia akwizycji obrazów (Image acquisition) i kliknąć przycisk Acquire Plate, aby rozpocząć proces.
- Przeanalizować dane obrazowe za pomocą oprogramowania do analizy obrazu.
- Otworzyć okno Review Plate Data i wybrać płytkę testową (Test plate) do analizy obrazu.
- Kliknąć dwukrotnie dołek testowy, aby wyświetlić jego obraz.
- Wybrać metodę analizy Count Nuclei i kliknąć przycisk Configure Settings, aby otworzyć okno następujących ustawień.
- Zdefiniować obraz źródłowy z kanału FITC i wybrać standardowy algorytm (Standard Algorithm).
- Ustawić parametry analizy obrazu w następujący sposób: przybliżona szerokość minimalna = 10 µm (= 2 piksele); przybliżona szerokość maksymalna = 50 µm (= 12 pikseli); intensywność powyżej lokalnego tła = 1000-2000 poziomów szarości.
- Przetestować bieżące ustawienia, aby zoptymalizować metodę analizy.
- Zapisać ustawienia i uruchomić analizę dla wszystkich dołków.
UWAGA: Analiza jednej płytki 384-dołkowej trwa około 20 min. - Wyeksportować wartość Total Nuclei jako całkowitą liczbę agregatów Q40::YFP w każdym dołku.
- Policzyć liczbę nicieni w każdym dołku.
- Obliczyć średnią liczbę agregatów Q40::YFP na nicienia w każdej grupie i zastosować nieliniową dopasowanie krzywej do danych z każdego punktu czasowego.
- Obliczyć indeks inhibicji za pomocą poniższego równania (1):
Indeks inhibicji =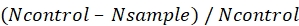 (1)
Gdzie Ncontrol i Nsample to odpowiednio średnia liczba agregatów Q40::YFP w grupach kontrolnej i traktowanej.
3. Testy neurotoksyczności indukowanej przez PolyQ
- Traktowanie C. elegans próbkami testowymi
- Aby przygotować nicienie do analizy neurotoksyczności polyQ, przenieś 300-500 zsynchronizowanych larw L1 szczepu HA759 do każdego otworu płytki 48-dołkowej zawierającej 500 µL pożywki S z dodatkiem OP50 (OD570 wynoszącej 0,7-0,8) oraz 5 mg/mL astragalanu; zazwyczaj stosuje się trzy otwory powtórne dla każdej serii traktowania.
- Uszczelnij płytkę parafilmem i inkubuj przez 3 dni w temperaturze 15 °C przy 120 rpm23.
- Zbierz nicienie metodą wirowania i przemyj 3-5 razy buforem M9. Resuspenduj nicienie w buforze M9 do wykorzystania w testach przeżywalności neuronów oraz testach unikania.
- Przygotowanie podkładki agarozowej
- Dodaj 2 g agarozy do 100 mL buforu M9 (2%, w/v) i podgrzej roztwór agarozy w mikrofalówce niemal do wrzenia.
- Nanieś 0,5 mL roztopionej agarozy na środek szkiełka mikroskopowego o grubości 1 mm umieszczonego pomiędzy dwiema płytkami szklanymi o grubości 2 mm. Przykryj pionowo innym szkiełkiem. Po ostygnięciu i zestaleniu się agarozy delikatnie zdejmij górne szkiełko.
- Test przeżywalności neuronów ASH
- Nanieś kroplę 20 mM azotku sodu na podkładkę agarozową. Przenieś 15-20 nicieni HA759 do kropli, aby je unieruchomić.
- Delikatnie przykryj nicienie szkiełkiem nakrywką. Umieść preparat pod mikroskopem fluorescencyjnym wyposażonym w kamerę cyfrową. Wybierz obiektyw 40x oraz filtr FITC, aby wykryć neurony ASH dodatnie pod kątem GFP w regionie głowy nicieni.
- Losowo wybierz ponad 50 nicieni w każdej grupie, aby policzyć liczbę osobników z dwustronnymi neuronami ASH znakowanymi GFP w regionie głowy7. Oblicz wskaźnik przeżywalności neuronów ASH, korzystając z poniższego równania (2).
Przeżywalność neuronów (%) =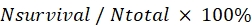 (2)
Gdzie Nsurvival oraz Ntotal oznaczają odpowiednio liczbę nicieni z neuronami ASH dodatnimi pod kątem GFP oraz całkowitą liczbę badanych nicieni w każdej grupie.
- Test unikania osmotycznego
- Podziel bezpożywkową płytkę NGM (9 cm) na strefę normalną (N) i strefę pułapki (T) za pomocą linii z 8 M glicerolu (~30 µL) wyznaczonej w środku. Nanieś linię z 200 mM azotku sodu (~20 µL) w odległości ok. 1 cm od linii glicerolu, aby sparaliżować nicienie przekraczające barierę glicerolową do strefy T.
- Przenieś po ~200 nicieni na strefę N trzech powtórnych płytek dla każdej grupy. Nanieś kroplę 1% butanedionu (~2 µL) na strefę T (1 cm od krawędzi płytki), aby przyciągnąć nicienie. Natychmiast zamknij pokrywę czaszki Petriego i inkubuj w temperaturze 23 °C przez 90 min.
- Policz liczbę nicieni w strefach N i T pod mikroskopem. Oblicz indeks unikania, korzystając z równania (3)20.
Indeks unikania =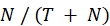 (3)
Gdzie N i T oznaczają odpowiednio liczbę nicieni w strefach N i T. Dane przedstawiono jako średnie ± odchylenie standardowe (SD) z trzech powtórzeń, reprezentatywne dla >3 niezależnych eksperymentów. - Przeprowadź nieparametryczny, dwustronny test t w celu porównania danych z grupy astragalanu i grupy kontrolnej.
4. Tworzenie wykresu radarowego
- Otwórz oprogramowanie do tworzenia wykresów i zaimportuj dane z różnych analiz do nowego arkusza. Wprowadź kolumnę A(X) jako tytuły osi promieniowych, kolumnę A(Y) jako dane z grupy kontrolnej oraz kolumnę B(Y) jako dane z grupy badawczej.
- Zaznacz wymagane dane i kliknij przycisk Plot | Specialized: Radar w menu paska narzędzi, aby wygenerować wykres radarowy.
- Kliknij dwukrotnie oś promieniową i dostosuj Scale, Tick oraz Tick labels dla każdej osi w razie potrzeby.
- Kliknij File w menu i wybierz Export Graphs, aby zapisać obraz w formacie *.tiff.
UWAGA: Strony internetowe oprogramowania wymienione w Tabeli Materiałów zawierają szczegółowe dokumenty pomocy i samouczki wideo dotyczące tworzenia wykresów radarowych.
Wyniki
Transgeniczny szczep polyQ AM141 wykazuje silną ekspresję białek fuzyjnych Q40::YFP w komórkach mięśni ściany ciała7,21. Jak pokazano na Ryc. 1A, dyskretny fenotyp agregatów tego szczepu można zidentyfikować za pomocą zautomatyzowanego protokołu obrazowania i analizy opisanego w niniejszym artykule. Ilość agregatów Q40::YFP u nicieni AM141 zwiększyła się znacząco po 48 h od stadium L1. Tendencja ta została jednak zahamowana przez zastosowanie astragalanu (Ryc. 1B), co wykazuje potencjał ochronny astragalanu przeciwko agregacji polyQ. Zazwyczaj jako punkty czasowe do liczenia agregatów Q40::YFP w celu oceny efektu przeciwagregacyjnego badanych próbek można wygodnie przyjąć 72 h lub 96 h. W niniejszym protokole fluorescencyjne agregaty nicieni AM141 były rejestrowane za pomocą zautomatyzowanego systemu obrazowania, choć do tego celu można również wykorzystać mikroskopy fluorescencyjne7.
Szczep C. elegans HA759 wykazuje ekspresję zarówno markera GFP, jak i Htn-Q150 w sensorycznych neuronach ASH, co prowadzi do postępującej utraty i dysfunkcji tych neuronów11,13. Nicienie zamocowano na 2% podkładkach z agarozy, aby określić przeżywalność neuronów ASH (Ryc. 2A), a następnie poddano wizualizacji mikroskopowej w celu wykrycia neuronów ASH. Utrata fluorescencji GFP w obustronnych neuronach ASH w obszarach głowy nicieni wskazuje na śmierć neuronów ASH (Ryc. 2B). Przeżywalność neuronów ASH u nicieni HA759 w grupie kontrolnej po inkubacji w temperaturze 15 °C przez 3 dni wynosi <40%7,20, co wskazuje na neurotoksyczność indukowaną przez polyQ. Zatem ten test przeżywalności neuronów ASH może być wykorzystany do wizualnej oceny wpływu badanych związków na neurony C. elegans, np. efektu neuroprotekcyjnego astragalany, ale nie glikanu z Poria (Ryc. 2C).
Ponieważ zaburzenia behawioralne są głównym objawem klinicznym w chorobach polyQ, test unikania chemosensorycznego (Rysunek 3A) z wykorzystaniem dużych populacji nicieni HA759 został zaprojektowany jako uproszczony test do badania wpływu badanych próbek na funkcjonalną utratę neuronów ASH spowodowaną agregacją polyQ. Jak pokazano na Rysunku 3B, indeks unikania nicieni HA759 w nieleczonej grupie kontrolnej wynosił ~0,5, co jest zgodne z wcześniejszymi doniesieniami14. Co ciekawe, indeks unikania wzrósł do >0,6 u nicieni traktowanych astragalanem w temperaturze 15 °C przez 3 dni (Rysunek 3B), co wykazuje neuroprotekcyjny wpływ tego polisacharydu przeciwko upośledzeniom behawioralnym.
Aby ocenić całkowitą zdolność neuroprotekcyjną badanych związków, dane z powyższych poszczególnych testów można zintegrować i przedstawić w formie wykresu radarowego dla wielu fenotypów, co czyni go unifikującą cechą fenotypów polyQ, odpowiednią do bezpośredniego porównania i wizualizacji. Jak pokazano na Rysunku 4, pole trójkąta w grupie leczonej astragalem jest większe niż w grupie kontrolnej, co wskazuje na działanie przeciw-polyQ badanego polisacharydu.
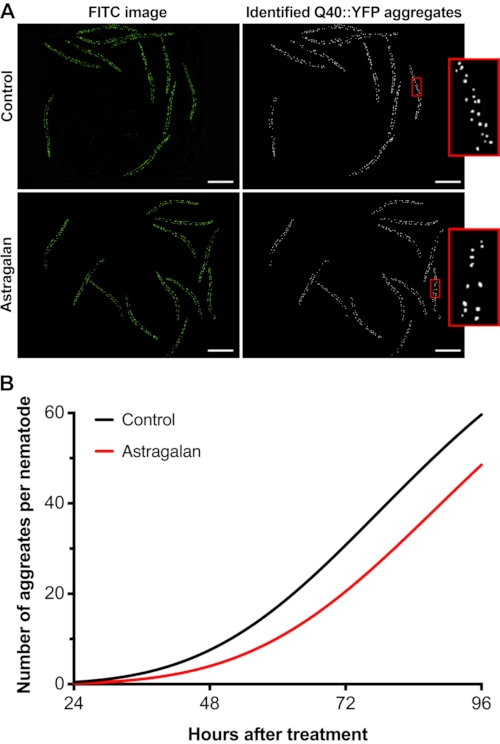
Rysunek 1: Wpływ astragalanu na agregację polyQ40. (A) Reprezentatywne obrazy nicieni AM141 po traktowaniu astragalanem lub bez niego przez 96 h w temperaturze 20 °C. Obrazy fluorescencyjne (panele lewe) pozyskano z płytek 384-dołkowych przy użyciu systemu obrazowania i analizy wysokoprzepustowej, a agregaty Q40::YFP (panele prawe) zostały automatycznie zidentyfikowane przez system. Wstawki przedstawiają powiększone widoki obrazów nicieni ukazujące agregaty polyQ. Paski skali = 500 µm. (B) Ilościowe oznaczenie agregatów Q40::YFP. Liczbę agregatów Q40::YFP w nicieniach AM141 monitorowano za pomocą systemu obrazowania wysokoprzepustowego co 24 h przez 4 dni po traktowaniu astragalanem lub bez niego w temperaturze 20 °C. W każdym punkcie czasowym oceniono obecność agregatów u około 100-150 nicieni w każdej grupie. Wyniki przedstawiono w formie krzywych dopasowanych na podstawie średniej liczby agregatów na nicienia. Skróty: polyQ = poliglutamina; YFP = żółte białko fluorescencyjne; FITC = izotiocyjanian fluoresceiny. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
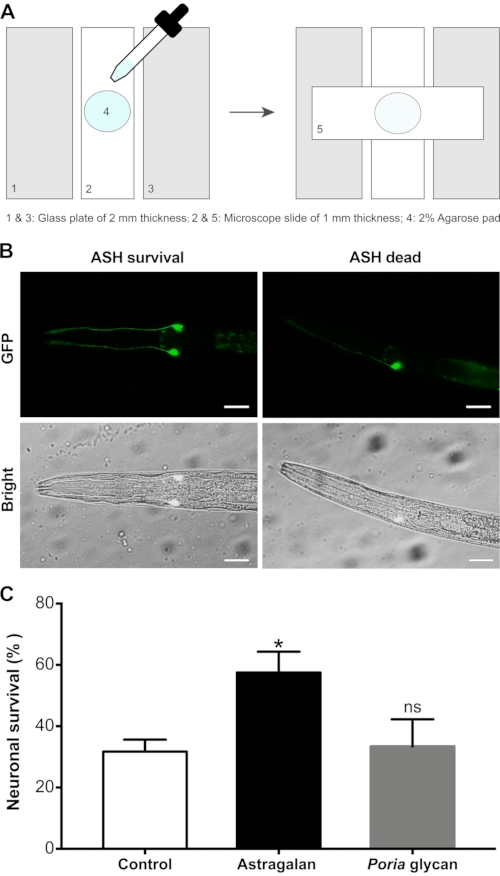
Rycina 2: Wpływ astragalany na indukowaną przez Htn-Q150 śmierć neuronów ASH. (A) Schemat przygotowania preparatu w agarozie. (B) Reprezentatywne mikrografie nicieni HA759 obrazujące przeżycie i śmierć neuronów ASH przy powiększeniu 400x. Paski skali = 20 µm. Nicienie HA759 zostały sfotografowane przy użyciu mikroskopu fluorescencyjnego po leczeniu astragalaną lub bez niej w temperaturze 15 °C przez 3 dni od stadium L1. (C) Efekt ochronny astragalany przeciwko indukowanej przez polyQ śmierci neuronów ASH. Glikan z Poria, polisacharyd z Poria cocos, został użyty jako kontrola. Dane przedstawiono jako średnie ± SD z trzech powtórzeń, reprezentatywne dla ponad trzech niezależnych eksperymentów. Analizę statystyczną przeprowadzono za pomocą nieparzystego, dwustronnego testu t, aby porównać dane grupy kontrolnej z danymi grup astragalany i glikanu z Poria. *p < 0.05; ns = brak istotności. Skrót: GFP = zielone białko fluorescencyjne. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
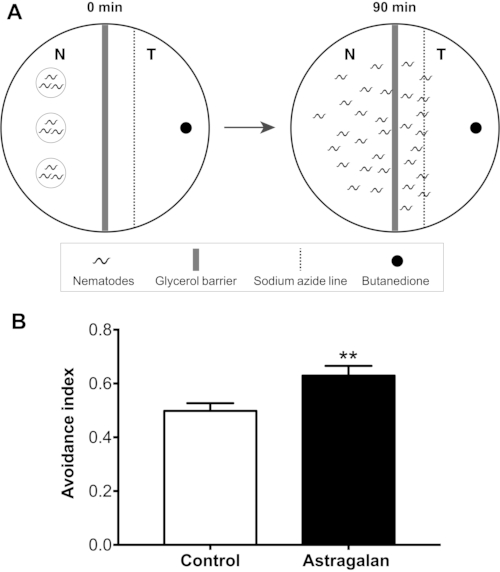
Rycina 3: Wpływ astraganu na zaburzenia behawioralne wywołane przez Htn-Q150. (A) Schemat płyty do testu unikania. (B) Reprezentatywne wyniki testu unikania. Indeks unikania zdefiniowano jako stosunek liczby nicieni w strefie N do całkowitej liczby nicieni na płycie. Wyniki przedstawiono jako średnie ± SD z trzech powtórzeń, reprezentatywne dla trzech niezależnych eksperymentów. Analiza statystyczna indeksu unikania została przeprowadzona przy użyciu nieparzystego dwustronnego testu t. **p < 0.01. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
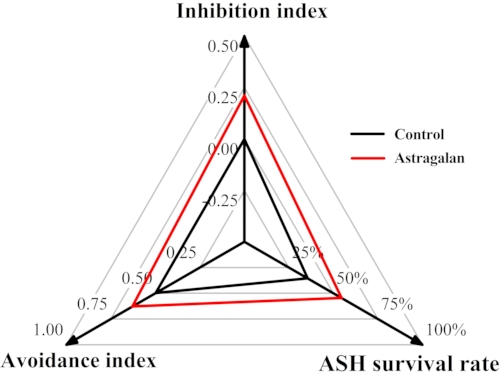
Rycina 4: Ogólna zdolność neuroprotekcyjna astragalany.Dane z trzech różnych testów zostały zaimportowane do oprogramowania OriginPro w celu stworzenia wykresu radarowego, który służy do profilowania ogólnego wpływu astragalany na wiele fenotypów zależnych od polyQ. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Tabela 1. Kliknij tutaj, aby pobrać tę tabelę.
Dyskusja
Ponieważ agregacja poliQ i proteotoksyczność są ważnymi cechami zaburzeń polyQ, takich jak choroba Huntingtona13, zalecamy stosowanie wielu modeli i metod w celu kompleksowej oceny zdolności neuroprotekcyjnych badanych związków, w tym testu agregacji polyQ w szczepie AM141, testu przeżycia neuronów ASH w szczepie HA759 oraz testu unikania chemosensorycznego w szczepie HA759. Przedstawione tutaj protokoły zostały wykorzystane do oceny zdolności neuroprotekcyjnych badanych próbek wobec toksyczności polyQ, w tym hamującego wpływu zarówno na agregację polyQ, jak i związaną z tym neurotoksyczność 7,14,15,16,17,19,20, wykazując ich potencjał w odkrywaniu leków na HD i inne choroby polyQ.
Wprowadzono zautomatyzowany system obrazowania i analizy do wykrywania i zliczania agregatów polyQ w teście agregacji polyQ. Zaletą tej metody jest wysoka przepustowość i oszczędność czasu, a także znaczne zmniejszenie liczby błędów subiektywnych w pracochłonnym procesie liczenia. W przypadku całej płytki 384-dołkowej akwizycja i analiza obrazu zajmuje tylko <1 godzinę. Jednak konwencjonalna metoda obrazowania mikroskopowego również wykazała podobną wydajność w tym laboratorium bez użycia automatycznego urządzenia do obrazowania7.
W typowym teście agregacji Q40::YFP dla każdego punktu czasowego zaleca się łącznie 100-150 nicieni na zabieg, który można przeprowadzić w dołach replikowanych zawierających 10-15 nicieni każdy. Należy jednak zauważyć, że larwy L1 mogą być bardziej wrażliwe na niektóre zabiegi lub wyższe stężenia. W związku z tym wyższe dawki badanych związków mogą hamować ich wzrost, prowadząc do wyników fałszywie dodatnich z powodu powolnego wzrostu, a tym samym opóźnionej agregacji polyQ. Zazwyczaj można przeprowadzić test oczyszczania z żywności, aby rozwiązać ten problem i zapewnić odpowiedni zakres stężeń badanych związków23.
Nicienie transgeniczne HA759 stosowane w testach neurotoksyczności polyQ koekspresją OSM-10::GFP i Htn-Q150, umożliwiając jednoznaczną identyfikację obustronnych neuronów czuciowych ASH. W związku z tym przeżycie neuronów ASH ocenia się na podstawie obecności lub braku ekspresji GFP; zwykle ~ 40-75% neuronów ASH w nicieniach kontrolnych jest martwych23,24. Co ciekawe, genetyczne tło mutacji pqe-1 (wzmacniacz poliglutaminy-1) w szczepie HA759 (pqe-1; Htn-Q150) przyspiesza toksyczność za pośrednictwem polyQ, prowadząc do śmierci większości neuronów ASH w ciągu trzech dni, nawet w temperaturze 15 °C, a zatem szczep ten jest hodowany w temperaturze 15 °C w celu przeprowadzenia testu przeżycia neuronów, jak wcześniej donoszono 23,24.
Utrata funkcjonalna neuronów ASH w nicieniach HA759 może wystąpić przed wykryciem śmierci komórki i agregatów białkowych13; w związku z tym test zachowania unikającego osmotycznego jest niezbędny do oceny toksyczności za pośrednictwem poliQ. Aby zminimalizować potencjalny wpływ mniej aktywnych nicieni HA759 w niskiej temperaturze na eksperymenty behawioralne, płytki testowe unikania inkubuje się w wilgotnym inkubatorze o temperaturze 23 °C, a nie w temperaturze 15 °C, jak w teście przeżycia neuronów przy użyciu tego szczepu. Ponadto doniesiono, że nicienie transgeniczne Htn-Q150/OSM-10::GFP są bardzo wrażliwe na dotyk nosa; w związku z tym alternatywnym wykrywaniem funkcji neuronów ASH jest test dotyku nosa13.
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnych interesów finansowych.
Podziękowania
Dziękujemy byłym członkom Huang Lab, którzy pomogli rozwinąć i ulepszyć protokoły użyte w tym artykule, w szczególności Hanrui Zhang, Lingyun Xiao i Yanxia Xiang. Prace te były wspierane przez Projekt 111 (grant nr B17018) oraz Fundację Nauk Przyrodniczych Prowincji Hebei (numer grantu H2020207002).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| C. elegans szczepy | |||
| AM141 rmIs133 [unc-54p::Q40::YFP] | Caenorhabditis Genetics Center (CGC) | https://cgc.umn.edu/strain/AM141 | |
| HA759 rtIs11 [osm-10p::GFP + osm-10p::HtnQ150 + dpy-20(+)] | Caenorhabditis Genetics Center (CGC) | ||
| https://cgc.umn.edu/strain/HA759E. coli szczepy | |||
| NA22 | Caenorhabditis Genetics Center (CGC) | https://cgc.umn.edu/strain/NA22 | |
| OP50 | Caenorhabditis Genetics Center (CGC) | ||
| https://cgc.umn.edu/strain/OP50Reagent | |||
| Agar | Shanghai EKEAR Bio-Technology Co., Ltd. | EQ1001-500G | https://www.ekear.com |
| Agarose | Biowest | 111860 | |
| Butanedione | Sinopharm Chemical Reagent Co., Ltd. | 80042427 | https://www.reagent.com.cn/goodsDetail/d027c00e64c9404d9aa41391fbb59 5d0 |
| Cholesterol | Sigma-Aldrich | C8667 | https://www.sigmaaldrich.cn/CN/zh/product/sigma/c8667?context=product |
| Glycerol | Aladdin Co., Ltd. | G116203 | |
| https://www.aladdin-e.com/zh_cn/g116203.html Peptone | Guangdong HuanKai Microbial Science and Technology Co., Ltd. | 050170B | https://www.huankai.com/show/21074.html |
| Azydek sodu | Sinopharm Chemical Reagent Co., Ltd. | 80115560 | https://www.reagent.com.cn/goodsDetail/5e981aa807664e26af 551e96ff5f07cd |
| Wodorotlenek sodu | Sinopharm Chemical Reagent Co., Ltd. | 10019718 | https://www.reagent.com.cn/goodsDetail/450dfdb1132a4d8a817 d3d8c68ec25e6 |
| Roztwór podchlorynu sodu | Fabryka odczynników chemicznych w Kantonie | 7681-52-9 | http://www.chemicalreagent.com/product/DetailProduct.aspx?id=125 |
| Tryptone | Oxoid Ltd. | LP0042B | https://www.thermofisher.cn/order/catalog/product/LP0042B#/LP0042B |
| Ekstrakt drożdżowy | Oxoid Ltd. | LP0021B | https://www.thermofisher.cn/order/catalog/product/LP0021B#/LP0021B |
| Equipment | |||
| 384-dołkowa płytka do hodowli komórkowej | Nest Biotechnology Co., Ltd. | 761001 | |
| https://www.cell-nest.com/page94?_l=en&product_id=85 48-dołkowa płytka do hodowli komórkowej | Nest Biotechnology Co., Ltd. | 748001 | https://www.cell-nest.com/page94?_l=en&product_id=85 |
| szalka Petriego 90 mm | Sangon Biotech (Shanghai) Co., Ltd. | F611003 | |
| Autoklaw https://www.sangon.com/productDetail?productInfo.code=F611003 Mikroskop | Panasonic | MLS-3781L-PC | |
| ChongQing Optical Co., Ltd. | ZSA0745 | http://www.coicuop.com/plus/view.php?aid=64 | |
| Mikroskop fluorescencyjny | Guangzhou Micro-shot Optical Technology Co., Ltd. | Mshot MF31-LED | https://www.mshot.com/article/442.html |
| System obrazowania o wysokiej zawartości | Urządzenia molekularne | ImageXpress | https://www.moleculardevices.com/products/cellular-imaging-systems#High-Content-Imaging |
| Mikrowirówka | GeneCompany | https://www.genecompany.com/index.php/Home/Goods/goodsdetails/gid/189.html | |
| cyfrowa GENESPEED X1Guangzhou Micro-shot Optical Technology Co., Ltd. | MS60 | https://www.mshot.com/article/677.html | |
| Kuchenka mikrofalowa | Midea Corp. | M1-211A | https://www.midea.cn/10000/10000000001 00511264425.html |
| Parafilm M | Sigma-Aldrich | P7793-1EA | https://www.sigmaaldrich.cn/CN/en/product/sigma/p7793?context=product |
| Shaker | Zhicheng Inc. | ZWY-2102C | |
| http://www.zhicheng.net/Product/0865291356.htmlSoftware | |||
| Oprogramowanie do akwizycji i analizy obrazu | Molecular Devices | MetaXpress | https://www.moleculardevices.com/products/cellular-imaging-systems/acquisition-and-analysis-software/metaxpress |
| OriginPro | OriginLab Corp. | Wersja 9.8.5.204 | 1. Wprowadzenie do oprogramowania: https://www.originlab.com/index.aspx?go=Products/Origin 2. Instrukcja tworzenia wykresu radarowego: https://www.originlab.com/doc/Origin-Help/RadarChart-Graph 3. Film instruktażowy dotyczący tworzenia wykresu radarowego: https://www.originlab.com/videos/details.aspx?pid=1813 |
Bibliografia
- The Huntington's Disease Collaborative Research Group. A novel gene containing a trinucleotide repeat that is expanded and unstable on Huntington's disease chromosomes. Cell. 72 (6), 971-983 (1993).
- Bauer, P. O., et al. Harnessing chaperone-mediated autophagy for the selective degradation of mutant huntingtin protein. Nature Biotechnology. 28 (3), 256-263 (2010).
- Lieberman, A. P., Shakkottai, V. G., Albin, R. L. Polyglutamine repeats in neurodegenerative diseases. Annual Review of Pathology. 14, 1-27 (2019).
- Sakahira, H., Breuer, P., Hayer-Hartl, M. K., Hartl, F. U. Molecular chaperones as modulators of polyglutamine protein aggregation and toxicity. Proceedings of the National Academy of Sciences of the United States of America. 99, Suppl 4 16412-16418 (2002).
- Bäuerlein, F., Fernández-Busnadiego, R., Baumeister, W. Investigating the structure of neurotoxic protein aggregates inside cells. Trends in Cell Biology. 30 (12), 951-966 (2020).
- Tu, Z., Yang, W., Yan, S., Guo, X., Li, X. J. CRISPR/Cas9: a powerful genetic engineering tool for establishing large animal models of neurodegenerative diseases. Molecular Neurodegeneration. 10, 35(2015).
- Zhang, H., et al. Inhibition of polyglutamine-mediated proteotoxicity by Astragalus membranaceus polysaccharide through the DAF-16/FOXO transcription factor in Caenorhabditis elegans. Biochemical Journal. 441 (1), 417-424 (2012).
- Koyuncu, S., et al. The ubiquitin ligase UBR5 suppresses proteostasis collapse in pluripotent stem cells from Huntington's disease patients. Nature Communications. 9 (1), 2886(2018).
- Dimitriadi, M., Hart, A. C. Neurodegenerative disorders: insights from the nematode Caenorhabditis elegans. Neurobiology of Disease. 40 (1), 4-11 (2010).
- Li, J., Le, W. Modeling neurodegenerative diseases in Caenorhabditis elegans. Experimental Neurology. 250, 94-103 (2013).
- Wang, Q., et al. Caenorhabditis elegans in Chinese medicinal studies: making the case for aging and neurodegeneration. Rejuvenation Research. 17 (2), 205-208 (2014).
- Hassan, W. M., Dostal, V., Huemann, B. N., Yerg, J. E., Link, C. D. Identifying Aβ-specific pathogenic mechanisms using a nematode model of Alzheimer's disease. Neurobiology of Aging. 36 (2), 857-866 (2015).
- Faber, P. W., Alter, J. R., MacDonald, M. E., Hart, A. C. Polyglutamine-mediated dysfunction and apoptotic death of a Caenorhabditis elegans sensory neuron. Proceedings of the National Academy of Sciences of the United States of America. 96 (1), 179-184 (1999).
- Zhang, J., et al. Antioxidant and neuroprotective effects of Dictyophora indusiata polysaccharide in Caenorhabditis elegans. Journal of Ethnopharmacology. 192, 413-422 (2016).
- Xiang, Y., et al. Epimedium polysaccharide alleviates polyglutamine-induced neurotoxicity in Caenorhabditis elegans by reducing oxidative stress. Rejuvenation Research. 20 (1), 32-41 (2017).
- Zhong, G., et al. Physicochemical and geroprotective comparison of Nostoc sphaeroides polysaccharides across colony growth stages and with derived oligosaccharides. Journal of Applied Phycology. 33 (2), 939-952 (2021).
- Xiao, L., et al. Salidroside protects Caenorhabditis elegans neurons from polyglutamine-mediated toxicity by reducing oxidative stress. Molecules. 19 (6), 7757-7769 (2014).
- Cordeiro, L. M., et al. Rutin protects Huntington's disease through the insulin/IGF1 (IIS) signaling pathway and autophagy activity: Study in Caenorhabditis elegans model. Food and Chemical Toxicology. 141, 111323(2020).
- Yang, X., et al. The neuroprotective and lifespan-extension activities of Damnacanthus officinarum extracts in Caenorhabditis elegans. Journal of Ethnopharmacology. 141 (1), 41-47 (2012).
- Xiao, L., et al. The traditional formula Kai-Xin-San alleviates polyglutamine-mediated neurotoxicity by modulating proteostasis network in Caenorhabditis elegans. Rejuvenation Research. 23 (3), 207-216 (2020).
- Morley, J. F., Brignull, H. R., Weyers, J. J., Morimoto, R. I. The threshold for polyglutamine-expansion protein aggregation and cellular toxicity is dynamic and influenced by aging in Caenorhabditis elegans. Proceedings of the National Academy of Sciences of the United States of America. 99 (16), 10417-10422 (2002).
- Gidalevitz, T., Ben-Zvi, A., Ho, K. H., Brignull, H. R., Morimoto, R. I. Progressive disruption of cellular protein folding in models of polyglutamine diseases. Science. 311 (5766), 1471-1474 (2006).
- Voisine, C., et al. Identification of potential therapeutic drugs for huntington's disease using Caenorhabditis elegans. PLoS One. 2 (6), 504(2007).
- Faber, P. W., Voisine, C., King, D. C., Bates, E. A., Hart, A. C. Glutamine/proline-rich PQE-1 proteins protect Caenorhabditis elegans neurons from huntingtin polyglutamine neurotoxicity. Proceedings of the National Academy of Sciences of the United States of America. 99 (26), 17131-17136 (2002).
Przedruki i uprawnienia
