Ten protokół opisuje oparte na iSCAT przetwarzanie obrazów i śledzenie pojedynczych cząstek, które umożliwia jednoczesne badanie masy cząsteczkowej i dyfuzyjnego zachowania makrocząsteczek oddziałujących z błonami lipidowymi. Instrukcje krok po kroku dotyczące przygotowania próbki, konwersji masy na kontrast, akwizycji filmu i obróbki końcowej są dostępne wraz ze wskazówkami, aby zapobiec potencjalnym pułapkom.
Artykuł metodologiczny
Śledzenie cząstek czułych na masę w celu scharakteryzowania dynamiki makrocząsteczek związanych z błoną
W tym artykule
Podsumowanie
Streszczenie
Krótkotrwałe lub przejściowe interakcje makromolekuł na błonach lipidowych i z nimi, interfejsie, gdzie zachodzi wiele istotnych reakcji biologicznych, są z natury trudne do oceny za pomocą standardowych metod biofizycznych. Wprowadzenie śledzenia cząstek wrażliwych na masę (MSPT) stanowi ważny krok w kierunku dokładnej ilościowej charakterystyki takich procesów. Z technicznego punktu widzenia było to możliwe dzięki pojawieniu się interferometrycznej mikroskopii rozpraszającej (iSCAT) opartej na fotometrii masowej (MP). Gdy strategia usuwania tła jest zoptymalizowana w celu ujawnienia dwuwymiarowego ruchu cząstek związanych z błoną, technika ta umożliwia analizę w czasie rzeczywistym zarówno dyfuzji, jak i masy cząsteczkowej nieznakowanych makrocząsteczek na błonach biologicznych. W tym miejscu opisano szczegółowy protokół wykonywania i analizy śledzenia wrażliwych na masę cząstek systemów związanych z membraną. Pomiary wykonywane na komercyjnym fotometrze masowym osiągają rozdzielczość czasową w zakresie milisekund oraz, w zależności od układu MP, granicę detekcji masy do 50 kDa. Aby pokazać potencjał MSPT w zakresie dogłębnej analizy dynamiki makrocząsteczek katalizowanych błonowo w ogóle, przedstawiono wyniki uzyskane dla przykładowych układów białkowych, takich jak natywny interaktor błonowy aneksyna V.
Wprowadzenie
Kiedyś postrzegane jedynie jako bariera przed szerokim zakresem warunków otoczenia, membrany biologiczne są obecnie uważane za jednostki funkcjonalne i platformy katalityczne1,2. Opierając się na ich zdolności do lokalizacji, wzmacniania i kierowania sygnałami w odpowiedzi na reakcje makrocząsteczkowe związane z błoną, interfejsy lipidowe stanowią kluczowy element dla szerokiej gamy procesów komórkowych, takich jak transport błonowy i kaskady sygnałowe3,4,5. Służąc jako miejsce zarodkowania do składania stabilnych kompleksów, przyłączanie błony często opiera się na dynamicznej równowadze między formami makrocząsteczek związanymi z błoną i cytozolowymi, a zatem ma charakter przejściowy6,7.
Pomimo ich wielkiego znaczenia w biologii, do tej pory wyzwaniem było opracowanie metod, które mogą zapewnić dostęp do niejednorodności składu, przestrzeni i czasu reakcji makromolekuł związanych z błoną w czasie rzeczywistym7,8. Aby rozwiązać podstawowe procesy molekularne, decydujące są dwa aspekty eksperymentalne: wystarczająca rozdzielczość czasowa i czułość pojedynczej cząstki. W związku z tym techniki uśredniania całego obrazu, takie jak odzyskiwanie fluorescencji po fotowybielaniu (FRAP), ale także znacznie bardziej czuła spektroskopia korelacji fluorescencji (FCS), mają ograniczenia, ponieważ w dużej mierze oddzielają informacje przestrzenne od informacji czasowej9. Ważnym krokiem w kierunku scharakteryzowania dynamiki poszczególnych cząsteczek było zatem pojawienie się śledzenia pojedynczych cząstek (SPT) w połączeniu z bardzo czułą mikroskopią. W szczególności skuteczne w tym zakresie okazały się dwa podejścia SPT. Po pierwsze, wykorzystanie fluoroforów jako etykiet i odpowiadających im systemów detekcji fluorescencji utorowało drogę do nanometrowej precyzji i milisekundowej rozdzielczości czasowej10,11,12. Po drugie, detekcja oparta na rozpraszaniu przy użyciu nanocząstek złota poprawiła zarówno precyzję lokalizacji, jak i rozdzielczość czasową odpowiednio w zakresie subnanometrowym i mikrosekundowym13,14,15,16. Pomimo wielu zalet obu podejść i ich znaczącego wkładu w mechanistyczne zrozumienie systemów związanych z błonami17,18, obie techniki były do tej pory ograniczone: wymagają znakowania interesujących nas cząsteczek, co potencjalnie zaburza ich naturalne zachowanie i są niewrażliwe na skład molekularny cząstek związanych z błoną19,20.
Oba te ograniczenia zostały ostatnio przezwyciężone dzięki wprowadzeniu nowatorskiego podejścia opartego na rozpraszaniu interferometrycznym (iSCAT), zwanego fotometrią masową (MP)21,22,23. Technika ta pozwala na określenie rozkładu masowego biomolekuł w roztworze zgodnie z ich kontrastem iSCAT po wylądowaniu na szklanym interfejsie. Jednak w celu wykrycia i scharakteryzowania ruchomych cząsteczek dyfundujących na błonach lipidowych konieczne było opracowanie bardziej wyrafinowanego podejścia do analizy obrazu. W międzyczasie zostało to z powodzeniem wdrożone i pozwala wykrywać, śledzić i określać masę cząsteczkową pojedynczych, nieznakowanych biomolekuł dyfundujących na granicy lipidów24,25. Technika ta, określana jako dynamiczna fotometria masowa lub śledzenie cząstek wrażliwych na masę (MSPT), umożliwia obecnie ocenę złożonych oddziaływań makromolekuł poprzez bezpośrednie rejestrowanie zmian w masie cząsteczkowej śledzonych jednostek, a tym samym otwiera nowe możliwości mechanistycznej analizy dynamiki molekularnej związanej z błoną.
Tutaj przedstawiono szczegółowy protokół przygotowania próbek, obrazowania i potoku analizy danych wymaganego dla MSPT. W szczególności omówiono wymagania dotyczące próbek i potencjalne problemy, które mogą wystąpić podczas pomiaru i analizy. Co więcej, niezrównany potencjał w zakresie analizy systemów makromolekularnych oddziałujących z błonami jest prezentowany przez różne reprezentatywne wyniki.
Protokół
1. Przygotowanie próbki
- Wytwarzanie pęcherzyków wielopłytkowych (MLV)
- Obliczyć ilość lipidów rozpuszczonych w chloroformie zgodnie z żądaną mieszaniną lipidów i wymaganą objętością zawiesiny.
UWAGA: Dla buforu do reprodukcji (reakcji) zaleca się końcowe stężenie pęcherzyków wynoszące 4 mg/ml lipidów. - Odpipetować obliczoną objętość lipidów do szklanej fiolki o pojemności 1,5 ml za pomocą pipet wyporowych wyposażonych w szklane końcówki.
- Odparować rozpuszczalnik lipidowy pod słabym strumieniem azotu i stale obracać fiolkę, aby zapewnić równomierne rozprowadzenie lipidów na szklanych ściankach.
- Zapewnić pełne odparowanie rozpuszczalnika, umieszczając fiolkę pod stałym strumieniem azotu na 15 minut.
- Usunąć resztkowe ślady chloroformu poprzez suszenie próżniowe w eksykatorze próżniowym przez dodatkową godzinę.
- Ponownie uwodnić mieszaninę lipidów w żądanym buforze do ponownego zawieszania (reakcji) i dokładnie zwirować zawiesinę, aż film lipidowy zostanie rozpuszczony ze ścianek fiolki.
UWAGA: Bufor reakcyjny powinien zapewniać aktywność i stabilność białka. Bufor reakcyjny zastosowany w tym badaniu zawiera 50 mM Tris-HCl (pH = 7,5), 150 mM KCl i 5 mM MgCl2. Należy pamiętać, że każdy bufor używany do rozcieńczania lipidów lub białek musi zostać przefiltrowany w celu usunięcia zakłócających zanieczyszczeń cząstkami stałymi (patrz krok 5).
- Obliczyć ilość lipidów rozpuszczonych w chloroformie zgodnie z żądaną mieszaniną lipidów i wymaganą objętością zawiesiny.
- Wytwarzanie małych pęcherzyków jednowarstwowych (SUV)
- W kolejnych cyklach zamrażania i rozmrażania zawiesiny lipidów (etap 1.1.6) zagotować 500 ml wody w zlewce na gorącej płycie (między 70 °C a 99 °C) i przygotować pojemnik z ciekłym azotem.
- Szokowe zamrożenie rezawiesiny lipidów w ciekłym azocie. Przenieść fiolkę do zlewki z gorącą wodą, aż roztwór całkowicie się rozmrozi. Powtórz ten cykl zamrażania i rozmrażania 8-10 razy lub do momentu, gdy wcześniej mętna mieszanina stanie się klarowna.
UWAGA: Używaj odpowiedniej odzieży i sprzętu ochronnego, takiego jak okulary, rękawice i pęseta, aby zapobiec bezpośredniemu kontaktowi z ciekłym azotem, zamrożoną fiolką z lipidami lub wrzącą wodą. - W celu wytworzenia monodyspersyjnego rozkładu pęcherzyków należy zmontować wytłaczarkę lipidową i przetestować jej integralność za pomocą buforu reakcyjnego, aby upewnić się, że nie przecieka.
UWAGA: Jeśli zaobserwuje się wyciek, ostrożnie ponownie zmontuj wytłaczarkę lipidową, aż nie będzie widoczne rozlanie bufora. - Wytłaczaj zawiesinę lipidową przez 37 przejść przez błonę nukleoporową o wielkości porów 50 nm26. Liczba przejść powinna być nierówna, aby zapewnić, że końcowa mieszanina SUV przekroczyła błonę nukleoporową, a zatem jest wolna od agregatów lipidowych lub pęcherzyków wielopłytkowych. Wytłaczane pęcherzyki zostaną później wykorzystane do utworzenia podpartych dwuwarstw lipidowych (patrz kroki 6 i 7).
UWAGA: SUV-y mogą również powstawać w wyniku sonikacji uwodnionej mieszaniny lipidów. Jednak przygotowanie przez ekstruzję zapewnia bardziej monodyspersyjny rozkład SUV, co ułatwia pękanie pęcherzyków podczas tworzenia wspieranej dwuwarstwy lipidowej. Wytłaczane pęcherzyki można przechowywać w lodówce maksymalnie 3 dni.
2. Czyszczenie szkiełek mikroskopowych
- Rozprowadzić równą liczbę szkiełek mikroskopowych (nr #1.5; grubość 0.17 mm) o wymiarach 24 mm x 60 mm i 24 mm x 24 mm w uchwytach mikroskopowych z politetrafluoroetylenu (PTFE).
- Przenieść uchwyty PTFE do zlewek zawierających ultraczystą wodę i poddać je sonikacji przez 15 minut w temperaturze pokojowej.
UWAGA: W zależności od zlewki należy dostosować objętość wody, aby całkowicie zakryć uchwyt PTFE. - Użyj pęsety, aby wyjąć uchwyty ze zlewki i zastąp wodę ultraczystym izopropanolem. Włożyć uchwyt do zlewki zawierającej izopropanol i ponownie poddać sonikacji przez 15 min.
UWAGA: W zależności od zlewki, objętość izopropanolu należy dostosować, aby całkowicie pokryć uchwyt PTFE. - Zastąp izopropanol ultraczystą wodą i poddaj sonikacji zlewki zawierającej uchwyty przez 15 minut.
- Wyjmij uchwyty z PTFE ze zlewek i wysusz szkiełka mikroskopowe w uchwycie pod stałym strumieniem azotu lub sprężonego powietrza.
UWAGA: Upewnij się, że szkiełka podstawowe są prawidłowo czyszczone, używając rękawiczek, czystych zlewek i folii parafinowej do przykrycia każdej zlewki. W przeciwnym razie pył resztkowy może powodować znaczne wahania tła podczas pomiarów MSPT.
3. Hydrofilizacja preparatów mikroskopowych
UWAGA: Aby uzyskać jednorodną i płynną dwuwarstwę lipidową, hydrofilyzacja szkiełek jest niezbędna i musi być przeprowadzona tuż przed montażem komory przepływowej.
- Umieść uchwyty z PTFE zawierające tylko szkiełka mikroskopowe o wymiarach 24 mm x 60 mm w czyszczalni plazmowej z tlenem jako gazem procesowym i wyczyść szkiełka mikroskopowe plazmą (parametry używane w tej pracy: 30% mocy, ciśnienie tlenu 0,3 mbar przez 30 s; szczegóły dotyczące zastosowanej myjki plazmowej znajdują się w Tabeli materiałów).
UWAGA: Aby uzyskać membrany płynów, parametry czyszczenia plazmowego, takie jak moc, ciśnienie tlenu i czas czyszczenia, muszą być dostosowane do każdego instrumentu. W tym celu zaleca się stosowanie fluorescencyjnie znakowanych lipidów, aby zapewnić płynność błony, którą można określić ilościowo za pomocą odzyskiwania fluorescencji po eksperymentach z fotowybielaniem (FRAP)27. Jeśli parametry nie są zoptymalizowane dla danej konfiguracji, dyfuzja membranowa może być zakłócona z powodu zmniejszonej płynności membrany.
4. Montaż komór przepływowych
- Przed montażem komory przepływowej należy przygotować następujące elementy: oczyszczone szkiełka mikroskopowe (24 mm x 24 mm), hydrofilizowane szkiełka mikroskopowe (24 mm x 60 mm), folię aluminiową, tekturę płaską, skalpel i taśmę dwustronną.
- Owiń płaski karton folią aluminiową.
- Oczyszczone szkiełka mikroskopowe o wymiarach 24 mm x 24 mm rozłóż na folii aluminiowej w odpowiedniej odległości między sobą.
- Przymocuj dwustronne paski taśmy do górnej i dolnej krawędzi prowadnic.
- Każde szkiełko mikroskopowe należy wyciąć skalpelem, tak aby można je było usunąć z folii aluminiowej. W rezultacie, każdy slajd powinien mieć paski dwustronnej taśmy przymocowane do górnej i dolnej krawędzi slajdu (patrz Rysunek 1).
- Przymocuj szkiełko o wymiarach 24 mm x 24 mm za pomocą dwóch dwustronnych pasków taśmy do hydrofilizowanego szkiełka o wymiarach 24 mm x 60 mm, aby utworzyć ścieżkę przepływu między mniejszymi i większymi szkiełkami mikroskopowymi.
UWAGA: Aby zapewnić czyste komory przepływowe, należy stale nosić rękawice i upewnić się, że stół warsztatowy jest wolny od kurzu.
5. Filtracja reakcyjnych
- Sterylne filtrowanie wszystkich reakcyjnych przez membrany z octanu celulozy 0,45 μm, aby zapewnić minimalny sygnał tła podczas pomiarów MSPT.
UWAGA: Jeśli obecność nukleotydów, takich jak ATP, jest niezbędna do udanego eksperymentu, należy pamiętać o potencjalnym wzroście sygnału tła. Zaleca się stosowanie tylko minimalnych ilości, które nadal zapewniają aktywność białka.
6. Wspomagane tworzenie dwuwarstwy lipidowej (SLB)
UWAGA: Zaleca się wykonanie formowania dwuwarstw lipidowych na fotometrze masy, aby wizualnie zapewnić skuteczne rozprzestrzenianie się pęcherzyków i całkowite usunięcie niezrośniętych pęcherzyków.
- Rozcieńczyć świeżo wytłaczane SUV (więcej szczegółów w kroku 1) do końcowego stężenia 0,4 mg/ml w wymaganym buforze reakcyjnym. Opcjonalnie, aby przyspieszyć pękanie pęcherzyków, dodać 2 mM CaCl2 do zawiesiny pęcherzyków.
UWAGA: Kationy dwuwartościowe mogą powodować agregację niektórych lipidów, takich jak2. W przypadku mieszanin zawierających takie lipidy należy powstrzymać się od stosowania CaCl2 w celu ułatwienia pękania pęcherzyków lub innych dwuwartościowych kationów w buforze do resuspensji. Jeśli jest to wymagane w eksperymencie, kationy dwuwartościowe można dodać po pomyślnym utworzeniu podpartej dwuwarstwy lipidowej. - Przepłukać 50 μl zawiesiny pęcherzyków do komory przepływowej (krok 4) i inkubować komorę przez 2 min.
UWAGA:, pęcherzyki lub roztwory białkowe można przepłukać przez komorę przepływową małym kawałkiem chusteczki do namaczania. Możliwe jest jednak również zastosowanie mechanicznego systemu pompowego. - Usunąć niestopione pęcherzyki poprzez wielokrotne (co najmniej trzykrotne) przemywanie komory przepływowej za każdym razem 200 μl buforu reakcyjnego.
UWAGA: Pęcherzyki należy dokładnie wypłukać z komory przepływowej, aby zapewnić stabilny sygnał tła podczas pomiarów MSPT.
7. Generowanie krzywej kalibracyjnej
UWAGA: Aby przekształcić kontrast wykrytych cząstek na masę cząsteczkową, ich sygnał musi być skalibrowany przy użyciu białek o znanych rozmiarach. Zaleca się dostosowanie standardowego reżimu wielkości białka tak, aby obejmował zakres mas cząsteczkowych oczekiwanych dla systemu będącego przedmiotem zainteresowania.
- Biotynylacja standardowych białek z resztą cysteiny
- Obliczyć odpowiednią ilość maleimidu-biotyny dla standardowego białka zgodnie z instrukcjami producenta.
- Inkubować białko wzorcowe z oznaczoną objętością biotyny maleimidowej przez 1 godzinę w temperaturze pokojowej.
- Aby usunąć niesprzężoną biotynę maleimidową ze sprzężonego kompleksu biotyna-białko, należy przeprowadzić chromatografię wykluczania wielkości na kolumnie odpowiedniej dla białka będącego przedmiotem zainteresowania.
- Określ stężenie białka za pomocą testu Bradforda.
UWAGA: Aby przechowywać białko wzorcowe do dalszych pomiarów, należy zamrozić białko w jednorazowych porcjach w ciekłym azocie i przechowywać je w temperaturze -80 °C.
- Pomiar białek wzorcowych dla krzywej kalibracyjnej
- W komorze przepływowej przygotować dwuwarstwę lipidową z 0,4 mg/ml wytłaczanymi SUV (więcej szczegółów patrz kroki 1 i 6) zawierającymi 0,01% mol. (v/v) Biotinyl Cap PE (biotynyl 1,2-dioleoilo-sn-glicero-3-fosfoetanoloamino-N-kap).
- Dodać 50 μl dwuwartościowej streptawidyny o stężeniu 2,5 nM do dwuwarstwy w komorze przepływowej i inkubować przez 10 min.
UWAGA: Dwuwartościowa streptawidyna została wyrażona i oczyszczona zgodnie z opisem w Howarth et al.28. Można również stosować czterowartościową streptawidynę. Jednak zastosowanie dwuwartościowej streptawidyny może zmniejszyć możliwą stechiometrię reakcji między biotynylowanymi lipidami a standardowymi białkami, które są sprzężone z ugrupowaniem biotyny w celu ułatwienia przypisania gatunków. - Usunąć niezwiązaną dwuwartościową streptawidynę za pomocą 100 μl buforu reakcyjnego.
- Dodać 50 μl standardowego białka sprzężonego z biotyną o długości 100 nM do dwuwarstwy w komorze przepływowej i inkubować przez 2 min.
UWAGA: W zależności od skuteczności biotynylacji i tego, czy stosuje się streptawidynę dwu- czy czterowartościową, optymalne stężenia standardowego białka sprzężonego z biotyną i streptawidyny mogą się różnić. - Wykonaj pomiar MSPT zgodnie ze szczegółami opisanymi w kroku 8.
UWAGA: Warunki obrazowania muszą być identyczne zarówno dla próbki, jak i wzorców kalibracyjnych.
8. Obrazowanie
- Tworzenie SLB i przygotowanie próbki
- Jak opisano bardziej szczegółowo w kroku 6, wprowadzić SUV-y z pożądaną mieszaniną lipidów (25 μl) do komory przepływu próbki i utworzyć podpartą dwuwarstwę lipidową. Dokładnie umyć komorę (trzykrotnie) 100 μl buforu reakcyjnego w celu usunięcia wszystkich niepołączonych pęcherzyków.
- Dodać 50 μl białka będącego przedmiotem zainteresowania do komory na próbkę.
UWAGA: Ponieważ MSPT jest metodą jednocząsteczkową, stężenie białka musi być utrzymywane w zakresie od pM do nM, aby umożliwić niezakłócone wykrywanie i śledzenie cząstek.
- Akwizycja wideo
- Ustaw żądane warunki obrazowania, takie jak rozmiar pola widzenia (FOV), liczba klatek na sekundę, czas ekspozycji i czas akwizycji w oprogramowaniu do akwizycji.
UWAGA: Następujące ustawienia okazały się działać dla MSPT na komercyjnym fotometrze masowym (patrz Tabela materiałów): pole widzenia 128 pikseli x 35 pikseli, częstotliwość odświeżania 1 kHz co daje około 200 klatek na sekundę po późniejszym 5-krotnym uśrednieniu klatek i czas ekspozycji 0,95 ms. - Dostosuj ostrość automatycznie lub ręcznie. W razie potrzeby przesuń FOV do pozycji z jednorodną membraną za pomocą bocznego sterowania.
- Utwórz folder projektu i rozpocznij nagrywanie filmu. Po zakończeniu nagrywania określ nazwę pliku w oknie dialogowym wyświetlanym przez oprogramowanie do akwizycji. Film jest następnie automatycznie zapisywany w folderze projektu jako plik MP do późniejszej analizy.
UWAGA: Zapisać co najmniej trzy powtórzenia w różnych komorach przepływowych, aby zapewnić integralność poszczególnych membran i odtwarzalność wyników. Czas trwania filmu można ustawić z góry i zależy to od rodzaju eksperymentu. W większości przypadków zalecany jest czas akwizycji od 5 min do 7 min.
UWAGA: Domyślnie nagrania filmowe w komercyjnym oprogramowaniu do masowej akwizycji fotometrów są kompresowane przed zapisaniem w celu zmniejszenia miejsca w pamięci. Jednak kompresja plików musi być wyłączona, aby umożliwić niestandardową analizę danych zgodnie z opisem w tym protokole. Szczegółowe informacje na temat wyłączania kompresji plików można znaleźć w instrukcji obsługi producenta.
- Ustaw żądane warunki obrazowania, takie jak rozmiar pola widzenia (FOV), liczba klatek na sekundę, czas ekspozycji i czas akwizycji w oprogramowaniu do akwizycji.
9. Analiza danych
UWAGA: Potokowi analizy danych towarzyszą dwa interaktywne notatniki Jupyter (MSPT analysis.ipynb, Movie visualization.ipynb). Notesy Jupyter i skojarzone niestandardowe moduły języka Python niezbędne do przeprowadzenia analizy MSPT opisanej poniżej są dostępne w repozytorium publicznym: https://github.com/MSPT-toolkit/MSPT-toolkit. Aby uzyskać szczegółowe instrukcje dotyczące poniższej analizy, czytelnicy są odsyłani do MSPT analysis.ipynb, do którego można uzyskać dostęp za pomocą powyższego linku.
- Przetwarzanie wideo
- Usuń dominujące statyczne rozpraszanie światła za pomocą algorytmu estymacji tła w pikselach przy użyciu funkcji image_processing.mp_reader.
- Aby zastosować usuwanie tła, wybierz opcję continuous_median dla trybu parametrów i ustaw odpowiednią długość przesuwanego okna mediany (window_length) w sekcji B.1 notesu. Opcjonalnie zapisz filmy po usunięciu tła, aby użyć ich do wykrywania cząstek i łączenia trajektorii (ustawiając parametr save_processed_movies na True).
UWAGA: Dostosuj rozmiar okna (window_length) do wartości od 101 do 2001 w zależności od gęstości cząstek na membranie, oczekiwanego współczynnika dyfuzji, szybkości akwizycji i wymaganej prędkości przetwarzania.
UWAGA: Strategia usuwania tła działa dobrze, jeśli membrana nie jest zbyt gęsto upakowana i jeśli dyfuzja cząstek jest wystarczająco szybka (tj. każdy piksel przez większość czasu nie jest zajęty przez cząstkę). W przeciwnym razie kontrast cząstek będzie systematycznie niedoceniany, ponieważ nie można ich prawidłowo odróżnić od sygnału tła. Można to skompensować, zwiększając medianę rozmiaru okna kosztem szybkości obliczeń. Należy jednak pamiętać, że ustawienie zbyt dużego rozmiaru okna może negatywnie wpłynąć na wynik z powodu dryfu próbki. Kluczowa jest wizualna inspekcja przetworzonych filmów.
- Aby zastosować usuwanie tła, wybierz opcję continuous_median dla trybu parametrów i ustaw odpowiednią długość przesuwanego okna mediany (window_length) w sekcji B.1 notesu. Opcjonalnie zapisz filmy po usunięciu tła, aby użyć ich do wykrywania cząstek i łączenia trajektorii (ustawiając parametr save_processed_movies na True).
- Wykrywaj cząstki i ich położenie w całym filmie za pomocą funkcji particle_fitting.particle_fitter (patrz rozdział B.2 notebooka).
- Dostosuj czułość wykrywania cząstek za pomocą parametru progowego (thresh; patrz sekcja B.1 notatnika), który służy do podświetlania potencjalnych miejsc poprzez binaryzację obrazu. Wpływ różnych parametrów progowych na czułość detekcji punktowej można zbadać w osobnym notatniku (Movie visualization.ipynb). Wyniki detekcji cząstek są automatycznie zapisywane w plikach CSV w podkatalogu pliku filmowego.
UWAGA: Ustawianie parametru progowego na arbitralnie niskim poziomie (na przykład w przypadku filmów wykonanych za pomocą użytego fotometru masowego, parametr progowy poniżej 0,0005) nie jest zalecane, ponieważ miejsca kandydujące będą zdominowane przez fałszywy szum, a tym samym wydłużą czas przetwarzania.
- Dostosuj czułość wykrywania cząstek za pomocą parametru progowego (thresh; patrz sekcja B.1 notatnika), który służy do podświetlania potencjalnych miejsc poprzez binaryzację obrazu. Wpływ różnych parametrów progowych na czułość detekcji punktowej można zbadać w osobnym notatniku (Movie visualization.ipynb). Wyniki detekcji cząstek są automatycznie zapisywane w plikach CSV w podkatalogu pliku filmowego.
- Usuń dominujące statyczne rozpraszanie światła za pomocą algorytmu estymacji tła w pikselach przy użyciu funkcji image_processing.mp_reader.
- Łączenie cząstek w kolejnych klatkach w trajektorie za pomocą pakietu Pythona trackpy (v.0.5.0)29.
UWAGA: Łączenie trajektorii jest wykonywane w locie po wykryciu punktu. W rezultacie dodatkowy plik CSV zawierający informacje o trajektorii jest przechowywany w podkatalogu pliku CSV z detekcją cząstek.- Usuń trajektorie ze zbyt małą liczbą punktów za pomocą parametru minimum_trajectory_length (patrz rozdział B.1 w notatniku), aby umożliwić solidne określenie współczynników dyfuzji. Szczegółowe wyjaśnienia dotyczące innych parametrów funkcji trackpy można znaleźć w dokumentacji trackpy.
- Analiza trajektorii
- W sekcji C.1 notebooka określ liczbę klatek na sekundę (frame_rate) i rozmiar pikseli w nm (pixel_size), które były używane do pozyskiwania filmów. Utwórz listę plików CSV zawierających informacje o trajektorii zwrócone przez trackpy (patrz krok 9.2) za pomocą funkcji trajectory_analysis.get_csv_files (sekcja C.2 notesu).
- Dodatkowo określ nazwę pliku wyjściowego dla kontenera HDF5, który jest używany do przechowywania wyników dopasowania na dysku (sekcja C.3 notebooka). Przeanalizuj wszystkie trajektorie za pomocą funkcji trajectory_analysis.fit_trajectories w sekcji C.4 notesu, która iteruje po liście plików CSV. Ta funkcja wykorzystuje analizę rozkładu odległości skoku (JDD)30 i średniego kwadratu przemieszczenia (MSD)31 w celu oszacowania współczynnika dyfuzji każdej trajektorii.
- Przeliczyć medianę kontrastu każdej trajektorii na odpowiadającą jej masę, korzystając z zależności kontrast-masa uzyskanej z kalibracji MSPT (patrz sekcja 7). Określić nachylenie (nachylenie) i punkt przecięcia z osią y (odsunięcie) linii kalibracyjnej, która odnosi kontrast iSCAT do masy cząsteczkowej (funkcja trajectory_analysis.apply_calibration; patrz rozdział C.5 notatnika). Ta funkcja dodaje kolumnę z medianą masy trajektorii do każdej ramki danych.
- Oceń pozorną gęstość cząstek na membranie za pomocą funkcji trajectory_analysis.gęstość_membrany, która zwraca medianę gęstości wyrażoną w postaci wykrytych cząstek i obecnych trajektorii podczas każdej klatki (patrz sekcja C.6 notatnika) jako dodatkowe kolumny w ramce danych.
UWAGA: Ponieważ część cząstek zostanie utracona zarówno podczas procesu wykrywania, jak i łączenia trajektorii, rzeczywista gęstość cząstek może być wyższa. Aby uzyskać wiarygodne wyniki dotyczące gęstości cząstek, jak również histogramów masy, należy przeprowadzić oględziny reprezentatywnych zrzutów ekranu w celu sprawdzenia, czy warunki pomiaru są wiarygodne dla śledzenia pojedynczych cząstek (patrz krok 9.1.1).
10. Wizualizacja danych
- Zilustruj korelację współczynnika masy i dyfuzji z dwuwymiarowym szacowaniem gęstości jądra (KDE), które jest oparte na pakiecie Pythona fastkde (v.1.0.19; https://pypi.org/project/fastkde/).
- Aby wygenerować wykres, określ plik HDF5 zawierający wyniki MSPT (patrz krok 9.3.2 i sekcja D.1 notatnika) i wybierz pojedynczą (sekcja notesu D.2) lub połączoną ramkę danych (sekcja notesu D.3) jako dane wejściowe dla funkcji plotting.generate_2D_KDE (sekcja notesu D.4).
UWAGA: Każdy wykreślony zestaw danych powinien zawierać idealnie więcej niż 1,000 trajektorii, aby uzyskać niezawodne 2D-KDE.
Wyniki
Postępując zgodnie z przedstawionym tutaj szczegółowym protokołem przygotowania wspieranych lipidowych dwuwarstw (SLB) w komorach przepływowych (Rysunek 1), można wyraźnie rozpoznać wzór przypominający plamki (speckle) w widoku natywnym dla wszystkich przedstawionych warunków (Rysunek 2). Efekt ten jest spowodowany chropowatością powierzchni szkła, która zazwyczaj dominuje nad sygnałem rozproszonym i prowadzi do powstania warunków wizualnie nieodróżnialnych (szkło, szkło z SLB lub szkło z SLB i przyłączonymi białkami). Obecność pęcherzyków jest jednak wyraźnie widoczna ze względu na ich duży przekrój czynny rozpraszania, co umożliwia obserwację pękania pęcherzyków i ich fuzji w homogeniczne membrany (Rycina 2B i Film uzupełniający 1). Podczas usuwania statycznego sygnału rozpraszania powierzchni szkła za pomocą podejścia ratiometrycznego, które uwypukla elementy dynamiczne w polu widzenia24,25można wykryć nieoznakowane białka dyfundujące w błonie (Rysunek 2D) podczas gdy pusty SLB (Rycina 2C) lub samo szkło (Rysunek 2A) przedstawia obraz z szumami.
Wewnętrzne tło pomiarów MSPT można oszacować lokalnie, dzieląc wartość każdego piksela przez medianę n poprzednich i następnych pikseli filmu w tej samej pozycji obrazu (Rysunek 3). W rezultacie makrocząsteczki pojawiają się jako izotropowe funkcje rozproszenia punktu (PSF), których ruch na błonie można obserwować, śledzić i kwantyfikować. W rzeczywistości dostępność zarówno kontrastu, jak i zachowania dynamicznego umożliwia bezpośrednie powiązanie wielkości cząsteczki z jej odpowiednim zachowaniem dyfuzyjnym, bez konieczności znakowania cząsteczki. Niemniej jednak, aby zinterpretować kontrast iSCAT wyznaczony podczas eksperymentów MSPT, niezbędne jest przeprowadzenie kalibracji przekładającej amplitudę sygnału na masę cząsteczkową. Można to osiągnąć poprzez przyłączanie biomolekuł o znanej masie do SLB poprzez kompleks biotyna-streptawidyna-biotyna (Rysunek 4A). Jako przykładową strategię można zastosować biotynilowane warianty albuminy surowicy bydlęcej (BSA), białka A (prA), fosfatazy alkalicznej (AP) i fibronektyny (FN), które wiążą się ze streptawidyną (STP), która z kolei jest związana z lipidami zawierającymi biotynę (Biotinyl Cap PE) w błonie. Jak pokazano na Rysunku 4A, coraz wyraźniejszy kontrast tych przykładowych makrocząsteczek odzwierciedla rosnącą masę cząsteczkową odpowiednich biotynilowanych standardów. Poprzez przypisanie każdego piku na histogramach kontrastu (Rysunek 4B) do odpowiadającej masy stanu oligomerycznego białka standardowego, wykazana zostaje liniowa zależność między kontrastem a masą21,22, która może być następnie wykorzystana do analizy nieznanych układów makrocząsteczkowych (Rysunek 4C).
Dobrym przykładem wykazującym przydatność i możliwości MSPT w analizie mas cząsteczkowych, a tym samym w badaniu stanów oligomerycznych i procesów oligomeryzacji, jest analiza biotynilowanej aldolazy oraz biotynilowanego IgG (Rysunek 5). Powszechnie przyjmuje się, że aldolaza jest homotetramerem32. Jednak rozkład mas rozdzielony za pomocą MSPT wykazuje cztery wyraźne piki, co wskazuje na obecność wielu populacji (Rysunek 5A). Podczas gdy pierwszy mniejszy pik odpowiada nieobsadzonej streptawidynie i jest spodziewany ze względu na konfigurację tego typu eksperymentu, można również wykryć kompleksy aldolazy składające się z zaledwie dwóch podjednostek (2SU) lub sześciu podjednostek (6SU) (Rysunek 5B). Co ciekawe, tetra- i heksameryczne kompleksy aldolaza-streptawidyna wykazują zmniejszony współczynnik dyfuzji w porównaniu z dimeryczną aldolazą i samą streptawidyną, co wskazuje na zwiększony opór lepkościowy, np. poprzez przyłączenie drugiej biotynilowanej lipidy do streptawidyny. Podobnie, biotynilowany IgG wykazuje trzy piki w rozkładzie mas, przy czym pierwszy pik ponownie odpowiada masie pojedynczej streptawidyny. Masa najliczniejszego piku odpowiada masie jednego łańcucha lekkiego i jednego ciężkiego (1SU), czyli połowie przeciwciała IgG. Pełne przeciwciało z dwiema identycznymi połowami (2SU) jest wykrywane w około 11% przypadków. Spadek współczynnika dyfuzji wraz ze wzrostem rozmiaru kompleksu wskazuje na oddziaływania streptawidyny z więcej niż jedną biotynilowaną lipidą lub dodatkowy opór spowodowany przyłączonym IgG, albo na oba te zjawiska.
Oprócz samej analizy stanów oligomerycznych zależnych od błony, MSPT zapewnia również szczególną zaletę w postaci korelacji zachowania dyfuzyjnego interesującej makrocząsteczki z jej stanem oligomerycznym. Reprezentatywne wyniki tego typu analizy przedstawiono dla aneksyny V (AnV) oraz podjednostki B toksyny cholerowej (CTxB), które wiążą się odpowiednio z dioleofilofosfatydyloseryną (DOPS) lub glikosfingolipidami (GM1) wbudowanymi w błonę (Rysunek 6A). Oba oszacowania gęstości jądra (KDE) wykazują unimodalne rozkłady masy i dyfuzji, co wskazuje na obecność jednego dominującego gatunku o podobnym zachowaniu dyfuzyjnym. Pozycję piku masy cząsteczkowej i współczynnika dyfuzji określono odpowiednio na 49,8 ± 2,2 kDa oraz 1,4 ± 0,1 µm2/s dla AnV, a także na 62,7 ± 3,1 kDa oraz 0,4 ± 0,1 µm2/s dla CTxB. Zmierzone współczynniki dyfuzji są porównywalne z wartościami raportowanymi wcześniej w badaniach z użyciem wysokorozdzielczego AFM oraz FRAP33,34. Nieznacznie obniżona masa w porównaniu z masą oczekiwanej makrocząsteczki (52 kDa dla trimeru AnV, 65 kDa dla pentameru CTxB) może wskazywać na obecność w ansamblu mniejszych kompleksów z mniejszą liczbą podjednostek. Chociaż różnica masy między białkami jest niewielka i bliska określonej granicy detekcji mikroskopu (≈50 kDa), ich współczynniki dyfuzji różnią się znacząco. W mieszaninie ekvimolarnej, na przykład poprzez porównanie dyfuzji mieszaniny z rozkładem samych AnV i CTxB, można wywnioskować, że AnV występuje na błonie w większej ilości niż CTxB (Rysunek 6B). Jednakże, jeśli stężenie CTxB zostanie dwukrotnie zwiększone w stosunku do stężenia AnV, równowaga przesunie się w stronę CTxB jako dominującego białka na błonie. Jak zilustrowano na przykładzie mieszanin AnV i CTxB, MSPT pozwala nie tylko na rozróżnianie makrocząsteczek związanych z błoną na podstawie ich masy cząsteczkowej, ale umożliwia również rozróżnienie różnych populacji makrocząsteczek na podstawie ich zachowania dyfuzyjnego.
Podobnie jak w przypadku wszystkich technik mikroskopowych, niektóre wymagania eksperymentalne są kluczowe dla uzyskania pożądanej jakości danych. Ważnym przykładem w tym kontekście są dokładnie oczyszczone szkiełka nakrywkowe. Ogólnie przyjmuje się, że jest to warunek wstępny dla eksperymentów z pojedynczymi cząsteczkami związanych z mikroskopią, jednak MSPT jest szczególnie wrażliwe na zanieczyszczenia próbek. Zwiększone rozproszenie pochodzące z powierzchni szklanej nieoczyszczonych szkiełek nakrywkowych uniemożliwia jakiekolwiek ilościowe pomiary iSCAT. Co istotne, nawet pozostałości brudu lub cząsteczki kurzu na niedostatecznie oczyszczonym szkle mogą powodować zauważalne zniekształcenia obrazu, rozpoznawalne jako jasne punkty w natywnym trybie obrazowania (Rycyna 7A). Chociaż defekty te są usuwane podczas szacowania tła ze względu na ich statyczny charakter, dokładne określenie kontrastu cząsteczki może zostać zaburzone, co wpływa negatywnie na jej analizę ilościową. Innym częstym problemem napotykanym w eksperymentach MSPT są pozostałe pęcherzyki, które albo dryfują (zakreślone na pomarańczowo) przez pole widzenia, albo niepołączone pęcherzyki, które utknęły (zakreślone na niebiesko) w określonym miejscu na błonie i pojawiają się jako duże pulsujące rozpraszacze (Rycina 7B). Aby zminimalizować ich występowanie i zakłócanie akwizycji filmów, zaleca się dokładne przemycie SLB przed dodaniem białka oraz stosowanie świeżo przygotowanych mieszanin małych pęcherzyków jednowarstwowych (SUVs) i kationów dwuwartościowych.
Jednym z czynników, które należy wziąć pod uwagę przy projektowaniu eksperymentów śledzenia cząstek wrażliwych na masę, jest gęstość makrocząsteczek związanych z interfejsem błony. Wysoka gęstość cząstek na błonie może w rzeczywistości powodować problemy z dwóch powodów: i) łączenie detekcji cząstek z kolejnych klatek w trajektorie staje się jednoznaczne, co zwiększa prawdopodobieństwo błędów i błędnego oszacowania współczynników dyfuzji. ii) masa cząstek, wyznaczana z amplitudy odpowiadającego im dopasowania PSF, jest systematycznie niedoszacowana, a piki masy ulegają poszerzeniu, ponieważ oddzielenie statycznego sygnału tła od dynamicznego sygnału cząstek staje się coraz trudniejsze (Rycina 7C). Obecnie wizualna ocena jakości danych podczas rejestracji filmów MSPT jest utrudniona na dostępnych komercyjnych mikroskopach, ponieważ zaimplementowany w oprogramowaniu do akwizycji widok ratiometryczny wykorzystuje usuwanie tła opracowane dla fotometrii masowej21 zamiast algorytmu opartego na medianie, opisanego tutaj oraz w referencjach24,25 (Rycina 7D). Ciągłe usuwanie tła oparte na średniej, stosowane do wizualizacji osadzających się cząsteczek w fotometrii masowej, sprawia, że dyfundujące cząstki wyglądają jak ciemne fronty z jasnymi ogonami, co czyni plamki wysoce anizotropowymi i utrudnia dopasowanie PSF podczas procedury detekcji. W związku z tym zastosowanie zaimplementowanego w oprogramowaniu do akwizycji przetwarzania obrazu opartego na średniej jest nieodpowiednie do analizy dyfundujących biomolekuł na błonach.
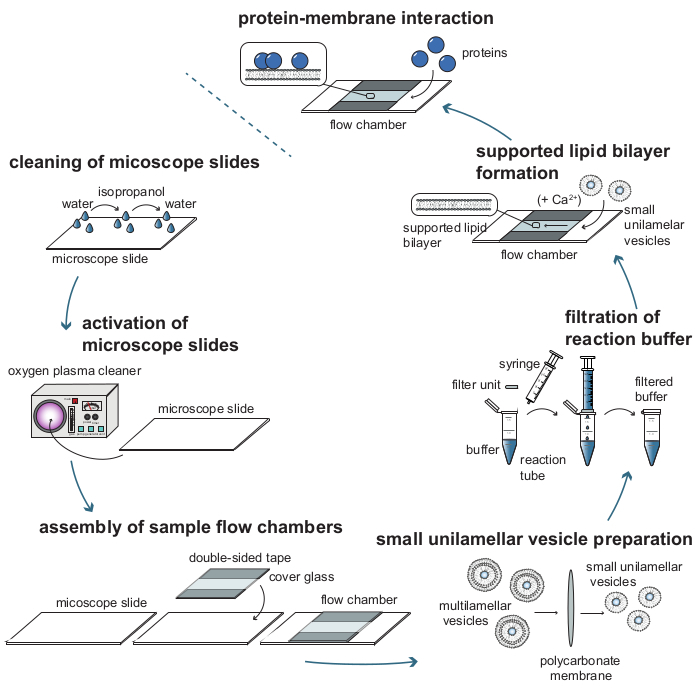
Rycina 1: Schemat blokowy poszczególnych etapów wymaganych do analizy interakcji białko-błona za pomocą śledzenia cząstek wrażliwych na masę (MSPT). W celu przygotowania próbek do pomiarów MSPT szkiełka przedmiotowe muszą zostać dokładnie oczyszczone i aktywowane plazmą tlenową. Po ich montażu w komorach przepływowych do próbek przygotowywane są małe jednowarstwowe pęcherzyki (SUVs) w celu utworzenia wspartej dwuwarstwy lipidowej (SLB), a wszystkie bufory reakcyjne są filtrowane, aby zredukować rozproszenie tła. SUVs są dodawane w celu utworzenia dwuwarstw lipidowych w komorach przepływowych. Opcjonalnie do SUVs można dodać kationy dwuwartościowe, takie jak jony Ca2+, aby wspomóc rozpad pęcherzyków. Na koniec do komory reakcyjnej wprowadzane są niskie stężenia badanego białka. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
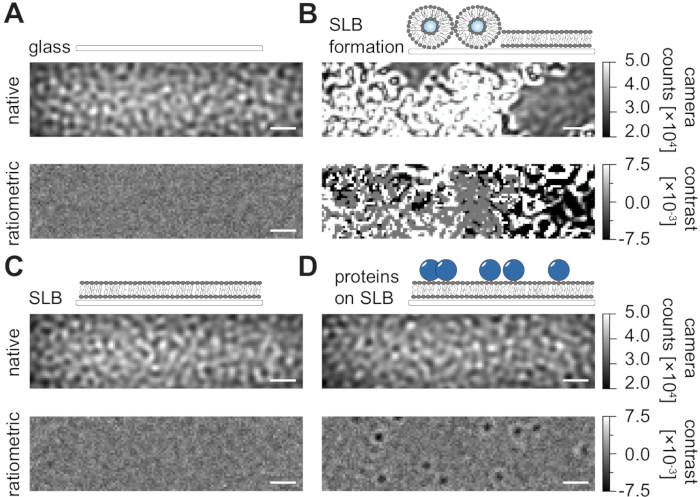
Rysunek 2: Obraz natywny i ratiometryczny przykładowych powierzchni istotnych dla pomiarów MSPT. Reprezentatywne obrazy chropowatości powierzchni szkiełka podstawowego (A), podczas tworzenia wspieranej lipidowej dwuwarstwy (B), z nienaruszoną wspieraną lipidową dwuwarstwą (C) oraz przykładowych białek rekonstytuowanych na SLB (D). Wszystkie cztery przykłady przedstawiono w trybie natywnym, do którego dostęp jest możliwy w trakcie samego pomiaru, oraz jako przetworzone obrazy ratiometryczne po usunięciu tła w oparciu o medianę. Paski skali reprezentują 1 µm. Do analizy danych (patrz dołączony notatnik Jupyter; krok 9) użyto następujących parametrów: rozmiar okna mediany (window_length) = 1001. Aby wyświetlić większą wersję tego rysunku, kliknij tutaj.

Rysunek 3: Schemat krok po kroku etapów wymaganych do zbierania i analizy danych MSPT. Po pozyskaniu danych dla badanej próbki na fotometrze masowym, filmy są przetwarzane w celu usunięcia statycznego tła za pomocą metody poślizgowego mediany dla każdego piksela. Następnie identyfikowane są potencjalne cząstki, które są dopasowywane do funkcji rozproszenia punktu (PSF) przed ich połączeniem w trajektorie cząstek. Aby umożliwić wyznaczenie współczynnika dyfuzji dla każdej cząstki, stosuje się analizę średniego kwadratu przemieszczenia (MSD) lub rozkładu odległości skoku (JDD). Na tym etapie wartości kontrastu mogą zostać przekształcone w masy cząsteczkowe zgodnie z zależnością kontrast-masa wyznaczoną w strategii kalibracji. W ostatnim kroku trajektorie mogą być filtrowane na podstawie ich długości lub gęstości cząstek w błonie i wizualizowane za pomocą dwuwymiarowej estymacji gęstości jądra (2D-KDE). Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
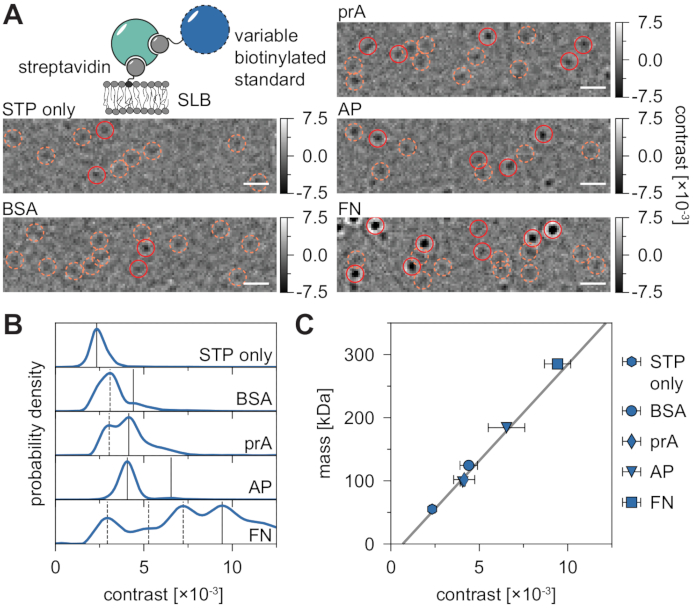
Rycina 4: Kalibracja zależności masy od kontrastu dla pomiarów MSPT. (A) Reprezentatywne klatki racjometryczne uzyskane dla przykładowych kompleksów streptawidyna-białko standardowe dyfundujących na wspieranej dwuwarstwie lipidowej zawierającej niewielki procent lipidów biotynilowanych (stosunek DOPC:DOPG:Biotinyl Cap PE wynoszący 70:29,99:0,01 mol%). Jako modelowe standardy masy cząsteczkowej przedstawiono monowalentną streptawidynę28 (tylko STP) lub diwalentną streptawidynę28 w kompleksie z biotynilowaną albuminą surowicy bydlęcej (BSA), biotynilowanym białkiem A (prA), biotynilowaną fosfatazą alkaliczną (AP) lub biotynilowaną fibronektyną (FN). Potencjalne plamki zaznaczono na pomarańczowo (przerywane okręgi), a pomyślną detekcję cząsteczek zaznaczono na czerwono (pełne okręgi). Paski skali reprezentują 1 µm. (B) Rozkłady gęstości prawdopodobieństwa wartości kontrastu uzyskane dla pięciu modelowych białek standardowych. Wszystkie wyświetlone dane reprezentują połączone rozkłady z trzech niezależnych eksperymentów dla każdego warunku: STP tylko n = 82 719; BSA n = 9 034; prA n = 22 204; AP n = 69 065 oraz FN n = 71 759 trajektorii. W porównaniu z liczbą cząsteczek określonych dla membran z białkami, liczba cząsteczek wykrytych na pustej dwuwarstwie jest pomijalna przy umiarkowanych gęstościach błony (Rycina uzupełniająca 1). Piki kontrastu uwzględnione w kalibracji masy zaznaczono liniami ciągłymi, natomiast linie przerywane reprezentują stany oligomeryczne, które nie były brane pod uwagę. (C) Krzywa kalibracyjna kontrastu do masy wyprowadzona z pików kontrastu w panelu D oraz odpowiadających im mas sekwencyjnych kompleksów. Słupki błędów przedstawiają błąd standardowy położenia pików oszacowany metodą bootstrapingu (100 reprobek po 1 000 trajektorii każda). Do analizy danych (patrz: notatnik Jupyter; krok 9) wykorzystano następujące parametry: medianowa wielkość okna (window_length) = 1 001 klatek, próg detekcji (thresh) = 0,00055, zakres wyszukiwania (dmax) = 4 piksele, pamięć (max_frames_to_vanish) = 0 klatek, minimalna długość trajektorii (minimum_trajectory_length) = 7 klatek (tylko STP), 9 klatek (BSA/FN), 15 klatek (prA), 10 klatek (AP). Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
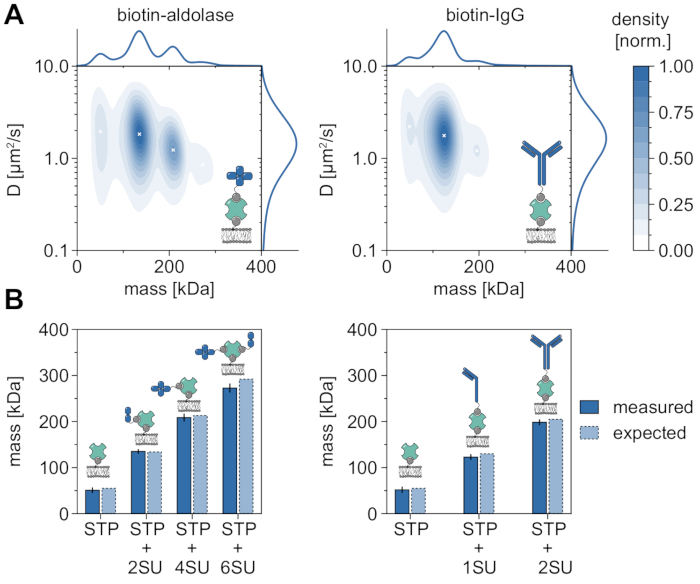
Rysunek 5: Określanie stanów oligomerycznych białek związanych z błoną. (A) Dwuwymiarowe estymacje gęstości jądra dla masy i współczynnika dyfuzji tetrawalentnej streptawidyny w kompleksie z biotynilowaną aldolazą (panel lewy) lub z modyfikowanym biotyną przeciwciałem kozim anty-Rabbit IgG (panel prawy). Rekonstytucja obu kompleksów została przeprowadzona na wspieranej dwuwarstwie lipidowej zawierającej DOPC, DOPG i Biotinyl Cap PE w stosunku odpowiednio 70:29,99:0,01 mol%. Łącznie uwzględniono 116 787 trajektorii z trzech niezależnych powtórzeń dla kompleksu streptawidyna-aldolaza (gęstość cząstek 0,1 µm-2) oraz 348 405 dla kompleksu streptawidyna-IgG (gęstość cząstek 0,1 µm-2). Uwzględniono jedynie cząstki o długości ścieżki wynoszącej co najmniej pięć klatek. Przedstawiono brzegowe rozkłady prawdopodobieństwa dla masy cząsteczkowej (góra) oraz współczynnika dyfuzji (prawa). Czarny znak x w obu panelach oznacza odpowiednie lokalne maksima KDE. (B) Porównanie wyznaczonych mas oligomerów dla kompleksu tetrawalentnej streptawidyny z modyfikowaną biotyną aldolazą (panel lewy) lub biotynilowanym IgG (panel prawy) z masami cząsteczkowymi oczekiwanymi zgodnie z sekwencją. Skrót SU wprowadzono w odniesieniu do podjednostki białka zainteresowania. Słupki błędów przedstawiają standardowy błąd lokalizacji piku szacowany metodą bootstrappingu (100 re-prób po 1 000 trajektorii każda). Do analizy danych (patrz towarzyszący notatnik Jupyter; krok 9) wykorzystano następujące parametry: mediana rozmiaru okna (window_length) = 1 001 klatek, próg detekcji (thresh) = 0,00055, zakres wyszukiwania (dmax) = 4 piksele, pamięć (max_frames_to_vanish) = 0 klatek, minimalna długość trajektorii (minimum_trajectory_length) = 5. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
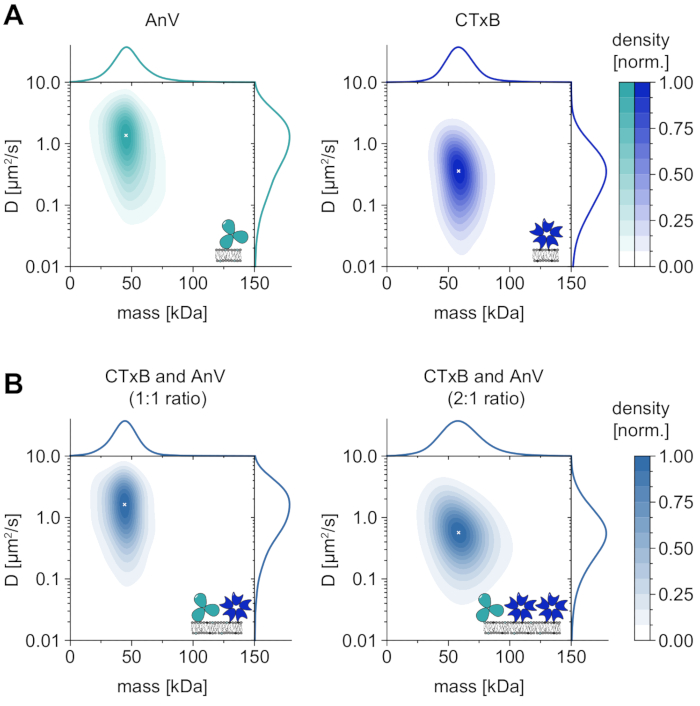
Rysunek 6: Analiza zachowania dyfuzyjnego natywnych białek oddziałujących z błoną: aneksyny V (AnV) i podjednostki B toksyny cholerycznej (CTxB). (A) Dwuwymiarowe szacunki gęstości jądrowej (KDE) masy oraz współczynnika dyfuzji dla aneksyny V (panel lewy) i podjednostki B toksyny cholerycznej (panel prawy). Do rekonstytucji błony dla AnV i CTxB zastosowano odpowiednio składy lipidowe 80:20 mol% DOPC do DOPS oraz 99,99:0,01 mol% DOPC do GM1. Łącznie uwzględniono 206 819 trajektorii z trzech niezależnych powtórzeń dla AnV (gęstość cząstek 0,1 µm-2) oraz 142 895 trajektorii dla CTxB (gęstość cząstek 0,2 µm-2). (B) Dwuwymiarowe szacunki gęstości jądrowej mieszanin CTxB i AnV w stosunku odpowiednio 1:1 (panel lewy) lub 2:1 (panel prawy). Rekonstytucja mieszanin białek została przeprowadzona na wspartej lipidowej dwuwarstwie zawierającej lipidy DOPC, DOPS i GM1 w stosunku 80:19,99:0,01 mol%. Łącznie uwzględniono 42 696 trajektorii z trzech niezależnych powtórzeń dla mieszaniny 1:1 (gęstość cząstek 0,1 µm-2) oraz 264 561 trajektorii dla stosunku 2:1 (gęstość cząstek 0,3 µm-2). Zarówno dla (A), jak i (B), uwzględniono jedynie cząstki o długości ścieżki wynoszącej co najmniej pięć klatek. Przedstawiono brzegowe rozkłady prawdopodobieństwa masy cząsteczkowej (góra) oraz współczynnika dyfuzji (prawa strona). Biały znak x w każdym panelu oznacza odpowiednie globalne maksimum KDE. Do analizy danych (patrz załączony notatnik Jupyter; krok 9) zastosowano następujące parametry: mediana rozmiaru okna (window_length) = 1 001 klatek, próg detekcji (thresh) = 0,00055, zakres wyszukiwania (dmax) = 4 piksele, pamięć (max_frames_to_vanish) = 0 klatek, minimalna długość trajektorii (minimum_trajectory_length) = 5. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
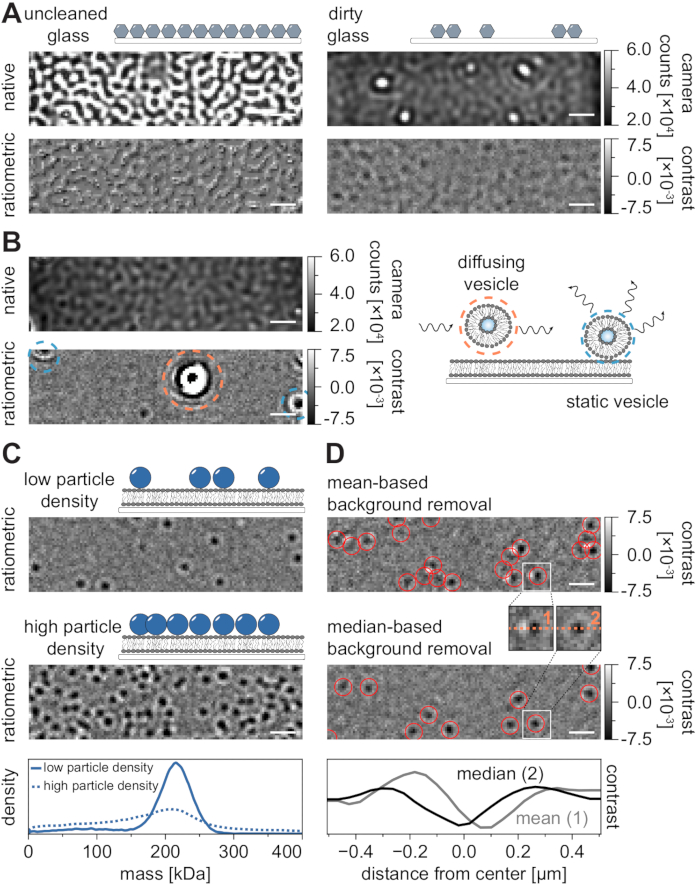
Rycina 7: Potencjalne komplikacje w przebiegu pomiarów MSPT lub podczas analizy danych. (A) Reprezentatywne obrazy chropowatości powierzchni przedstawione zarówno w natywnym, jak i przetworzonym (usuwanie tła w oparciu o medianę) widoku ratiometrycznym nieoczyszczonego szkiełka podstawowego. W obu przypadkach jasne punkty stanowią pozostałości zanieczyszczeń powierzchniowych, które utrudniają pomiary wolne od artefaktów. (B) Przykładowe obrazy pozostałych pęcherzyków w polu widzenia po niewystarczającym płukaniu membrany. Zarówno pęcherzyki statyczne (zaznaczone na niebiesko), jak i dyfundujące (zaznaczone na pomarańczowo) pogorszą jakość pomiaru odpowiednio z powodu pulsacji i drgań lub ich ruchu kierunkowego. (C) Jako technika pojedynczych cząsteczek, MSPT wymaga niskiej gęstości cząsteczek (obraz reprezentatywny, górny panel), aby umożliwić prawidłowe łączenie i wyznaczanie masy każdej cząsteczki. W przypadku wysokiej gęstości cząsteczek na membranie (środkowy panel), dopasowanie cząsteczek jest utrudnione, co wpływa na wyznaczanie masy (patrz dolny panel). (D) Reprezentatywne obrazy ratiometryczne cząsteczek dyfundujących na interfejsie membrany po usuwaniu tła w oparciu o średnią (górny panel) lub medianę (środkowy panel). Dla cząsteczek dyfundujących strategia usuwania tła oparta na średniej generuje zniekształcone obrazy PSF cząsteczki, co widać na małych wstawkach między górnym a środkowym panelem. W przeciwieństwie do tego, niezniekształcone PSF cząsteczek można uzyskać dzięki podejściu opartemu na medianie. Dolny panel: Porównanie profili liniowych przez środek PSF uzyskanych po usuwaniu tła w oparciu o średnią lub medianę. Dla wszystkich obrazów natywnych i ratiometrycznych przedstawionych na tej rycinie, paski skali reprezentują 1 µm. Do analizy danych (patrz towarzyszący notatnik Jupyter; krok 9) użyto następujących parametrów: rozmiar okna mediany (window_length) = 1,001 klatek, próg detekcji (thresh) = 0.00055, zakres wyszukiwania (dmax) = 4 pikseli, pamięć (max_frames_to_vanish) = 0 klatek, minimalna długość trajektorii (minimum_trajectory_length) = 5. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Rycina uzupełniająca 1: Porównanie membran wolnych od białek i zajętych. Reprezentatywne obrazy nienaruszonej wspieranej lipidowej dwuwarstwy przed (A) i po (B) dodaniu oczyszczonej streptawidyny (STP). Potencjalne plamki, które zostały pomyślnie dopasowane do modelu PSF, otoczono czerwonym kolorem. (C) Rozkłady prawdopodobieństwa kontrastu cząsteczek wykrytych na pustej membranie (tło membrany, kolor szary) oraz na dwuwarstwie z dyfundującymi cząsteczkami streptawidyny (kolor niebieski). Oba rozkłady prawdopodobieństwa reprezentują połączone dane z trzech niezależnych eksperymentów o identycznych parametrach akwizycji i analizy filmów. Do analizy danych (patrz towarzyszący notatnik Jupyter; krok 9) zastosowano następujące parametry: mediana wielkości okna (window_length) = 1,001 klatek, próg detekcji (thresh) = 0.00055, zakres poszukiwań (dmax) = 4 pikseli, pamięć (max_frames_to_vanish) = 0 klatek, minimalna długość trajektorii (minimum_trajectory_length) = 7 klatek. Kliknij tutaj, aby pobrać ten plik.
Film uzupełniający 1: Przykładowy film przedstawiający pękanie i fuzję pęcherzyków w homogeniczną membranę, zarejestrowany za pomocą fotometru masowego. Rozmiar okna mediany przetwarzania obrazu (window_length) = 1 001 klatek. Pasek skali: 1 µm. Zakres wartości kamery: czerń = 16 892; biel = 65 408. Kliknij tutaj, aby pobrać ten film.
Film uzupełniający 2: Przykładowe filmy pokazujące dyfuzję kompleksów anneksyny V (góra) i biotynilowanej aldolazy (dół) na dwuwarstwie, uzyskane z pomiarów MSPT. Rozmiar okna mediany przetwarzania obrazu (window_length) = 1 001 klatek. Pasek skali: 1 µm. Zakres kontrastu rozpraszania interferometrycznego: czarny = -0,0075; biały = 0,0075. Kliknij tutaj, aby pobrać ten film.
Dyskusja
Prezentowany protokół rozszerza fotometrię masową21, technikę analizującą masę pojedynczych biomolekuł adsorbujących na szkle, do jeszcze bardziej wszechstronnego narzędzia zdolnego do jednoczesnego pomiaru masy i dyfuzji nieznakowanych biomolekuł oddziałujących z błoną. Rozszerzenie tej analizy osiągnięto poprzez zastosowanie zmodyfikowanej strategii usuwania tła dostosowanej do ruchu bocznego cząsteczek24,25. Ogólnie rzecz biorąc, usuwanie tła ma ogromne znaczenie dla podejść opartych na iSCAT, ponieważ silne rozproszenie chropowatości powierzchni szkła stanowi główną przeszkodę w analizie, a dokładne określenie lokalnego tła każdego piksela jest niezbędne do ilościowego określenia masy i lokalizacji cząstek. Oprócz analizy obrazu dostosowanej do ruchu cząstek, późniejsza detekcja cząstek, łączenie trajektorii i analiza danych uzupełniają nowatorską ekspansję MP w kierunku śledzenia cząstek czułych na masę (MSPT).
Ogólnie rzecz biorąc, dokładnie oczyszczone szkiełka podstawowe i czyste środowisko pracy są kluczowymi wymaganiami dla pomyślnego przeprowadzenia eksperymentów MSPT. Ze względu na brak znakowania makrocząsteczek uzyskany sygnał jest z natury nieselektywny. Czyste próbki, a także właściwe obchodzenie się z próbkami mają zatem kluczowe znaczenie dla zapewnienia, że obserwacje nie zostaną błędnie zinterpretowane. W szczególności, gdy badane są cząsteczki o niskiej masie cząsteczkowej, zatwierdza się pomiary kontrolne błon bezbiałkowych w celu oceny wkładu tła (rysunek uzupełniający 1). Oprócz włączenia pomiarów kontrolnych, zaleca się zatem postępowanie zgodnie z krokami przygotowania przedstawionymi na rysunku 2 dla każdej studzienki przepływowej. W połączeniu te środki bezpieczeństwa zapewnią, że wykryty sygnał pochodzi z biomolekuły będącej przedmiotem zainteresowania, a nie na przykład z zanieczyszczonej komory przepływowej, bufora lub membrany.
Oprócz środków ostrożności dotyczących projektu eksperymentalnego, należy również zachować ostrożność podczas przetwarzania obrazu MSPT. Podczas przetwarzania wideo należy starannie dobrać wartość trzech parametrów, aby zapewnić prawidłowe wyniki: i) długość mediany okna do usunięcia tła, ii) próg wykrywania cząstek oraz iii) maksymalny promień wyszukiwania podczas przypisywania linków. Większe okno środkowe (i) na ogół ułatwia oddzielanie dyfuzyjnych cząstek od nałożonego quasi-stałego tła. Jednak w przypadku zbyt dużych rozmiarów okien dryft próbki w końcu stanie się zauważalny i zmniejszy dokładność oszacowania tła. Optymalne ustawienia w dużym stopniu zależą od właściwości próbki i warunków pomiaru. Niemniej jednak wartość 1 001 może być używana jako solidny punkt wyjścia. Parametr progowy (ii) musi być dostrojony w zależności od najmniejszej masy cząsteczkowej oczekiwanej w próbce. Wartość poniżej 0,0005 nie jest zalecana dla pomiarów wykonanych za pomocą fotometru masowego użytego w tym badaniu. Aby przyspieszyć czas analizy, można wybrać wyższe wartości, jeśli spodziewana jest próbka o dużej masie cząsteczkowej. Promień wyszukiwania w łączeniu trajektorii (iii) określa maksymalną odległość radialną w pikselach, w której przesunięte położenie cząstki będzie wyszukiwane w kolejnych klatkach. Powinien być dostosowany do najszybszej cząstki w próbce, a jeśli jest to preferowane, można zamiast tego użyć adaptacyjnego zakresu wyszukiwania (zobacz dokumentację trackpy) w celu skrócenia czasu obliczeń. Szczególnie w początkowej fazie projektu zalecana jest ponowna analiza filmów o różnych parametrach w celu walidacji uzyskanych wyników.
Ze względu na jednocząsteczkowy charakter MSPT należy unikać pomiaru przy dużej gęstości cząstek membrany, ponieważ mogą one zakłócać dokładny kontrast i określenie masy. Wykazano, że gęstości poniżej jednej cząstki na mikrometr kwadratowy są korzystne dla pomiarów MSPT24. Dodatkową kwestią są oczekiwane współczynniki dyfuzji w próbce. Chociaż ma zastosowanie do szerokiego zakresu współczynników dyfuzji, MSPT ma dolną granicę dostępnych współczynników dyfuzji. Lokalne ograniczenie do obszaru kilku pikseli przez znaczną część okresu mediany okna łączy cząstkę ze statycznym tłem. Dla warunków obrazowania stosowanych w tym protokole nie zaleca się pomiaru współczynników dyfuzji poniżej 0,01μm2/s. Na przykład przy tej prędkości dyfuzji średnie kwadratowe przemieszczenie cząstki w połowie rozmiaru okna mediany wynosi około 4 pikseli, a zatem ma podobny rozmiar jak rozmiar PSF. W związku z tym oszacowanie statycznego tła prawdopodobnie będzie zawierało wkłady sygnału od samej cząstki, co skutkuje pozornie zmniejszonym kontrastem cząstki, aż w końcu zbliży się do poziomu szumu. Jednak współczynniki dyfuzji makrocząsteczek w zakresie od 0,05 do 10 μm2/s mogą być wyraźnie określone.
Aby jeszcze bardziej rozszerzyć zakres zastosowań MSPT, można przewidzieć postęp algorytmu tła opartego na medianie poprzez eliminację pikseli, które są tymczasowo zajęte przez cząstkę, lub poprzez korekcję dryfu próbki, co umożliwia większe rozmiary mediany okien. Oba podejścia złagodziłyby problemy związane z pomiarami przy dużej gęstości cząstek i powolnej dyfuzji. Na horyzoncie pojawiają się ulepszenia w zakresie czułości na mniejszą masę dzięki nowej generacji fotometrów masowych, które mogą zapewnić dostęp do biomolekuł mniejszych niż 50 kDa. W związku z tym przyszłe eksperymenty MSPT będą w stanie badać dynamikę pojedynczych cząsteczek i interakcje związane z błonami dla jeszcze szerszego zakresu mimikry błonowej, takiej jak amortyzowane dwuwarstwy i układy makromolekularne.
Oświadczenia
Autorzy nie pozostają w konflikcie interesów.
Podziękowania
Szczerze doceniamy wsparcie ze strony Philippa Kukury, Gavina Younga i zespołu oprogramowania Refeyn i dziękujemy za ich pomoc, udostępniając fragmenty kodu do analizy obrazu. Dziękujemy Cryo-EM MPIB Core Facility za udostępnienie komercyjnego fotometru masowego Refeyn. F.S. dziękuje za wsparcie i fundusze udzielone przez Jürgena Plitzko i Wolfganga Baumeistera. T.H. i P.S. otrzymali dofinansowanie za pośrednictwem Deutsche Forschungsgemeinschaft (DFG, Niemiecka Fundacja Badawcza) - Project-ID 201269156 - SFB 1032 (A09). Firma N.H. otrzymała wsparcie w postaci dotacji DFG na powrót HU 2462/3-1. P.S. dziękuje za wsparcie za pośrednictwem sieci badawczej MaxSynBio w ramach wspólnej inicjatywy finansowania niemieckiego Federalnego Ministerstwa Edukacji i Badań Naukowych (BMBF) oraz Towarzystwa Maxa Plancka.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Aneksyna V | Sigma Aldrich | #SRP8026 | przykładowe białko oddziałujące z błoną |
| Bio-Rad Protein Assay | Bio-Rad Laboratories Inc. | #5000006 | zestaw testowy Bradforda do oznaczania stężeń białka |
| albumina bydlęca znakowana biotyną | Sigma Aldrich | #A8549 | przykładowe białko, które może być stosowane jako białko standardowe dla |
| podjednostki B toksyny | Sigma Aldrich | #SAE0069 | oddziałujące z błoną |
| , #1.5, 24 x 24 mm | Paul Marienfeld GmbH & Co. KG | #0102062 | |
| szkła nakrywkowe, #1,5, 24 x 60 mm | Paul Marienfeld GmbH & Co. KG | #0102242 | |
| dioleoilo-sn-glycero-3-fosfocholine (DOPC) | Avanti Polar Lipids | #850375 | lipid - w postaci ekstrudowanych małych pęcherzyków jednowarstwowych niezbędnych do wspomaganego tworzenia dwuwarstwy lipidowej |
| dioleoilo-sn-glycero-3-phosphoethanolamine-N-cap biotynyl (18:1 Biotinyl Cap PE | Avanti Polar Lipids | #870273 | lipid - w postaci ekstrudowanych małych pęcherzyków unilamelarnych niezbędnych do wspomaganego tworzenia dwuwarstw lipidowych |
| dioleoilo-sn-glycero-3-fosfogliccerol (DOPG) | Avanti Polar Lipids | #840475 | lipid - w postaci ekstrudowanych małych pęcherzyków jednowarstwowych niezbędnych do wspomaganego tworzenia dwuwarstwy lipidowej |
| dioleoilo-sn-glycero-3-phospho-L-seryna (DOPS) | Avanti Polar Lipids | #840035 | lipid - w postaci ekstrudowanych małych pęcherzyków jednowarstwowych niezbędnych do podparcia tworzenia dwuwarstwowych warstw lipidowych |
| taśma dwustronna tesa | #57912-00000-02 | potrzebna do montażu szklanych komór na próbki | |
| Extruder | Avanti Polar Lipids | #610023 | Wytłaczarka do lipidów umożliwiająca monodyspersyjną dystrybucję pęcherzyków |
| EZ-Link Maleimide-PEG2-Biotin | Thermo Fisher Scientific | #A39261 | Biotyna ze stopioną maileimidem, która może być stosowana do biotynylacji standardowych białek dla MSPT |
| Fibronectin (Biotinylated) | Cytoskeleton Inc. | #FNR03-Przykładowe białko, | które może być używane jako standardowe białko do MSPT |
| Gel Filtration HMW Calibration Kit | Cytiva | #28403842 | standardowych białek, np. aldolazy, która może być biotynylowana i stosowana jako wzorce masy cząsteczkowej dla MSPT |
| GM1 Gangliozyd (mózg, sól sodowa owczy) | Avanti Polar Lipids | #860065 | lipid - w postaci ekstrudowanych małych pęcherzyków jednowarstwowych niezbędnych do wspomaganego tworzenia dwuwarstwowych lipidów |
| Kozie przeciwciało wtórne anty-królicze IgG (H+L), Biotyna | Thermo Fisher Scientific, Waltham, USA) | #31820 | Przykładowe białko podkreślające istnienie różnych stanów białkowych |
| Izopropanol, 99,5%, do spektroskopii | Thermo Fisher Scientific | #10003643 | |
| Olejek | immersyjny o niskiej autofluorescencjiOlympus K.K. | #IMMOIL-F30CC | |
| pET21a-Streptavidin-Alive | Addgene | #20860 | wymagany do ekspresji i oczyszczania dwuwartościowej streptawidyny w połączeniu ze sobą |
| pET21a-Streptawidyna-Dead | Addgene | #20859 | wymagany do ekspresji i oczyszczania dwuwartościowej streptawidyny w połączeniu ze sobą |
| Pierce Alkaline Phosphatase, biotynylowany | Thermo Fisher Scientific | #29339 | przykładowe białko, które może być stosowane jako białko standardowe dla MSPT |
| Pierce Protein A, Biotinylated | Thermo Fisher Scientific | #29989 | przykładowe białko, które może być stosowane jako białko standardowe dla MSPT |
| Refeyn Acquire | Refeyn Ltd. | oprogramowanie sterujące dla Refeyn OneMP | |
| Refeyn One | Refeyn Ltd. | - | Fotometr masowy |
| sterylne filtry strzykawkowe 0,45 i mikro; m membrana octanu celulozy | VWR International | #514-0063 | potrzebna do filtrowania cząstek z buforu będącego przedmiotem zainteresowania |
| czterowartościowa streptawidyna | Thermo Fisher Scientific | #SNN1001 | czterowartościowa streptawidyna umożliwiająca obecność kilku miejsc wiązania biotyny |
| Hydrofilowa membrana Whatman Nuclepore, 0,05 i mikro; m Wielkość porów, 25 mm Okrąg | Cytiva | #110603 | wielkość porów 50 nm jest zalecana do wspomaganego tworzenia dwuwarstw lipidowych w kontekście |
| myjki plazmowej MSPT Zepto model 2 | Diener electronic GmbH | - |
Bibliografia
- Robertson, J. L. The lipid bilayer membrane and its protein constituents. Journal of General Physiology. 150 (11), 1472-1483 (2018).
- Grecco, H. E., Schmick, M., Bastiaens, P. I. H. Signaling from the Living Plasma Membrane. Cell. 144 (6), 897-909 (2011).
- Cho, W., Stahelin, R. V. Membrane-protein interactions in cell signaling and membrane trafficking. Annual Review of Biophysics and Biomolecular Structure. 34, 119-151 (2005).
- Whited, A. M., Johs, A. The interactions of peripheral membrane proteins with biological membranes. Chemistry and Physics of Lipids. 192, 51-59 (2015).
- Gonzalez, L., Scheller, R. H. Regulation of membrane trafficking: Structural insights from a Rab/effector complex. Cell. 96 (6), 755-758 (1999).
- Sezgin, E., Levental, I., Mayor, S., Eggeling, C. The mystery of membrane organization: composition, regulation and roles of lipid rafts. Nature Reviews Molecular Cell Biology. 18 (6), 361-374 (2017).
- Bagheri, Y., Ali, A. A., You, M. Current methods for detecting cell membrane transient interactions. Frontiers in Chemistry. 8, 603259(2020).
- Miller, H., Zhou, Z., Shepherd, J., Wollman, A. J. M., Leake, M. C. Single-molecule techniques in biophysics: A review of the progress in methods and applications. Reports on Progress in Physics. 81 (2), 024601(2018).
- Manzo, C., Garcia-Parajo, M. F. A review of progress in single particle tracking: From methods to biophysical insights. Reports on Progress in Physics. 78 (12), 124601(2015).
- Gelles, J., Schnapp, B. J., Sheetz, M. P. Tracking kinesin-driven movements with nanometre-scale precision. Nature. 331 (6155), 450-453 (1988).
- Funatsu, T., Harada, Y., Tokunaga, M., Saito, K., Yanagida, T. Imaging of single fluorescent molecules and individual ATP turnovers by single myosin molecules in aqueous solution. Nature. 374 (6522), 555-559 (1995).
- Schmidt, T., Schütz, G. J., Baumgartner, W., Gruber, H. J., Schindler, H. Imaging of single molecule diffusion. Proceedings of the National Academy of Sciences of the United States of America. 93 (7), 2926-2929 (1996).
- Taylor, R. W., et al. Interferometric scattering microscopy reveals microsecond nanoscopic protein motion on a live cell membrane. Nature Photonics. 13 (7), 480-487 (2019).
- Kukura, P., et al. High-speed nanoscopic tracking of the position and orientation of a single virus. Nature Methods. 6 (12), 923-927 (2009).
- Jacobsen, V., Stoller, P., Brunner, C., Vogel, V., Sandoghdar, V. Interferometric optical detection and tracking of very small gold nanoparticles at a water-glass interface. Optics Express. 14 (1), 405(2006).
- Ueno, H., et al. Simple dark-field microscopy with nanometer spatial precision and microsecond temporal resolution. Biophysical Journal. 98 (9), 2014-2023 (2010).
- Loose, M., Fischer-Friedrich, E., Herold, C., Kruse, K., Schwille, P. Min protein patterns emerge from rapid rebinding and membrane interaction of MinE. Nature Structural and Molecular Biology. 18 (5), 577-583 (2011).
- Bezeljak, U., Loya, H., Kaczmarek, B., Saunders, T. E., Loose, M. Stochastic activation and bistability in a Rab GTPase regulatory network. Proceedings of the National Academy of Sciences of the United States of America. 117 (12), 6504-6549 (2020).
- Ha, T., Tinnefeld, P. Photophysics of fluorescent probes for single-molecule biophysics and super-resolution imaging. Annual Review of Physical Chemistry. 63 (1), 595-617 (2012).
- Garcia-Parajo, M. F., Segers-Nolten, G. M. J., Veerman, J. A., Greve, J., Van Hulst, N. F. Real-time light-driven dynamics of the fluorescence emission in single green fluorescent protein molecules. Proceedings of the National Academy of Sciences of the United States of America. 97 (13), 7237-7242 (2000).
- Young, G., et al. Quantitative mass imaging of single biological macromolecules. Science. 360 (6387), 423-427 (2018).
- Piliarik, M., Sandoghdar, V. Direct optical sensing of single unlabelled proteins and super-resolution imaging of their binding sites. Nature Communications. 5, 4495(2014).
- Cole, D., Young, G., Weigel, A., Sebesta, A., Kukura, P. Label-free single-molecule imaging with numerical-aperture-shaped interferometric scattering microscopy. ACS Photonics. 4 (2), 211-216 (2017).
- Heermann, T., Steiert, F., Ramm, B., Hundt, N., Schwille, P. Mass-sensitive particle tracking to elucidate the membrane-associated MinDE reaction cycle. Nature Methods. 18 (10), 1239-1246 (2021).
- Foley, E. D. B., Kushwah, M. S., Young, G., Kukura, P. Mass photometry enables label-free tracking and mass measurement of single proteins on lipid bilayers. Nature Methods. 18 (10), 1247-1252 (2021).
- Voss, O. H., Lee, H. N., Tian, L., Krzewski, K., Coligan, J. E. Liposome preparation for the analysis of lipid-receptor interaction and efferocytosis. Current Protocols in Immunology. 120, 1-21 (2018).
- Pincet, F., et al. FRAP to characterize molecular diffusion and interaction in various membrane environments. PLoS ONE. 11 (7), 0158457(2016).
- Howarth, M., et al. A monovalent streptavidin with a single femtomolar biotin binding site. Nature Methods. 3 (4), 267-273 (2006).
- Allan, D., et al. soft-matter/trackpy: Trackpy v.0.5.0. Zenodo. , (2021).
- Weimann, L., et al. A quantitative comparison of single-dye tracking analysis tools using Monte Carlo simulations. PLoS ONE. 8 (5), 64287(2013).
- Michalet, X. Mean square displacement analysis of single-particle trajectories with localization error: Brownian motion in an isotropic medium. Physical Review E - Statistical, Nonlinear, and Soft Matter Physics. 82 (4), 041914(2010).
- Sygusch, J., Beaudry, D., Allaire, M. Molecular architecture of rabbit skeletal muscle aldolase at 2.7-A resolution. Proceedings of the National Academy of Sciences of the United States of America. 84 (22), 7846-7850 (1987).
- Heath, G. R., Scheuring, S. High-speed AFM height spectroscopy reveals µs-dynamics of unlabeled biomolecules. Nature Communications. 9 (1), 4983(2018).
- Day, C. A., Kenworthy, A. K. Mechanisms underlying the confined diffusion of cholera toxin B-subunit in intact cell membranes. PLOS ONE. 7 (4), 34923(2012).
Przedruki i uprawnienia
