Tutaj opisana jest metoda określania powinowactwa (KD) przeciwciał znakowanych radioaktywnie do unieruchomionych antygenów. KD jest stałą dysocjacji równowagi, którą można wyznaczyć na podstawie eksperymentu wiązania nasycenia, mierząc całkowite, specyficzne i niespecyficzne wiązanie przeciwciała znakowanego radioaktywnie w różnych stężeniach z jego antygenem.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Określanie powinowactwa wiązania (KD) przeciwciał znakowanych radioaktywnie do unieruchomionych antygenów
W tym artykule
Podsumowanie
Streszczenie
Określenie powinowactwa wiązania (KD) jest ważnym aspektem charakterystyki przeciwciał znakowanych radioaktywnie (rAb). Zazwyczaj powinowactwo wiązania jest reprezentowane przez stałą dysocjacji równowagi, KD, i można je obliczyć jako stężenie przeciwciała, przy którym połowa miejsc wiązania przeciwciał jest zajęta w stanie równowagi. Metodę tę można uogólnić na dowolne znakowane radioaktywnie przeciwciało lub inne rusztowania białkowe i peptydowe. W przeciwieństwie do metod opartych na komórkach, wybór unieruchomionych antygenów jest szczególnie przydatny do walidacji powinowactwa wiązania po długotrwałym przechowywaniu przeciwciał, rozróżniania powinowactwa wiązania ramion regionu wiązania antygenu fragmentacyjnego (Fab) w bispecyficznych konstruktach przeciwciał oraz określania, czy istnieje zmienność ekspresji antygenu między różnymi liniami komórkowymi. Metoda ta polega na unieruchomieniu określonej ilości antygenu do określonych studzienek na łamliwej 96-dołkowej płytce. Następnie zablokowano niespecyficzne wiązanie we wszystkich studzienkach albuminą surowicy bydlęcej (BSA). Następnie rAb dodano w gradiencie stężeń do wszystkich studzienek. Wybrano zakres stężeń, aby umożliwić rAb osiągnięcie saturacji, tj. stężenia przeciwciała, przy którym wszystkie antygeny są w sposób ciągły związane przez rAb. W wyznaczonych studzienkach bez unieruchomionego antygenu można określić niespecyficzne wiązanie rAb. Odejmując niespecyficzne wiązanie od całkowitego wiązania w studzienkach z unieruchomionym antygenem, można określić specyficzne wiązanie rAb z antygenem. KD rAb obliczono na podstawie otrzymanej krzywej wiązania nasycenia. Na przykład powinowactwo wiązania określono przy użyciu znakowanego radioaktywnie amiwantamabu, bispecyficznego przeciwciała przeciwko receptorowi naskórkowego czynnika wzrostu (EGFR) i cytoplazmatycznym białkom przejścia mezenchymalno-nabłonkowego (cMET).
Wprowadzenie
Przeciwciała znakowane izotopowo (rAb) znajdują szerokie zastosowanie w medycynie. Choć większość z nich jest wykorzystywana w onkologii jako środki obrazujące i terapeutyczne, istnieją również zastosowania obrazowe w przypadku stanów zapalnych związanych z reumatologią, kardiologii oraz neurologii1. Obrazowanie z użyciem rAb wykazuje wysoką czułość w wykrywaniu zmian i ma potencjał wspomagania doboru pacjentów do leczenia2,3,4,5. Są one również stosowane w terapii ze względu na ich specyficzność wobec odpowiednich antygenów. W strategii znanej jako teranostyka to samo rAb jest wykorzystywane zarówno do obrazowania, jak i do leczenia6.
W idealnym przypadku przeciwciało wybrane do znakowania radiacyjnego jest takim, którego wysokie powinowactwo i swoistość wiązania zostały już potwierdzone za pomocą metod bez użycia izotopów promieniotwórczych. Znakowanie radiacyjne przeciwciał można przeprowadzić poprzez bezpośrednią modyfikację chemiczną przeciwciał radionuklidem tworzącym trwałe wiązania kowalencyjne (np. radiojodem) lub pośrednio poprzez konjugację z chelatorami, które następnie koordynują radiometale7,8. Bezpośrednie znakowanie radiacyjne, np. radiojodem, modyfikuje konkretnie reszty tyrozyny i histydyny w przeciwciale. Jeśli reszty te są istotne dla wiązania antygenu, taka radiokonjugacja zmieni powinowactwo wiązania. Z drugiej strony istnieje wiele ugruntowanych protokołów konjugacji i pośredniego znakowania radiacyjnego przeciwciał. Na przykład powszechnym chelatorami używanym do wiązania cyrkonu-89 (89Zr) w obrazowaniu PET przeciwciał jest p-izotiocyjanatobenzylowa desferioksamina (DFO), która jest konjugowana w sposób losowy z resztami lizyny przeciwciała9,10. Jeśli w regionie wiążącym antygen znajdują się reszty lizyny, konjugacja w tych miejscach może sterycznie utrudniać wiązanie antygenu i tym samym upośledzić wiązanie przeciwciało-antygen. Zatem różne metody radiokonjugacji stosowane do pośredniego lub bezpośredniego znakowania radiacyjnego przeciwciał mogą potencjalnie wpływać na immunoreaktywność, definiowaną jako zdolność radiokonjugatu przeciwciała do wiązania się z jego antygenem7,11. Metody konjugacji specyficznej dla konkretnego miejsca mogą ominąć to ograniczenie, jednak techniki te wymagają inżynierii przeciwciał w celu wprowadzenia dodatkowych reszt cysteiny lub specjalistycznej wiedzy w zakresie reakcji enzymatycznych na resztach węglowodanowych12,13,14,15,16. Po oznakowaniu radiacyjnym przeciwciała ważne jest sprawdzenie, czy zachowana została immunoreaktywność, jako element charakterystyki rAb. Jednym ze sposobów pomiaru immunoreaktywności jest oznaczenie powinowactwa wiązania rAb.
Celem niniejszego protokołu jest opisanie procesu określania powinowactwa wiązania rAbs przy użyciu uznanego testu nasycenia radioligandem w celu ilościowego oznaczenia wiązania rAb-antygen. Tendencja wiązania została przedstawiona na Rysunku 1. Ilość związanego antygenu będzie wzrastać wraz z dodawaniem większej ilości rAb do stałej ilości antygenu unieruchomionego. Po nasyceniu wszystkich miejsc wiążących antygen zostanie osiągnięty poziom plateau, a dodawanie kolejnych rAbs nie będzie miało wpływu na ilość związanego antygenu. W tym modelu stała dysocjacji równowagowej (KD) jest stężeniem przeciwciała, które zajmuje połowę receptorów antygenowych17. KD określa, jak silnie przeciwciało wiąże się ze swoim celem, przy czym niższa wartość KD odpowiada wyższemu powinowactwu wiązania. Wcześniej zgłaszano, że idealne rAb powinno mieć KD równe 1 nanomolarowi lub mniej18. Jednakże opracowano nowsze rAbs o KD w niskim zakresie nanomolarnym, które są uważane za odpowiednie do nieinwazyjnych zastosowań obrazowania19,20,21,22. Innym parametrem, który można określić w teście nasycenia radioligandem dla rAbs, jest Bmax, który odpowiada maksymalnej ilości wiązania antygenu. Bmax może być wykorzystany do obliczenia liczby cząsteczek antygenu, jeśli jest to wymagane.

Rysunek 1: Reprezentatywna krzywa wiązania nasycającego. Procent związanego antygenu przedstawiono w funkcji rosnących stężeń przeciwciał dodanych do stałej ilości antygenu. Powiększenia obrazują wiązanie w różnych punktach. Przedstawiono stężenie i wiązanie odpowiadające odpowiednio KD i Bmax. Rysunek został przygotowany przy użyciu BioRender.com. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Ten test jest szczególnie istotny dla znakowanych promieniotwórczo konstrukcji przeciwciał bispecyficznych, aby określić KD dla każdego ramienia fragmentu wiążącego antygen (Fab) przeciwciała bispecyficznego wiążącego się z odpowiednimi antygenami. Protokół ten może być wykorzystany do oddzielnego wyznaczenia KD każdego ramienia Fab na unieruchomionych antygenach, aby niezależnie scharakteryzować, czy powinowactwo wiązania każdego ramienia Fab do jego odpowiedniego antygenu uległo zmianie po radiokonjugacji. Protokół ten został zademonstrowany z użyciem znakowanego promieniotwórczo amivantamabu, przeciwciała bispecyficznego przeciwko receptorowi epidermalnego czynnika wzrostu (EGFR) i białkom mezenchymalno-nabłonkowym przejścia cytoplazmatycznego (cMET)19. Jako przykłady wykorzystano również znakowane promieniotwórczo przeciwciała jednoramienne, w których jedno ramię Fab wiąże się z EGFR (α-EGFR) lub z cMET (α-cMET), a drugie ramię Fab stanowi kontrolę izotypową19. Protokół ten jest również odpowiedni dla każdego przeciwciała znakowanego promieniotwórczo o znanym antygenie, który można unieruchomić. W tym protokole szereg rozcieńczeń rAb dodaje się do stałej ilości unieruchomionego antygenu w wyznaczonych studzienkach specyficznych dla każdego ramienia Fab rAb. rAb dodaje się również do studzienek zablokowanych jedynie albuminą surowiczą bydlęcą (BSA), bez antygenu, w celu określenia wiązania niespecyficznego. Aby wyznaczyć wiązanie specyficzne, od całkowitego wiązania rAb odejmuje się wiązanie niespecyficzne do unieruchomionego antygenu. Otrzymana krzywa wiązania nasycenia jest następnie wykorzystywana do wyznaczenia KD, zgodnie z powyższym opisem.
Jedną z zalet tej metody jest wyższa powtarzalność przy użyciu oczyszczonych antygenów w porównaniu z wykorzystaniem linii komórkowych jako źródła antygenów, biorąc pod uwagę, że poziomy ekspresji antygenów mogą ulegać zmianom podczas hodowli komórkowej, a różne linie komórkowe wykazują zmienny poziom ekspresji antygenów. W przypadku znakowanych izotopowo przeciwciał bispecyficznych linie komórkowe wykazujące ekspresję tylko jednego z antygenów bez drugiego mogą być niedostępne, co sprawiłoby, że charakterystyka powinowactwa wiązania poszczególnych ramion Fab byłaby bardzo trudna. Co istotne, kluczową zaletą metody testu nasycenia radioligandem nad metodami bez znakowania izotopowego jest specyficzna charakterystyka powinowactwa wiązania rAb bez wpływu nie sprzężonej frakcji rAb. Z najlepszej wiedzy autorów, obecnie nie istnieją techniki oczyszczania pozwalające na oddzielenie rAb od jego macierzystego, niesprzężonego przeciwciała. Ze względu na stosunkowo niewielki rozmiar chelatora i radionuklidu, ich wkład w całkowitą masę cząsteczkową rAb jest nieistotny w chromatografii wykluczania SIZE. Zatem produkt uzyskany z dowolnej techniki znakowania izotopowego jest prawie zawsze mieszaniną rAb i jego macierzystego, niesprzężonego przeciwciała. Określanie powinowactwa wiązania przy użyciu testu nasycenia znakowanego izotopowo zapewnia, że testowanym produktem jest wyłącznie rAb.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
UWAGA: Przedstawienie graficzne protokołu znajduje się na Rysunku 2.
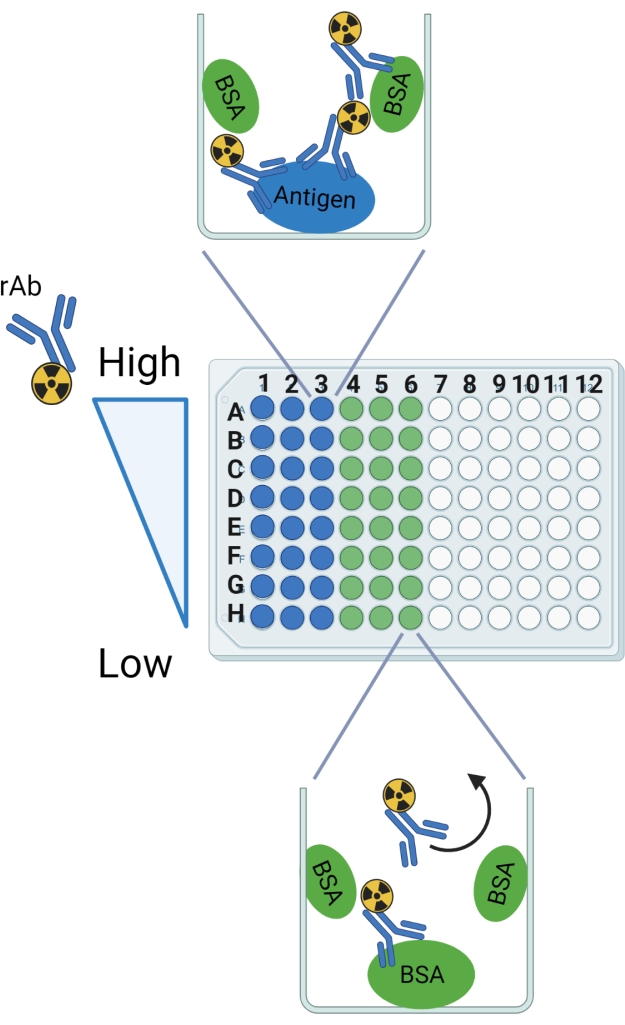
Rysunek 2: Schemat protokołu. Etykiety wierszy i kolumn służą jako wskazówka do przygotowania dzielonej płytki 96-dołkowej. Przewidywane wiązanie pokazano na przykładzie dołka dla antygenu oraz BSA. Zakrzywiona strzałka oznacza rAb, które powinno zostać wypłukane z dołków zawierających wyłącznie BSA. Rysunek został stworzony za pomocą BioRender.com. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
1. Przygotowanie buforu
- Przygotować 50 mL buforu do immobilizacji (roztwór wodny 50 mM Na2CO3; pH = 9,0).
- Odważyć 191 mg NaHCO3 oraz 23,9 mg Na2CO3 na papierze wagowym i przenieść do stożkowej probówki o pojemności 50 mL. Dodać 40 mL wody 18 MΩ i wymieszać na wortexie do rozpuszczenia. W razie potrzeby skorygować pH do 9,0 przed dopełnieniem objętości do 50 mL wodą 18 MΩ.
- Przygotować około 200 mL buforu do płukania (fosforanowy bufor solny (PBS) zawierający 0,05% Tween-20), dodając 200 mL PBS, a następnie 100 µL Tween-20 do butelki o pojemności 250 mL.
- Przygotować 50 mL buforu do wiązania (PBS zawierający 0,05% Tween-20 i 0,1% albuminy surowicy bydlęcej (BSA)).
- Odważyć 50 mg BSA na papierze wagowym i przenieść do stożkowej probówki o pojemności 50 mL. Do probówki dodać 50 mL PBS, a następnie 25 µL Tween-20. Wymieszać delikatnie na wortexie.
- Przygotować 50 mL buforu blokującego (3% BSA w PBS).
- Odważyć 1,5 g BSA na papierze wagowym i przenieść do stożkowej probówki o pojemności 50 mL. Dodać 50 mL PBS i wymieszać delikatnie na wortexie.
UWAGA: Dla uzyskania najlepszych wyników zaleca się przechowywanie wszystkich buforów przez maksymalnie 1 tydzień w temperaturze 4 °C.
- Odważyć 1,5 g BSA na papierze wagowym i przenieść do stożkowej probówki o pojemności 50 mL. Dodać 50 mL PBS i wymieszać delikatnie na wortexie.
2. Immobilizacja antygenu
- Rozcieńczyć antygen w buforze do immobilizacji, aby uzyskać stężenie 5 µg/mL.
- Do dna 24 studni łamanego płytki 96-dołkowej z płaskim dnem, w układzie 8 x 3 (kolumny 1-3 dla rzędów A-H), dodać po 100 µL antygenu na studnię. Przykryć płytkę taśmą uszczelniającą.
UWAGA: Należy upewnić się, że powierzchnia płytki została poddana obróbce w celu maksymalizacji adsorpcji mieszanych domen hydrofobowych i hydrofilowych. Takie wstępnie przygotowane płytki są dostępne w sprzedaży. - Inkubować przez noc w temperaturze 4 °C.
- Następnego dnia przemyć płytkę 3x buforem do mycia.
- Szybko odwrócić płytkę nad zlewem, aby wylać płyn, a następnie ostrożnie uderzyć płytką o stos ręczników papierowych, aby usunąć nadmiar cieczy.
- Za pomocą pipety wielokanałowej dodać po 300 µL buforu do mycia do studni zawierających antygen. Usunąć płyn zgodnie z opisem w punkcie 2.4.1. Powtórzyć etap mycia łącznie trzy razy.
3. Blokowanie miejsc nieswoistych za pomocą BSA
- Za pomocą pipety wielokanałowej nanieść do 24 studni pokrytych antygenem oraz 24 pustych studni płytki 96-dołkowej (kolumny 1-6 dla rzędów A-H) po 300 µL buforu blokującego na każdą studnię.
- Inkubować płytkę przez 1 h w temperaturze pokojowej.
- Przemyć płytkę buforem myjącym (300 µL na studnię) łącznie trzy razy. Szczegółowy opis przemywania płytki znajduje się w kroku 2.4.
4. Rozcieńczenia seryjne i dodanie roztworu rAb
UWAGA: Następujące kroki wiążą się z wykorzystaniem substancji promieniotwórczych. Powinny być one wykonywane wyłącznie przez osoby przeszkolone w zakresie bezpieczeństwa radiologicznego. Badacze powinni stosować podwójne rękawiczki i przeprowadzać czynności przy użyciu odpowiedniego osłonowania.
- Zsyntetyzować badane rAb wybraną metodą. rAb użyte w przykładzie zostały zsyntetyzowane zgodnie z wcześniejszym opisem19.
UWAGA: Niniejszy protokół koncentruje się na charakterystyce rAb po znakowaniu radioizotopowym. - Przygotować 8 trzykrotnych rozcieńczeń seryjnych (przeznaczonych dla rzędów A-H na płytce) rAb w buforze wiążącym.
UWAGA: Stężenia rozcieńczeń seryjnych będą się różnić dla każdego rAb. Szczegóły omówiono w sekcji Dyskusja. Jeśli zmieni się czynnik rozcieńczenia, należy przeliczyć objętość potrzebną dla każdego rozcieńczenia, aby zapewnić wystarczającą ilość roztworu do: 1) wiązania rAb w każdej studzience, 2) przygotowania kolejnego rozcieńczenia oraz 3) pobrania aliquoty roztworu standardowego rAb do licznika gamma w celu pomiaru radioaktywności całkowitej ilości rAb dodanej do każdej studzienki.- Obliczyć objętość roztworu zapasowego rAb potrzebną do przygotowania 1,2 mL roztworu o pierwszej koncentracji (oznaczyć jako A).
- Dodać 800 µL buforu wiążącego do probówek do mikrocentryfugi oznaczonych literami B, C, D, ... do H. Do probówki oznaczonej literą A dodać 1,2 mL buforu wiążącego pomniejszone o objętość obliczoną w kroku 4.2.1.
- Dodać obliczoną w kroku 4.2.1 objętość roztworu zapasowego rAb do probówki A. Delikatnie wymieszać na wortexie, a następnie odwirować w mini mikrocentryfudze, aby zebrać cały płyn na dnie probówki.
- Przenieść 400 µL z probówki A do probówki B. Wymieszać na wortexie, a następnie odwirować w mini mikrocentryfudze. Powtórzyć czynność, przenosząc ciecz z B do C, z C do D, ..., aż z G do H.
- Dodać po 100 µL każdego rozcieńczenia do trzech studziencek unieruchomionych z antygenem oraz do trzech studzieniek zablokowanych samą BSA. Na przykład rozcieńczenie A dodać do studzieniek A1-A3 (antygen) i A4-A6 (BSA).
- Dodać po 100 µL każdego rozcieńczenia do probówek do mikrocentryfugi oznaczonych jako A std - H std. Probówki te zachować jako standardy rAb do analizy w liczniku gamma.
- Inkubować płytkę przez 1 h w temperaturze 37 °C przy delikatnym kołysaniu.
5. Przemywanie płytek i pomiar radioaktywności
- Oznakuj probówki do mikrocentryfugi dla każdej dołki (od A1 do A6, B1 do B6 ... aż do H1-H6). W razie potrzeby użyj dwóch markerów w różnych kolorach, aby oznaczyć kolorystycznie próbki – jeden dla dołek pokrytych antygenem i jeden dla dołek zawierających tylko BSA.
- Odsaj rAb z każdej dołki za pomocą aspiratora próżniowego.
- Za pomocą pipety wielokanałowej dodaj 300 µL buforu płuczącego do każdej dołki. Odsaj bufor płuczący. Powtórz płukanie łącznie pięć razy.
- Przenieś zawartość dołek do odpowiednich probówek do mikrocentryfugi.
- Zmierz radioaktywność w probówkach przy użyciu licznika gamma. Najpierw zmierz probówki z antygenem (H1, H2, H3 do A1, A2, A3), a następnie te zawierające tylko BSA (H4, H5, H6 do A4, A5, A6). Aby zminimalizować zakłócenia, zmierz osobno wzorce dla każdego rozcieńczenia (H std do A std) w innym czasie.
6. Analiza danych
UWAGA: Pliki uzupełniające zawierają odpowiednie arkusze kalkulacyjne i szablony analizy statystycznej do analizy i przedstawiania danych na wykresach.
- W arkuszu kalkulacyjnym oblicz wiązanie całkowite, specyficzne i niespecyficzne dla każdej próbki (patrz szablon arkusza dołączony jako plik uzupełniający).
- Oblicz „Wykres aktywności związanej” jako liczbę impulsów na minutę (CPM) w próbce (uzyskaną z licznika gamma) podzieloną przez CPM odpowiedniego standardu. Oblicz „% związania” jako aktywność związana pomnożoną przez 100.
- Oblicz „Wiązanie całkowite, mol/L”, mnożąc „% związania” przez stężenie (mol/L) dodanego rAb. Oblicz „Wiązanie całkowite, mol”, mnożąc „Wiązanie całkowite, mol/L” przez objętość dodanego rAb w litrach (0,0001 L).
- Oblicz „Wiązanie specyficzne, mol”, odejmując „Wiązanie całkowite, mol” rozcieńczeń BSA od rozcieńczeń antygenu w taki sposób, aby A1 odpowiadało A4, A2 odpowiadało A5, A3 odpowiadało A6, B1 odpowiadało B4 itd.
- Oblicz „Wiązanie niespecyficzne, mol”, odejmując „Wiązanie specyficzne, mol” od „Wiązania całkowitego, mol” dla każdej studzienki.
- W oprogramowaniu do analizy statystycznej i wykreślania danych nanieś stężenie dodanego rAb (nmol/L) na oś X, a wiązanie (mol) na oś Y. Utwórz oddzielne grupy, aby w trzech powtórzeniach wykreślić wiązanie całkowite, specyficzne i niespecyficzne. Przeprowadź analizę dopasowania nieliniowego, wybierając w używanym oprogramowaniu następujące parametry (Tabela materiałów; patrz szablon analizy statystycznej dołączony jako plik uzupełniający).
- Wybierz New Analysis. W sekcji XY analyses wybierz Nonlinear regression (curve fit). Upewnij się, że wszystkie dane są zaznaczone w sekcji Analyze which data sets?, a następnie wybierz Ok.
- W karcie Model, w sekcji Binding - Saturation, wybierz One site - Specific binding. W karcie Confidence zaznacz opcję Identify 'ambiguous' fits. Pozostałe parametry pozostaw domyślne i wybierz Ok.
UWAGA: Pozwoli to obliczyć KD oraz Bmax dla wiązania całkowitego, specyficznego i niespecyficznego. KD wiązania specyficznego to KD w nmol/L dla rAb związanego z antygenem.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Metoda ta służy do obliczania powinowactwa wiązania (KD) dla rAb na podstawie testu wiązania nasycającego, w którym różne stężenia rAb dodawano do stałej ilości unieruchomionego antygenu. Krzywa wiązania powinna wykazywać wzrost logarytmiczny, gdzie początkowo jest stroma, a następnie osiąga plateau w miarę nasycania antygenu. Aby zapewnić dokładność wyznaczonej wartości KD , stężenia rAb muszą być wystarczająco wysokie, aby osiągnąć nasycenie. W tym teście przeciwciała znakowane radiologicznie sprz...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
W ramach opracowywania rAb ważne jest, aby upewnić się, że rAb wiąże się specyficznie ze swoim celem z wysokim powinowactwem wiązania. Określenie powinowactwa wiązania może poinformować, czy na immunoreaktywność rAb wpływa radiokoniugacja za pomocą testu saturacji radioligandów przy użyciu unieruchomionego antygenu. Określenie wiązania rAb z BSA można wykorzystać do ilościowego określenia niespecyficznego wiązania w celu dokładniejszego pomiaru specyficznego wiązania z unieruchomionym antygenem. Metoda ta testuje wiązani...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie pozostają w konflikcie interesów.
Podziękowania
Autorzy dziękują 3D Imaging za produkcję [89Zr]Zr-szczawianów oraz dr Sheri Moores z Janssen Pharmaceuticals za dostarczenie przeciwciał.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Albumina surowicy bydlęcej (BSA) | Sigma-Aldrich | A9647 | |
| Licznik gamma | Hidex | Hidex Automatyczny licznik | |
| Oprogramowanie GraphPad Prism | GraphPad | w wersji 9.2; używane do analiz statystycznych w tym badaniu | |
| Immuno łamliwe płytki 96-dołkowe MaxiSorp | Thermo Scientific | 473768 | |
| Taśma uszczelniająca do mikropłytek | Corning | 4612 | |
| Microsoft Excel | |||
| Sól fizjologiczna buforowana fosforanem Microsoft (PBS) | Gibco | 14190144 | |
| Wodorowęglan sodu | JT Baker | 3506-01 | |
| Węglan sodu | Sigma-Aldrich | S7795 | |
| Tween-20 | Sigma-Aldrich | P7949 |
Bibliografia
- Krecisz, P., Czarnecka, K., Krolicki, L., Mikiciuk-Olasik, E., Szymanski, P. Radiolabeled Peptides and Antibodies in Medicine. Bioconjugate Chemistry. 32 (1), 25-42 (2021).
- Dun, Y., Huang, G., Liu, J., Wei, W. ImmunoPET imaging of hematological malignancies: From preclinical promise to clinical reality. Drug Discovery Today. 27 (4), 1196-1203 (2022).
- Lohrmann, C., et al. Retooling a Blood-Based Biomarker: Phase I assessment of the high-affinity CA19-9 antibody HuMab-5B1 for immuno-pet imaging of pancreatic cancer. Clinical Cancer Research. 25 (23), 7014-7023 (2019).
- Pandit-Taskar, N., et al. A phase I/II study for analytic validation of 89Zr-J591 immunoPET as a molecular imaging agent for metastatic prostate cancer. Clinical Cancer Research. 21 (23), 5277-5285 (2015).
- Rousseau, C., et al. Initial clinical results of a novel immuno-PET theranostic probe in human epidermal growth factor receptor 2-negative breast cancer. Journal of Nuclear Medicine. 61 (8), 1205-1211 (2020).
- Moek, K. L., et al. Theranostics using antibodies and antibody-related therapeutics. Journal of Nuclear Medicine. 58 (2), 83-90 (2017).
- Chomet, M., van Dongen, G., Vugts, D. J. State of the art in radiolabeling of antibodies with common and uncommon radiometals for preclinical and clinical immuno-PET. Bioconjugate Chemistry. 32 (7), 1315-1330 (2021).
- Kumar, K., Ghosh, A. Radiochemistry, production processes, labeling methods, and immunoPET imaging pharmaceuticals of Iodine-124. Molecules. 26 (2), 414(2021).
- Vosjan, M. J., et al. Conjugation and radiolabeling of monoclonal antibodies with zirconium-89 for PET imaging using the bifunctional chelate p-isothiocyanatobenzyl-desferrioxamine. Nature Protocols. 5 (4), 739-743 (2010).
- Zeglis, B. M., Lewis, J. S. The bioconjugation and radiosynthesis of 89Zr-DFO-labeled antibodies. Journal of Visualized Experiments: JoVE. (96), e52521(2015).
- Wei, W., et al. ImmunoPET: concept, design, and applications. Chemical Reviews. 120 (8), 3787-3851 (2020).
- Tavaré, R., et al. An effective immuno-PET imaging method to monitor CD8-dependent responses to immunotherapy. Cancer Research. 76 (1), 73-82 (2016).
- Tavaré, R., et al. Engineered antibody fragments for immuno-PET imaging of endogenous CD8+ T cells in vivo. Proceedings of the National Academy of Sciences. 111 (3), 1108-1113 (2014).
- Zeglis, B. M., et al. Chemoenzymatic strategy for the synthesis of site-specifically labeled immunoconjugates for multimodal PET and optical imaging. Bioconjugate Chemistry. 25 (12), 2123-2128 (2014).
- Zeglis, B. M., et al. Enzyme-mediated methodology for the site-specific radiolabeling of antibodies based on catalyst-free click chemistry. Bioconjugate Chemistry. 24 (6), 1057-1067 (2013).
- Kristensen, L. K., et al. Site-specifically labeled 89Zr-DFO-trastuzumab improves immuno-reactivity and tumor uptake for immuno-PET in a subcutaneous HER2-positive xenograft mouse model. Theranostics. 9 (15), 4409-4420 (2019).
- Maguire, J. J., Kuc, R. E., Davenport, A. P. Radioligand binding assays and their analysis. in Receptor Binding Techniques. Davenport, A. P. , Humana Press. 31-77 (2012).
- Davenport, A. P., Russell, F. D. Radioligand bindsing assays: theory and practice. Current Directions in Radiopharmaceutical Research and Development. Mather, S. J. , Springer. Netherlands. 169-179 (1996).
- Cavaliere, A., et al. Development of [89Zr]ZrDFO-amivantamab bispecific to EGFR and c-MET for PET imaging of triple negative breast cancer. European Journal of Nuclear Medicine and Molecular Imaging. 48 (2), 383-394 (2021).
- Marquez, B. V., et al. Evaluation of (89)Zr-pertuzumab in breast cancer xenografts. Molecular Pharmaceutics. 11 (11), 3988-3995 (2014).
- Marquez-Nostra, B. V., et al. Preclinical PET imaging of glycoprotein non-metastatic melanoma B in triple negative breast cancer: feasibility of an antibody-based companion diagnostic agent. Oncotarget. 8 (61), 104303-104314 (2017).
- Ghai, A., et al. Development of [(89)Zr]DFO-elotuzumab for immunoPET imaging of CS1 in multiple myeloma. European Journal of Nuclear Medicine and Molecular Imaging. 48 (5), 1302-1311 (2021).
- McKnight, B. N., et al. Imaging EGFR and HER3 through (89)Zr-labeled MEHD7945A (Duligotuzumab). Scientific Reports. 8 (1), 1-13 (2018).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
