Obecny protokół opisuje procedurę ręcznego izolowania jelit od dorosłych nicieni Caenorhabditis elegans w celu wprowadzenia ich do genomiki, proteomiki, mikrobiomu lub innych testów.
Artykuł metodologiczny
Ręczna sekcja jelit Caenorhabditis elegans
W tym artykule
Podsumowanie
Streszczenie
Składa się tylko z 20 komórek, jelito Caenorhabditis elegans jest węzłem wielu funkcji podtrzymujących życie, w tym trawienia, metabolizmu, starzenia się, odporności i reakcji środowiskowej. Krytyczne interakcje między gospodarzem C. elegans a jego środowiskiem zbiegają się w jelicie, gdzie koncentruje się mikrobiota jelitowa. Dlatego zdolność do odizolowania tkanki jelitowej od reszty robaka jest niezbędna do oceny procesów specyficznych dla jelit. Protokół ten opisuje metodę ręcznego preparowania jelit dorosłych C. elegans. Zabieg może być wykonywany w szczepach znakowanych fluorescencyjnie dla ułatwienia lub w celach treningowych. Po udoskonaleniu techniki można pobrać jelita z nieoznakowanych robaków o dowolnym genotypie. To podejście oparte na mikrodysekcji pozwala na jednoczesne uchwycenie tkanki jelitowej gospodarza i mikrobioty jelitowej, co jest korzystne w wielu badaniach mikrobiomu. W związku z tym dalsze zastosowania preparatów jelitowych generowanych przez ten protokół mogą obejmować między innymi izolację RNA z komórek jelitowych i izolację DNA z wychwyconej mikrobioty. Ogólnie rzecz biorąc, ręczna sekcja jelit C. elegans stanowi prostą i solidną metodę badania krytycznych aspektów biologii jelit.
Wprowadzenie
Nicień Caenorhabditis elegans, liczący zaledwie 959 komórek i 4-dniowy cykl życia od jaja do jaja, jest idealnym systemem modelowym dla wielu badań genetycznych, genomicznych i rozwojowych1,2. Łatwość przeprowadzania badań genetycznych w przód i w tył, rozpowszechnienie zmodyfikowanych markerów fluorescencyjnych, zdolność do edycji genomu specyficznego dla nukleotydów oraz liczne zasoby obejmujące całą społeczność przyczyniły się do ważnych odkryć i wglądów w system C. elegans. Jednak istotną wadą jest trudność w uzyskaniu czystych populacji komórek, tkanek lub narządów, które są małe, kruche i mogą być ze sobą połączone. Ponieważ czyste populacje komórek są ważne dla testów genomicznych, takich jak sekwencjonowanie RNA, sekwencjonowanie ChIP-i sekwencjonowanie ATAC, pojawiło się kilka podejść do uzyskania czystych preparatów komórek, tkanek i narządów C. elegans. W tym miejscu opisano metodę ręcznego wycinania jelit, w dużych odcinkach, z dorosłych robaków C. elegans. Otrzymane preparaty nadają się do dalszych testów genomicznych (Rysunek 1).
Opisana tutaj metoda precyzyjnego rozbioru tkanek (Rysunek 2) to tylko jedno z podejść. Inne alternatywne techniki - takie jak znakowanie molekularne, dezagregacja robaków i oczyszczanie interesujących typów komórek za pomocą sortowania komórek aktywowanych fluorescencją (FACS) i analizy post hoc - również zostały z powodzeniem wykorzystane do zbadania specyficznych dla tkanek cech biologii molekularnej C. elegans. Przewagą sekcji dłoni nad innymi podejściami jest jednak to, że można ją wykorzystać do jednoczesnego badania cech jelita C. elegans i jego zawartości bakteryjnej3,4,5. Umożliwia to sekwencjonowanie genu 16S rRNA i ułatwia badania mikrobiomu w obrębie układu C. elegans. Ważnym ograniczeniem jest jednak to, że komórki jelitowe nie są indywidualnie izolowane.
Molekularne oznaczanie specyficzne dla typu komórki cząsteczkom tylko w określonej tkance lub komórkach będących przedmiotem zainteresowania. Znaczniki te można następnie wyizolować z całkowitych preparatów robaków. W ten sposób specyficzne tkankowo promotory napędzające oznakowane białko wiążące poliA lub spliced leader umożliwiły profilowanie transkryptomu specyficznego dla tkanki6,7,8,9,10 i 3'UTR mapping11,12. Podobnie, profile czynników transkrypcyjnych specyficznych dla tkanek przeprowadzono przy użyciu ChIP-seq i DamID, w których warianty czynników transkrypcyjnych specyficznych dla promotora zostały dołączone tagami lub fuzjami enzymów13,14.
FACS pozwala na izolowanie interesujących typów komórek od zdysocjowanych robaków na podstawie ich wewnętrznych cech komórkowych i właściwości fluorescencyjnych. To podejście pozwoliło na wygenerowanie specyficznych dla tkanek transkryptomów z różnych narządów8,15,16 i indywidualnych typów komórek neuronalnych8,9,15,16,17,18 i został użyty do utworzenia mapa wyrażeń całego układu nerwowego C. elegans19,20. FACS i jego kuzyn sortowanie jąder aktywowanych fluorescencją (FANS) zostały również wykorzystane do generowania specyficznych dla komórek profili chromatyny21,22.
Na koniec, analiza post hoc może być przeprowadzona w testach rozdzielczości pojedynczej komórki. W tej metodzie wszystkie pojedyncze komórki są badane, typ komórki każdej z nich jest przypisywany na etapie analizy, a typy komórek będące przedmiotem zainteresowania są selektywnie filtrowane w celu dalszych badań. Analiza post-hoc została z powodzeniem wykorzystana do uzyskania transkryptomów rozwijających się komórek o wysokiej rozdzielczości przestrzennej i czasowej w zarodkach C. elegans23,24,25,26,27 i L128 robaki sceniczne. Dostępność chromatyny została również scharakteryzowana przy użyciu ATAC-seq zamiast RNA-seq przy użyciu podobnej strategii29.
Każde podejście ma swoje zalety i ograniczenia. W przypadku jelita C. elegans dezagregacja robaków i izolacja komórek jelitowych metodą FACS jest osiągalna w stadiach zarodkowych i larwalnych30, ale jest trudna u dorosłych. Uważa się, że jest to spowodowane dużymi, endoduplikowanymi i silnie przylegającymi komórkami jelita, co utrudnia ich dysocjację bez uszkodzenia. Opisana tutaj metoda preparacji dłoni pozwala obejść te wyzwania, pozwalając na wyizolowanie dużych odcinków jelita dorosłego robaka. Praktyka ręcznego preparowania gonad z tego samego etapu jest powszechna i prosta. Sekcja jelita jest podobna do sekcji gonad, ale rzadziej wykonywana32. Przedstawiony tutaj protokół jest adaptacją dłuższego, niepublikowanego protokołu opracowanego przez dr Jamesa McGhee i Barb Goszczynski. Ten uproszczony protokół zapożycza techniki izolowania blastomerów z zarodków we wczesnym stadium rozwoju23,33,34,35. Chociaż ręczna sekcja nie jest możliwa do wyizolowania większości typów komórek lub tkanek u C. elegans, idealnie nadaje się do izolowania jelit od dorosłych robaków. Dlatego preparacja ręczna uzupełnia inne sposoby uzyskiwania preparatów komórkowych specyficznych dla jelita.
Protokół
CL2122 zostały wykorzystane w niniejszym badaniu. Robaki uzyskano za pośrednictwem Centrum Genetyki Caenorhabditis (CGC, patrz Tabela Materiałów), finansowanego przez Biuro Programów Infrastruktury Badawczej NIH (P40 OD010440).
1. Hodowla robaków do rozbioru
- Wyhoduj jedną dużą płytkę robaków CL2122 w stadium mieszanym w celu synchronizacji zgodnie ze standardowymi procedurami hodowli (tj. płytki NGM obsiane E. coli OP50)36,37.
UWAGA: Osiągnięcie maksymalnej zdolności składania jaj zajmuje zwykle ~96 godzin.- Przygotowanie zarodków do robaków w ciągu 72-96 godzin. Po przygotowaniu zarodków należy pozostawić zarodki do wylęgu w M9 (patrz Tabela 1) przez 48 godzin. W ten sposób uzyskamy synchroniczną populację robaków stadium L1.
UWAGA: Robaki CL2122 zawierają zintegrowany transgen-GFP (białko zielonej fluorescencji) napędzany przez specyficzny dla jelit promotor mtl-2 (MeTaLlothioneina 2) < klasa sup = "xref">38. Ten promotor jest specyficzny dla cytoplazmy komórek jelitowych i umożliwia wizualizację jelita pod fluorescencyjnym mikroskopem preparacyjnym. Po przeszkoleniu użytkownicy mogą nie uznać wskazówek dotyczących fluorescencji za konieczne.
- Przygotowanie zarodków do robaków w ciągu 72-96 godzin. Po przygotowaniu zarodków należy pozostawić zarodki do wylęgu w M9 (patrz Tabela 1) przez 48 godzin. W ten sposób uzyskamy synchroniczną populację robaków stadium L1.
- Zsynchronizowane ślimaki L1 na co najmniej dwóch małych płytkach. Hoduj robaki na płytkach NGM z wystarczającą ilością pokarmu, aż osiągną stadium dorosłe (identyfikowane przez obecność zarodków zdolnych do składania jaj). Trwa to od 38 do 46 godzin w temperaturze 20 °C.
- Należy upewnić się, że ten sam etap rozwojowy jest zbierany w przypadku powtórzeń i szczepów porównawczych.
UWAGA: Czas wzrostu robaków zależy od szczepu, temperatury, źródła pożywienia i etapu rozwoju targeted39. Można również zastosować inne etapy w pobliżu stadium dorosłego, takie jak etapy L4 i starsze etapy dorosłe. Do planowania eksperymentów z mikrobiomem można wykorzystać różne źródła pokarmu dla bakterii poza tradycyjnym źródłem pożywienia (E. coli OP50), takie jak szczepy CeMbio4 lub patogen będący przedmiotem zainteresowania40.
- Należy upewnić się, że ten sam etap rozwojowy jest zbierany w przypadku powtórzeń i szczepów porównawczych.
2. Przygotowanie roztworów podstawowych i pipet mikrokapilarnych
UWAGA: Tabela 1 zawiera szczegółowe informacje na temat wszystkich i roztworów użytych w niniejszym badaniu.
- Przygotuj 50 ml soli jaj (tzw. buforu jaj) w stożkowej probówce wolnej od nukleaz (patrz tabela materiałów). Po przygotowaniu przechowuj w temperaturze pokojowej.
- Przygotować 10 ml 100 ml roztworu podstawowego lewamizolu w stożkowej probówce wolnej od nukleaz. Po przygotowaniu należy przygotować 500 μl porcji i przechowywać je w temperaturze -20 °C. Podwielokrotności można rozmrozić i przechowywać w temperaturze 4 °C przez 1 tydzień.
- Przygotować 1 ml 20 mg/ml podstawowego acetylowanego roztworu albuminy surowicy bydlęcej (BSA) w probówce do mikrowirówek bez nukleaz. Po przygotowaniu przygotować 50 μl jednorazowych porcji i przechowywać je w temperaturze -20 °C.
UWAGA: Ważne jest, aby używać acetylowanej wersji BSA, ponieważ jest to jedyna forma BSA, która jest wolna od nukleaz. Nieacetylowany BSA może być znaczącym źródłem nukleaz, a tym samym prowadzić do degradacji próbek. - Przygotuj co najmniej pięć pipet mikrokapilarnych 50 μm i 100 μm każda, postępując zgodnie z poniższymi krokami.
- Najpierw wciągnij standardowe szklane kapilary (4 o długości 4 i średnicy zewnętrznej 1,2 mm) w kształt igły iniekcyjnej za pomocą ściągacza igieł (patrz Tabela materiałów) i warunki dla "Adherent Cell, C. elegans, & Drosophila" z Książki kucharskiej pipet Sutter Instruments41 (Warunki: Ciepło = Rampa + 5; Uciąg = 100; Vel. = 75; Opóźnienie = 90; Ciśnienie = 500; Pudełko 2,5 mm x 2,5 mm).
- Następnie wykuj pipety mikrokapilarne do rozmiaru 50 μm (trzy znaczniki wskazywane przez linijkę okularową microforge pod obiektywem M5/0,1) lub 100 μm (pięć znaczników w tych samych warunkach) za pomocą mikrokuźni (patrz tabela materiałów). Rozmiary te reprezentują szacowaną średnicę otworu pipety mikrokapilarnej (Rysunek 3).
- Następnie przymocuj rurkę aspiratora doustnego do pipet mikrokapilarnych.
UWAGA: Pipety z aspiratorem są tradycyjnie sterowane przez pipetowanie przez usta, ale wiele nowoczesnych protokołów bezpieczeństwa nie zezwala na tę metodę. W związku z tym użytkownicy mogą kontrolować aspirację za pomocą rurki aspiratora do ust, ściskając rurkę między palcem a kciukiem. Dodatkowo w systemie rurki aspiratora do ust można zainstalować filtr strzykawkowy w celu zwiększenia bezpieczeństwa.
3. Przygotowanie eksperymentalne
- Przygotować 5 ml buforu do rozwarstwiania w stożkowej probówce wolnej od nukleaz. Przechowywać w temperaturze pokojowej.
- Przygotować 1 ml roboczego acetylowanego roztworu BSA w probówce do mikrowirówek bez nukleaz. Trzymaj na lodzie.
- Przygotować 350 μl działającego roztworu lewamizolu w probówce do mikrowirówek bez nukleaz. Przygotować w trzech egzemplarzach (jedna tubka na około 20 robaków). Trzymaj na lodzie.
- Przygotować bufor chelatacyjny w probówce mikrowirówkowej wolnej od nukleaz (Tabela 1). Zrób w replikacji (jedna tubka na około 10 wypreparowanych robaków). Trzymaj na lodzie. Stosowanie buforu chelatacyjnego podczas ręcznych preparacji poprawia jakość i ilość RNA (Rysunek 4).
- Przygotować jedną probówkę do mikrowirówek na grupę doświadczalną, która zawiera 500 μl odczynnika do izolacji kwasów nukleinowych lub odczynnika do izolacji określonego w zestawie (patrz tabela materiałów) w probówce wolnej od nukleaz. Trzymaj na lodzie. Probówka ta będzie służyła do pobierania końcowych, izolowanych jelit do przechowywania lub późniejszego wykorzystania.
- Przygotować jedną kąpiel M9 i jedną kąpiel buforową do rozwarstwiania. W tym celu należy zaopatrzyć się w dwie sterylne szalki Petriego o średnicy 35 mm. Następnie dodaj 2 ml M9 do jednej szalki i 2 ml buforu do rozwarstwiania do drugiej. Na koniec dodaj 100 μl działającego roztworu BSA do każdej kąpieli. Zamieszaj, aby wymieszać. Dodanie BSA do kąpieli zapobiegnie przywieraniu robaków do plastiku.
- Przygotuj matrycę preparacyjną. Zaopatrzyć się w 2-dołkowe szkiełko wklęsłe (patrz tabela materiałów) i dodać 150 μl działającego roztworu lewamizolu do pierwszego dołka. Następnie dodać 150 μl buforu rozwarstwiającego do drugiego dołka. Na koniec dodaj 20 μl działającego roztworu BSA do każdego dołka. Dodanie BSA do każdej studzienki zapobiegnie przywieraniu robaków do szkiełka.
4. Ręczna sekcja jelita C. elegans
- Za pomocą wykałacza do robaków przenieś 20 dorosłych robaków z płytki NGM do kąpieli M9 (krok 3.6). To zmyje zewnętrzne bakterie z robaków.
- Następnie przenieś wszystkie 20 robaków z kąpieli M9 do kąpieli buforowej do rozwarstwiania (krok 3.6). To dodatkowo zmyje bakterie zewnętrzne i zrównoważy robaki w buforze rozwarstwiającym.
- Następnie przenieść partie robaków (tj. w zestawach po 10 sztuk) z kąpieli buforowej do studzienki zawierającej roztwór lewamizolu (krok 3.7).
UWAGA: Lewaizol tymczasowo sparaliżuje robaki.- Gdy ruchy robaków zwolnią, szybko przenieś je ze studzienki lewamizolu do studzienki zawierającej bufor rozwarstwiający (krok 3.7). Uważaj, aby nie sparaliżować nadmiernie robaków.
UWAGA: Liczba robaków wprowadzanych partiami do roztworu lewamizolu może się różnić w zależności od komfortu użytkownika. Odnosi się to również do liczby robaków pobranych początkowo do kąpieli M9, a następnie przeniesionych do kąpieli buforowej do rozwarstwienia. Dobrą praktyką jest posiadanie dodatkowych robaków dostępnych do sekcji, zwłaszcza podczas treningu, gdy użytkownik uczy się i czuje się komfortowo z protokołem.
- Gdy ruchy robaków zwolnią, szybko przenieś je ze studzienki lewamizolu do studzienki zawierającej bufor rozwarstwiający (krok 3.7). Uważaj, aby nie sparaliżować nadmiernie robaków.
- Następnie pozwól robakom zacząć się nieco poruszać w buforze preparacyjnym przed rozpoczęciem sekcji.
UWAGA: Jelita nie wytłaczają się dobrze z nadmiernie sparaliżowanych robaków (tj. robaków, które w ogóle się nie poruszają). - Gdy będziesz gotowy, wypreparuj robaki pod fluorescencyjnym lunetą preparacyjną za pomocą igły podskórnej (tj. 27 G x 1/2 cala) (patrz Tabela materiałów), wykonując jedno cięcie tuż za gardłem (Rycina 5Aa) lub tuż przed odbytnicą (Rysunek 5Ab). W ten sposób powstaną dwie duże części jelita, przednia środkowa połowa i środkowa tylna połowa. Kontynuuj ten wzorzec dla pozostałych robaków, utrzymując równoważną liczbę odcinków jelita uzyskanych z odcinka przedniego, środkowego i środkowego tylnego, aż do uzyskania pożądanej całkowitej liczby jelit.
UWAGA: Umieszczenie igły podskórnej w pustym cylindrze strzykawki o pojemności 1 ml może pomóc w jej manipulacji podczas sekcji dłoni. W zależności od komfortu i doświadczenia użytkownika, nierzadko wykonuje się cięcie preparacyjne, które nie daje fragmentu jelita. Jednak wraz z praktyką staje się to znacznie mniej powszechne. - Odczekaj około 1 minuty, aż jelita maksymalnie wysuną się z organizmu. Zazwyczaj przybierają one kształt pętli i mogą być przyklejone do części gonad (Rysunek 5A). Czekając, dodaj 50 μl buforu chelatacyjnego do studzienki, aby zmniejszyć degradację RNA (Rysunek 4).
- W oczekiwaniu i w celu dalszego ułatwienia wytłaczania jelita użyj pipety mikrokapilarnej 100 μm dołączonej do aspiratora doustnego i wciągnij i wyjmij jelito/robaka z pipety (Rysunek 5B). Pomoże to również uwolnić jelito od gonady. Należy uważać, aby nie stracić jelita przez przypadkowe zassanie go całkowicie do pipety mikrokapilarnej.
UWAGA: Użytkownik może przełączać się między pipetami mikrokapilarnymi 100 μm i 50 μm, aby uwolnić jelito od reszty ciała i gonad. Otwór pipety mikrokapilarnej o mniejszej średnicy 50 μm może być korzystny w usuwaniu lepkich kawałków z jelita. Pipety z aspiratorem są tradycyjnie kontrolowane przez pipetowanie przez usta, ale wiele nowoczesnych protokołów bezpieczeństwa nie zezwala na tę metodę. W związku z tym użytkownicy mogą kontrolować aspirację za pomocą rurki aspiratora do ust, ściskając rurkę między palcem a kciukiem. Dodatkowo w systemie rurki aspiratora do ust można zainstalować filtr strzykawkowy w celu zwiększenia bezpieczeństwa. - Gdy jelito jest wystarczająco wyciśnięte, użyj igły podskórnej 27 G, aby odciąć je od reszty ciała i wszelkich pozostałych gonad. Wielkość izolowanego odcinka jelita może się znacznie różnić w zależności od doświadczenia kombajnu, jakości cięcia i poziomu paraliżu robaka.
UWAGA: Integralność jelita i fragmentów jelit można łatwo monitorować w całym protokole za pomocą ich fluorescencji GFP. - Teraz użyj pipety mikrokapilarnej, aby zassać odcinek jelita i przenieść go z dołka do probówki mikrowirówki zawierającej odczynnik do izolacji kwasów nukleinowych lub odczynnik izolacyjny określony w zestawie. Trzymaj wyizolowane jelita w odczynniku na lodzie i powtórz dla pozostałych jelit.
UWAGA: Do probówki mikrowirówkowej zawierającej odczynnik do izolacji kwasów nukleinowych lub inny odczynnik izolacyjny określony w zestawie można dodawać wiele jelit przez cały dzień. Trzymaj na lodzie. Jeśli nie można wyizolować wszystkich jelit w ciągu 1 dnia, te, które są już wyizolowane i przechowywane w odczynniku do izolacji kwasów nukleinowych (który zachowuje kwasy nukleinowe) można przechowywać w temperaturze -80°C, aż izolacje zostaną wznowione i/lub będzie można je zakończyć. W tym przypadku próbki są stabilne przez długi czas (tj. od kilku miesięcy do 1 roku) i mogą pozostać do momentu, gdy będą gotowe do wyizolowania kwasów nukleinowych. Jelita można zbierać do wody lub dowolnego buforu do lizy specyficznego dla zestawu. Należy jednak wziąć pod uwagę przy określaniu, jak długo jelita mogą pozostawać w danym buforze na lodzie (lub w innej pożądanej temperaturze) przed przejściem do dalszych zastosowań.
5. Izolacja RNA z wypreparowanych jelit
- Homogenizuj nabyte tkanki przechowywane w odczynniku do izolacji kwasów nukleinowych, wykonując trzy cykle zamrażania/rozmrażania/wirowania. W tym celu należy użyć kąpieli perełkowej w temperaturze 37 °C i ciekłego azotu (lub innych porównywalnych środków).
- Następnie dodać 0,2 objętości odczynnika fenol:chloroform:IAA (patrz tabela materiałów) do próbki i krótko odwirować. Na przykład dla początkowej objętości próbki wynoszącej 500 μl, 0,2 objętości chloroformu wyniesie 100 μl.
- Potrząsaj probówką ręcznie przez 20 s, a następnie inkubuj w temperaturze pokojowej przez 3 minuty.
- Oddzielić fazy próbki przez odwirowanie (10 000 x g, 18 min, 4 °C).
- Usunąć fazę wodną i przenieść do nowej probówki do mikrowirówki bez nukleaz.
UWAGA: Uważaj, aby nie zasysać ani nie przeszkadzać interfejsowi. - Następnie dodać równą objętość 100% etanolu do fazy wodnej i wstrząsać próbką ręcznie przez 20 s.
- Przenieść 700 μl próbki do kolumny wirowej (patrz tabela materiałów). Następnie przyklej RNA do kolumny z odwirowaniem (≥8 000 x g, 30 s, RT [temperatura pokojowa]). Odrzuć przepływ. Powtórzyć te czynności dla każdej dodatkowej pozostałej próbki.
- Dodać 350 μl buforu RW1 (patrz tabela materiałów) do kolumny w celu przepłukania próbki. Następnie odwirować (≥8 000 x g, 30 s, RT) i odrzucić przepływ.
- Przeprowadź trawienie DNA na kolumnie. Dodać 80 μl DNazy I do buforu RDD (patrz tabela materiałów) do kolumny próbki. Następnie inkubować przez 15 minut w temperaturze pokojowej.
- Następnie dodać 350 μl buforu RW1 do kolumny, aby przepłukać próbkę. Odwirować (≥8 000 x g, 30 s, RT) i przenieść kolumnę do nowej probówki zbiorczej. Wyrzuć rurkę przepływową i starą probówkę zbiorczą. To płukanie usuwa DNazę.
- Dodać 500 μl RPE (patrz tabela materiałów) do kolumny z próbką. Następnie odwirować (≥8 000 x g, 30 s, RT) i odrzucić przepływ. Powtórz dla drugiego prania.
- Następnie odwirować przez dodatkowy 1 minutę, aby jeszcze bardziej wysuszyć membranę kolumny (≥8 000 x g, 1 min, RT). Następnie przenieść kolumnę próbki do świeżej probówki do pobierania mikrowirówek bez nukleaz z pokrywką. Wyrzuć rurkę przepływową i starą probówkę zbiorczą.
- Dodać 14 μl wody wolnej od nukleaz bezpośrednio do membrany kolumny z próbką. Następnie inkubować próbkę przez 2 minuty w temperaturze pokojowej. Następnie odwirować (≥8 000 x g, 1 min, RT) w celu elucji RNA.
- Przechowywać próbkę na lodzie. Następnie oceń jakość i ilość RNA próbki przy użyciu dostępnych na rynku zestawów testowych (patrz Tabela materiałów). Po zakończeniu przechowuj próbkę w zamrażarce o temperaturze -80 °C.
UWAGA: RNA jest na ogół stabilny w temperaturze -80 °C przez okres do 1 roku bez degradacji.
Wyniki
Niniejszy protokół został zastosowany do ręcznego wyizolowania dużych fragmentów jelita z dorosłych C. elegans (Rycina 2). Końcowa próbka jelita dla każdej przedstawionej grupy eksperymentalnej składa się z równej ilości fragmentów przednio-środkowych oraz środkowo-tylnych odcinków jelita. W zależności od pytania badawczego, próbka ta może jednak obejmować wyłącznie fragmenty przedniej, środkowej lub tylnej części jelita. Łącznie dla tego protokołu przedstawiono trzy reprezentatywne wyniki. Pierwszy z nich obrazuje pomyślną dyssekcję i izolację jelit (Rycina 6). Drugi opisuje wyniki izolacji RNA z wyizolowanych jelit (Rycina 7). Trzeci przedstawia wyniki monitoringu mikrobiologicznego z wyizolowanych jelit (Rycina 8).
W przypadku pierwszego wyniku, Rysunek 6A przedstawia wygląd wyciśniętego jelita po wykonaniu pierwszego nacięcia w miejscu „a” na Rysunku 5A u dorosłych nicieni CL2122. Ponieważ nicienie CL2122 posiadają specyficzny dla jelita promotor mtl-2 połączony z GFP (mtl-2p::GFP), wyizolowane jelita będą świecić na zielono pod fluorescencyjnym mikroskopem stereoskopowym. Pomyślnie wypreparowany fragment jelita pokazano na Rysunku 6B. Ten odcinek jelita jest wolny od widocznych zanieczyszczeń, takich jak szczątki gonad czy tułowia. W przeciwieństwie do tego, Rysunek 6C przedstawia jelita, które nie zostały pomyślnie wypreparowane, ponieważ gonady i tułów są wciąż widocznie przytwierdzone do segmentu jelita.
W przypadku drugiego wyniku jelita zostały pobrane do odczynnika do izolacji kwasów nukle nowych i przetworzone następnego dnia zgodnie z protokołem ekstrakcji całkowitego RNA dla niskiego wkładu materiału (patrz Tabela materiałów). Końcowa próbka jelit składająca się z 60 przekrojów całkowitych z sekcji przednio-środkowej i środkowo-tylnej pozwala uzyskać około 15 ng wysokiej jakości całkowitego RNA (Ryc. 7A). Taką ilość jelit można łatwo zebrać w ciągu jednego dnia, ale w razie potrzeby proces ten można rozłożyć na kilka dni. Wydajność RNA przy sekcji ręcznej jest wyższa niż w przypadku dezagregacji robaków i izolacji komórek jelitowych za pomocą FACS, ponieważ aby uzyskać porównywalne ilości całkowitego RNA, wymagane są setki tysięcy komórek jelitowych (Ryc. 7B). Co ważne, wydajność RNA uzyskana podczas sekcji ręcznej jest więcej niż wystarczająca jako wkład dla komercyjnych zestawów do bibliotek RNA-seq (np. NEBNext Ultra II oraz NEBNext Single Cell/Low Input), które mogą przyjmować ilość RNA rzędu nawet 2 pg.
W przypadku trzeciego wyniku jelita pobrano do sterylnej wody ddH20 i przetworzono tego samego dnia przy użyciu komercyjnego zestawu do izolacji mikrobiologicznego DNA (patrz Tabela materiałów). Końcowa próbka jelita, składająca się z łącznie 40 przekrojów jelita z sekcji przednio-środkowej i środkowo-tylnej, dostarcza około 0,009 pg całkowitego bakteryjnego DNA przy zastosowaniu pan-bakteryjnego testu detekcyjnego (patrz Tabela materiałów) (Rycina 8). Ilości te są zbyt niskie dla tradycyjnych metod ilościowych i muszą zostać wyznaczone poprzez ekstrapolację z krzywych standardowych qPCR. W idealnym przypadku użytkownicy powinni dążyć do uzyskania końcowej całkowitej ilości jelit >40, ponieważ zwiększa to granicę detekcji oraz próg stosunku sygnału do szumu w odniesieniu do poziomów zanieczyszczeń odczynników.
Podczas planowania eksperymentu zawsze niezbędne jest zgromadzenie odpowiednich próbek kontrolnych. W przypadku eksperymentów z zakresu transcriptomiki odpowiednią kontrolą eksperymentalną mogą być preparaty całych nicieni pobrane w taki sam sposób jak jelita. Podczas DISEKcji i izolacji jelit z C. elegans często zdarza się jednak, że do fragmentów jelit przywierają części tułowia i gonad. Chociaż w idealnym przypadku te zanieczyszczające tkanki powinny zostać usunięte z jelit przed ich przechowywaniem do dalszych analiz, dodatkowe kontrole eksperymentalne mogą obejmować zbieranie pozostałych po DISEKcji jelit fragmentów tułowia nicieni oraz/lub zbieranie wypreparowanych gonad. W przypadku eksperymentów dotyczących mikrobiomu kontrole mogą obejmować również preparaty całych nicieni pobrane w taki sam sposób jak jelita, oprócz konwencjonalnych kontroli pozytywnych (kultura bakteryjna) i negatywnych (woda).
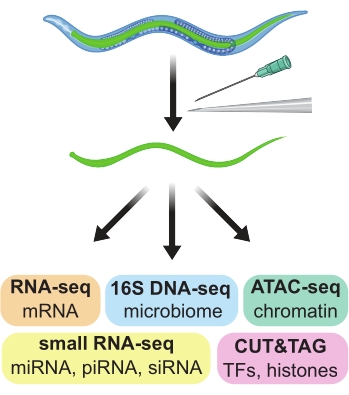
Rysunek 1: Ręczna dyssekcja jelit dorosłych C. elegans wykorzystana do przygotowania preparatów specyficznych dla tkanki do zastosowania w szerokim zakresie późniejszych analiz omicznych. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
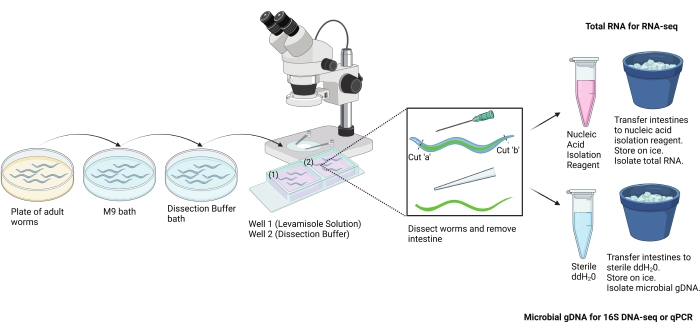
Rysunek 2: Schemat protokołu sekcji ręcznej. Protokół ten został zastosowany do ręcznej izolacji dużych fragmentów jelita z dorosłych C. elegans. Jelita można izolować do różnych dalszych analiz. Przedstawiono tutaj wykorzystanie jelit do izolacji RNA oraz izolacji bakteryjnego DNA. Obraz utworzony za pomocą BioRender.com. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
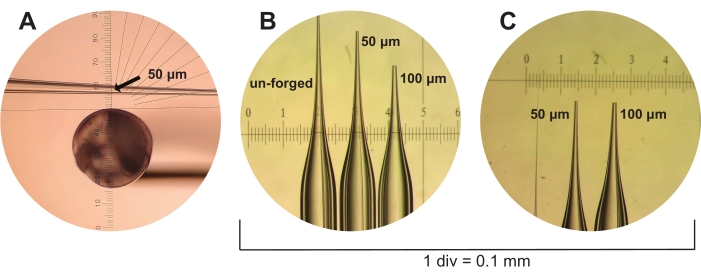
Rysunek 3: Wytwarzanie mikrokapilarnej pipety. (A) Świeżo wyciągnięta, ale nieukształtowana mikrokapilarna pipeta widoczna przez okular mikrokuźni. Do pomiaru mikrokapilarnych pipet o rozmiarze 50 µm wykorzystano skalę okularową; szacunkowa średnica wewnętrzna odpowiada trzem kreskom podziałki (pokazano, wskazano strzałką). (B) Nieukształtowane mikrokapilarne pipety 50 µm i 100 µm widoczne pod stereomikroskopem obok linijki kalibracyjnej z podziałką 1 div = 0,1 mm. (C) Ponownie przedstawione mikrokapilarne pipety 50 µm i 100 µm z punktu (B), lecz z innego punktu widzenia. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
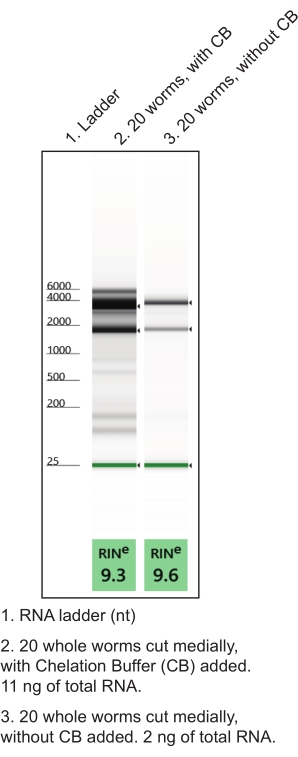
Rycina 4: Zastosowanie buforu chelatującego (CB) podczas preparatyki ręcznej w celu zwiększenia wydajności izolacji RNA. Protokół ekstrakcji całkowitego RNA z niskiej ilości materiału wyjściowego pozwolił na uzyskanie preparatów RNA z wymienionych tkanek. Przedstawiono reprezentatywne wyniki elektroforezy żelowej charakteryzujące jakość (RIN, wskaźnik integralności RNA) i ilość wyizolowanego całkowitego RNA. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 5: Etapy dysekcji ręcznej. (A) Tutaj przedstawiono etapy dysekcji opisane w protokole. W punkcie (1) jelito nicienia jest wizualizowane za pomocą fluorescencji GFP. Główne miejsce nacięcia może być rozmieszczone równomiernie pomiędzy osobnikami, aby zapewnić równy zasięg na całej długości jelita. Alternatywnie można wybrać główne miejsca nacięcia „a” lub „b”, aby uzyskać preparat specyficzny dla fragmentu przedniego-środkowego lub środkowego-tylnego jelita. W punkcie (2) jelito zostało wypchnięte, przyjmując kształt pętli. W punkcie (3) jelito jest najpierw odcinane od ciała nicienia przy jednoczesnej próbie uwolnienia go z resztek ciała i gonady. Następnie jelito jest oddzielane od wszelkich pozostałości ciała lub gonady, których nie można usunąć. W punkcie (4) wyizolowany zostaje oczyszczony fragment jelita, gotowy do przechowywania. (B) Krytycznym krokiem jest usunięcie wszelkich przylegających zanieczyszczeń (np. gonady, resztek ciała) z jelita poprzez przeciąganie go w przód i w tył w mikrokapilarnej pipecie wykonanej na końcu aspiratora do ust. Paski skali = 100 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
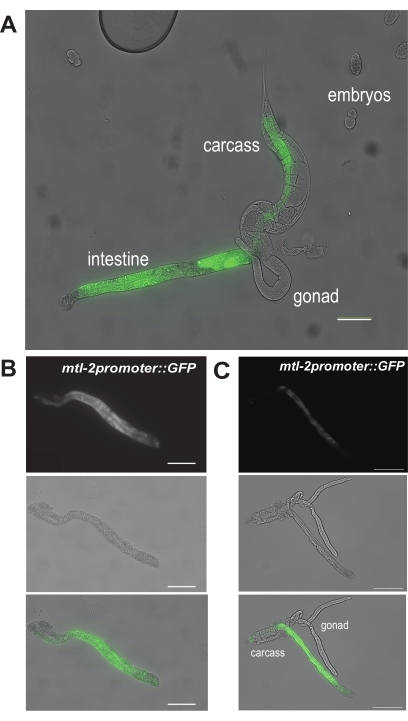
Rysunek 6: Reprezentatywne wyniki etapów sekcji ręcznej. Reprezentatywny obraz przedstawiający (A) wyciśnięcie jelita z nicienia. Są to nicienie o genotypie CL2122, wykazujące ekspresję GFP pod specyficznym dla komórek jelita promotorem mtl-2. Dwa reprezentatywne obrazy przedstawiają (B) oczyszczony i w pełni wyizolowany odcinek jelita oraz (C) wyizolowane jelito z zanieczyszczeniami w postaci tkanek gonady i resztek ciała. Paski skali = 100 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
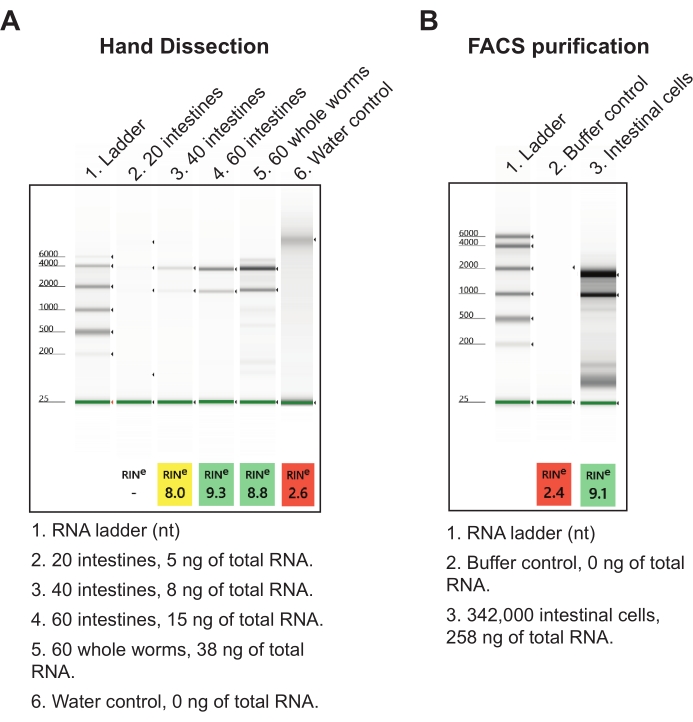
Rycina 7: Reprezentatywne wyniki ekstrakcji całkowitego RNA z izolowanych jelit. (A) Przedstawiono reprezentatywny obraz preparatów RNA rozdzielonych za pomocą elektroforezy w żelu agarozowym, charakteryzujący jakość (RIN, RNA integrity Number) oraz ilość wyizolowanego całkowitego RNA. (B) Dla porównania przedstawiono reprezentatywny żel całkowitego RNA wyizolowanego z komórek jelitowych pobranych od nicieni w stadium L1 poprzez sortowanie komórek aktywowane fluorescencją (FACS). Przy założeniu 20 komórek na jelito można wywnioskować, że metoda sekcji ręcznej pozwala uzyskać więcej całkowitego RNA z jednego jelita niż oczyszczanie komórek jelitowych metodą FACS. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
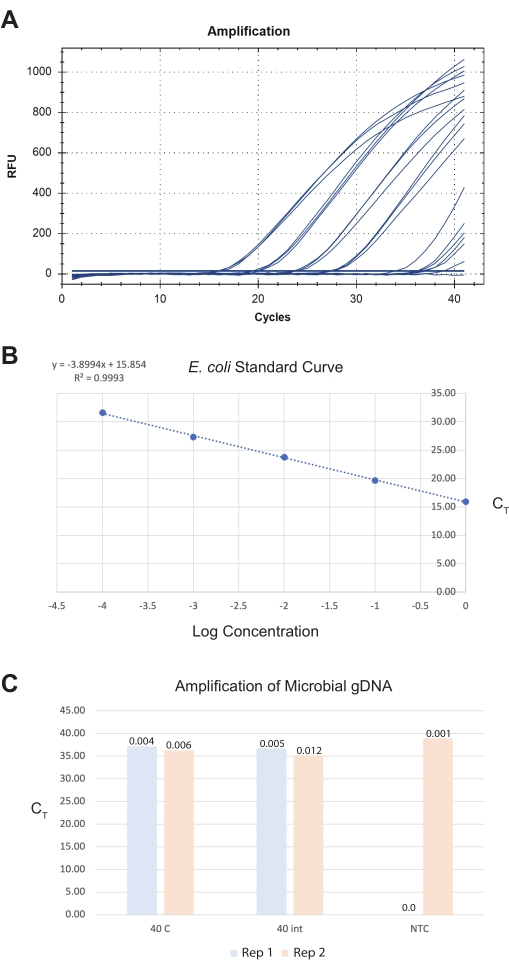
Rysunek 8: Reprezentatywne wyniki ekstrakcji całkowitego DNA mikrobiologicznego z izolowanych jelit. Komercyjny zestaw do izolacji DNA mikrobiologicznego posłużył do przygotowania preparatów DNA z jelit, całych nicieni oraz kontroli. Do ilościowego oznaczenia liczby bakterii w próbkach zastosowano panbakteryjny test genowy. Przedstawiono reprezentacyjne obrazy (A) uzyskanych krzywych amplifikacji qPCR, (B) krzywej standardowej E. coli OP50 użytej do kwantyfikacji próbek oraz (C) samych próbek. Na wykresie (B) logarytmiczne wartości stężeń początkowych standardów E. coli naniesiono w funkcji ich wartości CT. W przypadku (C), dwa powtórzenia (reps) po 40 całych nicieni zostały przecięte wzdłuż osi środkowej, a 40 izolowanych fragmentów jelit poddano izolacji mikrobiologicznego gDNA. Przedstawiono również kontrolę bez matrycy (NTC) z serii qPCR. Oś Y reprezentuje wartości CT próbek. Ilość DNA określona za pomocą PCR przedstawiono jako całkowite wartości w pikogramach (pg) nad słupkami próbek. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Tabela 1: Składy buforów i roztworów użytych w niniejszym badaniu. Kliknij tutaj, aby pobrać tę tabelę.
Dyskusja
W tym artykule opisano krok po kroku protokół ręcznego preparowania jelit od dorosłych C. elegans, generując czyste preparaty do dalszych testów. Kluczowe kroki w tym protokole obejmują (1) upewnienie się, że nie dochodzi do nadmiernego paraliżu robaków, (2) wykonywanie dokładnych cięć preparacyjnych, (3) wykuwanie mikropipet o odpowiedniej wielkości do preparacji oraz (4) zapewnienie szybkiej regeneracji zdrowych jelit podczas końcowych zbiorów. Z tych powodów należy zachować ostrożność podczas wystawiania robaków na działanie roztworu lewamizolu, a igły podskórne muszą być często odświeżane, aby zapewnić maksymalną ostrość. Obchodzenie się z jelitem za pomocą pipety mikrokapilarnej i aspiratora doustnego to kolejny krok, który wymaga praktyki. Prawidłowo wykute mikropipety o odpowiednim rozmiarze mają również znaczący wpływ na izolację dużych odcinków jelita podczas sekcji, a także zmniejszają ryzyko utraty jelit w mikropipecie. Użytkownicy nowego protokołu często tracą jelita na wewnętrznej krawędzi pipety mikrokapilarnej, zanim będą mogły zostać wyrzucone do odczynnika izolacyjnego. Problem ten można rozwiązać dzięki praktyce i odpowiednio kutym pipetom mikrokapilarnym.
Opisany w niniejszym dokumencie protokół został opracowany do stosowania u dorosłych robaków. Wstępne badania potwierdzają, że protokół ten jest również skuteczny w stosowaniu u robaków L4 i robaków u osób starszych. Jednak skuteczność tego protokołu nie została jeszcze oceniona u robaków we wczesnym stadium larwalnym. Ograniczeniem tego podejścia jest niewielka ilość materiału, który otrzymuje. Chociaż ilości są wystarczające do sekwencjonowania RNA i PCR, mogą nie być odpowiednie dla innych testów. W związku z tym użytkownicy muszą określić, czy za pomocą tego protokołu można zebrać minimalne wymagane dane wejściowe do testu.
Nasze laboratorium rutynowo wykorzystuje FACS do oczyszczania komórek jelitowych po izolacji30, metody analizy post-hoc do identyfikacji komórek jelitowych oraz tę metodę preparacji ręcznej 30,42. Ręczna sekcja ma tę zaletę, że można ją stosować u dorosłych robaków, gdy dezagregacja robaków i izolacja komórek są mniej skuteczne. Co więcej, wydajność i jakość całkowitego RNA wyekstrahowanego z preparatów do preparacji ręcznej jest wysoka, prawdopodobnie dlatego, że tkanki są szybko wyrywane z robaków, a następnie szybko deponowane w odczynniku izolującym kwas nukleinowy, zmniejszając degradację RNA. Kolejną zaletą metody preparacji dłoni jest to, że jest tania, łatwa do nauczenia i nie wymaga specjalistycznego sprzętu. Wreszcie, podejście to pozwala na zbieranie i izolację bakterii jelitowych z jelit robaków, umożliwiając dalsze badania mikrobiomu.
Opisany tutaj protokół preparacji dłoni służący do izolowania jelit od dorosłego C. elegans stanowi potężne narzędzie do badania różnych aspektów biologii C. elegans . Na przykład, dzięki czystemu przygotowaniu jelit, naukowcy mogą zbadać związek między odpornością, starzeniem się, metabolizmem i mikrobiomem.
Oświadczenia
Autorzy deklarują brak konfliktu interesów.
Podziękowania
Jesteśmy wdzięczni pionierskiej pracy Jamesa McGhee i Barb Goszczyńskiego, którzy początkowo opracowali metodę sekcji jelita, z której ten protokół jest zaadaptowany. Nasza praca jest wspierana przez nagrodę MIRA (R35) nadzorowaną przez National Institute of General Medical Sciences (National Institutes of Health, R35GM124877 do EON) oraz nagrodę NSF-CAREER Award nadzorowaną przez NSF MCB Div Of Molecular and Cellular Bioscience (Nagroda #2143849 dla EON).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Acetylowana albumina surowicy bydlęcej (BSA) | VWR | 97061-420 | Wolny od nukleaz szczep robaka BSA |
| CL2122 | CGC (Caenorhabditis Genetics Center) | CL2122 | dvIs15 [(pPD30.38) unc-54(wektor) + (pCL26) mtl-2::GFP]. Szczep kontrolny dla CL2120. Fenotyp najwyraźniej WT. |
| Dwuwodny chlorek wapnia | Fisher | C79 | potrzebny do produkcji soli jajecznych |
| 50 ml probówek wirówkowych, luzem | Olympus Plastics | 28-108 | Stożkowa rurka bez nukleaz potrzebna do sporządzania roztworu. |
| Probówki wirówkowe 15 ml, luzem | Olympus Plastics | 28-103 | Stożkowa probówka wolna od nukleaz potrzebna do sporządzania roztworu. |
| Szkiełko wklęsłe (2-dołkowe) | Mikroskopia elektronowa Nauki | 71878-08 | 12-pk 2-dołkowych szkiełek wklęsłych Kwas |
| glikolu etylenowego-bis(2-amino-etyloeter)-N,N,N',N'-tetraoctowego (EGTA) | Millipore Sigma | E3889 | potrzebny do wytwarzania buforu chelatacyjnego |
| Fluorescencyjny mikroskop preparacyjny | Leica | M205 FCA | Jest to opcjonalny element wyposażenia, który może być używany z fluorescencyjnymi szczepami C. elegans, aby pomóc użytkownikom w prowadzeniu podczas sekcji ręcznych |
| Kwas N-(2-hydroksyetylo)piperazyno-N′-(2-etanosulfonowy), kwas 4-(2-hydroksyetylo)piperazyno-1-etanosulfonowy (HEPES) | Millipore Sigma | H4034 | potrzebny do wytwarzania buforu preparacyjnego |
| Taśma ekranowa RNA o wysokiej czułości | Agilent | 5067-5579 | do oceny całkowitej jakości RNA i ilość |
| Drabinka do taśmy RNA o wysokiej czułości | Agilent | 5067-5581 | do oceny całkowitej jakości i ilości RNA |
| Bufor do próbek RNA ScreenTape o wysokiej czułości | Agilent | 5067-5580 | do oceny całkowitej jakości i ilości RNA |
| HostZERO Microbial DNA Kit | Zymo Research | D4310 | Izolacja DNA drobnoustrojów z jelit / robaków |
| Igła podskórna (27G x 1/2") | BD 305109 naukowy | potrzebny do ręcznego preparowania jelit | |
| Lewamizol (znany również jako (-)-Chlorowodorek tetramizolu) | Millipore Sigma | L9756 | stosowany do tymczasowego paraliżu robaków przed ręcznym rozwarstwieniem jelit. |
| Jednorazowa strzykawka Luer-Lok ogólnego użytku (1 ml) | BD Scientific | 309628 | opcjonalna. Może być używany do mocowania igły podskórnej, co pozwala na łatwiejszą manipulację igłą podczas sekcji. Wyjąć tłok. |
| Chlorek magnezu sześciowodny | Fisher | M33 | potrzebny do produkcji soli jaj |
| Siarczan magnezu Hpetahydrat | Sigma-Aldrich | 230391-500G | potrzebny do produkcji buforu M9 |
| MF-900 Microforge | Narishige | MF-900 | Służy do kucia pipet mikrokapilarnych. Dostępne za pośrednictwem Tritech Research. |
| Mikroprobówki 1,7 ml, przezroczyste | Olympus Plastics | 22-282 | Probówka do mikrofuge bez nukleaz potrzebna do sporządzania roztworu i przechowywania próbek. |
| Rurka aspiratora do ust | Millipore Sigma | A5177 | Rurka aspiratora do ust jest potrzebna w połączeniu z pipetą mikrokapilarną, aby umożliwić aspirację wypreparowanych jelit. |
| Test 16S Pan-Bacterial Control TaqMan | Test Thermo Fisher | A50137 | ID testu: Ba04930791_s1. Test stosowany do wykrywania drobnoustrojów jelitowych za pomocą qPCR. |
| P-1000 Ściągacz do mikropipet | Sutter Instruments | Model P-1000 | Służy do wyciągania pipet mikrokapilarnych przed kuciem. |
| Szalka Petriego (35 x 10 mm) | Genesee Scientific - Olympus Plastics | 32-103 | Służy do produkcji kąpieli M9 i kąpieli buforowej Disseciton do mycia robaków przed preparacją. |
| Fenol: Chloroform: IAA | Ambion | AM9730 | Stosowany do izolacji całkowitego RNA |
| Chlorek potasu | Millipore Sigma | 529552 | potrzebny do wytwarzania soli jaj |
| Fosforan potasu Monobasic | Sigma-Aldrich | P0662-500G | potrzebny do wytwarzania buforu M9 |
| Fluorometr Qubit 3 | Invitrogen | Q33216 | Dołączony do zestawu do oznaczania kubitowego RNA HS. Może być używany do ilościowego oznaczania RNA przed uruchomieniem próbki na taśmie Agilent ScreenTape. |
| Zestaw testowy Qubit RNA HS | Invitrogen | Q32852 | Może być używany do ilościowego oznaczania RNA przed uruchomieniem próbki na taśmie Agilent ScreenTape. |
| Inhibitor rybonukleazy RNazyny | Promega | N2111 | Hamowanie szerokiego spektrum powszechnych eukariotycznych rnaz |
| Zestaw DNazy wolnych od RNaz | Qiagen | 79254 | stosowany do trawienia DNA na kolumnie podczas protokołu izolacji RNA. |
| RNeasy Micro Kit | Qiagen | 74004 | Służy do izolacji całkowitego RNA z jelit robaków / robaków |
| Standardowe szklane kapilary | World Precision Instruments | 1B100F-4 | 4 cale OD 1,2 mm standardowe kapilary ze szkła borokrzemianowego używane do produkcji pipet mikrokapilarnych do rozwarstwiania |
| Chlorek sodu | Fisher | S271 | potrzebny do produkcji soli jaj |
| Fosforan sodu dwuzasadowy siedmiowodny | Fisher Scientific | S373-500 | potrzebny do produkcji buforowego |
| filtra strzykawkowego M9 (0,2 mikrometra SCFA) | Thermo Fisher | 72302520 | Opcjonalnie do użytku z rurką aspiratora doustnego podczas pipetowania doustnego. |
| 4150 TapeStation System | Agilent | G2992AA | Towarzyszy odczynnikom RNA ScreenTape do oceny jakości i ilości RNA |
| TaqPath BactoPure Microbial Detection Master Mix | Applied Biosystems | A52699 | master mix używany do qPCR |
| TRIzol Reagent | Thermo Fisher Scientific | 15596026 | Izolacja i konserwacja kwasów nukleinowych. QIAzol (Qiagen; 79306) można zastąpić, jeśli jest to preferowane. |
| Pick | NA | NA | Wykonany we własnym zakresie z pipety Pasteura i drutu platynowego. Zobacz wormbook, aby uzyskać szczegółowe informacje. |
Bibliografia
- Riddel, D. L., Blumenthal, T., Meyer, B. J., Priess, J. C. elegans II. , Cold Spring Harbor Laboratory Press. Cold Spring Harbor, NY. (1997).
- Corsi, A. K., Wightman, B., Chalfie, M. A transparent window into biology: A primer on Caenorhabditis elegans. Genetics. 200 (2), 387-407 (2015).
- Zhang, F., et al. Natural genetic variation drives microbiome selection in the Caenorhabditis elegans gut. Current Biology. 31 (12), 2603-2618 (2021).
- Dirksen, P., et al. CeMbio - The Caenorhabditis elegans microbiome resource. G3: Genes, Genomes, Genetics. 10 (9), 3025-3039 (2020).
- Zhang, F., et al. Caenorhabditis elegans as a model for microbiome research. Frontiers in Microbiology. 8, 485(2017).
- Roy, P. J., Stuart, J. M., Lund, J., Kim, S. K. Chromosomal clustering of muscle-expressed genes in Caenorhabditis elegans. Nature. 418 (6901), 975-979 (2002).
- Pauli, F., Liu, Y., Kim, Y. A., Chen, P. -J., Kim, S. K. Chromosomal clustering and GATA transcriptional regulation of intestine-expressed genes in C. elegans. Development. 133 (2), 287-295 (2005).
- Spencer, W. C., et al. A spatial and temporal map of C. elegans gene expression. Genome Research. 21 (2), 325-341 (2011).
- Spencer, W. C., et al. Isolation of specific neurons from C. elegans larvae for gene expression profiling. PLoS One. 9 (11), 112102(2014).
- Ma, X., et al. Analysis of C. elegans muscle transcriptome using trans-splicing-based RNA tagging (SRT). Nucleic Acids Research. 44 (21), 156(2016).
- Blazie, S. M., et al. Comparative RNA-Seq analysis reveals pervasive tissue-specific alternative polyadenylation in Caenorhabditis elegans intestine and muscles. BMC Biology. 13 (1), 4(2015).
- Blazie, S. M., et al. Alternative polyadenylation directs tissue-specific miRNA targeting in Caenorhabditis elegans somatic tissues. Genetics. 206 (2), 757-774 (2017).
- Gómez-Saldivar, G., et al. et al.Tissue-specific transcription footprinting using RNA PoI DamID (RAPID) in Caenorhabditis elegans. Genetics. 216 (4), 931-945 (2020).
- Katsanos, D., Barkoulas, M. Targeted DamID in C. elegans reveals a direct role for LIN-22 and NHR-25 in antagonizing the epidermal stem cell fate. Science Advances. 8 (5), 3141(2022).
- Kaletsky, R., et al. The C. elegans adult neuronal IIS/FOXO transcriptome reveals adult phenotype regulators. Nature. 529 (7584), 92-96 (2015).
- Kaletsky, R., et al. Transcriptome analysis of adult Caenorhabditis elegans cells reveals tissue-specific gene and isoform expression. PLoS Genetics. 14 (8), 1007559(2018).
- Mathies, L. D., et al. mRNA profiling reveals significant transcriptional differences between a multipotent progenitor and its differentiated sister. BMC Genomics. 20 (1), 427(2019).
- Liang, X., Calovich-Benne, C., Norris, A. Sensory neuron transcriptomes reveal complex neuron-specific function and regulation of mec-2/ Stomatin splicing. Nucleic Acids Research. 50 (5), 2401-2416 (2021).
- Glenwinkel, L., et al. In silico analysis of the transcriptional regulatory logic of neuronal identity specification throughout the C. elegans nervous system. eLife. 10, 64906(2021).
- Taylor, S. R., et al. Molecular topography of an entire nervous system. Cell. 184 (16), 4329-4347 (2021).
- Charest, J., et al. Combinatorial action of temporally segregated transcription factors. Developmental Cell. 55 (4), 483-499 (2020).
- Steiner, F. A., Talbert, P. B., Kasinathan, S., Deal, R. B., Henikoff, S. Cell-type-specific nuclei purification from whole animals for genome-wide expression and chromatin profiling. Genome Research. 22 (4), 766-777 (2012).
- Tintori, S. C., Nishimura, E. O., Golden, P., Lieb, J. D., Goldstein, B. A transcriptional lineage of the early C. embryo. Developmental Cell. 38 (4), 430-444 (2016).
- Hashimshony, T., Wagner, F., Sher, N., Yanai, I. CEL-Seq: Single-cell RNA-Seq by multiplexed linear amplification. Cell Reports. 2 (3), 666-673 (2012).
- Hashimshony, T., Feder, M., Levin, M., Hall, B. K., Yanai, I. Spatiotemporal transcriptomics reveals the evolutionary history of the endoderm germ layer. Nature. 519 (7542), 219-222 (2015).
- Packer, J. S., et al. A lineage-resolved molecular atlas of C. elegans embryogenesis at single-cell resolution. Science. 365 (6459), 1971(2019).
- Warner, A. D., Gevirtzman, L., Hillier, L. W., Ewing, B., Waterston, R. H. The C. elegans embryonic transcriptome with tissue, time, and alternative splicing resolution. Genome Research. 29 (6), 1036-1045 (2019).
- Cao, J., et al. Comprehensive single-cell transcriptional profiling of a multicellular organism. Science. 357 (6352), 661-667 (2017).
- Durham, T. J., et al. Comprehensive characterization of tissue-specific chromatin accessibility in L2 Caenorhabditis elegans nematodes. Genome Research. 31 (10), 1952-1969 (2021).
- King, D. C., et al. The transcription factor ELT-2 positively and negatively impacts direct target genes to modulate the Caenorhabditis elegans intestinal transcriptome. bioRxiv. , (2021).
- Kocsisova, Z., Mohammad, A., Kornfeld, K., Schedl, T. Cell cycle analysis in the C. elegans germline with the thymidine analog EdU. Journal of Visualized Experiments. (140), e58339(2018).
- Han, S., et al. Mono-unsaturated fatty acids link H3K4me3 modifiers to C. elegans lifespan. Nature. 544 (7649), 185-190 (2017).
- Edgar, L. G., Wolf, N., Wood, W. B. Early transcription in Caenorhabditis elegans embryos. Development. 120 (2), 443-451 (1994).
- Edgar, L. G., Goldstein, B. Culture and manipulation of embryonic cells. Methods in Cell Biology. 107, 151-175 (2012).
- Nishimura, E. O., Zhang, J. C., Werts, A. D., Goldstein, B., Lieb, J. D. Asymmetric transcript discovery by RNA-seq in C. elegans blastomeres identifies neg-1, a gene important for anterior morphogenesis. PLoS Genetics. 11 (4), 1005117(2015).
- Stiernagle, T. Maintenance of C. elegans. WormBook. , 1-11 (2006).
- Porta-de-la-Riva, M., Fontrodona, L., Villanueva, A., Cerón, J. Basic Caenorhabditis elegans methods: Synchronization and observation. Journal of Visualized Experiments. (64), e4019(2012).
- Fay, D. S., Fluet, A., Johnson, C. J., Link, C. D. In vivo aggregation of β-amyloid peptide variants. Journal of Neurochemistry. 71 (4), 1616-1625 (1998).
- Altun, Z. F., Hall, D. H. WormAtas Hermaphrodite Handbook – Introduction to C. elegans Anatomy. WormAtlas. , (2006).
- Tan, M. -W., Mahajan-Miklos, S., Ausubel, F. M. Killing of Caenorhabditis elegans by Pseudomonas aeruginosa used to model mammalian bacterial pathogenesis. Proceedings of the National Academy of Sciences of the United States of America. 96 (2), 715-720 (1999).
- Oesterle, A. Pipette Cookbook 2018: P-97 & P-1000 Micropipette Pullers. Sutter Instrument Company. , Novato, CA. https://www.sutter.com/PDFs/pipette_cookbook.pdf (2018).
- Dineen, A., Nishimura, E. O., Goszczynski, B., Rothman, J. H., McGhee, J. D. Quantitating transcription factor redundancy: The relative roles of the ELT-2 and ELT-7 GATA factors in the C. elegans endoderm. Developmental Biology. 435 (2), 150-161 (2018).
Przedruki i uprawnienia
