Tutaj prezentujemy protokół izolacji mysich mezenchymów jelitowych, w tym telocytów. Mogą one być wykorzystywane do kilku zastosowań, takich jak współhodowla z organoidami pochodzącymi od myszy lub ludzi, w celu wsparcia wzrostu i lepszego odzwierciedlenia sytuacji w oryginalnej tkance.
Artykuł metodologiczny
Izolacja mysiej mezenchymy jelitowej skutkująca wysoką wydajnością telocytów
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Mysie jelito cienkie, czyli mezenchyma jelita grubego, jest wysoce heterogeniczna, zawiera różne typy komórek, w tym śródbłonek krwi i limfy, nerwy, fibroblasty, miofibroblasty, komórki mięśni gładkich, komórki odpornościowe i niedawno zidentyfikowany typ komórek, telocyty. Telocyty to unikalne komórki mezenchymalne o długich procesach cytoplazmatycznych, osiągające odległość od dziesiątek do setek mikronów od ciała komórki. Telocyty stały się ostatnio ważnym składnikiem niszy jelitowych komórek macierzystych, dostarczającym białek Wnt, które są niezbędne do proliferacji komórek macierzystych i progenitorowych.
Chociaż dostępne są protokoły dotyczące izolowania mezenchymy z jelita myszy, nie jest jasne, czy te procedury pozwalają na efektywną izolację telocytów. Skuteczne izolowanie telocytów wymaga specjalnych dostosowań protokołu, które pozwoliłyby na dysocjację silnego kontaktu komórka-komórka między telocytami a sąsiednimi komórkami bez wpływu na ich żywotność. W tym przypadku dostępne protokoły izolacji mezenchymów jelitowych zostały dostosowane, aby wspierać pomyślną izolację i hodowlę mezenchymów zawierających stosunkowo wysoką wydajność żywotnych telocytów jednokomórkowych.
Uzyskana zawiesina jednokomórkowa może być analizowana za pomocą kilku technik, takich jak barwienie immunologiczne, sortowanie komórek, obrazowanie i eksperymenty mRNA. Protokół ten daje mezenchymę o wystarczająco konserwatywnych właściwościach antygenowych i funkcjonalnych telocytów i może być stosowany do wielu zastosowań. Na przykład mogą być używane do kohodowli z organoidami pochodzącymi od myszy lub ludzi, aby wspierać wzrost organoidów bez suplementacji czynnikiem wzrostu, aby lepiej odzwierciedlić sytuację w oryginalnej tkance.
Wprowadzenie
Zarówno jelito cienkie, jak i okrężnica są tkankami wysoce regeneracyjnymi ze względu na obecność komórek macierzystych, które namnażają się i napędzają regenerację1. Mezenchyma otaczająca nabłonek zapewnia wsparcie strukturalne i funkcjonalne poprzez wydzielanie białek macierzy zewnątrzkomórkowej i cząsteczek sygnałowych2, które modulują odpowiedź komórek nabłonkowych. Telocyty to duże komórki mezenchymalne, opisywane do tej pory głównie przez mikroskopię elektronową jako komórki z długimi procesami cytoplazmatycznymi zwanymi telopodami, które nakładają się na siebie, tworząc sieć labiryntową3,4,5,6,7. Ostatnio telocyty jelitowe wykazujące ekspresję czynnika transkrypcyjnego FOXL1 stały się ważnym składnikiem niszy komórek macierzystych dostarczającym białka Wnt, które są kluczowe dla funkcji komórek macierzystych i progenitorowych. Telocyty jelitowe wyrażają wysoki poziom kluczowych białek szlaku sygnałowego, takich jak Wnt, Bmp, Tgfb i Shh, a także wielu czynników wzrostu8.
Biorąc pod uwagę, że telocyty są kluczowym składnikiem niszy komórek macierzystych in vivo, opracowanie protokołów do ich izolacji i hodowli ex vivo pozwoli na ich wykorzystanie jako źródła molekuł sygnałowych i czynników wzrostu, aby wspierać wzrost i różnicowanie ex vivo. Korzystając z dobrze ugruntowanych protokołów, krypty nabłonka okrężnicy lub jelita grubego mogą być izolowane i tworzyć struktury 3D znane jako organoidy9,10,11. Trójwymiarowe organoidy stanowią potężne narzędzie do badania zarówno fizjologii, jak i patologii nabłonka jelitowego ex vivo. W systemie ex vivo organoidy opierają się na egzogennej suplementacji czynników zapewniających przetrwanie i wzrost10. Wyizolowana mezenchyma może być hodowana zarówno z organoidami pochodzącymi od myszy, jak i ludzi i stosowana jako źródło czynników wzrostu, zamiast suplementacji egzogennej, aby lepiej odzwierciedlić sytuację w oryginalnej tkance. Badanie telocytów ex vivo ma wiele zalet w bardziej szczegółowym badaniu normalnych lub patologicznych zachowań komórkowych, mechanizmów homeostazy tkanek i interakcji komórka-komórka.
Chociaż dostępne są protokoły opisujące, jak izolować mezenchymę z jelita myszy, nie jest jasne, czy te procedury prowadzą do efektywnej izolacji telocytów. Skuteczna izolacja telocytów wymaga specjalnych korekt protokołu, które pozwoliłyby na dysocjację silnego kontaktu komórka-komórka między telocytami a sąsiednimi komórkami, bez wpływu na ich żywotność. Aby przezwyciężyć te ograniczenia, w artykule przedstawiono zmodyfikowany protokół, który konsekwentnie daje wysoce żywotną, jednokomórkową zawiesinę zawierającą stosunkowo dużą ilość telocytów o wystarczająco konserwatywnych właściwościach antygenowych i funkcjonalnych. Te telocyty mogą być wykorzystywane do kilku zastosowań, w tym do wspólnej hodowli z organoidami pochodzącymi od myszy lub ludzi, w celu wspierania wzrostu bez suplementacji czynnikiem wzrostu. To z kolei lepiej oddaje sytuację w tkance pierwotnej.
Użyliśmy mysiego modelu FOXL1-Cre: Rosa-mTmG8, w którym telocyty są znakowane związaną z błoną wersją zielonego białka fluorescencyjnego (GFP) na zielono, co pozwala badaczowi śledzić telocyty w całości; wszystkie inne komórki mezenchymalne są oznaczone na czerwono związanym z błoną tdTomato. Obecny protokół został zmodyfikowany z protokołu izolującego mezenchymę jelitową < sup class="xref">12 w celu poprawy wydajności i żywotności telocytów.
Protokół
Wszystkie opisane poniżej procedury zostały zatwierdzone przez Instytucjonalną Komisję ds. Opieki i Korzystania ze Zwierząt (IACUC) na Uniwersytecie Hebrajskim w Jerozolimie.
1. Przygotowanie odczynników i buforów
- Podgrzej łaźnię wodną do 37 °C.
- Przygotować wszystkie roztwory w Tabela 1.
2. Izolacja mezenchymy jelita
- Uśmierć mysz poprzez inhalację CO2, a następnie niezwłocznie wykonaj zwichnięcie szyi.
- Ułóż mysz na plecach i spryskaj brzuch 70% EtOH. Odchyl skórę brzucha i wykonaj nacięcie wzdłuż linii środkowej, aby odsłonić jamę otrzewną (patrz Rycina 1 I,II).
- Zlokalizuj żołądek, odetnij go od przełyku i powoli wyciągnij jelito z jamy otrzewnej. Za pomocą pęsety usuń nadmiar tłuszczu i tkanki łącznej. Wycinij jelito cienkie od dwunastnicy do około 0,5 cm od kątnicy (Rycina 1 III,IV).
- Przemyj jelito w czystym naczyniu Petri zawierającym zimny, sterylny PBS. Za pomocą nożyczek z kulistym końcem rozetnij rurkę jelitową wzdłużnie i wypłucz zawartość kałową (Rycina 1 V). Przenieś jelito do nowego naczynia z新鮮nym, zimnym PBS i przemyj ponownie.
- Podziel jelito cienkie na segmenty o długości 1 cm i przenieś je do stożkowatej probówki 15 mL wypełnionej 8 mL PBS. Wstrząsaj probówką ręcznie z częstotliwością jeden lub dwa cykle/s przez 1 min.
- Przenieś segmenty pęsetą do stożkowatej probówki 50 mL wypełnionej 20 mL świeżo przygotowanego roztworu A (patrz Tabela 1). Umieść probówki w inkubatorze z wytrząsarką orbitalną w temperaturze 37 °C przez 20 min. Po inkubacji energicznie wstrząsaj probówką ręcznie z częstotliwością cztery lub pięć cykli/s przez 1 min, aby zdysocjować nabłonek.
- Powtórz krok 2.6 raz.
- Przenieś segmenty do nowej probówki 50 mL wypełnionej 10 mL sterylnego PBS i odwracaj probówkę z częstotliwością jeden lub dwa cykle/s przez 1 min.
- Przenieś segmenty do nowej probówki 15 mL wypełnionej 10 mL sterylnego PBS i delikatnie przechylaj ją w górę i w dół z częstotliwością jeden lub dwa cykle/s przez 2 min.
- W komorze z laminarnym przepływem powietrza ułóż segmenty pęsetą na sterylnej chusteczce laboratoryjnej, aby je osuszyć. Po wysuszeniu podziel segmenty na mniejsze kawałki o długości 0,5 cm.
- Przenieś małe segmenty pęsetą do płytki 6-dołkowej wypełnionej 4 mL podgrzanego roztworu trawiennego na każdą dołkę. Inkubuj w 37 °C przez 50 min. Co 20 min delikatnie wstrząsaj płytką ręcznie.
- Przenieś segmenty za pomocą pipety Pasteura do stożkowatej probówki 15 mL wypełnionej 4 mL DMEM. Wstrząsaj probówkę ręcznie z częstotliwością cztery lub pięć cykli/s przez 1 min, aby uzyskać zawiesinę pojedynczych komórek.
- Przefiltruj zawiesinę przez sitko 100 µm do stożkowatej probówki 50 mL. Odwiruj filtrat przy 700 × g przez 5 min w temperaturze 4 °C.
- Odsuń supernatant poprzez aspirację i resuspenduj osad komórkowy w 5 mL 2% FBS/PBS. Odwiruj zawiesinę przy 700 × g przez 5 min w temperaturze 4 °C.
- Odsuń supernatant poprzez aspirację, resuspenduj osad komórkowy w 12 mL pożywki hodowlanej i zasiać po 1 mL na dołkę w dwóch płytkach 6-dołkowych. Następnego dnia przemyj i odaspiruj obumarłe komórki, a zużytą pożywkę zastąp świeżą.
UWAGA: W celu optymalnego utrzymania hodowli zaleca się wymianę pożywki co 2 dni. W zależności od szczepu myszy, tła genetycznego i wieku, potrzeba od 4 dni do 2 tygodni, aby mezenchyma była gotowa do eksperymentów z kokulturą. Do dalszych eksperymentów z kokulturą mezenchyma powinna osiągnąć pełną konfluencję, wykazując płaską i w pełni rozciągniętą morfologię komórkową, jak pokazano na Rycina 2. Generalnie komórki o morfologii okrągłej nie są żywotne ani funkcjonalne.
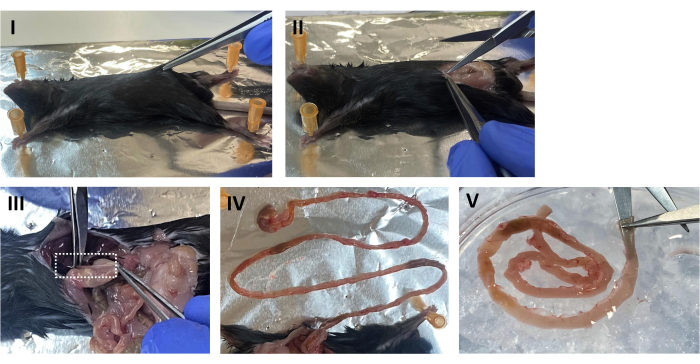
Rysunek 1: Sekcja myszy. (I) Umieścić mysz w pozycji na plecach i spryskać brzuch 70% EtOH. Unieść skórę brzucha. (II) Otworzyć jamę otrzewną wzdłuż linii środkowej. (III) Delikatnie odciągając żołądek, przeciąć przełyk. (IV) Ścisnąć żołądek i powoli wyciągnąć jelito. (V) Wprowadzić końcówkę nożyczek z tępym czubkiem do światła jelita i otworzyć rurkę jelitową wzdłużnie. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
3. Resuspensja mezenchymy do pasażowania lub współhodowli
- Resuspender mezonchim w 2 mL 0,25% trypsyny-0,5 mM EDTA na studnię w płytce 6-dołkowej. Inkubować przez 5 min w 37 °C. Po inkubacji, jeśli część komórek nie zaczęła już odrywać się od powierzchni, inkubować przez dodatkowe 2 min.
- Za pomocą skrobaka do komórek delikatnie zebrać materiał z powierzchni studni. Przenieść zawiesinę komórkową do probówki stożkowej 15 mL. Dodać 2 mL DMEM-F12 na studnię i delikatnie wymieszać zawiesinę za pomocą pipety.
UWAGA: Ważne jest, aby nie napełniać probówki powyżej 50% jej objętości. Zaleca się zatem stosowanie probówki stożkowej 15 mL wypełnionej 8 mL zawiesiny dla każdych dwóch studni. - Policzyć komórki.
UWAGA: W pełni konfluencyjna studnia dostarcza od 2 × 10⁶ do 2,5 × 10⁶ komórek. - Rozcieńczyć zawiesinę komórkową, aby uzyskać gęstość wysiewu wynoszącą 3-5 × 10⁵ komórek/mL. Centryfugować przez 5 min przy 500 × g w 4 °C i usunąć supernatant poprzez ostrożne odessanie.
UWAGA: Ważne jest usunięcie jak największej ilości cieczy. - Resuspender osad komórkowy w uprzednio ogrzanym medium hodowlanym i wysiać na płytki.
4. Analiza cytometryczna dla oczyszczania telocytów
- Przygotować osad komórek mezenchymalnych (krok 2.14). Resuspender osad komórkowy w 1 mL buforu FACS i przefiltrować przez sito 40 µm.
- Inkubować zawiesinę komórkową z przeciwciałami koniugowanymi z allofikocyjaniną (APC): CD326 (1:100), CD45 (1:400) oraz CD31 (1:250) w 400 µL buforu FACS przez 15 min w temperaturze pokojowej, aby wykluczyć odpowiednio komórki nabłonkowe, odpornościowe i śródbłonkowe z sortowania.
- Przemyć komórki, dodając 1 mL buforu FACS, i odwirować przy 700 × g przez 5 min w temperaturze 4 °C. Resuspender w 400 µL buforu FACS i dodać 4',6-diamidyno-2-fenyloindol (DAPI, 5 mg/mL, 1:1 000) do analizy cytometrii przepływowej. Wyznaczyć bramkę dla pojedynczych komórek na podstawie wysokości SSC względem powierzchni SSC. Wyznaczyć bramkę dla żywych komórek DAPI- i wykluczyć komórki CD45+/CD31+/CD326+, aby posortować telocyty GFP+, jak pokazano na Rysunku 3.
Wyniki
Powyższy protokół izolacji mezenchymy jelitowej został zmodyfikowany na podstawie procedur opisanych zarówno przez Wu i wsp.12, jak i Shoshkes-Carmel i wsp.8. Protokół opisany przez Wu i wsp. dotyczy okrężnicy, natomiast protokół Shoshkes-Carmel i wsp. odnosi się do jelita cienkiego, w związku z czym warunki trawienia różnią się w zakresie kombinacji enzymów, stężeń roboczych oraz czasu inkubacji pomiędzy tymi dwiema procedurami. Przedstawiony tutaj protokół został z powodzeniem zastosowany do izolacji i hodowli mezenchymalnych komórek jelita, w tym telocytów. W skrócie, wycięto jelito cienkie od dwunastnicy do kątnicy, wykorzystując model mysi FOXL1-Cre: Rosa-mTmG8, w którym telocyty były znakowane GFP błonowym (zielony), podczas gdy pozostałe komórki mezenchymalne były znakowane tdTomato błonowym (czerwony). Tkankę poddano dysocjacji za pomocą enzymów trawiących, a mezenchymę wysiano na płytkę 6-dołkową. Po dysocjacji telocyty tracą swoje charakterystyki komórkowe, wykazując okrągłą morfologię komórki (Rycina 2A), co odzwierciedla niedoszacowanie liczby komórek GFP+ w 1. dniu w porównaniu z dniami następnymi (Rycina 2F). Po kilku dniach telocyty wykazują morfologię małych, rozciągniętych komórek z krótkimi wypustkami komórkowymi (Rycina 2B,C). Jednak po 7–10 dniach od wysiania telocyty odzyskują swoje charakterystyki komórkowe, wykazując morfologię dużych, rozciągniętych komórek z długimi wypustkami cytoplazmatycznymi (Rycina 2D,E), i są gotowe do wykorzystania w kokulturze z organoidami oraz do wspierania ich wzrostu.
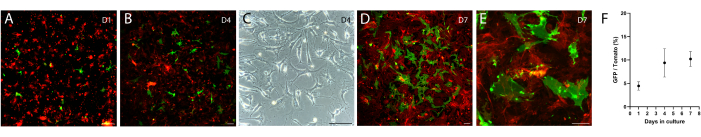
Rysunek 2: Hodowla mezenchymy wyizolowanej z jelita myszy FOXL1Cre: Rosa-mTmG. Telocyty FOXL1+ są znakowane GFP, natomiast pozostałe komórki mezenchymalne są tdTomato+. (A-E) Reprezentatywne obrazy hodowli mezenchymy wyizolowanej zgodnie z niniejszym protokołem, wysianej na płytkę 6-dołkową i obrazowanej po 1 (A), 4 (B,C) oraz 7 (D,E) dniach hodowli. Paski skali = 100 µm. (F) Ilościowe oznaczenie stosunku komórek GFP/tdTomato na pole widzenia (procenty) w 1., 4. i 7. dniu hodowli. Skróty: FOXL1 = białko Forkhead box L1; GFP = zielone białko fluorescencyjne. Aby wyświetlić powiększoną wersję tego rysunku, kliknij tutaj.
Aby ocenić ten protokół izolacji i określić skład komórkowy, analizowano otrzymaną zawiesinę komórkową metodą cytometrii przepływowej (Rysunek 3). Ogólnie 69% izolowanych komórek było żywych na podstawie barwienia DAPI (Rysunek 3 III); spośród żywych komórek 60,9% stanowiły zanieczyszczenia nabłonkowe oraz komórki odpornościowe i śródbłonkowe (CD326+, CD45+ i CD31+; Rysunek 3 IV). Frakcja telocytów (GFP+) rozpraszała się powyżej 100k dla FSC i 70k dla SSC (Rysunek 3 VI) i stanowiła prawie 10% wyselekcjonowanego mezenchymu (żywe CD45-, CD326-, CD31-) (Rysunek 3 V).
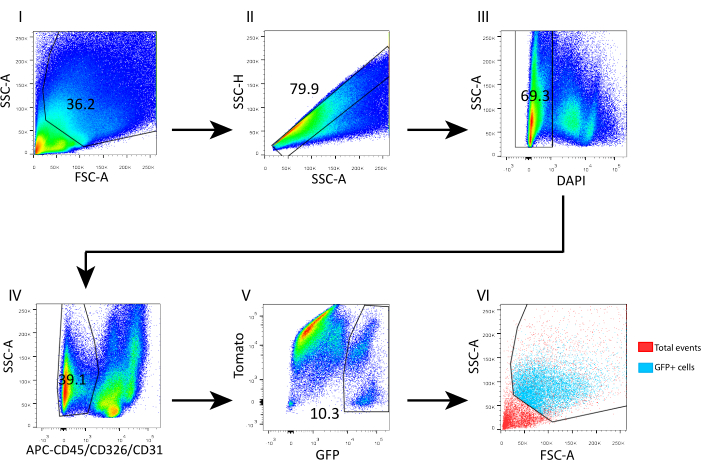
Rysunek 3: Strategia bramkowania w cytometrii przepływowej w celu sortowania telocytów z wyizolowanej mezenchymy jelita dorosłej myszy. (I) Wykluczono zdarzenia o niskim rozproszeniu bocznym. (II) Pojedyncze komórki wybrano na podstawie stosunku SSC-height do SSC-area. (III) Bramkowano zdarzenia DAPI+, aby wykluczyć martwe komórki z sortowania. (IV) Bramkowano zdarzenia DAPI- CD45+/CD326+/CD31+, aby odpowiednio wykluczyć komórki immunologiczne, nabłonkowe i śródbłonkowe. (V) Telocyty GFP+ stanowiły 10,3% komórek DAPI- CD45-/CD326-/CD31-. (VI) Analiza back-gating ujawniła współrzędne telocytów GFP+ na wykresie FSC-A/SSC-A. Skróty: SSC-A = pole powierzchni piku rozproszenia bocznego; FSC-A = pole powierzchni piku rozproszenia przedniego; SSC-H = wysokość piku rozproszenia bocznego; DAPI = 4',6-diamidino-2-phenylindole; GFP = zielone białko fluorescencyjne; APC = allofikocyjanina. Aby zobaczyć powiększoną wersję tego rysunku, kliknij tutaj.
Równolegle wyizolowaliśmy również mezenchym z jelita myszy szczepu dzikiego (WT) C57Bl6, w której frakcję telocytów oceniono przy użyciu kombinacji markerów powierzchniowych wcześniej analizowanych na mezenchym wyizolowanym z modelu mysiego FOXL1Cre: Rosa-mTmG, w którym frakcja telocytów była znakowana GFP. Stwierdzono, że podzbiór telocytów można zdefiniować poprzez pozytywne barwienie na CD201 oraz podoplaninę (GP38) (Rysunek 4). Ponadto zastosowanie tych markerów w immunobarwieniu 1 dzień po izolacji i hodowli potwierdziło, że choć komórki nie wykazywały jeszcze swoich charakterystyk komórkowych, uzyskały one ekspresję tych markerów molekularnych, wykazując barwienie w 70%-80% telocytów GFP+ (Rysunek 5).
Frakcja telocytów zdefiniowana za pomocą markerów powierzchniowych nie jest tożsama z frakcją uzyskaną przy użyciu myszy reporterowej napędzanej przez FOXL1; telocyty są wysoce heterogenne i zawierają kilka podgrup. W celu definicji telocytów konieczne jest połączenie markerów powierzchniowych z oznakowaniem FOXL1. W jelicie cienkim myszy FOXL1Cre: Rosa-mTmG 60%-70% komórek GFP+ wykazuje pozytywny wynik dla CD201, a 65%-80% jest pozytywnych dla GP38. Przy stosowaniu markerów powierzchniowych należy zwrócić uwagę, że niewłaściwe przechowywanie oraz powtarzające się cykle zamrażania i rozmrażania przeciwciał zmniejszają wydajność wiązania. Ponadto trawienie enzymatyczne może zaburzyć ekspresję markerów powierzchniowych. Zaobserwowano, że ekspresja CD138, proteoglikanu transbłonowego występującego w komórkach mezenchymalnych, została zaburzona i znacznie zmniejszona w wyniku dysocjacji.
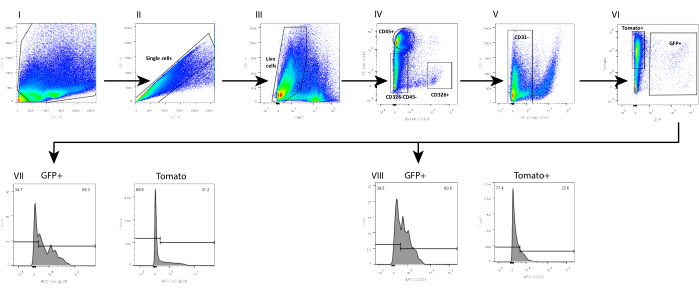
Rysunek 4: Analiza FACS zawiesiny pojedynczych komórek mezenchymy wyizolowanych z jelita cienkiego myszy FOXL1Cre: Rosa-mTmG zgodnie z obecnym protokołem. Analiza FACS (I-II) pojedynczych komórek, (III) DAPI-, (IV-VI) komórek Lin-(CD45-, CD326-, CD31-) GFP+, wykazująca, że (VII) 65,3% komórek GFP+ i 31,2% komórek Tomato+ są pozytywne dla GP38, podczas gdy (VIII) 60,5% komórek GFP+ i 22,6% komórek Tomato+ są pozytywne dla CD201. Skróty: SSC-A = pole powierzchni piku rozproszenia bocznego; FSC-A = pole powierzchni piku rozproszenia przedniego; SSC-H = wysokość piku rozproszenia bocznego; DAPI = 4',6-diamidino-2-fenyloindol; GFP = zielone białko fluorescencyjne; APC = alloficocyjanina; PE = fikoerytryna. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
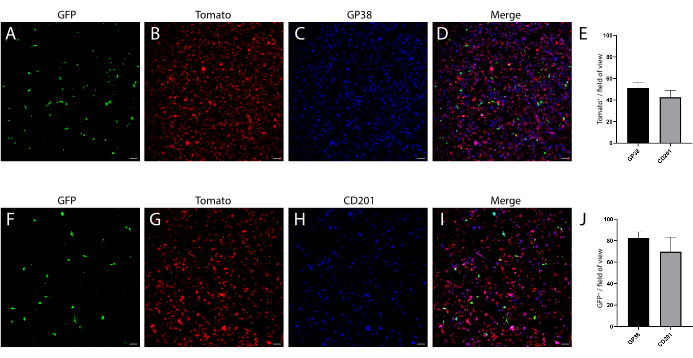
Rysunek 5: Pierwszy dzień hodowli mezenchymy, utrwalonej i barwionej na markery mezenchymalne. (A-D) Reprezentatywne obrazy hodowanej mezenchymy barwionej na GP38. (F-I) Reprezentatywne obrazy hodowanej mezenchymy barwionej na CD201. Paski skali = 100 µm. (E) Ilościowe oznaczenie komórek podwójnie dodatnich Tomato+ GP38+ i Tomato+ CD201+ w stosunku do całkowitej liczby komórek Tomato+. (J) Ilościowe oznaczenie komórek podwójnie dodatnich GFP+ GP38+ i GFP+ CD201+ w stosunku do całkowitej liczby komórek GFP+. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Roztwór A: | HBSS uzupełniony o 2% FBS, 1 mM DL-ditiotreitol (DTT), 2 mM EDTA (pH 8.0). | |||
| Medium uzupełnione 1640 (CM1640): | medium RPMI 1640 uzupełnione o 10% FBS, Pen/Strep (100 jednostek penicyliny/mL, 100 µg streptomycyny/mL). | |||
| Roztwór do trawienia: | 100 U/mL kolagenazy typu VIII, 75 mg/mL DNazy I w 4 mL podgrzanego CM1640. Uwaga: kolagenazę i DNazę I należy dodać bezpośrednio przed rozpoczęciem procedury trawienia. | |||
| Pożywki hodowlane: | pożywki DMEM-F12 uzupełnione o 10 µg/mL gentamycyny, 10 mM HEPES, glutaminę, Pen/Strep (100 jednostek penicyliny/mL, 100 µg streptomycyny/mL). | |||
| Bufor FACS: | PBS uzupełniony o 5% FBS i 1 mM EDTA. | |||
Tabela 1: Skład wszystkich roztworów użytych w protokole.
Tabela uzupełniająca S1: Tutaj wymieniono główne różnice między obecnym protokołem a dwoma protokołami referencyjnymi. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
W tym miejscu opracowaliśmy protokół izolacji mezenchymy z jelita cienkiego myszy przy użyciu mysiego modelu myszy FOXL1-Cre: Rosa26-mTmG, który umożliwia naukowcom odróżnienie telocytów od innych komórek mezenchymalnych. W tym protokole należy wykonać kilka krytycznych kroków. Po pierwsze, ważne jest, aby energicznie wstrząsnąć probówką z prędkością czterech lub pięciu cykli/s, aby usunąć większość komórek nabłonka podczas izolacji mezenchymy. Czas inkubacji trawienia enzymatycznego musi być zoptymalizowany w oparciu o wydajność trawienia. Podczas inkubacji płytki należy delikatnie wstrząsać poziomo przez kilka sekund co 20 minut. Gdy tkanka stanie się podobna do włókna, inkubację należy zatrzymać, przechodząc do kroku protokołu 2.12. Wystawienie tkanki na długi czas trawienia może skutkować niską żywotnością i wydajnością komórek. Po trawieniu enzymatycznym probówkę należy mechanicznie wstrząsnąć, aby uwolnić więcej pojedynczych komórek do zawiesiny; Idealnie byłoby, gdyby roztwór wyglądał na mętny i nie były widoczne żadne fragmenty tkanki. Jeśli tak nie jest, należy przedłużyć trawienie enzymatyczne do 60 minut.
Utrzymanie sterylnych warunków i unikanie potencjalnego skażenia bakteryjnego jest jednym z kluczowych kroków podczas pracy z pierwotną hodowlą tkankową. Należy używać sterylnych narzędzi presektoryjnych, odczynników i; Rękawice należy zmienić, a obszar roboczy należy oczyścić po zakończeniu pracy ze zwierzętami. Po uzyskaniu zawiesiny komórek prace należy prowadzić pod laminarnym kapturem biologicznym. Po posiewie komórki powinny być inkubowane przez noc bez zakłóceń, ponieważ może to wpłynąć na przyleganie. Ponadto ważne jest, aby wymienić pożywkę hodowlaną dzień po wysiewie, ponieważ nieprzylegające komórki mogą wpływać na żywotność hodowli.
Markery powierzchniowe użyte w tym protokole silnie reagowały ze swoimi epitopami; jednak możliwe jest, że trawienie enzymatyczne może wpływać na reaktywność wiązania, a tym samym na wyniki analizy FACS. Kolejnym ograniczeniem tego protokołu jest niedostateczna reprezentacja warstwy mięśniowej. Aby poprawić skuteczność izolacji komórek warstwy mięśniowej, zalecamy mechaniczne oddzielenie mięśnia od warstw błony śluzowej i oddzielne trawienie enzymatyczne dla każdej z warstw. Do dysocjacji nabłonka od zrębu można zastosować separację mechaniczną lub środki chelatujące (EDTA lub DTT); Jednak trawienie enzymatyczne w celu uzyskania pojedynczych komórek zostało zoptymalizowane w tym protokole.
Izolacja mezenchymii jelitowej została wcześniej opisana8; zeskrobanie kosmków szkiełkiem nakrywkowym spowodowałoby utratę części mezenchymii wzdłuż kosmków, zwłaszcza komórek mezenchymalnych końca kosmków, takich jak telocyty Lgr5 + końcówki kosmków13. W tym protokole wykorzystujemy kolagenazę typu VIII zamiast dyspazy II i trypsynę w połączeniu z DNazą I, ponieważ kolagenaza skuteczniej uwalnia komórki mezenchymalne z macierzy. Chociaż wydłuża to czas przetwarzania (>90 min vs. 35 min), oba protokoły dały podobne wskaźniki żywotności komórek; Obecny protokół poprawił ogólną wydajność komórek mezenchymalnych, a dokładniej frakcji telocytów. Obecny protokół dał około 10% telocytów GFP+ , potwierdzonych zarówno przez wizualizację, jak i analizę FACS, podczas gdy wcześniejszy protokół dał 2% telocytów GFP+ . Główne różnice między obecnym protokołem a dwoma protokołami referencyjnymi wymieniono w tabeli uzupełniającej S1.
Identyfikacja komórek FOXL1+GFP+ jako telocytów podnabłonkowych opiera się na badaniach in vivo . Potrzeba opracowania i modyfikacji dostępnych protokołów izolacji mezenchymy w celu uzyskania wyższej wydajności telocytów oraz wiedza o tym, jak to osiągnąć, opierały się na naszym zrozumieniu struktury i funkcji telocytów FOXL1 + in vivo, jako dużych komórek z długimi projekcjami komórkowymi ściśle połączonymi z komórkami nabłonkowymi.
Co ciekawe, telocyty ex vivo GFP+ wykazują cechy komórkowe podobne do ich cech in vivo w jelicie i dlatego sugeruje się, że służą jako idealne wsparcie dla wzrostu organoidów. Chociaż protokół ten omawia głównie izolację telocytów z jelita cienkiego, podobny protokół z niewielką modyfikacją może być stosowany i łatwo stosowany w przypadku komórek mezenchymalnych okrężnicy, takich jak niedawno opisana komórka zrębu jelitowego regulowana MAP3K2 (MRISC)12.
Gdy komórki mezenchymalne rozciągną się i osiągną zbieg, można je wykorzystać do kilku dodatkowych zastosowań, takich jak kohodowla 3D z organoidami pochodzącymi od myszy lub ludzi, przy użyciu Matrigelu wolnego od czynnika wzrostu. Mezenchyma zazwyczaj tworzy sieć w pełni wspierającą tworzenie i wzrost organoidów bez suplementacji egzogennego czynnika wzrostu. Zrąb jelitowy ma wewnętrzne cechy 3D, które mogą zapewnić nabłonkowi mechaniczne wsparcie14. Dlatego protokół ten może być również wykorzystany do wyizolowania mezenchymy, która ma zostać zintegrowana z rusztowaniem drukowanym biologicznie w 3D i wykorzystana do dalszych eksperymentów z ksenoprzeszczepami.
Oświadczenia
Autorzy nie mają do zadeklarowania konfliktu interesów.
Podziękowania
Ta praca była wspierana przez granty z Izraelskiej Fundacji Naukowej (osobisty grant MSC) oraz wspólny program między Izraelską Fundacją Naukową a Narodową Fundacją Nauk Przyrodniczych Chin.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Probówki wirówkowe 15 ml | Corning | 430052 | |
| Probówki wirówkowe 50 ml | Corning | 430828 | |
| 5 ml polistyrenowa probówka okrągłodenna z nasadką sitka komórkowego | Corning | 352235 | |
| 6-dołkowa płytka do hodowli komórkowych | Costar | 3516 | |
| APC Anti-Mouse CD31 | Biolegend | 102509 | |
| APC Anti-Mouse CD326 | Biolegend | 118213 | |
| APC Anti-Mouse CD45 | Biolegend | 103111 | |
| Cell Lifter | Corning | 3008 | |
| Sitko do komórek 100μ m Nylon Żółty | Corning | CLS431752 | |
| Kolagenaza typ VIII | Sigma | C2139-500MG | |
| DL-Ditiothreitol (DTT) | Sigma | 43815-1G | |
| DMEM/F-12 (HAM) 1:1 | Biological Industries | 01-170-1A | |
| DNase I | Sigma | DN25-1G | |
| Dulbecco's Modified Eagle Medium (DMEM) | Biologiczny Przemysł | 01-055-1A | |
| buforowana fosforanem Dulbecco | Sigma | D1283-500ML | 10x |
| EDTA 0,5 M, pH 8,0 | Przemysł biologiczny | 01-862-1B | |
| FBS | Przemysł biologiczny | 04-007-1A | |
| Gentamycyna | Sigma | G1914-250MG | 100x |
| Gluta Max-I | Gibco | 35050-038 | 100x |
| Hank' s Zrównoważony roztwór soli (HBSS) | Przemysł biologiczny | 02-017-5A | 10x |
| HEPES | Gibco | 15630-080 | 100x |
| Penicylina-Streptomycyna (Pen/Strep) | Przemysł biologiczny | 03-033-1B | 100x |
| RPMI 1640 średni | Gibco | 21875-034 | |
| Trypsyna EDTA Roztwór B | Sartorius | 03-052-1A |
Bibliografia
- Carroll, T. D., Newton, I. P., Chen, Y., Blow, J. J., Näthke, I. Lgr5+ intestinal stem cells reside in an unlicensed G1 phase. The Journal of Cell Biology. 217 (5), 1667-1685 (2018).
- Kinchen, J., et al. Structural remodeling of the human colonic mesenchyme in inflammatory bowel disease. Cell. 175 (2), 372-386 (2018).
- Popescu, L. M., Faussone-Pellegrini, M. -S. TELOCYTES - a case of serendipity: The winding way from Interstitial Cells of Cajal (ICC), via Interstitial Cajal-Like Cells (ICLC) to TELOCYTES. Journal of Cellular and Molecular Medicine. 14 (4), 729-740 (2010).
- Gherghiceanu, M., Manole, C. G., Popescu, L. M. Telocytes in endocardium: electron microscope evidence. Journal of Cellular and Molecular Medicine. 14 (9), 2330-2334 (2010).
- Ceafalan, L., Gherghiceanu, M., Popescu, L. M., Simionescu, O. Telocytes in human skin—are they involved in skin regeneration. Journal of Cellular and Molecular Medicine. 16 (7), 1405-1420 (2012).
- Hinescu, M. E., Gherghiceanu, M., Suciu, L., Popescu, L. M. Telocytes in pleura: two- and three-dimensional imaging by transmission electron microscopy. Cell and Tissue Research. 343 (2), 389-397 (2011).
- Popescu, L. M., et al. Telocytes in human epicardium. Journal of Cellular and Molecular Medicine. 14 (8), 2085-2093 (2010).
- Shoshkes-Carmel, M., et al. Subepithelial telocytes are an important source of Wnts that supports intestinal crypts. Nature. 557 (7704), 242-246 (2018).
- Dekkers, J. F., et al. A functional CFTR assay using primary cystic fibrosis intestinal organoids. Nature Medicine. 19 (7), 939-945 (2013).
- Sato, T., et al. Long-term expansion of epithelial organoids from human colon, adenoma, adenocarcinoma, and Barrett’s epithelium. Gastroenterology. 141 (5), 1762-1772 (2011).
- Vonk, A. M., et al. Protocol for application, standardization and validation of the forskolin-induced swelling assay in cystic fibrosis human colon organoids. STAR Protocols. 1 (1), 100019(2020).
- Wu, N., et al. MAP3K2-regulated intestinal stromal cells define a distinct stem cell niche. Nature. 592 (7855), 606-610 (2021).
- Bahar Halpern, K., et al. Lgr5+ are a signaling source at the intestinal villus tip. Nature Communication. 11 (1), 1936(2020).
- Koliaraki, V., Pallangyo, C. K., Greten, F. R., Kollias, G. Mesenchymal cells in colon cancer. Gastroenterology. 152 (5), 964-979 (2017).
Przedruki i uprawnienia
