Wykonalność strategii sekwencjonowania całego genomu (WGS) przy użyciu narzędzi laboratoryjnych uprościła badanie genomu każdego mikroba istotnego dla zdrowia publicznego w warunkach laboratoryjnych. Opisano adaptację metodologiczną przepływu pracy dla bakteryjnych WGS, a także przedstawiono proces analizy bioinformatycznej.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Charakterystyka patogennego szczepu Escherichia coli pochodzącego z gospodarstw Oreochromis spp. przy użyciu sekwencjonowania całego genomu
W tym artykule
Informacja o sprostowaniu
Important: There has been an erratum issued for this article. View Erratum Notice
Podsumowanie
Streszczenie
Akwakultura jest jednym z najszybciej rozwijających się sektorów produkcji żywności na świecie, a hodowla tilapii (Oreochromis spp.) stanowi główną odmianę ryb słodkowodnych w hodowli. Ponieważ praktyki akwakultury są podatne na zanieczyszczenie mikrobiologiczne pochodzące ze źródeł antropogenicznych, konieczne jest szerokie stosowanie antybiotyków, co prowadzi do tego, że systemy akwakultury stają się ważnym źródłem opornych na antybiotyki i chorobotwórczych bakterii o znaczeniu klinicznym, takich jak Escherichia coli (E. coli). W tym przypadku oporność na środki przeciwdrobnoustrojowe, zjadliwość i cechy mobilomu patogennego szczepu E. coli, odzyskanego z hodowli śródlądowej Oreochromis spp., wyjaśniono za pomocą sekwencjonowania całego genomu (WGS) i analizy in silico. Przeprowadzono badania wrażliwości na środki przeciwdrobnoustrojowe (AST) i WGS. Ponadto za pomocą różnych dostępnych narzędzi internetowych określono grupę filogenetyczną, serotyp, typowanie sekwencji wielolocus (MLST), nabytą oporność na środki przeciwdrobnoustrojowe, zjadliwość, plazmid i zawartość profagów. Izolat E. coli wykazywał jedynie pośrednią wrażliwość na ampicylinę i został scharakteryzowany jako szczep ONT:H21-B1-ST40 za pomocą typowania opartego na WGS. Chociaż wykryto tylko jeden gen związany z opornością na środki przeciwdrobnoustrojowe [mdf(A)], zidentyfikowano kilka genów związanych ze zjadliwością (VAG) z atypowego enteropatogennego patotypu E. coli (aEPEC). Dodatkowo wykryto ładunek replikonów plazmidowych z dużych grup plazmidowych i 18 regionów związanych z profagami. Podsumowując, charakterystyka WGS izolatu aEPEC, odzyskanego z hodowli ryb w Sinaloa w Meksyku, pozwala na wgląd w jego potencjał chorobotwórczy i możliwe ryzyko dla zdrowia ludzkiego związane ze spożywaniem surowych produktów akwakultury. Konieczne jest wykorzystanie technik sekwencjonowania nowej generacji (NGS) do badania mikroorganizmów środowiskowych oraz przyjęcie ram dla jednego zdrowia, aby dowiedzieć się, skąd biorą się problemy zdrowotne.
Wprowadzenie
Akwakultura jest jednym z najszybciej rozwijających się sektorów produkcji żywności na świecie, a jej praktyki produkcyjne mają na celu zaspokojenie rosnącego popytu na żywność do spożycia przez ludzi. Światowa produkcja akwakultury potroiła się z 34 mln ton w 1997 r. do 112 mln ton w 2017 r1. Głównymi grupami gatunkowymi, odpowiadającymi za blisko 75% produkcji, były wodorosty, karpie, małże, sumy i tilapia (Oreochromis spp.)1. Jednak pojawienie się chorób wywołanych przez jednostki mikrobiologiczne jest nieuniknione z powodu intensywnej hodowli ryb, co prowadzi do potencjalnych strat ekonomicznych2.
Stosowanie antybiotyków w hodowli ryb jest dobrze znane w zapobieganiu i leczeniu infekcji bakteryjnych, co jest głównym czynnikiem ograniczającym produktywność3,4. Niemniej jednak pozostałości antybiotyków gromadzą się w osadach akwakultury i wodzie, wywierając selektywne ciśnienie i modyfikując społeczności związane z rybami i rezydującymi w nich bakteriami5,6,7,8. W związku z tym środowisko akwakultury służy jako rezerwuar genów oporności na środki przeciwdrobnoustrojowe (ARG) oraz dalszego pojawiania się i rozprzestrzeniania bakterii opornych na antybiotyki (ARB) w otaczającym środowisku9. Oprócz patogenów bakteryjnych powszechnie obserwowanych wpływających na praktyki hodowli ryb, często spotyka się członków rodziny Enterobacteriaceae, w tym ludzkie szczepy patogenów Enterobacter spp., Escherichia coli, Klebsiella spp. i Salmonella spp.10. E. coli jest najpowszechniejszym mikroorganizmem izolowanym z mączki rybnej i wody w hodowli ryb11,12,13,14,15.
E. coli to wszechstronna bakteria Gram-ujemna, która zamieszkuje przewód pokarmowy ssaków i ptaków jako komensalny element ich mikrobioty jelitowej. Jednak E. coli posiada wysoce adaptacyjną zdolność do kolonizacji i utrzymywania się w różnych niszach środowiskowych, w tym w glebie, osadach, żywności i wodzie16. Ze względu na przyrost i utratę genów w wyniku zjawiska horyzontalnego transferu genów (HGT), E. coli szybko przekształciła się w dobrze przystosowany patogen oporny na antybiotyki, zdolny do wywoływania szerokiego spektrum chorób u ludzi i zwierząt17, 18. Ze względu na pochodzenie izolacji, warianty chorobotwórcze definiuje się jako patogenne jelitowe E. coli (InPEC) lub patogenne pozajelitowe E. coli (ExPEC). Ponadto InPEC i ExPEC są podzielone na dobrze zdefiniowane patotypy w zależności od objawów choroby, tła genetycznego, cech fenotypowych i czynników wirulencji (VF)16,17,19.
Tradycyjne techniki hodowli i molekularne dla patogennych szczepów E. coli pozwoliły na szybkie wykrycie i identyfikację różnych patotypów. Mogą one być jednak czasochłonne, pracochłonne i często wymagać wysokiego poziomu szkolenia technicznego19. Co więcej, żadna pojedyncza metoda nie może być wykorzystana do wiarygodnego zbadania wszystkich patogennych wariantów E. coli ze względu na złożoność ich tła genetycznego. Obecnie te wady zostały przezwyciężone wraz z pojawieniem się technologii sekwencjonowania o wysokiej przepustowości (HTS). Sekwencjonowanie całego genomu (WGS) i narzędzia bioinformatyczne usprawniły eksplorację DNA drobnoustrojów w przystępnej cenie i na dużą skalę, ułatwiając dogłębną charakterystykę drobnoustrojów w jednym przebiegu, w tym blisko spokrewnionych wariantów patogennych20,21,22. W zależności od pytań biologicznych, do analizy danych można wykorzystać kilka narzędzi bioinformatycznych, algorytmów i baz danych. Na przykład, jeśli głównym celem jest ocena obecności ARG, VF i plazmidów, narzędzia takie jak ResFinder, VirulenceFinder i PlasmidFinder, wraz z powiązanymi z nimi bazami danych, mogą być dobrym punktem wyjścia. Carriço et al.22 przedstawili szczegółowy przegląd różnych programów bioinformatycznych i powiązanych baz danych stosowanych do analizy mikrobiologicznej WGS, od wstępnego przetwarzania surowych danych po wnioskowanie filogenetyczne.
Kilka badań wykazało szeroką użyteczność WGS do badania genomu pod kątem cech oporności na środki przeciwdrobnoustrojowe, potencjału patogennego oraz śledzenia powstawania i ewolucyjnych powiązań klinicznie istotnych wariantów E. coli pochodzących z różnych źródeł23,24,25,26. Projekt WGS umożliwił identyfikację mechanizmów molekularnych leżących u podstaw fenotypowej oporności na środki przeciwdrobnoustrojowe, w tym rzadkich lub złożonych mechanizmów oporności. Odbywa się to poprzez wykrywanie nabytych wariantów ARG, nowych mutacji w genach docelowych dla leków lub regionach promotorowych27,28. Co więcej, WGS oferuje możliwość wnioskowania o profilach oporności na środki przeciwdrobnoustrojowe bez konieczności posiadania wcześniejszej wiedzy na temat fenotypu oporności szczepu bakteryjnego29. Alternatywnie, projekt WGS umożliwił scharakteryzowanie ruchomych elementów genetycznych (MGE) niosących zarówno oporność na środki przeciwdrobnoustrojowe, jak i cechy wirulencji, co przyczyniło się do ewolucji genomu bakteryjnego istniejących patogenów. Na przykład zastosowanie WGS podczas dochodzenia w sprawie wybuchu epidemii E. coli w Niemczech w 2011 r. doprowadziło do odkrycia unikalnych cech genomowych pozornie nowego patotypu E. coli; Co ciekawe, te szczepy epidemiczne pochodziły z grupy enteroagregacyjnej E. coli (EAEC), która nabyła profag kodujący toksynę Shiga z patotypu enterokwotocznego E. coli (EHEC)30.
Ta praca przedstawia metodologiczną adaptację przepływu pracy dla bakteryjnych WGS przy użyciu sekwencera laboratoryjnego. Co więcej, za pomocą narzędzi internetowych zapewniony jest potok bioinformatyczny do analizy powstałych sekwencji i dalszego wspierania badaczy z ograniczoną wiedzą bioinformatyczną lub bez niej. Opisane metody pozwoliły na wyjaśnienie cech oporności na środki przeciwdrobnoustrojowe, zjadliwości i mobilomu patogennego szczepu E. coli ACM5, wyizolowanego w 2011 r. z hodowli śródlądowej Oreochromis spp. w Sinaloa, Meksyk12.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
UWAGA: Szczep E. coli ACM5 został wyizolowany poprzez opracowanie i hodowlę próbki ryby w celu oznaczenia bakterii grupy coli (FC)12. Podczas pobierania próbek ryby nie wykazywały klinicznych objawów choroby, infekcji bakteryjnych ani grzybiczych, a średnia temperatura wynosiła 22.3 °C. Po izolacji izolat E. coli poddano testom biochemicznym i kriokonserwowano w bulionie BHI (brain heart infusion) z dodatkiem DMSO (8% v/v) jako środka krioprotekcyjnego.
1. Reaktywacja zamrożonej kultury zapasowej E. coli ACM5
- Otwórz probówkę z zamrożonymi bakteriami i za pomocą sterylnej pętli, końcówki pipety lub wykałaczkę zeskrob powierzchnię zamrożonej kultury bakteryjnej.
- Wymaż bakterie na płytce z agarem Luria-Bertani (LB) i inkubuj w temperaturze 37 ± 2 °C przez 24 h.
2. Oznaczanie podatności na antybiotyki
UWAGA: Opisane tutaj badanie wrażliwości na środki przeciwdrobnoustrojowe odpowiada metodzie dyfuzyjnej z użyciem krążków, opartej na wytycznych Clinical and Laboratory Standards Institute (CLSI) (M02 Ed13:2018)31. Do celów kontroli jakości wymagany jest szczep E. coli ATCC 25922.
- Przygotowanie inokulum metodą zawiesiny kolonii
- Z płytki LB inkubowanej w kroku 1.2 wykreślić jedną lub dwie kolonie na płytkę z agarem Muellera-Hintona (MH) i inkubować w temperaturze 37 ± 2 °C przez 18-24 h.
- Za pomocą sterylnej pętli pobrać dwie lub trzy kolonie z nowo przesiewanego izolatu E. coli z płytki z agarem MH i zawiesić je w 3 mL sterylnego bulionu MH lub 0,85% (w/v) roztworu soli fizjologicznej, mieszając dokładnie w wibratorze (vortexie) w celu uzyskania jednorodnej zawiesiny bakteryjnej.
- Używając spektrofotometru UV-vis (patrz Tabela materiałów), dostosować mętność zawiesiny bakteryjnej do standardu 0,5 McFarland (co odpowiada około 1-2 x 10⁸ komórek/mL). Jeśli zawiesina bakteryjna jest zbyt rzadka lub zbyt gęsta, dodać odpowiednio więcej kolonii E. coli lub bulionu MH. Przygotowanego inokulum należy użyć w ciągu 15 min od przygotowania.
- Inokulacja testowych płytek z agarem
- Zanurzyć sterylny tampon bawełniany w dostosowanej zawiesinie bakteryjnej. Obrócić tampon kilka razy i mocno docisnąć go do wewnętrznej ścianki probówki, aby usunąć nadmiar płynu z tamponu.
- Zaszczepić płytkę z agarem MH, przeciągając tampon 3x po całej powierzchni agaru, obracając płytkę o 60° za każdym razem. Przetrzeć również krawędź agaru, aby zapewnić równomierne rozłożenie inokulum.
- Pozostawić pokrywkę szalki Petriego uchyloną przez 3-5 min, aby umożliwić odparowanie wilgoci.
- Nakładanie dysków z antybiotykiem na zaszczepione płytki z agarem
- Rozmieścić równomiernie i docisnąć każdy dysk z antybiotykiem (patrz Tabela materiałów) do powierzchni zaszczepionych płytek z agarem, aby zapewnić pełny kontakt. Odwrócić płytki w ciągu 15 min po nałożeniu dysków i inkubować w temperaturze 35 ± 2 °C przez 16-18 h.
UWAGA: W szalkach Petriego o średnicy 150 mm i 100 mm należy użyć odpowiednio maksymalnie 12 i 6 dysków.
- Rozmieścić równomiernie i docisnąć każdy dysk z antybiotykiem (patrz Tabela materiałów) do powierzchni zaszczepionych płytek z agarem, aby zapewnić pełny kontakt. Odwrócić płytki w ciągu 15 min po nałożeniu dysków i inkubować w temperaturze 35 ± 2 °C przez 16-18 h.
- Po inkubacji zmierzyć wielkość stref zahamowania wzrostu za pomocą suwmiarki i zinterpretować otrzymane średnice zgodnie z kryteriami punktowymi CLSI (M100 - Tabela 2A)32.
3. Izolacja i oznaczanie ilościowe genomowego DNA (gDNA)
- Ekstrakcja genomowego DNA
- Resuspender ilość kultury pobraną pętlą z hodowli świeżej E. coli kolonie w 5 ml bulionu LB i inkubować przez noc w inkubatorze z wytrząsaniem (180 obr./min) w temperaturze 37 ± 2 °C.
- Odwiruj zawiesinę bakteryjną przy 3 500 x g przez 5 min, a następnie ostrożnie odpiąć nadsącz.
- Wyizoluj gDNA zgodnie z instrukcją dołączoną do zestawu do ekstrakcji DNA (patrz Tabela materiałów).
- Sprawdź czystość gDNA, mierząc gęstość optyczną przy 260/280 nm (stosunek: >1,8) oraz 260/230 nm (stosunek: 2,0–2,2) przy użyciu spektrofotometru UV-Vis. Przeprowadzić elektroforezę w 0,8% żelu agarozowym w celu weryfikacji integralności gDNA.
- Oznaczanie ilości genomowego DNA
UWAGA: Należy używać wyłącznie przezroczystych probówek do PCR o cienkich ściankach o pojemności 0,5 ml, zatwierdzonych przez producenta zestawu do analizy fluorescencyjnej (patrz Tabela materiałów).- Przygotuj wymaganą liczbę probówek dla próbek i standardów analizy. Przygotuj roboczy roztwór analityczny, mieszając komponent A i komponent B dostarczone w zestawie, zgodnie z wytycznymi producenta.
- Przygotować standardy do analizy poprzez dodanie 190 µL roztworu roboczego i 10 µL każdego standardu do odpowiedniej probówki (wymagane są dwa standardy).
- Dodaj 198 µL roztworu roboczego i 2 µL próbki DNA do odpowiedniej probówki. Wszystkie probówki energicznie wymieszać za pomocą vortexa przez 5 s. Należy uważać, aby nie doprowadzić do powstania pęcherzyków powietrza.
- Inkubować wszystkie probówki przez 2 min w temperaturze pokojowej, chroniąc je przed światłem. Pomiar fluorescencji wszystkich probówek przeprowadzić zgodnie z wytycznymi producenta przy użyciu fluorometru (patrz Tabela materiałów).
- Odpowiednio dostosuj stężenie próbki gDNA przed przystąpieniem do sekwencjonowania.
4. Przygotowanie biblioteki DNA
UWAGA: Przygotowanie biblioteki DNA oraz sekwencjonowanie przeprowadzono zgodnie z wytycznymi i protokołami producenta (patrz Tabela materiałów). Początkowe stężenie gDNA wynosi 4.0 ng.
- Tagmentacja, amplifikacja PCR i indeksowanie
- Do probówki o objętości 0,2 mL dodać 2,5 µL buforu do tagmentacji oraz 2 µL wejściowego gDNA (2,0 ng/µL). Pomieszać delikatnie, pipetując.
- Dodać 1 µL buforu do amplifikacji i pomieszać delikatnie, pipetując. Wirować przy 280 x g przez 1 min w temperaturze pokojowej.
- Próbki umieścić w termocyklerze (patrz Tabela materiałów) i przeprowadzić następujący program PCR: 55 °C przez 5 min, następnie utrzymać 10 °C. Gdy próbki osiągną 10 °C, niezwłocznie przystąpić do neutralizacji reakcji.
- Do probówek z próbkami dodać 1 µL buforu neutralizującego i pomieszać delikatnie, pipetując. Wirować przy 280 x g przez 1 min i inkubować przez 5 min w temperaturze pokojowej.
- Dodać 1,7 µL każdego adaptera indeksującego (tj. indeksów i7 i i5) oraz 3 µL gotowego mieszania PCR do indeksowania. Pomieszać delikatnie, pipetując. Wirować przy 280 x g przez 1 min w temperaturze pokojowej.
- Próbki umieścić w termocyklerze i przeprowadzić drugą reakcję PCR zgodnie z następującym schematem: 72 °C przez 3 min, 95 °C przez 30 s, 18 cykli składających się z 95 °C przez 10 s, 55 °C przez 30 s, 72 °C przez 30 s, następnie 72 °C przez 5 min i utrzymanie 10 °C.
- Oczyszczanie amplifikowanej biblioteki
- Pomieszać za pomocą wortexa komercyjny roztwór kulek magnetycznych (patrz Tabela materiałów) zgodnie z wytycznymi producenta.
- Przenieść próbkę tagmentowanego/indeksowanego gDNA do nowej probówki 1,5 mL i dodać 0,6 µL kulek magnetycznych na każdy 1 µL końcowej objętości próbki gDNA (≈13 µL). Pomieszać delikatnie, pipetując i inkubować przez 5 min w temperaturze pokojowej.
- Probówki z próbkami umieścić na statywie magnetycznym (patrz Tabela materiałów) na 2 min, aż nadfiltr się wyklaruje. Ostrożnie usunąć i odrzucić nadfiltr, nie poruszając kulek.
- Dodać 200 µL świeżo przygotowanego 80% etanolu bez mieszania. Inkubować przez 30 s, aż eluat się wyklaruje, a następnie ostrożnie usunąć i odrzucić nadfiltr, nie poruszając kulek.
- Przeprowadzić drugi etap płukania. Dodać 200 µL 80% etanolu do kulek i inkubować przez 30 s. Po wyklarowaniu eluatu usunąć i odrzucić nadfiltr, a następnie suszyć kulki na powietrzu przez 10 min.
- Dodać 15 µL buforu Tris 10 mM (pH 8) do kulek i pomieszać delikatnie, pipetując. Inkubować przez 2 min w temperaturze pokojowej. Ponownie umieścić probówki z próbkami na statywie magnetycznym na 2 min, aby nadfiltr się wyklarował.
- Ostrożnie przenieść 14 µL nadfiltru z probówki do nowej probówki 0,2 mL. Jest to oczyszczona biblioteka.
UWAGA: Na tym etapie oczyszczoną bibliotekę można przechowywać w temperaturze -20 °C przez maksymalnie 7 dni.
- Normalizacja biblioteki
- Przystąpić do kwantyfikacji oczyszczonych bibliotek za pomocą analizy fluorescencyjnej, zgodnie z opisem w kroku 3.2, z wyjątkiem kroku 3.2.5.
- Wizualizować oczyszczone biblioteki za pomocą elektroforezy w 1% żelu agarozowym w celu określenia średniej wielkości fragmentów.
- Obliczyć wartość molarności biblioteki, korzystając z następującego równania:
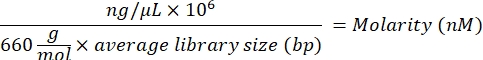
- Wykorzystując wartość molarności, obliczyć odpowiednie objętości buforu do resuspensji (RSB) oraz oczyszczonych bibliotek, aby rozcieńczyć poszczególne biblioteki do stężenia początkowego 10 nM.
5. Łączenie bibliotek, denaturacja i uruchomienie sekwenatora
- Rozmrozić kartridż z odczynnikami zgodnie z instrukcją producenta. Wyjąć celę przepływową z lodówki (4 °C) i doprowadzić ją do temperatury pokojowej przed sekwencjonowaniem.
- Połączyć po 5 µL każdej znormalizowanej biblioteki (10 nM) w probówce low-bind o pojemności 1,5 mL. Rozcieńczyć połączoną bibliotekę do stężenia 4 nM odpowiednią objętością buforu RSB.
- Do nowej probówki low-bind o pojemności 1,5 mL dodać 5 µL połączonej biblioteki (4 nM) oraz 5 µL 0,2 N NaOH. Krótko wymieszać za pomocą wortexa, wirować przy 280 x g przez 1 min, a następnie inkubować przez 5 min w temperaturze pokojowej, aby zdenaturować połączoną bibliotekę do postaci pojedynczych nici.
- Delikatnie wymieszać poprzez pipetowanie 10 µL zdenaturowanej połączonej biblioteki z 990 µL schłodzonego buforu do hybrydyzacji i przechowywać na lodzie do momentu wykonania końcowego rozcieńczenia przed załadowaniem do sekwenatora. Stężenie zdenaturowanej połączonej biblioteki wynosi 20 pM.
- Rozmrozić i przygotować bibliotekę kontrolną (patrz Tabela materiałów) o stężeniu 4 nM, mieszając 2 µL biblioteki kontrolnej (10 nM) z 3 µL wody wolnej od nukleaz.
- Wymieszać 5 µL biblioteki kontrolnej (4 nM) i 5 µL świeżo przygotowanego 0,2 N NaOH. Krótko wymieszać za pomocą wortexa, wirować przy 280 x g przez 1 min, a następnie inkubować przez 5 min w temperaturze pokojowej, aby zdenaturować bibliotekę kontrolną do postaci pojedynczych nici.
- Delikatnie wymieszać poprzez pipetowanie 10 µL zdenaturowanej biblioteki kontrolnej z 990 µL schłodzonego buforu do hybrydyzacji i przechowywać na lodzie do momentu wykonania końcowego rozcieńczenia przed załadowaniem do sekwenatora. Stężenie zdenaturowanej biblioteki kontrolnej wynosi 20 pM.
- W nowej probówce low-bind o pojemności 1,5 mL połączyć 594 µL zdenaturowanej połączonej biblioteki o stężeniu 20 pM oraz 6 µL zdenaturowanej biblioteki kontrolnej o stężeniu 20 pM. Wymieszać dokładnie.
- Rozcieńczyć końcową mieszaninę bibliotek (20 pM) do końcowego stężenia załadowania 1,2 pM w objętości 600 µL, używając schłodzonego buforu do hybrydyzacji.
- Przed załadowaniem końcowej mieszaniny bibliotek do kartridża z odczynnikami przeprowadzić dodatkową obróbkę termiczną w celu zapewnienia wydajnego załadowania do celi przepływowej. Inkubować końcową mieszaninę bibliotek przez 2 min w temperaturze 96 °C. Odwrócić probówkę, aby wymieszać zawartość, a następnie umieścić probówkę na lodzie na 5 min.
- Nalać 500 µL końcowej mieszaniny bibliotek do odpowiedniego zbiorniczka w kartridżu z odczynnikami. Rozpocząć sekwencjonowanie zgodnie z wytycznymi. Załadować celę przepływową oraz kartridż z odczynnikami i skonfigurować przebieg sekwencjonowania.
6. Analiza danych sekwencyjnych
UWAGA: Szczegółowy opis ogólnego wstępnego przetwarzania danych WGS, wykorzystanego oprogramowania, ustawień parametrów oraz analizy sekwencji genomu E. coli znajduje się w Pliku uzupełniającym 1.
- Połącz się z serwerem danych sekwencjonowania i pobierz pliki FASTQ.
- Oceń początkową jakość surowych danych sekwencyjnych przy użyciu oprogramowania zewnętrznego. Usuń z surowych danych sekwencjonowania pozostałości sekwencji adapterów, zasady o niskiej jakości (Supplementary File 1).
- Złóż dane sekwencjonowania po kontroli jakości do poziomu kontigów lub rusztowań (scaffolds) przy użyciu oprogramowania zewnętrznego (patrz Supplementary File 1).
- Przeprowadź adnotację genomu, przesyłając plik FASTA zawierający zmontowany genom na serwer RAST (https://rast.nmpdr.org/).
- Prześlij plik FASTA na platformy internetowe Center for Genome Epidemiology (CGE) (http://www.genomicepidemiology.org/services/) oraz ClermonTyping (http://clermontyping.iame-research.center/index.php), aby zidentyfikować cechy epidemiologiczne, ARGs, VAGs i plazmidy (patrz Supplementary File 1).
- Prześlij plik FASTA na serwer PHASTER w celu identyfikacji sekwencji profagów (https://phaster.ca/).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Podatność na środki przeciwdrobnoustrojowe określono metodą dyfuzyjną z krążkami i zinterpretowano zgodnie z kryteriami punktowymi CLSI dla 12 antybiotyków należących do sześciu różnych klas przeciwdrobnoustrojowych, mianowicie: aminoglikozydów, β-laktamów, fluorochinolonów, nitrofuranów, fenikoli oraz antagonistów szlaku kwasu foliowego. Szczep E. coli ACM5 wykazał wrażliwość na wszystkie antybiotyki z wyjątkiem jednego leku β-laktamowego. Przebadano cztery leki β-laktamowe: ampicylinę, karbenycylinę, cefalotyn...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
W niniejszym badaniu przedstawiono adaptację przepływu pracy bakteryjnego WGS przy użyciu sekwenatora laboratoryjnego i procesu charakterystyki genomowej patogennego wariantu E. coli . W zależności od zastosowanej platformy sekwencjonowania, czasy realizacji (TAT) dla mokrych procedur laboratoryjnych (hodowla bakterii, ekstrakcja gDNA, przygotowanie biblioteki i sekwencjonowanie) oraz analizy sekwencji mogą się różnić, szczególnie jeśli badane są wolno rosnące bakterie. Zgodnie z opisanym powyżej protokołem dla ...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Do Narodowej Rady Nauki i Technologii Meksyku (CONACyT według akronimu w języku hiszpańskim) za stypendium doktoranckie przyznane José Antonio Magaña-Lizárraga [nr 481143].
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Accublock Mini cyfrowa sucha kąpiel | Labnet | D0100 | Sucha kąpiel do inkubacji probówek |
| Agencourt AMPure XP | Beckman Coulter | A63881 | Koraliki magnetyczne w roztworze do oczyszczania biblioteki DNA |
| DeNovix DS-11 | DeNovix Inc. | Spektofotometr UV-Vis do sprawdzania jakości wyekstrahowanych | |
| gDNA DNA LoBind Probówki | Eppendorf | 0030108418 | 1,5 ml do PCR do łączenia bibliotek DNA |
| DynaMag-2 Magnet | Invitrogen, Thermo Fisher Scientific | 12321D | Magnetyczny stojak na mikroprobówki używany podczas oczyszczania DNA na bazie kulek magnetycznych |
| Gram-ujemny identyfikator Multibac | Badanie diagnostyczne (Meksyk) | PT-35 | Komercyjne standardowe krążki antybiotykowe do badania wrażliwości na środki przeciwdrobnoustrojowe |
| MiniSeq Mid Output Kit (300 cykli) | Illumina | FC-420-1004 | Kartridżka odczynników do sekwencjonowania sparowanych końców (2x150) |
| MiniSeq System | Instrument Illumina | SY-420-1001 | Sekwencer stołowy używany do sekwencjonowania nowej generacji |
| Wirówka | MiniSpinEppendorf | 5452000816 | Standardowa wirówka do probówek |
| Nextera XT DNA Library Preparation Kit | Illumina | FC-131-1024 | Odczynniki do wykonywania bibliotek DNA do sekwencjonowania. Zawiera odczynniki do 24 próbek |
| Zestaw indeksów Nextera XT v2 | Illumina | FC-131-2001, FC-131-2002, FC-131-2003, FC-131-2004 | Zestaw indeksów A, B, C, D |
| PhiX Control v3 | Illumina | FC-110-3001 | Kontrola biblioteki DNA do sekwencjonowania |
| Precyzyjna kąpiel wodna | LabCare America | 51221081 | Wytrząsarka do kąpieli wodnej używana do hodowli bakterii |
| Qubit 1X dsDNA HS Assay Kit | Invitrogen, Thermo Fisher Scientific | Q33231 | Odczynniki do oznaczania ilościowego DNA na podstawie fluorescencji |
| Fluorometr Qubit 2.0 | Invitrogen, Thermo Fisher Scientific | Q32866 | Fluorometr używany do oznaczania fluorescencji |
| Probówki do testów kubitowych | Invitrogen, Thermo Fisher Scientific | Q32856 | 0,5 ml probówki PCR do oznaczania ilościowego DNA na podstawie fluorescencji |
| SimpliAmp Thermal Cycler | Applied Biosystems, Thermo Fisher Scientific | A24811 | Termocykler używany do amplifikacji biblioteki DNA |
| Spectronic GENESYS 10 Vis | Thermo | 335900 | Spektrofotometr używany do zawiesiny bakteryjnej w testowaniu wrażliwości na środki przeciwdrobnoustrojowe |
| ZymoBIOMICS DNA Miniprep Kit | Zymo Research Inc. | D4300 | Zestaw do ekstrakcji genomowego DNA (50 przygotowań) |
Bibliografia
- Naylor, R. L., et al. A 20-year retrospective review of global aquaculture. Nature. 591 (7851), 551-563 (2021).
- Quesada, S. P., Paschoal, J. A. R., Reyes, F. G. R. Considerations on the aquaculture development and on the use of veterinary drugs: special issue for fluoroquinolones-a review. Journal of Food Science. 78 (9), 1321-1333 (2013).
- Defoirdt, T., Sorgeloos, P., Bossier, P. Alternatives to antibiotics for the control of bacterial disease in aquaculture. Current Opinion in Microbiology. 14 (3), 251-258 (2011).
- Stentiford, G. D., et al. New paradigms to help solve the global aquaculture disease crisis. PLOS Pathogens. 13 (2), 1006160(2017).
- Chen, H., et al. Tissue distribution, bioaccumulation characteristics and health risk of antibiotics in cultured fish from a typical aquaculture area. Journal of Hazardous Materials. 343, 140-148 (2018).
- Zhou, M., et al. Antibiotics control in aquaculture requires more than antibiotic-free feeds: A Tilapia farming case. Environmental Pollution. 268, 115854(2021).
- Feng, Y., et al. Ecological effects of antibiotics on aquaculture ecosystems based on microbial community in sediments. Ocean & Coastal Management. 224, 106173(2022).
- Shen, X., Jin, G., Zhao, Y., Shao, X. Prevalence and distribution analysis of antibiotic resistance genes in a large-scale aquaculture environment. Science of The Total Environment. 711, 134626(2020).
- Su, H., et al. Contamination of antibiotic resistance genes (ARGs) in a typical marine aquaculture farm: source tracking of ARGs in reared aquatic organisms. Journal of Environmental Science and Health, Part B. 55 (3), 220-229 (2020).
- Oliveira, R. V., Oliveira, M. C., Pelli, A. Disease infection by Enterobacteriaceae family in fishes: a review. Journal of Microbiology & Experimentation. 4 (5), 00128(2017).
- Barbosa, M. M. C., et al. Sorologia e suscetibilidade antimicrobiana em isolados de Escherichia coli de pesque-pagues. Arquivos do Instituto Biológico. 81 (1), 43-48 (2014).
- Valenzuela-Armenta, J. A., et al. Microbiological analysis of Tilapia and water in aquaculture farms from Sinaloa. Biotecnia. 20 (1), 20-26 (2018).
- Reza, R. H., Shipa, S. A., Naser, M. N., Miah, M. F. Surveillance of Escherichia coli in a fish farm of Sylhet, Bangladesh. Bangladesh Journal of Zoology. 48 (2), 335-346 (2021).
- Liao, C. -Y., et al. Antimicrobial resistance of Escherichia coli From aquaculture farms and their environment in Zhanjiang, China. Frontiers in Veterinary Science. 8, 806653(2021).
- Dewi, R. R., et al. Prevalence and antimicrobial resistance of Escherichia coli, Salmonella and Vibrio derived from farm-raised Red Hybrid Tilapia (Oreochromis spp.) and Asian Sea Bass (Lates calcarifer, Bloch 1970) on the west coast of Peninsular Malaysia. Antibiotics. 11 (2), 136(2022).
- Leimbach, A., Hacker, J., Dobrindt, U. E. coli as an all-rounder: the thin line between commensalism and pathogenicity. Current Topics in Microbiology and Immunology. 358, 3-32 (2013).
- Kaper, J. B., Nataro, J. P., Mobley, H. L. T. Pathogenic Escherichia coli. Nature Reviews Microbiology. 2 (2), 123-140 (2004).
- Croxen, M. A., Finlay, B. B. Molecular mechanisms of Escherichia coli pathogenicity. Nature Reviews Microbiology. 8 (1), 26-38 (2010).
- Croxen, M. A., et al. Recent advances in understanding enteric pathogenic Escherichia coli. Clinical Microbiology Reviews. 26 (4), 822-880 (2013).
- Bertelli, C., Greub, G. Rapid bacterial genome sequencing: methods and applications in clinical microbiology. Clinical Microbiology and Infection. 19 (9), 803-813 (2013).
- Lynch, T., Petkau, A., Knox, N., Graham, M., Van Domselaar, G. A primer on infectious disease bacterial genomics. Clinical Microbiology Reviews. 29 (4), 881-913 (2016).
- Carriço, J. A., Rossi, M., Moran-Gilad, J., Van Domselaar, G., Ramirez, M. A primer on microbial bioinformatics for nonbioinformaticians. Clinical Microbiology and Infection. 24 (4), 342-349 (2018).
- Magaña-Lizárraga, J. A., et al. Draft genome sequence of Escherichia coli M51-3: a multidrug-resistant strain assigned as ST131-H30 recovered from infant diarrheal infection in Mexico. Journal of Global Antimicrobial Resistance. 19, 311-312 (2019).
- Pérez-Vázquez, M., et al. Emergence of NDM-producing Klebsiella pneumoniae and Escherichia coli in Spain: phylogeny, resistome, virulence and plasmids encoding blaNDM-like genes as determined by WGS. Journal of Antimicrobial Chemotherapy. 74 (12), 3489-3496 (2019).
- Massella, E., et al. Snapshot study of whole genome sequences of Escherichia coli from healthy companion animals, livestock, wildlife, humans and food in Italy. Antibiotics. 9 (11), 782(2020).
- Magaña-Lizárraga, J. A., et al. Genomic profiling of antibiotic-resistant Escherichia coli isolates from surface water of agricultural drainage in north-western Mexico: detection of the international high-risk lineages ST410 and ST617. Microorganisms. 10 (3), 662(2022).
- Saracino, I. M., et al. Next Generation sequencing for the prediction of the antibiotic resistance in Helicobacter pylori: a literature review. Antibiotics. 10 (4), 437(2021).
- Ghosh, A., Saha, S. Survey of drug resistance associated gene mutations in Mycobacterium tuberculosis, ESKAPE and other bacterial species. Scientific Reports. 10 (1), 8957(2020).
- Su, M., Satola, S. W., Read, T. D. Genome-based prediction of bacterial antibiotic resistance. Journal of Clinical Microbiology. 57 (3), 01405-01418 (2019).
- Brzuszkiewicz, E., et al. Genome sequence analyses of two isolates from the recent Escherichia coli outbreak in Germany reveal the emergence of a new pathotype: Entero-Aggregative-Haemorrhagic Escherichia coli (EAHEC). Archives of Microbiology. 193 (12), 883-891 (2011).
- CLSI Performance Standards for Antimicrobial Disk Susceptibility Tests. 13th ed. CLSI standard M02. Wayne, PA: Clinical and Laboratory Standards Institute. , Available from: https://clsi.org/standards/products/microbiology/documents/m02/ (2018).
- CLSI Performance Standards for Antimicrobial Susceptibility Testing. 31st ed. CLSI supplement M100. Clinical and Laboratory Standards Institute. , Available from: https://clsi.org/standards/products/microbiology/documents/m100/ (2021).
- Ewing, B., Green, P. Base-calling of automated sequencer traces using phred. II. Error probabilities. Genome Research. 8 (3), 186-194 (1998).
- Quainoo, S., et al. Whole-genome sequencing of bacterial pathogens: the future of nosocomial outbreak analysis. Clinical Microbiology Reviews. 30 (4), 1015-1063 (2017).
- Desai, A., et al. Identification of optimum sequencing depth especially for de novo genome assembly of small genomes using next generation sequencing data. PLoS ONE. 8 (4), 60204(2013).
- Nishino, K., Yamada, J., Hirakawa, H., Hirata, T., Yamaguchi, A. Roles of TolC-dependent multidrug transporters of Escherichia coli in resistance to β-lactams. Antimicrobial Agents and Chemotherapy. 47 (9), 3030-3033 (2003).
- Li, M., et al. The resistance mechanism of Escherichia coli induced by ampicillin in laboratory. Infection and Drug Resistance. 12, 2853-2863 (2019).
- Ménard, L. -P., Dubreuil, J. D. Enteroaggregative Escherichia coli heat-stable enterotoxin 1 (EAST1): a new toxin with an old twist. Critical Reviews in Microbiology. 28 (1), 43-60 (2002).
- Dubreuil, J. D. EAST1 toxin: An enigmatic molecule associated with sporadic episodes of diarrhea in humans and animals. Journal of Microbiology. 57 (7), 541-549 (2019).
- Goldstein, S., Beka, L., Graf, J., Klassen, J. L. Evaluation of strategies for the assembly of diverse bacterial genomes using MinION long-read sequencing. BMC Genomics. 20 (1), 23(2019).
- Guerrero, A., Gomez-Gil, B., Lizarraga-Partida, M. L. Genomic stability among O3:K6 V. parahaemolyticus pandemic strains isolated between 1996 to 2012 in American countries. BMC Genomic Data. 22 (1), 38(2021).
- FAO Applications of Whole Genome Sequencing (WGS) in food safety management. Food and Agriculture Organization of the United Nations. , Available from: https://www.fao.org/documents/card/es/c/61e44b34-b328-4239-b59c-a9e926e327b4/ (2016).
- Rantsiou, K., et al. Next generation microbiological risk assessment: opportunities of whole genome sequencing (WGS) for foodborne pathogen surveillance, source tracking and risk assessment. International Journal of Food Microbiology. 287, 3-9 (2018).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
Sprostowanie
Formal Correction: Erratum: Characterization of a Pathogenic Escherichia coli Strain Derived from Oreochromis spp. Farms Using Whole-Genome Sequencing
Posted by JoVE Editors on 2/02/2023. Citeable Link.
An erratum was issued for: Characterization of a Pathogenic Escherichia coli Strain Derived from Oreochromis spp. Farms Using Whole-Genome Sequencing. The Authors section was updated from:
José Antonio Magaña-Lizárraga1,
Bruno Gómez-Gil2,
Julissa Enciso-Ibarra2,
María Elena Báez-Flores1
1Unidad de Investigaciones en Salud Pública “Dra. Kaethe Willms”, Facultad de Ciencias Químico Biológicas, Universidad Autónoma de Sinaloa, Ciudad Universitaria
2Centro de Investigación en Alimentación y Desarrollo, A. C. (CIAD), Unidad Mazatlán en Acuicultura y Manejo Ambiental
to:
José Antonio Magaña-Lizárraga1,
Bruno Gómez-Gil2,
Julissa Enciso-Ibarra2,
María Elena Báez-Flores1
1Unidad de Investigaciones en Salud Pública “Dra. Kaethe Willms”, Facultad de Ciencias Químico Biológicas, Universidad Autónoma de Sinaloa
2Centro de Investigación en Alimentación y Desarrollo, A. C. (CIAD), Unidad Mazatlán en Acuicultura y Manejo Ambiental
